FÜNFTES CAPITEL. Die Lebenseigenschaften der Zelle. III. Stoffwechsel und formative Thätigkeit.
Reading edition
Allgemeine Charakteristik.
Die lebende Zelle besitzt ihren eigenen Stoffwechsel, sie nimmt Nahrungssubstanzen auf, verändert sie, führt einige Bestandtheile derselben ihrem Körper zu, während sie andere wieder nach Aussen abgiebt; sie gleicht einem kleinen, chemischen Laboratorium, indem fast fortwährend die verschiedenartigsten chemischen Processe in ihr vor sich gehen, durch welche auf der einen Seite hochmoleculare Stoffe von complicirter Zusammensetzung gebildet, auf der anderen Seite wieder zerstört werden. Die lebendige Substanz befindet sich, um so mehr, je intensiver der Process des Lebens ist, in einer beständigen Selbstzersetzung und einer mit ihr Schritt haltenden Neubildung. In dem Chemismus der Zelle sind daher zwei Hauptphänomene auseinander zu halten, die Phänomene der regressiven und der progressiven Stoffmetamorphose oder wie Claude Bernard (IV. 1a) sich ausdrückt, les phénomènes de destruction et de création organique, de décomposition et de composition.
Bei ihrer Zerstörung wird die lebendige Substanz vermöge Selbstzersetzung durch eine Reihe meist unbekannter Zwischenstufen in einfachere chemische Verbindungen übergeführt. Kohlensäure und Wasser sind die einfachsten Endproducte dieser Zerstörung. Bei ihr wird Spannkraft (potentielle Energie) in lebendige Kraft (kinetische Energie) umgewandelt. Intramoleculare Wärme wird frei und bildet die lebendige Kraft, die zur Hervorbringung der Arbeitsleistungen des Zellkörpers die Vorbedingung ist.
Wie ausserordentlich gross die Zersetzbarkeit der Lebenssubstanzen ist, geht schon daraus hervor, dass der geringste Anstoss oft genügend ist, grosse Umsetzungen und Arbeitsleistungen in den Zellkörpern hervorzurufen. „Sind es nicht, bemerkt Pflüger (V. 25, 26), wahrhaft verschwindend kleine lebendige Kräfte, die in einem Lichtstrahl wirkend, die gewaltigsten Wirkungen in der Retina und dem Gehirn hervorrufen? Wie ganz minimal sind die lebendigen Kräfte der Nerven, wie ganz wunderbar klein die Mengen gewisser Gifte, die ein grosses lebendiges Thier total vernichten.“
Bei der Neubildung lebender Substanz oder der progressiven Metamorphose werden zum Ersatz des Verbrauchten neue Stoffe von aussen aufgenommen, dem Körper einverleibt und in neue chemische Verbindungen übergeführt, bei welchen Arbeitsleistungen wieder Wärme in mehr oder minder hohem Grade gebunden und in Spannkraft umgewandelt wird. Die wieder gebundene Wärme kann theils von der bei den Zersetzungsprocessen frei werdenden intramolecularen Wärme herrühren, theils rührt sie her, wie der Hauptsache nach in den Pflanzen, von der belebenden Wärme der Sonnenstrahlen, durch welche der Organismenwelt ein grosses Quantum lebendiger Kraft zugeführt und im Protoplasmakörper in Spannkraft umgesetzt wird. Die von aussen aufgenommenen Substanzen und die der Sonne entströmende Wärme stellen das Betriebsmaterial und die Betriebskraft dar, durch welche der in Wechsel von Selbstzersetzung und Selbstneubildung sich abspielende Lebensprocess in letzter Instanz unterhalten wird.
Nach der Definition von Pflüger ist „der Lebensprocess die intramoleculare Wärme höchst zersetzbarer und durch Dissociation — wesentlich unter Bildung von Kohlensäure und Wasser und amidartigen Körpern — sich zersetzender, in Zellsubstanz gebildeter Eiweissmolecüle, welche sich fortwährend regeneriren und auch durch Polymerisirung wachsen.“
Trotz grosser Verschiedenartigkeit des Stoffwechsels in den einzelnen Organismen giebt es doch eine Reihe von fundamentalen Processen, welche der gesammten organischen Natur gemeinsam sind und sich im niedrigsten, einzelligen Wesen ebenso abspielen, wie im Körper der Pflanzen und Thiere. Wie in den Bewegungen und Reizerscheinungen, offenbart sich auch in diesen fundamentalen Processen des Stoffwechsels die Einheit der ganzen organischen Natur.
Insofern fallen sie auch in den Bereich der allgemeinen Anatomie und Physiologie der Zelle. Eine Uebereinstimmung macht sich namentlich in folgenden 3 Punkten geltend:
1) Jede Zelle, sei es von Pflanze oder Thier, athmet, das heisst, sie nimmt aus ihrer Umgebung Sauerstoff nach Bedürfniss auf und verbrennt mit Hülfe desselben Kohlenhydrate und Eiweisssubstanzen ihres eigenen Körpers, bei welchem Verbrennungsprocess als letzte Endproducte Kohlensäure und Wasser gebildet werden.
2) In beiden organischen Reichen treten in grosser Zahl entsprechende Substanzen im Stoffwechsel auf, wie Pepsin, Diastase, Myosin, Xanthin, Sarcin, Zucker, Inosit, Dextrin, Glycogen, Milchsäure, Ameisensäure, Essig- und Buttersäure.
3) In beiden Reichen sind manche Processe, durch welche complicirte chemische Verbindungen dargestellt werden, identisch oder wenigstens sehr ähnlich und unterscheiden sich wesentlich von den Verfahren, durch welche der Chemiker im Stande ist, eine Anzahl organischer Verbindungen auf synthetischem Wege darzustellen. Beim Chemismus der Zelle sowohl der Pflanzen wie der Thiere spielen Fermente eine grosse Rolle, Diastase, Pepsin, Trypsin etc. Darunter versteht man organische Stoffe, welche in der lebenden Zelle erzeugt, in ausserordentlich geringer Menge eine grosse chemische Wirkung entfalten und ohne selbst in nennenswerthem Maasse dabei verbraucht zu werden, hier Kohlenhydrate, dort Eiweisskörper in charakteristischer Weise chemisch verändern können.
„Le chimisme du laboratoire est exécuté à l’aide d’agents et d’appareils que le chimistre a créés, et le chimisme de l’être vivant est exécuté à l’aide d’agents et d’appareils que l’organisme a créés.“ (Claude Bernard IV. 1a.)
Im Folgenden werden wir die einzelnen Erscheinungen des Stoffwechsels besonders von morphologischer Seite näher betrachten, ohne dabei in die meist sehr verwickelten und grossen Theils noch unbekannten chemischen Processe näher einzugehen. Wir können im Verlauf des Stoffwechsels 3 Stadien unterscheiden, die Stoffaufnahme, die im Innern des Protoplasma erfolgende Stoffumsetzung und die Stoffabgabe. Das erste und letzte dieser Stadien wollen wir gemeinsam, alsdann das zweite für sich allein besprechen.
I. Die Stoffaufnahme und Stoffabgabe der Zelle.
Alle Zellen nehmen sowohl Gase, als auch Stoffe in flüssigem oder gelöstem und daher diffusionsfähigem Zustand in sich auf, manche Zellen endlich benutzen als Nahrung auch Körper von festem Aggregatzustand. Die 3 Reihen von Erscheinungen verlangen eine gesonderte Besprechung.
1) Die Aufnahme und Abgabe gasförmiger Stoffe.
In gasförmigem Zustand können die verschiedenartigsten Stoffe vom Protoplasma aufgenommen werden. (Sauerstoff, Stickstoff, Wasserstoff, Kohlensäure, Kohlen- und Stickoxyd, Ammoniak-, Chloroform-, Aetherdämpfe und dergleichen mehr.)
Von allgemeiner Bedeutung für den Stoffwechsel ist indessen nur die Aufnahme von Sauerstoff und Kohlensäure, besonders von dem ersteren.
Ohne Aufnahme von Sauerstoff, welchen Vorgang man die Athmung nennt, kein Leben! Sauerstoffathmung ist mit wenigen Ausnahmen (anaërobe Bakterien etc.) eine Fundamentaleigenschaft der gesammten organischen Natur; sie ist für die Stoffwechselprocesse, auf denen das Leben beruht und bei denen oxydative Spaltung hochmolecularer Verbindungen die lebendigen Kräfte liefern muss, unbedingt nothwendig. Sauerstoffmangel bringt in der Regel sehr rasch die Functionen der Zelle, die Reizbarkeit, die Bewegungsfähigkeit etc. zum Stillstand; schliesslich führt er mit Nothwendigkeit den Tod herbei.
Eine scheinbare Ausnahme von dem fundamentalen Process der Athmung scheinen die Gährungsorganismen, die Spalt- und Sprosspilze, zu liefern. Denn sie können bei vollständigem Abschlusse von Sauerstoff in einer geeigneten Nährflüssigkeit wachsen und sich vermehren. In diesem Fall wird der für die Oxydationsvorgänge im Protoplasma erforderliche Sauerstoff und die Betriebskraft für den Lebensprocess durch Zerlegung von Gährmaterial gewonnen. Ebenso leben Darmparasiten in einer ziemlich sauerstofffreien Umgebung durch Spaltung von Verbindungen des ihnen im Ueberschuss gebotenen Nahrungsbreies. (Bunge V. 2.)
Welche Rolle spielt der Sauerstoff bei seiner Aufnahme in die Zelle?
Früher glaubte man, dass der Sauerstoff auf die lebende Materie direct oxydirend einwirke, dass er, wie man sich bildlich ausdrückte, einen Verbrennungsprocess im Körper hervorrufe, durch welchen Wärme geliefert werde. Der Vorgang ist jedenfalls ein complicirterer, wobei die Kräfte, welche zur Bindung des Sauerstoffs führen, von der lebenden Substanz selbst ausgehen. In dem Protoplasma, diesem Gemisch eigenthümlicher Eiweisskörper und ihrer Derivate, in welchem ausserdem noch Fette und Kohlenhydrate als Einlagerungen enthalten sind, finden, durch geringfügige Einwirkungen veranlasst, beständig moleculare Umlagerungen und Umgruppirungen von Atomen, unter diesen auch Zersetzungen und Dissociationen, statt. „Hierbei entwickeln sich in vielen Spaltproducten fortdauernd auch Affinitäten zum freien Sauerstoff (oxydative Spaltung) und ziehen ihn auf diese Weise in den Stoffwechsel mit hinein.“ (Pflüger V. 25, 26.) So entstehen bei der Athmung auf Kosten der organischen Substanz sauerstoffreichere Verbindungen und durch fortgesetzte Spaltung und Oxydation derselben schliesslich Kohlensäure und Wasser, die wichtigsten Endproducte des unter Sauerstoffathmung einhergehenden Zersetzungsprozesses der lebenden Substanz.
Es gilt dies für jede thierische, für jede pflanzliche Zelle.
Wenn man Pflanzenzellen, in denen das Protoplasma lebhaft strömt (Staubfadenhaare der Tradescantia, Zellen von Characeen), in einen Tropfen reinen Olivenöls legt, so verlangsamt sich bald in Folge des behinderten Zutritts von Sauerstoff die Bewegung und hört bald ganz auf. Dasselbe tritt ein, wenn Pflanzenzellen in eine Atmosphäre gebracht werden, die ausschliesslich aus Kohlensäure, aus Wasserstoff oder aus einem Gemisch von beiden besteht. Zunächst sind nur die Functionen des Protoplasma aufgehoben; wird nach Entfernung des Olivenöls oder der Kohlensäure oder des Wasserstoffs wieder reine Luft zugeleitet, so kehrt nach einer Periode der Erholung allmählich wieder Reizbarkeit und Bewegung zurück. Bei längerer Entziehung des Sauerstoffs aber folgt der Lähmung der Functionen schliesslich der Tod des Protoplasmas unter Trübung, Gerinnung und Zerfall.
Ebenso athmet jede thierische Zelle. Wenn ein bebrütetes Hühnerei in den Anfangsstadien seiner Entwicklung, wo es aus lauter kleinen Zellen zusammengesetzt ist, in eine Kohlensäure-Atmosphäre gebracht wird, oder wenn man die poröse Kalkschale mit Oel durchtränkt, so dass ein Gasaustausch zwischen Keim und Luft nicht mehr stattfinden kann, so stirbt es in wenigen Stunden ab.
Der bei dem Menschen durch die Lungen aufgenommene Sauerstoff dient dazu, um das Sauerstoffbedürfniss aller in den verschiedenen Geweben unseres Körpers enthaltenen Zellen zu befriedigen. Letzteren Vorgang bezeichnet man in der Thierphysiologie im Gegensatz zur Aufnahme des Sauerstoffs oder der Lungenathmung als innere Athmung.
Im ganzen Organismenreich ist der Athmungsprocess mit Kohlensäureabgabe und mit Wärmebildung verbunden. Es ist dies ein einfach chemisches Gesetz: „Wie bei jeder andern Verbrennung von Kohlenstoff und Wasserstoff zu Kohlensäure und Wasser muss auch bei der Athmung ein bestimmtes Quantum von Wärmebewegung erzeugt werden“ (Sachs IV. 32a). Eben so gut wie die thierischen, athmen daher auch die pflanzlichen Zellen Kohlensäure aus und bilden Wärme.
Bei Pflanzen ist die Wärmebildung am leichtesten an lebhaft wachsenden Theilen nachzuweisen, an keimenden Samen, besonders deutlich aber an den Blüthenkolben der Aroideen. Letztere können sich zuweilen bis 15 °C. über die Temperatur der Umgebung erwärmen.
Bei der Athmung regulirt die lebende Zelle selber die Grösse ihres Sauerstoffverbrauches. Derselbe wird einfach bedingt durch das Maass ihrer functionellen Thätigkeit, die mit einer entsprechend grossen Zersetzung organischer Substanz einhergeht. Eine unbefruchtete Eizelle athmet sehr geringe Quantitäten von Sauerstoff ein, desgleichen ein ruhender Pflanzensamen; wenn aber die Eizelle befruchtet wird und der Zellentheilungsprocess in lebhaftem Gange ist, oder wenn der Pflanzensamen keimt, dann wächst die Sauerstoffaufnahme. Sie ist eine Function des in Lebensthätigkeit begriffenen Protoplasmas (Sachs). Hieraus erklärt sich auch leicht die Erscheinung, dass die Sauerstoffaufnahme in die lebende Zelle „innerhalb weiter Grenzen vollkommen unabhängig von dem Partialdruck des neutralen Sauerstoffs ist“. (Pflüger.)
Um das Capitel der Athmung abzuschliessen, ist noch auf eine wichtige Erscheinung einzugehen. Auch bei Abwesenheit von Sauerstoff können die Zellen bald kürzere, bald längere Zeit Kohlensäure ausathmen und Wärme erzeugen. Keimpflanzen in ein Torricelli’sches Vacuum gebracht, fahren fort Kohlensäure auszuhauchen, in den ersten Stunden wie normal, dann in allmählich geringer werdender Quantität.
Frösche lassen sich nach den Versuchen von Pflüger in dem sauerstofffreien und mit Stickstoff gefüllten Raum einer Glasglocke viele Stunden am Leben erhalten, in welcher Zeit eine ziemlich beträchtliche Quantität von Kohlensäure ausgeathmet wird.
Beide Versuche lehren, dass in der Zelle eine Zeit lang auch ohne unmittelbaren Zutritt von Sauerstoff bloss durch Zersetzung organischer Substanz Kohlenstoff- und Sauerstoffatome zur Bildung von Kohlensäure zusammentreten können.
Man bezeichnet diesen Vorgang als intramoleculare Athmung. So lange dieselbe anhält, lebt die Zelle und bleibt, wenn auch mit stetig abnehmender Energie, reizbar und functionsfähig, indem sie einen Theil des Sauerstoffs, der in ihren eigenen Substanzen gebunden ist, als Betriebskraft gebraucht. Bei länger fortgesetzter Entziehung des Sauerstoffs tritt aber immer der Tod ein.
Auch aus den Erscheinungen der intramolecularen Athmung lässt sich der schon oben aufgestellte Satz begründen: „dass nicht der von aussen eindringende Sauerstoff den ersten Anstoss zu den chemischen Vorgängen der Athmung giebt, dass vielmehr innerhalb des Protoplasmas zunächst und primär eine Zersetzung des Eiweissmoleküles stattfindet, welche mit Kohlensäurebildung endigt, dass aber durch den von Aussen her zutretenden Sauerstoff eine restitutio in integrum stattfindet“.
Zu der Gährung, durch welche Gährungserreger auch ohne Sauerstoffzutritt wachsen und sich vermehren und Kohlensäure produciren, bietet die intramoleculare Athmung Vergleichspunkte dar, auf welche besonders Pfeffer (V. 22) aufmerksam gemacht hat.
Während die Aufnahme von Sauerstoff und die Abgabe von Kohlensäure Anfang und Ende einer Reihe complicirter Processe bezeichnen, welche hauptsächlich der regressiven Metamorphose oder der Zerstörung organischer Substanz angehören, bietet uns die Aufnahme und Verarbeitung der Kohlensäure in der Zelle einen Einblick in den entgegengesetzten Process, in den Process der progressiven Metamorphose oder der Erzeugung organischer Substanz. Im Unterschied zur Athmung nennt man diesen Vorgang Assimilation.
Sauerstoffathmung und Assimilation von Kohlensäure treten in jeder Beziehung in Gegensatz zu einander. Jene ist eine fast dem ganzen Organismenreich angehörige, fundamentale Erscheinung, diese dagegen zeigt sich nur auf das Pflanzenreich beschränkt, und auch hier ist sie keine Eigenschaft aller, sondern nur solcher Zellen, die in ihrem Protoplasma Blattgrün oder Blattgelb (Chlorophyll oder Xanthophyll) enthalten. Sauerstoffathmung führt zu oxydativen Zersetzungsprocessen, Kohlensäureassimilation dagegen zur Reduction der Kohlensäure und zur Synthese hochmolecularer, organischer Substanzen. Es sind dies Kohlenhydrate, namentlich Stärke, welche sich in Form kleiner Körnchen in den grünen Pflanzentheilen (Chlorophyllkörnern und Chlorophyllbändern) abgelagert findet.
Bei der Assimilation der Kohlensäure sind die einzelnen Phasen der in der Pflanzenzelle stattfindenden, synthetischen Processe noch in Dunkel gehüllt. Nur so viel lässt sich sagen: Kohlensäure und Wasser bilden das Ausgangsmaterial für die Synthese; dabei entsteht durch Reduction von Kohlensäure und Wasser Sauerstoff und wird als Gas reichlich abgeschieden. Der Process findet im Protoplasma nur bei Gegenwart von Chlorophyll statt, ausser welchem auch noch andere chemische Körper betheiligt sein können. Endlich kann die Kohlensäureassimilation nur im Licht vor sich gehen. Denn um den Sauerstoff aus der Kohlensäure und dem Wassermolecül frei zu machen, ist Wärme nothwendig. Auch hierin stehen sich Kohlensäureassimilation und Sauerstoffathmung gegenüber; hier wird durch Oxydation, die ein Verbrennungsprocess ist, Wärme erzeugt und lebendige Kraft frei gemacht, dort wird zu der Reduction der Kohlensäure Wärme verbraucht und als Spannkraft in den Assimilationsproducten gebunden. Die für diesen Process erforderliche Wärme liefert das Sonnenlicht.
Wenn man eine Wasserpflanze in kohlensäurehaltiges Wasser bringt und in die Sonne stellt, so sieht man alsbald zahlreiche kleine Luftblasen aufsteigen, die, unter einer Glocke gesammelt, bei einer chemischen Analyse zeigen, dass sie hauptsächlich aus Sauerstoff bestehen. Der Abscheidung des Sauerstoffes entsprechend, wird gleichzeitig aus dem Wasser Kohlensäure aufgenommen und zu Kohlenhydraten verarbeitet. Wie hierbei das lebendige, auf Licht empfindliche Protoplasma den Chlorophyllapparat in die zur Richtung und Stärke des Lichtes günstigste Lage zu bringen vermag, wurde schon in einem früheren Capitel (Seite 84) auseinandergesetzt.
Der Vorgang der Assimilation ist im Lichte ein so lebhafter, dass daneben die Sauerstoffathmung und Kohlensäureabgabe, welche zur Unterhaltung des Lebensprocesses absolut nothwendig ist, vollständig in den Hintergrund tritt und daher auch in früherer Zeit ganz übersehen wurde. Dagegen stellen Pflanzen, die in’s Dunkle gebracht werden, sofort die Sauerstoffabscheidung und nicht minder auch die Kohlensäureaufnahme ein, fahren aber im Dunkeln nach wie vor, ebenso wie belichtete Pflanzen, zu athmen fort. Das Gas, das jetzt freilich in viel geringerer Quantität als in obigem Versuch ausgeschieden wird, ist Kohlensäure.
Auf einen interessanten Unterschied, der zwischen Sauerstoffathmung und Kohlensäureassimilation bei den Pflanzen besteht, hat Claude Bernard (IV. 1a) hingewiesen. Er hat Wasserpflanzen durch Chloroform oder Aether in Narcose versetzt und gefunden, dass sie jetzt im Sonnenlicht keinen Sauerstoff mehr ausscheiden. Wie in der Narcose die Reizbarkeit und Bewegungsfähigkeit des Protoplasma, so wird in derselben auch die Chlorophyllfunction, die Fähigkeit, auf synthetischem Wege aus Kohlensäure und Wasser Stärke zu bilden, absolut aufgehoben. Dieselbe kehrt wieder, wenn die Pflanze in reines Wasser zurückgebracht wird. Noch bemerkenswerther aber ist bei diesem Versuch, dass während der Narcose die Athmung unter Abscheidung von Kohlensäure weiter vor sich geht. Dieser Unterschied ist wohl darauf zurückzuführen, dass die Sauerstoffathmung und die mit ihr verbundene Zersetzung zum ganzen Lebensprocess in einem viel innigeren Zusammenhang stehen und daher erst mit dem Leben der Zelle ganz erlöschen. Ehe aber durch Narcose der Tod der Zelle herbeigeführt wird, werden schon längere Zeit zuvor die Functionen der Zelle gelähmt, unter ihnen auch die Chlorophyllfunction.
2) Die Aufnahme und Abgabe flüssiger Stoffe.
Die meisten Substanzen, welche dem Stoffwechsel dienen, werden von den Organismen in gelöstem Zustand aufgenommen. Einzellige und Wasserpflanzen beziehen dieselben aus der ihnen zum Aufenthalt dienenden Flüssigkeit, die Landpflanzen mit Hülfe ihrer Wurzeln aus dem von Wasser durchtränktem Boden. Die Zellen der höheren Thiere ernähren sich durch Aufnahme gelöster Substanzen aus Flüssigkeitsmedien, die bei ihnen freilich erst in Hohlräumen ihres eigenen Körpers durch complicirte Einrichtungen gewonnen werden müssen. Diese Flüssigkeitsmedien sind der Chymusbrei des Darmkanals, das Blut, der Chylus und die Lymphe. Sie spielen für die thierischen Zellen dieselbe Rolle, wie Wasser und Bodenfeuchtigkeit mit den in ihnen gelösten Substanzen für niedere Organismen und für Pflanzen.
Gegenüber veralteten Anschauungen der Physiologie, nach denen die hauptsächlichen Stoffwechselprocesse in die Säfte des Körpers verlegt wurden, kann nicht scharf genug der Satz hervorgehoben werden: Die Zellen sind die Herde der Stoff-Aufnahme, Abgabe und Umsetzung. Die Säfte haben nur die Aufgabe, den Zellen das Nahrungsmaterial in gelöster Form darzubieten und die Zerfallsproducte des Stoffwechsels wieder abzuführen.
Zwischen den Zellen und dem sie umspülenden Medium bestehen die complicirtesten Wechselbeziehungen physikalischer und chemischer Art. Ihre Erforschung gehört zu den schwierigsten Aufgaben, auf die hier nur zum kleinsten Theil eingegangen werden kann.
Jede Zelle ist in ihrer ganzen Organisation an das umgebende Medium auf das genaueste angepasst. Irgendwie erhebliche Veränderungen in der Concentration oder Zusammensetzung desselben führen ihren Tod herbei, doch können in manchen Fällen grössere Veränderungen auch dauernd ertragen werden, vorausgesetzt, dass die verschiedenen Zustände allmählich und in längerer Zeit in einander übergehen, wodurch es den Zellen möglich gemacht wird, sich in ihrer Organisation für die anderen Bedingungen einzurichten.
Wie schon im Capitel der chemischen Reize (Seite 91) erwähnt wurde, können Süsswasseramöben an einen Aufenthalt in Salzwasser gewöhnt werden. Meerthiere können sich einer niederen und höheren Concentration im Salzgehalt anpassen. Wahrscheinlich besteht die Anpassung darin, dass ein Ausgleich zwischen der im Protoplasmakörper eingeschlossenen Flüssigkeit und der Umgebung stattfindet. Daher führen plötzliche Veränderungen zum sofortigen Tod unter Verquellung oder Schrumpfung und Gerinnung des Protoplasma.
Da bei den Wirbelthieren sich die vom Gewebssaft umspülten Zellen unter so ausserordentlich künstlichen Bedingungen befinden, ist es schwierig, kleine Gewebstheile nach ihrer Abtrennung vom übrigen Körper auch nur kürzere Zeit am Leben zu erhalten. Denn auch die Gewebssäfte verändern sich fast sofort, wenn sie vom lebenden Körper getrennt werden. Daher können zur Untersuchung der Gewebe im Zustand des Ueberlebens Blutserum, Augenwasser, Fruchtwasser, Jodserum oder künstlich zusammengesetzte ähnliche Gemische nur als einigermaassen indifferente Zusatzflüssigkeiten dienen; einen Ersatz für die natürlichen Bedingungen bieten sie selbstverständlicher Weise keineswegs.
Wenn man genauer das Verhältniss untersucht, in welchem die Zelle zu der sie umspülenden Flüssigkeit steht, muss man sich in erster Linie vor der Vorstellung hüten, als ob die erstere von der letzteren einfach durchtränkt werde. Eine solche Vorstellung würde eine durchaus verfehlte sein. Im Gegentheil stellt jede Zelle eine in sich abgeschlossene Einheit dar, welche aus dem Flüssigkeitsgemisch einige Stoffe bald mehr, andere bald minder reichlich in ihr Inneres aufnimmt, andere auch ganz abweist. Verschiedene Zellen können sich in allen diesen Beziehungen sehr ungleich verhalten; mit einem Wort, die Zellen treffen unter den ihnen dargebotenen Stoffen gewissermaassen eine Auswahl.
Ein solches oft sehr verschiedenartiges Wahlvermögen ist sehr leicht nachzuweisen:
Unter den niedersten einzelligen Organismen bilden sich einige ein Skelet aus Kieselsäure, andere aus kohlensaurem Kalk. Gegen beide Stoffe, die in geringen Mengen im Wasser gelöst vorkommen, zeigen sie demnach ein ganz entgegengesetztes Wahlvermögen, das in der Bildung der Kreide und der aus Kieselschalen bestehenden Erdschichten zu einem grossartigen Gesammtresultat geführt hat. Ebenso nehmen die Zellen verschiedener Pflanzen, die in demselben Wasser unter gleichen Bedingungen nebeneinander gedeihen, sehr verschiedene Salze und in ungleichen Mengen in sich auf. Man kann die hier vorkommenden, relativen Verhältnisse leicht berechnen, wenn man die Pflanzen trocknet, verbrennt und die Gesammtasche in Procenten der Trockensubstanz und die einzelnen Aschenbestandtheile wieder in Procenten der Reinasche ausdrückt.
So führte die Aschenuntersuchung von Fucusarten, die an der Westküste von Schottland gesammelt wurden, zu folgenden Ergebnissen, welche Pfeffer (V. 23) in seiner Pflanzenphysiologie tabellarisch zusammengestellt hat:
Fucus vesiculosus Fucus nodosus Fucus serratus Fucus digitata
Reinasche % 13,89 14,51 13,89 18,64
K2O 15,23 10,07 4,51 22,40
Na2O 24,54 26,59 31,37 24,09
CaO 9,78 12,80 16,36 11,86
MgO 7,16 10,93 11,66 7,44
Fe2O3 0,33 0,29 0,34 0,62
P2O5 1,36 1,52 4,40 2,56
SO3 28,16 26,69 21,06 13,26
SiO2 1,35 1,20 0,43 1,56
Cl 15,24 12,24 11,39 17,23
J 0,31 0,46 1,13 3,08
Ueberhaupt lehren Meerespflanzen am besten, in wie ungleichem Maasse sie aus dem Gemenge von Salzen, das ihnen das Meerwasser bietet, das ihnen zum Leben Nothwendige entnehmen. Denn vom Kochsalz, das etwa zu 3% gelöst ist, speichern die Zellen nur wenig in sich auf, dagegen relativ viel grössere Mengen von Kalium-, Magnesium- und Calciumsalzen, die im Meerwasser nur in Spuren vorhanden sind. Und ebenso gestalten sich sehr verschieden die Aschenanalysen der auf demselben Boden nebeneinander gedeihenden Landpflanzen.
Zu demselben Ergebniss führt die Stoffwechseluntersuchung des thierischen Körpers. Nur bestimmte Zellen haben die Neigung, sich der Kalksalze zu bemächtigen, die in kaum nachweisbaren Mengen in der Säftemasse des Körpers enthalten sind, und sie im Knochengewebe aufzuspeichern, bestimmte Zellgruppen des Nierengewebes bemächtigen sich der im Blutstrom circulirenden, zur Harnbildung dienenden Stoffe, andere Zellen des Körpers wieder stapeln Fette in sich auf u. s. w.
Die Factoren, die bei der Aufnahme und Nichtaufnahme von Stoffen mitsprechen, entziehen sich zur Zeit fast ganz unserer Beurtheilung. Doch ist jedenfalls der Nutzen, den ein Stoff für den Haushalt der Zelle bietet, durchaus nicht immer das Entscheidende. Zellen bemächtigen sich auch direct schädlicher oder vollkommen nutzloser Stoffe. In dieser Beziehung ist die sehr verschiedenartige Aufnahme der Anilinfarben in lebende Pflanzenzellen sehr lehrreich. (Pfeffer V. 22b.)
Während Lösungen von Methylenblau, Methylviolett, Cyanin, Bismarkbraun, Fuchsin, Safranin aufgenommen werden, ist dies nicht der Fall mit Lösungen von Nigrosin, Anilinblau, Methylblau, Eosin, Congoroth etc. Ueber Aufnahme oder Nichtaufnahme kann, nach der Angabe von Pfeffer, welcher eingehende Studien hierüber angestellt hat, nur die empirische Erfahrung entscheiden.
Wie mit der Aufnahme, verhält es sich auch mit der Abgabe von Stoffen. Diese wird gleichfalls von den besonderen Eigenschaften des lebenden Zellkörpers bestimmt. Die roth- oder blaugefärbten Zellen der Blumenblätter einer phanerogamen Blüthe lassen die in ihnen eingeschlossene, concentrirte Farbstofflösung, solange sie lebensfrisch sind, nicht in das umgebende Wasser diffundiren. Sowie indessen die Zelle abgetödtet wird, beginnt der Farbstoff durch die Zellwand durchzutreten.
Um alle diese complicirten Verhältnisse wirklich zu verstehen, würde eine erschöpfende Kenntniss der Chemie und Physik der Zellen erforderlich sein. Denn was ich oben als ihr Wahlvermögen bezeichnet habe, wird sich in letzter Instanz zurückführen lassen auf die chemischen Affinitäten der zahlreichen Stoffe, die in den Zellkörpern vorkommen und während der Stoffwechselprocesse vorübergehend gebildet werden. Es wird sich hier ebenso verhalten wie mit der Aufnahme von Sauerstoff und Kohlensäure, die auch nur erfolgen kann, wenn durch den Stoffwechselprocess chemische Affinitäten zu denselben frei werden. Daher denn im Dunkeln von der Pflanze keine Kohlensäure aufgenommen wird, die Aufnahme aber sofort erfolgt, wenn durch die Einwirkung der Sonnenstrahlen der zu ihrer Bindung erforderliche, chemische Process angeregt wird.
Auch die Aufnahme von Anilinfarben in die lebende Zelle lehrt Aehnliches. Aus sehr dünnen Lösungen von Methylenblau saugen Azolla, Spirogyra, Wurzelhaare von Lemna etc. allmählich so viel Farbstoff in sich auf, dass sie ein tiefblaues Colorit gewinnen, wie es etwa einer einprocentigen Lösung entspricht. Das Methylenblau färbt dabei das Protoplasma selbst nicht, sondern dringt nur durch dasselbe hindurch, um sich im Zellsaft in immer concentrirter werdender Lösung anzusammeln. In Folge dessen stirbt die Zelle selbst auch nicht ab, was der Fall sein würde, wenn das giftig wirkende Methylenblau sich in dem Protoplasma in solcher Concentration anhäufen würde. Die Aufspeicherung im Zellsaft aber wird dadurch hervorgerufen, dass in ihm sich Stoffe vorfinden, welche eine schwer diosmirende Verbindung mit der Anilinfarbe herstellen. Als einen solchen Stoff bezeichnet Pfeffer die in Pflanzenzellen häufig vorkommende Gerbsäure. Dieselbe geht mit den Anilinfarben Verbindungen ein, die bald unlöslich sind und daher im Zellsaft als Concremente ausgeschieden werden (Methylenblau, Methylviolett), bald mehr oder weniger löslich sind (Fuchsin, Methylorange, Tropäolin).
Auch Thiere bieten uns schöne Beispiele von Speicherung der Farbstoffe in lebenden Zellen dar. Befruchtete Seeigeleier erhalten in ganz mattgefärbten Lösungen von Methylenblau in kurzer Zeit ein mehr oder minder intensiv blaues Colorit. (Hertwig, IV. 12b.) Bei geringeren Graden der Speicherung schreitet der Furchungsprocess, wenn auch verlangsamt, doch in normaler Weise weiter und kann bis zur Bildung der Gastrula führen. Hier ist denn der Farbstoff besonders in den Entodermzellen angehäuft, was den Schluss erlaubt, dass durch Dottermaterialien die Speicherung herbeigeführt wird. Lebende Frosch- und Tritonlarven werden nach 5–8 Tagen in einer dünnen Lösung von Methylenblau sehr stark gebläut. In diesem Falle ist der Farbstoff an die Granula der Zellen gebunden. (Oscar Schultze, V. 44.) Nach tagelangem Aufenthalt in reinem Wasser tritt allmählich wieder Entfärbung ein. Wenn Indigcarmin einem Säugethier direct ins Blut eingespritzt wird, so wird es bald sowohl von den Leberzellen, als von den Epithelien der gewundenen Harnkanälchen aufgenommen und dann weiter dort in die Gallencapillaren, hier in die Harnkanälchen abgeschieden. (Heidenhain, V. 42). Methylenblau ins Blut gespritzt geht mit der Substanz der Nervenfibrillen eine Bindung ein und verleiht ihnen ein dunkelblaues Colorit. (Ehrlich, V. 41.) Krappfarbstoff wird in der Grundsubstanz des Knochengewebes gespeichert.
Abgesehen von den chemischen Affinitäten, welche zwischen den im Zellkörper und den ausserhalb desselben befindlichen Stofftheilchen bestehen, sind die physikalischen Vorgänge der Osmose für das Verständniss der Stoffaufnahme und -Abgabe von der grössten Bedeutung. Hier ist die grössere oder geringere Durchlässigkeit der Zellhaut zu beachten, in den Fällen, wo eine solche vorhanden ist. Dieselbe ist in der Regel für alle gelösten Substanzen viel durchlässiger als der Protoplasmakörper selbst. Letzterer schliesst sich nach Aussen (vergleiche Seite 13) durch eine Hautschicht ab, welche Pfeffer bei der Osmose die Hauptrolle spielen lässt. Soll nun ein gelöster Körper in das Protoplasma aufgenommen werden, so muss er zunächst in die Halbschicht imbibirt werden, das heisst, seine Moleküle müssen sich zwischen die Plasmatheilchen derselben einlagern und von hier dann weiter in das Innere abgegeben werden. Ein gelöster Körper kann aber auch dann, wenn er selbst nicht imbibirt wird, noch eine osmotische Wirkung in der Weise hervorrufen, dass er auf das in der Zelle enthaltene Wasser eine Anziehung ausübt und so einen nach aussen gerichteten Wasserstrom hervorruft. „Das Wesen der Osmose beruht also darin, dass gleichzeitig zwei Körper nach entgegengesetzter Richtung eine Membran durchwandern, und von einem endosmotischen Aequivalent (ein Ausdruck für die Relation dieses Austausches, auf welchen vielfach zu viel Gewicht gelegt wurde) kann in jenem Fall nicht die Rede sein, in welchem nur Wasser durch eine Membran diosmirt“ (Pfeffer V. 23).
Bei der Zartheit und Kleinheit der thierischen Zellen stossen osmotische Untersuchungen auf grosse Schwierigkeiten. Der Gegenstand ist daher mehr von Seiten der Botaniker bei den weit geeigneteren, pflanzlichen Zellen untersucht und besonders durch folgende Experimente gefördert worden:
Wenn man Pflanzenzellen, die einen grossen Saftraum enthalten, in eine 5–20procentige Lösung von einem geeigneten Salz oder von Zucker oder Glycose bringt (Fig. 59), so verkleinern sich dieselben etwas, indem Wasser von Innen nach Aussen abgegeben wird; darauf hebt sich, wenn die Wasserentziehung weiter fortgeht, der Protoplasmaschlauch von der Cellulosehaut ab, die selbst vermöge ihrer grösseren Festigkeit nicht weiter zusammenschrumpfen kann (de Vries V. 36).
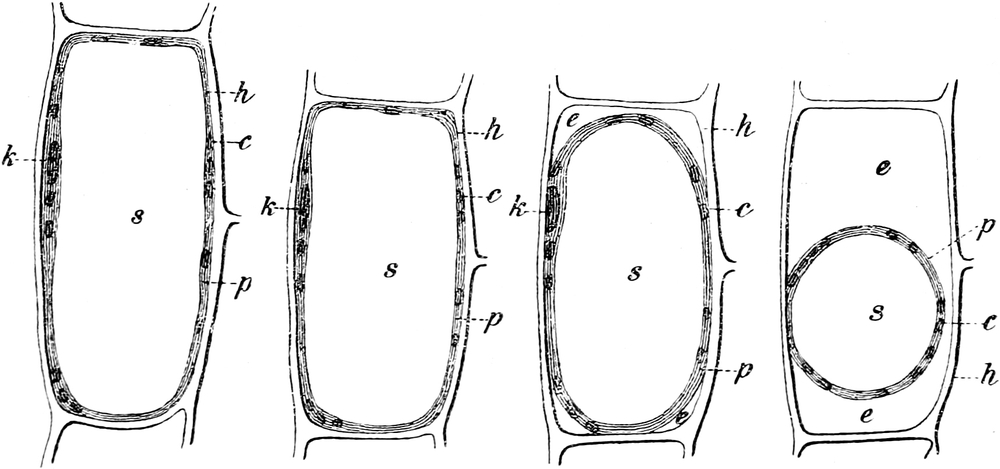
Fig. 59.
Nr. 1. Junge, erst halbwegs erwachsene Zelle aus dem Rindenparenchym des Blüthenstiels von Cephalaria leucantha. Nr. 2. Dieselbe Zelle in vierprocentiger Salpeterlösung. Nr. 3. Dieselbe Zelle in sechsprocentiger Lösung. Nr. 4. Dieselbe Zelle in zehnprocentiger Lösung. Nr. 1 u. 4 nach der Natur, Nr. 2 u. 3 schematisch. Alle im optischen Längsschnitt,
h
Zellhaut.
p
Protoplasmatischer Wandbeleg.
k
Zellkern.
c
Chlorophyllkörner.
s
Zellsaft.
e
Eingedrungene Salzlösung. Nach
DE
V
RIES
(
V. 36
).
Die Salz- oder Zuckerlösung ist also jetzt durch die Cellulosehaut hindurchgetreten und fährt fort, dem Protoplasmaschlauch weiter Wasser zu entziehen. Derselbe schrumpft daher je nach der Concentration der Zusatzflüssigkeit auf einen immer kleineren Raum zusammen. Der in ihm eingeschlossene Saft wird dem entsprechend concentrirter. Trotz dieser unter dem Namen der Plasmolyse zusammengefassten Veränderungen kann der Protoplasmakörper wochenlang am Leben bleiben und das Strömungsphänomen zeigen; er kann sich selbst mit einer neuen Zellhaut umgeben, verharrt aber in dem collabirten Zustand.
Aus dem Verlauf der Plasmolyse kann man zwei Schlüsse ziehen: einmal, dass die Cellulosehaut für die angewandten Salzlösungen durchlässig ist, zweitens, „dass nennenswerthe Mengen des gelösten Salzes durch die Plasmamembran nicht diosmiren, denn ein solches Eindringen in den Protoplasmakörper oder in den Zellsaft würde eine Vermehrung osmotisch wirkender Stoffe im Innern der Plasmamembran und damit eine Volumzunahme des Protoplasmakörpers zur Folge haben“ (Pfeffer).
Wenn die durch Plasmolyse schlaff gewordenen Zellen wieder vorsichtig in reines Wasser übertragen werden, so tritt jetzt der umgekehrte Process ein. Die in der Cellulosemembran eingeschlossene Zuckerlösung diffundirt in das Wasser. In Folge dessen dehnt sich der Protoplasmaschlauch aus, weil jetzt der in ihm enthaltene Zellsaft an osmotisch wirksamen Stoffen reicher als seine Umgebung ist und so eine entgegengesetzte Wasserströmung verursacht. Die Ausdehnung schreitet allmählich durch Wasseraufnahme so weit fort, bis sich der Protoplasmaschlauch wieder an die Cellulosemembran fest angelegt hat, und bis sich schliesslich auch die ganze Zelle wieder zur ursprünglichen Grösse gestreckt hat.
Andere Experimente haben gelehrt, dass der im Innern der Pflanzenzelle eingeschlossene Saft unter einem nicht unerheblichen, oft mehrere Atmosphären betragenden Druck steht. Derselbe bewirkt den natürlichen Turgor oder die Turgescenz von Pflanzentheilen. Er wird dadurch hervorgerufen, dass im Zellsaft osmotisch sehr wirksame Substanzen enthalten sind, wie Salpeter, Pflanzensäuren und ihre Kalisalze, welche auf Wasser eine kräftige Anziehung ausüben (Pfeffer V. 23, de Vries V. 36).
Somit lässt sich der den Zellsaft umschliessende Protoplasmaschlauch einer dünnwandigen, sehr dehnbaren Blase vergleichen, die mit einer concentrirten Salzlösung gefüllt ist. Wird eine solche Blase in reines Wasser gelegt, so muss die Salzlösung Wasser anziehen und so einen Strom hervorrufen, der zur Folge hat, dass die Blase unter dem steigenden Druck ihres sich durch Anziehung vergrössernden Inhalts anschwillt und ihre Wand immer mehr verdünnt wird. Die Dehnung der Blase findet erst ihr Ende, wenn äussere und innere Flüssigkeit sich in osmotischem Gleichgewicht befinden. So müsste auch der Protoplasmaschlauch vieler Pflanzenzellen durch den von innen wirkenden Druck (Turgor) mächtig ausgedehnt werden, wenn dieser Dehnung durch die weniger nachgiebige Cellulosemembran keine Schranke gesetzt würde.
Es könnte nun freilich ein Gleichgewichtszustand zwischen Zellsaft und umgebender Flüssigkeit hergestellt werden, wenn aus der Zelle die osmotisch wirksamen Stoffe in das Wasser diffundiren würden, wodurch die Ursache für den inneren Druck entfernt worden wäre. Dies wird aber ebenfalls durch die Eigenschaften der lebenden Plasmamembran verhindert. Wie dieselbe darüber entscheidet, ob ein Körper in das Innere der Zelle gelangt, so besitzt sie auf der andern Seite auch, wie schon oben erwähnt und an einem Beispiel gezeigt wurde, die wichtige Eigenschaft, im Zellsaft gelöste Stoffe zurückzuhalten, welche ohne diese Eigenschaft vom umspülenden Wasser ausgewaschen werden müssten (Pfeffer V. 23).
Dass der Zellsaft in der That unter einem höheren Druck steht, bei Wasserpflanzen zum Beispiel unter einem höheren Druck als das umgebende Wasser, davon kann man sich durch einfache Experimente leicht überzeugen, wie Nägeli (V. 16) angegeben hat. Wenn in einer Spirogyra eine Zelle durch einen Schnitt geöffnet wird, so dass ihr Inhalt zum Theil ausfliesst, so werden die Querwände der beiden angrenzenden Zellen nach dem Hohlraum des verletzten Gliedes vorgewölbt. Der Druck in den unverletzten Zellen muss daher jetzt grösser sein, als in der angeschnittenen Zelle, in welcher der Druck in Folge der Verletzung auf die Spannung des umgebenden Wassers herabgesunken ist.
3) Die Aufnahme fester Körper.
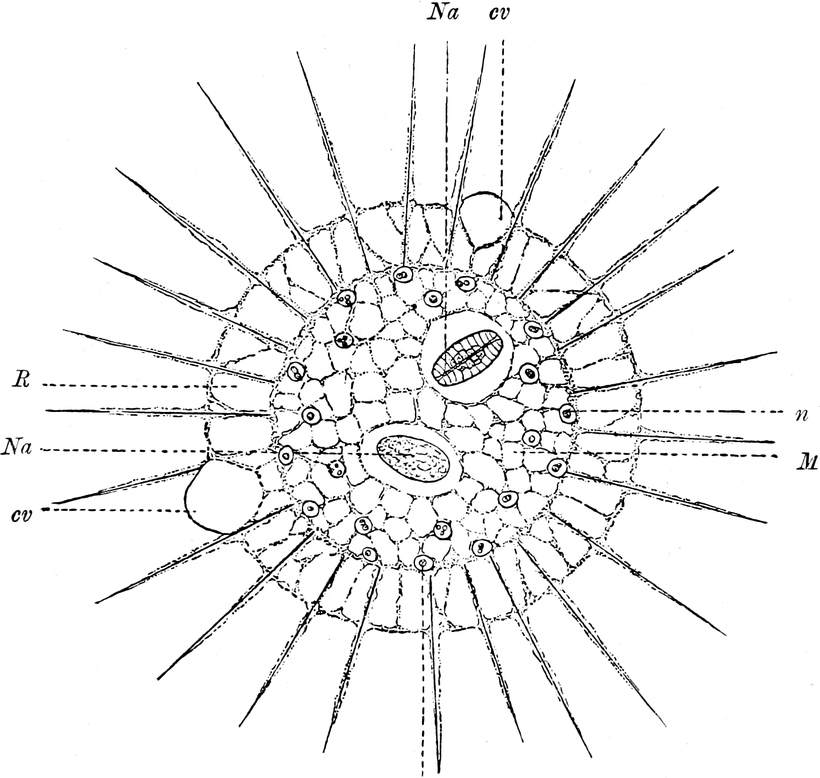
Fig. 60. Actinosphärium Eichhorni.
Nach R. H
ERTWIG
, Zoologie Fig. 117.
M
Marksubstanz mit Kernen (
n
).
R
Rindensubstanz mit contractilen Vacuolen (
cv
),
Na
Nahrungskörper.
Zellen, die von keiner besonderen Membran umschlossen sind oder in ihrer Membran Oeffnungen besitzen, sind auch im Stande, feste Körper in ihr Protoplasma aufzunehmen und zu verdauen. Rhizopoden fangen andere kleine, einzellige Organismen ein, die mit ihren im Wasser weit ausgestreckten Pseudopodien in Berührung kommen (Fig. 10, 60). Die Pseudopodien, die den Fremdkörper erfasst haben, legen sich um denselben zusammen, verkürzen sich und ziehen ihn so allmählich in die Hauptmasse des Protoplasma hinein, wo die brauchbaren Substanzen verdaut werden, während unverdauliche Reste, wie Skeletbildungen etc. nach einiger Zeit wieder nach Aussen hervorgestossen werden. Auch feste Substanzen, die keinen Nährwerth besitzen, werden aufgenommen. Wenn man Carmin- oder Zinnoberkörnchen in das Wasser bringt, so bemächtigen sich die Rhizopoden derselben so gierig, dass nach wenigen Stunden der ganze Körper von ihnen dicht erfüllt ist.
Infusorien (Fig. 50) fressen Flagellaten, einzellige Algen und Bakterien und bringen dieselben durch eine als Zellmund bezeichnete Oeffnung in ihrer Cuticula in das Körnerplasma hinein. Hier bildet sich um jeden Fremdkörper eine mit Flüssigkeit gefüllte Vacuole aus, in welcher die Verdauung vor sich geht.
In ähnlicher Weise wie einzellige Organismen, fressen auch manche Gewebszellen der Metazoen feste, ihnen dargebotene Substanzen auf und verdauen sie.
Die intracellulare Verdauung, wie sie Metschnikoff (V. 12) genannt hat, ist bei wirbellosen Thieren weit verbreitet und lässt sich am besten durch Fütterungsversuche mit leicht kenntlichen Substanzen, Farbstoffkörnchen, Milchkügelchen, Pilzsporen etc. feststellen. Bei einigen Cölenteraten nehmen sowohl Ectoderm- als Entodermzellen fremde Körper auf. Die Tentakelenden von Actinien können sich mit Carminkörnchen beladen. Solche findet man auch bei Actinienlarven nach vorgenommener Fütterung im ganzen Entoderm vertheilt.
Die meiste Beachtung aber wegen ihrer Fähigkeit, feste Körper aufzunehmen und zu verdauen, verdienen die weissen Blutkörperchen, die Lymphzellen und die Wanderzellen des Mesoderms sowohl bei Wirbellosen als bei Wirbelthieren. Die wichtige Thatsache ist zuerst durch Haeckel (V. 4a) festgestellt worden. Als er eine Molluske (Tethys) mit Indigo injicirte, fand er nach kurzer Zeit Indigokörnchen im Innern von Blutkörperchen auf.
Metschnikoff (V. 12) hat diese Erscheinungen sehr eingehend weiter untersucht. Bei einer andern Molluskenart, der durchsichtigen Phyllirhoë, fand er, nachdem pulverisirtes Carmin unter die Haut gespritzt worden war, die kleinen Körnchen von einzelnen Wanderzellen gefressen; um grössere Carminklumpen aber hatten sich immer viele Wanderzellen eingefunden, hüllten dieselben ringsum ein und waren unter einander zu einem Plasmodium oder einer vielkernigen Riesenzelle verschmolzen.
Von derselben Erscheinung kann man sich auch bei Wirbelthieren leicht überzeugen, wenn man einem Frosch in den dorsalen Lymphsack etwas Carmin einspritzt und nach einiger Zeit einen Lymphtropfen entnimmt und mikroskopisch untersucht. Unter dem Mikroskop lässt sich der Vorgang des Fressens direct verfolgen. Man muss dann etwas Carminpulver oder etwas Milch einem frisch entleerten Tropfen von Lymphe oder Blut unter Beobachtung einiger Vorsichtsmaassregeln zusetzen. Handelt es sich um ein Präparat von einem Säugethier oder vom Menschen, so muss man dasselbe auf dem heizbaren Objecttisch von Max Schultze vorsichtig bis auf 30–35 Grad Celsius erwärmen (V. 43). Indem jetzt die weissen Blutzellen amöboide Bewegungen auszuführen beginnen, ergreifen sie mit ihren Scheinfüsschen die Farbstoffkörnchen oder Milchkügelchen, mit denen sie in Berührung kommen, und ziehen dieselben in ihren Körper hinein. Sie sind daher von Metschnikoff als Phagocyten, und der ganze Vorgang ist von ihm als Phagocytose bezeichnet worden.
Die Fähigkeit der amöboiden Elemente des thierischen Körpers, feste Substanzen aufzunehmen, ist von einer sehr hohen physiologischen Bedeutung; denn hierin besitzt der Organismus ein Mittel, um aus seinen Geweben ihm fremdartige und schädliche, geformte Theile zu entfernen. Es giebt besonders drei verschiedene, theils normale, theils pathologische Zustände des Körpers, in welchen die Phagocyten ihre Thätigkeit entfalten.
Erstens kommt es im Laufe der Entwicklung bei vielen Wirbellosen und auch bei Wirbelthieren vor, dass einzelne Larvenorgane ihre Bedeutung verlieren und unter Verfettung zu Grunde gehen. So schwinden einzelne Theile bei der Metamorphose der Echinodermenlarven und der Nemertinen; so wandelt sich die Kaulquappe in den jungen Frosch um, indem sie ihren ansehnlich entwickelten Ruderschwanz verliert. In allen diesen Fällen erleiden die Zellen in den zur Rückbildung bestimmten Organen eine fettige Metamorphose, sterben ab und zerfallen. Währenddem haben sich in der Nachbarschaft schon reichlich Wanderzellen oder Phagocyten eingefunden, welche die Gewebstrümmer zu verschlingen und zu verdauen anfangen, wie man bei durchsichtigen Meerthieren während des Lebens genau verfolgen kann.
Zweitens besorgen die Phagocyten, ähnlich wie in den normalen Vorgängen der Entwicklung, auch die Resorption abgestorbener und in Zerfall befindlicher Theile, überall wo solche aus normalen oder pathologischen Ursachen im Körper entstehen. Rothe Blutkörperchen zerfallen, wenn sie eine Zeitlang im Blutstrom gekreist haben. Im Milzblut hat man ihre Trümmer im Körper von weissen Blutkörperchen aufgefunden, die auch hier ihre Aufgabe, das Abgestorbene zu entfernen, erfüllen. Wenn in Folge einer Verletzung sich ein Bluterguss in das Gewebe bildet, und Tausende von Blutkörperchen und Elementartheilen zu Grunde gehen, dann machen sich auch wieder die Wanderzellen an die Arbeit und vermitteln die Resorption und Heilung.
Drittens endlich bilden die Phagocyten bei Infectionskrankheiten eine Schutztruppe des Körpers, um der Verbreitung von Mikroorganismen im Blut und in den Geweben entgegenzuwirken.
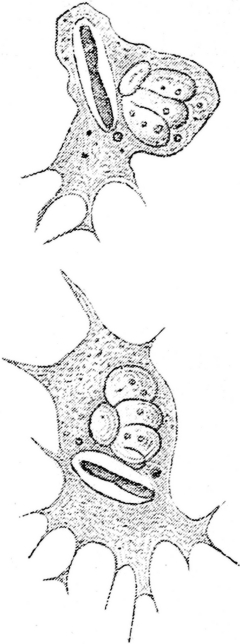
Fig. 61. Ein Leukocyt des Frosches, in dem ein Bakterium eingeschlossen ist und verdaut wird. Das Bakterium durch Vesuvin gefärbt.
Die beiden Figuren repräsentiren zwei Stadien der Bewegung ein und derselben Zelle. Nach M
ETSCHNIKOFF
Fig. 54.
Es ist ein grosses Verdienst von Metschnikoff, auf diesen Gegenstand die Aufmerksamkeit gelenkt zu haben (V. 13–15, IV. 22). Es gelang ihm, zu zeigen, dass bei Erysipel die Coccen, bei Rückfalltyphus die Spirillen, bei Milzbrand die Bacillen von Wanderzellen gefressen und dadurch unschädlich gemacht werden (Fig. 61). Die gefressenen Mikroorganismen, deren Zahl in einer Zelle oft 10–20 betragen kann, zeigen nach einiger Zeit deutlich erkennbare Spuren der Auflösung. Befinden sich die Mikroorganismen im Blut, so findet ihre Vernichtung vorzugsweise in der Milz, der Leber und in dem rothen Knochenmark statt. Ist ihre Ansiedelung an einer Stelle im Gewebe erfolgt, so sucht sich der Körper der Eindringlinge dadurch zu entledigen, dass in Folge der reactiven Entzündung zahlreiche Wanderzellen auf dem Platz erscheinen.
Zwischen Mikroorganismen und Phagocyten wird, wie sich Metschnikoff ausdrückt, ein lebhafter Kampf geführt, welcher zu Gunsten der einen oder anderen Partei entschieden wird, und je nachdem die Heilung oder den Tod des von der Infection betroffenen Thieres herbeiführt.
Die Fähigkeit der Wanderzellen, bestimmte Arten von Mikroorganismen zu vernichten, scheint bei einzelnen Thieren eine sehr verschiedene zu sein und auch sonst noch von den verschiedensten Bedingungen abzuhängen; so spielen namentlich die chemischen Reizwirkungen eine Rolle, welche schon auf Seite 99 besprochen worden sind. (Negativer und positiver Chemotropismus. Hertwig IV. 13). Hiermit scheint ferner die grössere oder geringere Immunität der Organismen gegen manche Infectionskrankheiten in Beziehung zu stehen. Hier ist ein Gebiet gegeben, auf welchem sich eine weite Perspective für das Verständniss und die Heilung der Infectionskrankheiten eröffnet.
II. Die Stoffumsetzung und die formative Thätigkeit der Zelle.
Die Gase, die flüssigen und die festen Substanzen, die in das Protoplasma durch Athmung und Ernährung aufgenommen werden, bilden das sehr verschiedenartige Rohmaterial, das in der chemischen Werkstatt der Zelle verarbeitet und in ausserordentlich zahlreiche Stoffe umgesetzt wird. Von diesen sind für Pflanze und Thier die wichtigsten: die Kohlenhydrate, Fette, Albuminate und die verschiedenartigsten Umbildungsproducte derselben.
Ihre Verwendung im Lebensprocess der Zelle ist gleichfalls eine sehr mannigfaltige. Theils dienen sie zum Ersatz der beim Lebensprocess sich zerstörenden Zellstoffe; sie sind das Material, welches beim Athmungsprocess durch den Sauerstoff verbrennt und die lebendigen Kräfte für die Arbeitsleistungen der Zelle liefert. Theils dienen sie zum Wachsthum und zur Vermehrung des Protoplasma, was für die Function der Fortpflanzung unentbehrlich ist. Theils werden die im chemischen Laboratorium neugebildeten Stoffe in irgend einer Form im Zellkörper für spätere Verwendung abgelagert, sie stellen also Reservestoffe dar. Endlich können sie in- oder ausserhalb der Zelle zur Erfüllung einer bestimmten Function im Zellenleben ausgeschieden werden.
So entstehen die namentlich im Thierreich sehr zahlreichen Stoffe, auf denen die gewebliche Differenzirung beruht: Drüsensecrete, die nach aussen entleert werden, Membranen und Intercellularsubstanzen von chemisch sehr verschiedener Zusammensetzung, Muskel- und Nervenfibrillen, die vermöge ihrer eigenartigen Organisation in besonderer Weise mit Contractilität und Reizleitung begabt sind. In letzterem Falle nimmt die chemische Arbeit der Zelle einen Charakter an, welchen Max Schultze als ihre formative Thätigkeit bezeichnet hat. Das Protoplasma benutzt das ihm zugeführte Rohmaterial, um aus ihm oft wunderbar zusammengesetzte Structuren herzustellen, die ihm zu besonderen Arbeitszwecken dienen sollen. In dieser Thätigkeit erscheint uns die Zelle gewissermaassen als ein thätiger Baumeister, oder wie sich Haeckel (V. 4b) ausdrückt, als eine Plastide, als eine Bildnerin.
Die formative Thätigkeit der Zelle, oder besser gesagt, die Fähigkeit vom Protoplasmakörper differente Structuren zu erzeugen, ist von ausserordentlicher Bedeutung. Denn nur vermöge derselben kommt die reiche Vielgestaltigkeit der Elementartheile zu Stande, durch welche namentlich der Thierkörper seine hohe Vollendung erreicht; nur auf dieser Grundlage ist die ausserordentlich weit gediehene Arbeitstheilung der Zellen und die dadurch bedingte grössere Leistungsfähigkeit der Zellengemeinschaften herbeigeführt worden.
Das Capitel von der Stoffumsetzung der Zelle bietet also der Untersuchung zwei verschiedene Seiten dar, erstens eine chemische Seite, insofern es sich um die Entstehung der zahllosen, durch Vermittlung des Protoplasmas gebildeten Substanzen handelt, und zweitens eine mehr morphologische Seite, insofern im Protoplasma die von ihm differenten Substanzen dem Auge sichtbar zu machen sind, eine besondere Lage einnehmen, eine bestimmte Form und Structur besitzen und besonderen Entwicklungsgesetzen unterworfen sind.
Es ist eine Hauptaufgabe der biologischen Chemie der Zukunft, die einzelnen im Zellkörper vertheilten Stoffe der morphologischen Untersuchung durch Herstellung charakteristischer Farbstoffverbindungen zugänglich zu machen.
1) Zur Chemie des Stoffumsatzes.
Die chemischen Vorgänge in den Zellen, die zum grössten Theil noch in ein tiefes Dunkel gehüllt sind, können uns hier nur insoweit beschäftigen, als es sich um einige fundamentale Fragen handelt. Eine solche ist die Frage nach der Synthese der Kohlenhydrate, der Fette und Eiweisssubstanzen aus einfacheren Elementarstoffen.
Es besteht ein anscheinend tiefgreifender Gegensatz zwischen der chemischen Arbeit im Pflanzenreich und im Thierreich. Nur das mit Chlorophyll versehene Protoplasma der Pflanzenzellen besitzt die Fähigkeit, aus Kohlensäure und Wasser hochmoleculare, ternäre Verbindungen herzustellen; das nicht chlorophyllhaltige Protoplasma der Thiere und einzelner farbloser Pflanzentheile kann nur mit diesem Ausgangsmaterial weitere Synthesen vornehmen und unter diesen auch quaternäre Verbindungen liefern.
Welche chemischen Vorgänge sich im grünen Protoplasma unter Benutzung der lebendigen Kraft der Sonne unter Aufnahme von Kohlensäure und Wasser und unter Abspaltung von Sauerstoff abspielen, ist noch nicht zu beantworten. Das erste sichtbare Product der Assimilation ist die Stärke, eine Vorstufe derselben vielleicht Zucker. Dass dieser oder jene durch eine directe Synthese von Kohlenstoff und Wasser entsteht, ist kaum anzunehmen; wahrscheinlich bilden sich beim complicirten Process mannigfache Zwischenproducte. „Es ist sogar nicht unmöglich,“ wie Sachs (IV. 32a) bemerkt, „dass gewisse nähere Bestandtheile des grünen Plasmas selbst sich an dem Vorgang betheiligen, dass z. B. dabei Spaltungen und Substitutionen in den Molekülen des grünen Protoplasmas stattfinden. Diese Möglichkeit erhält einige Wahrscheinlichkeit durch die Wahrnehmung, dass in vielen (nicht allen) Fällen die Chlorophyllsubstanz, während die Stärkekörner in derselben wachsen, nach und nach immer mehr an Masse abnimmt, endlich ganz verschwindet.“
Die vermöge der Chlorophyllfunction im Pflanzenkörper gewonnenen Kohlenhydrate (Stärke) bilden das Material, durch dessen Umsetzung im Protoplasma die fetten Oele der Pflanzen entstehen. Die ternären stickstofffreien, organischen Verbindungen geben ferner wieder die Grundlage für die Synthese von quaternären Eiweisssubstanzen ab und tragen so zur Ergänzung und Vermehrung des Protoplasma selbst bei. Doch müssen bei diesen Synthesen noch salpetersaure und schwefelsaure Salze hinzukommen, welche von den Pflanzen mit ihren Wurzeln aus dem Boden aufgenommen werden.
Dass aus solchen Mitteln Proteïnsubstanzen durch die lebende Zelle gebildet werden können, hat Pasteur experimentell sichergestellt, indem er niedere Spaltpilze wie Mycoderma aceti, Hefe etc. in künstlich zusammengestellten Nährlösungen cultivirte. So kann Mycoderma aceti sich auch im Dunkeln lebhaft vermehren, wenn nur wenige Zellen in eine Nährlösung gebracht werden, zusammengesetzt aus entsprechend verdünntem Alkohol oder Essigsäure, einem Ammoniaksalz, Phosphorsäure, Pottasche, Magnesia, Wasser. Durch chemische Zersetzung dieser Stoffe müssen die Pilzzellen, wenn sie sich auf ein Vielfaches vermehrt haben, ausser Cellulose und Fetten, auch Proteïnstoffe gebildet haben.
Indem vermöge ihrer Chlorophyllfunktion die Pflanze Kohlenhydrate erzeugt und diese wieder in Fette und Eiweisssubstanzen umsetzt, liefert sie die ternären und quaternären Verbindungen, welche der thierische Organismus zu seiner Ernährung bedarf und die er selbst sich nicht mit den einfachen Mitteln, wie die Pflanzen, zu bereiten vermag. Zwischen Pflanzen- und Thierreich besteht in Folge dessen ein Kreislauf des Lebens, in welchem beide eine gegensätzliche Stellung zu einander einnehmen und sich ergänzen. Der Gegensatz lässt sich in folgender Weise formuliren:
In der grünen Pflanzenzelle wird aus Kohlensäure und Wasser durch Synthese organische Substanz erzeugt und die lebendige Kraft, die ihr im Sonnenlicht zugeführt wird, in Spannkraft umgewandelt; die thierische Zelle dagegen benutzt als Nahrungsmaterial die im Pflanzenreich erzeugten ternären und quaternären Verbindungen und verbrennt sie zum grossen Theil durch Oxydation; sie wandelt die in den hochmolecularen Verbindungen angesammelten Spannkräfte wieder in lebendige Kraft um, indem sie Arbeit verrichtet und Wärme erzeugt. Die Pflanze nimmt während ihrer Chlorophyllfunction Kohlensäure auf und spaltet aus ihr Sauerstoff ab; das Thier athmet Sauerstoff ein und Kohlensäure wieder aus. Bei der Pflanze herrschen in den chemischen Processen die Reduction und Synthese, beim Thier die Oxydation, Verbrennung und Analyse vor.
Aus dem Gegensatz, welcher im Haushalt der Natur zwischen Pflanzenreich und Thierreich besteht, darf man nun aber nicht auf einen vollkommenen Gegensatz in den allgemeinen Lebenserscheinungen zwischen pflanzlicher und thierischer Zelle schliessen. Ein solcher existirt nicht. Tiefere Forschung deckt überall die Einheit in den fundamentalen Lebensprocessen der ganzen Organismenwelt auf. Der oben betonte Gegensatz rührt ja einfach nur daher, dass die Pflanzenzelle eine besondere, der thierischen Zelle fehlende Function, die Kohlensäure mit Hülfe ihres Chlorophylls zu zersetzen, ausgebildet hat. Von dieser Chlorophyllfunction abgesehen, spielen sich viele für das Leben fundamentalen Stoffwechsel-Processe hier wie dort in übereinstimmender Weise im Protoplasma ab.
Bei Pflanzen wie Thieren muss das Protoplasma, um den Lebensprocess zu unterhalten, athmen, Sauerstoff aufnehmen, Wärme erzeugen, Kohlensäure abgeben. Hier wie dort geht Zerstörung und Neubildung von Protoplasma neben einander her, greifen Processe chemischer Analyse und Synthese in complicirter Weise ineinander.
Noch klarer wird das Verhältniss, wenn man berücksichtigt, dass in der Pflanze ein grosser Theil der Zellen, nämlich alle, welche des Chlorophylls entbehren, sich in einer ähnlichen Lage wie die thierischen Zellen befinden; auch diese müssen, da sie nicht assimiliren können, das Material zur Erhaltung des Lebensprocesses und zum Wachsthum und zur Vermehrung ihrer Substanz von den grünen Zellen beziehen. Derselbe Gegensatz, der im Haushalt der Natur zwischen Thier und Pflanze besteht, herrscht also in der Pflanze selbst zwischen den farblosen und den chlorophyllhaltigen Zellen.
In treffender Weise hat Claude Bernard (IV. 1a) das Verhältniss in folgenden Worten kurz zusammengefasst:
„Wenn in der Sprechweise der Mechaniker die Lebensphänomene, Neubildung und Zerstörung organischer Substanz, dem Heben und dem Fallen eines Gewichts verglichen werden können, dann werden wir sagen, dass Hebung und Fall sich in jeder lebenden Zelle vollziehen, sowohl in der thierischen als der pflanzlichen, aber mit dem Unterschied, dass das thierische Element sein Gewicht schon auf ein gewisses Niveau gehoben vorfindet und es daher weniger zu heben braucht, als es darauf wieder herabfällt. Das Umgekehrte findet bei der grünen Pflanzenzelle statt. Mit einem Wort, des deux versants, celui de la descente est prépondérant chez l’animal; celui de la montée chez le végétal“ (Claude Bernard IV. 1a, Bd. II Seite 514).
Nachdem so die Bedeutung der Chlorophyllfunction in das rechte Licht gesetzt ist, sei noch auf wichtige Uebereinstimmungen hingewiesen, welche in dem Chemismus des Stoffwechsels zwischen thierischer und pflanzlicher Zelle bestehen.
Hier sei zunächst noch hervorgehoben, dass eine sehr grosse Anzahl von Stoffen der progressiven und regressiven Metamorphose dem Thier- und Pflanzenreich gemeinsam sind.
Aehnlich scheinen ferner die Mittel zu sein, mit denen sich einige sehr wichtige Processe in der thierischen und pflanzlichen Zelle vollziehen. Kohlenhydrate, Fette und Eiweissstoffe sind nicht in jedem Zustand geeignet, um im Laboratorium der Zelle direct verbraucht und in andere chemische Verbindungen übergeführt zu werden. Eine Vorbedingung ist, dass sie in eine lösliche und leicht diffundirende Modification umgewandelt werden. Dies geschieht zum Beispiel, wenn Stärke und Glycogen sich in Traubenzucker, Dextrose und Lävulose umsetzen, oder wenn Fette in Glycerin und Fettsäuren zerspalten, oder wenn Eiweissstoffe peptonisirt werden.
Sachs (IV. 32a) bezeichnet die oben genannten Modificationen der Kohlenhydrate, Fette und Eiweissstoffe als ihren activen Zustand im Gegensatz zum passiven Zustand, in welchem sie sich als feste Reservestoffe (Stärke, Oele, Fette, Eiweisskrystalle, in den Zellen angesammelt finden oder vom Thier als Nahrung aufgenommen werden. Nur im activen Zustand können die plastischen Stoffe die verschiedenartigen Wanderungen, sowohl im pflanzlichen als auch im thierischen Körper vollziehen, durch welche sie nach den Orten ihrer vorübergehenden Aufbewahrung oder ihres jeweiligen Verbrauches gelangen.
Die Stärke zum Beispiel, die sich in unterirdischen Theilen, wie den Knollen, oder in den Samen ansammelt, ist an diesen Stellen nicht assimilirt worden. Ihre Ursprungsorte sind die assimilirenden, grünen Zellen. Von diesen sind sie durch Vermittelung aller dazwischenliegenden Zellgebilde oft auf weite Strecken nach den Knollen oder Samen hintransportirt worden. Da nun Stärkekörnchen die Zellhäute nicht passiren können, kann die Stoffwanderung nur im gelösten Zustand (Zucker) stattfinden, worauf am Ort der Aufbewahrung wieder die Rückbildung in die unlösliche Modification (Stärke) erfolgt. Wenn dann in der Knolle oder im Samen sich der Keim entwickelt, werden die passiven Reservestoffe von Neuem reactivirt und müssen im activen Zustand von Neuem eine Wanderung nach den Verbrauchsorten, den Zellen des sich entwickelnden Keims, durchmachen. Ebenso müssen beim Thiere die Kohlenhydrate, Fette und Eiweissstoffe, die als Nahrung in den Körper gelangen, löslich gemacht werden, damit sie an die Orte ihres Verbrauchs gelangen können, oder es müssen die zur Reserve im Fettgewebe abgelagerten Fette, wenn sie irgendwo im Körper zum Verbrauch dienen sollen, reactivirt werden.
In der thierischen und pflanzlichen Zelle scheint nun die so wichtige Ueberführung der Kohlenhydrate, Fette und Eiweisssubstanzen aus dem passiven in den activen Zustand in durchaus entsprechender Weise vor sich zu gehen durch Vermittelung sehr eigenthümlicher, chemischer Körper, die man als Fermente bezeichnet. Dieselben sind den Eiweisskörpern verwandt und wohl durch Umwandlung aus denselben entstanden; sie finden sich in der Zelle in sehr geringen Quantitäten, bringen aber trotzdem eine intensive chemische Wirkung hervor und leiten chemische Processe ein, bei denen sie selbst nicht wesentlich verändert werden. Die Fermentwirkung ist ein für die Chemie der Zelle ausserordentlich charakteristischer Vorgang. Es giebt Fermente für die Umwandlung der Kohlenhydrate, Fermente für die Umwandlung der Eiweissstoffe, Fermente für die Fettumsetzung.
Ueberall, wo in den Pflanzen Stärke löslich gemacht wird, geschieht es durch ein Ferment, die Diastase, welche sich aus keimenden Samen leicht gewinnen lässt. Ihre Wirksamkeit ist so gross, dass etwa 1 Gewichtstheil Diastase 2000 Gewichtstheile Stärke in kurzer Zeit in Zucker umwandeln kann. Ein anderes auf Kohlenhydrate wirkendes Ferment, das Invertin, kommt in Spalt- und Schimmelpilzen vor und spaltet Rohrzucker in Dextrose und Lävulose.
Der pflanzlichen Diastase entspricht beim Thier das Speichelferment (Ptyalin), welches Stärke in Dextrin und Traubenzucker verwandelt. Ebenso wird das nicht diffundirende Glycogen, welches man seiner Eigenschaft nach als thierisches Amylum bezeichnet hat, überall wo es vorkommt (Leber, Muskeln), durch ein saccharificirendes Ferment in Zucker umgesetzt, wenn es weitere Verwendung finden soll.
Eiweisskörper werden, um weiter verwerthbar zu sein, peptonisirt. Im thierischen Körper geschieht dies hauptsächlich durch ein Ferment, das Pepsin, welches von den Zellen der Magensaftdrüsen geliefert wird. Eine geringe Menge von Pepsin löst bei Gegenwart von freier Salzsäure im Magen so gut wie bei Versuchen im Reagensröhrchen beträchtliche Mengen von geronnenem Eiweiss auf und versetzt es in einen Zustand, in welchem es durch Membranen hindurch diffundiren kann.
Auch in Pflanzenzellen sind peptonisirende Fermente nachgewiesen worden. Ein solches wird zum Beispiel von den fleischfressenden Pflanzen an den Organen, welche zum Einfangen von Insekten eingerichtet sind, als ein Verdauungssaft ausgeschieden, wie von den Drüsenhaaren der zusammenklappenden Blätter von Drosera; es werden auf diese Weise die kleinen Thierleichen zum Theil in Lösung übergeführt und von den Pflanzenzellen aufgenommen. Ein pepsinartiges Ferment hat sich auch in Keimpflanzen nachweisen lassen, wo es zur Peptonisirung der als Reservestoffe im Samen aufgespeicherten Proteinkörper dient. Bekannt wegen seiner energischen Wirkung ist das peptonisirende Ferment aus dem Milchsaft von Carica papaya und anderen Caricaarten. Ein solches ist endlich auch im Körper der Myxomyceten durch Krukenberg entdeckt worden.
Bei der chemischen Umsetzung der Fette findet im thierischen Körper eine Zerspaltung derselben in Glycerin und Fettsäuren statt. Eine solche Wirkung übt namentlich der Bauchspeichel aus; Claude Bernard hat dieselbe auf ein vom Pankreas ausgeschiedenes, fettspaltendes Ferment, zurückzuführen versucht. Auch bei der Keimung fetthaltiger Pflanzensamen soll eine Zerspaltung des Oels in Glycerin und Fettsäure durch Vermittelung von Fermenten erfolgen (Schützenberger).
Schon aus diesen wenigen Thatsachen lässt sich erkennen, dass auch der Stoffumsatz in der Zelle, so wenig bekannt uns derselbe zur Zeit noch ist, doch in wichtigen Zügen eine weitgehende Uebereinstimmung im gesammten Organismenreich zeigt.
Einer der dunkelsten Punkte beim Stoffumsatz in der Zelle ist die Rolle, welche das Protoplasma dabei spielt. Namentlich gilt dies für alle Vorgänge, welche oben als der formativen Thätigkeit der Zelle angehörig bezeichnet wurden. In welchem Verhältniss stehen zum Protoplasma die organisirten Producte desselben, wie die Membran, die Intercellularsubstanzen und so weiter?
Zwei ganz entgegengesetzte Ansichten finden hier in der Thier- und Pflanzenbiologie Vertretung. Nach der einen Ansicht entstehen die organisirten Substanzen durch Umwandlung des Protoplasma selbst, also durch chemische Umsetzungen oder Abspaltungen von Protoplasmamolekülen; nach der andern Ansicht dagegen bilden sie sich aus plastischen Stoffen, Kohlenhydraten, Fetten, peptonisirten Proteïnstoffen etc., welche in das Protoplasma beim Stoffwechsel aufgenommen, an die Verbrauchsstelle geschafft und in einem organisirten Zustande zur Abscheidung gebracht werden.
Am besten lässt sich der Gegensatz an einem Beispiel klar machen, als welches ich die Bildung der Cellulosemembran der Pflanzenzellen wählen will.
Nach einer Hypothese, welche unter anderem besonders von Strasburger (V. 31–33) vertreten wird, verwandelt sich das mikrosomenhaltige Protoplasma direct in Celluloselamellen; die Cellulose geht als feste, organisirte Substanz unmittelbar aus dem Protoplasma hervor.
Nach einer anderen Hypothese sind stickstofffreie, plastische Stoffe, Glycose, Dextrin oder irgend ein anderes lösliches Kohlenhydrat das Material zur Bildung der Zellhaut. Dasselbe wird vom Protoplasma an die Verbrauchsstelle geschafft und hier in die unlösliche Modification, die Cellulose, umgewandelt. Da dieselbe bei ihrer Entstehung eine bestimmte Structur erhält, wird auch bei dieser Bildungsweise das Protoplasma in einer uns unbekannten Weise mitwirken müssen, was man mit dem Schlagwort „formative Thätigkeit“ ausdrückt.
Nach der ersten Hypothese kann man die Cellulosehaut kurzweg als ein Umwandlungsproduct des Protoplasma, nach der zweiten als ein Abscheidungsproduct desselben bezeichnen.
Derselbe entgegengesetzte Standpunkt tritt uns bei der Frage der Bildung der Chitinhäute, der Knorpel- und Knochengrundsubstanz, der leimgebenden und gallertigen Substanz entgegen; er spielt sogar mehr oder minder in alle Auffassungen vom Stoffwechsel der Zelle hinein.
Claude Bernard (IV. 1a) hat dies Verhältniss mit den Worten charakterisirt: „Vom physiologischen Standpunkt liesse es sich vorstellen, dass im Organismus nur eine Synthese, die von Protoplasma, stattfindet, welches wachsen und sich entwickeln würde vermittelst aufgenommener Stoffe. Von diesem complicirten Körper, dem complicirtesten aller organisirten Körper, würden sich dann durch weitere Spaltung alle zusammengesetzten ternären und quaternären Verbindungen herleiten, deren Auftreten wir für gewöhnlich einer directen Synthese zuschreiben.“ So musste auch Sachs bei der Assimilation der Stärke die Möglichkeit offen lassen, welche er aber für weniger wahrscheinlich hält, dass bei diesem chemischen Process „Spaltungen und Substitutionen in den Molekülen des grünen Protoplasmas stattfinden“.
Aus diesen Aeusserungen wird die Schwierigkeit der ganzen Frage erhellen, soweit es die in Betracht kommenden chemischen Processe betrifft.
Wenn es gestattet ist, aus analogen Verhältnissen Schlüsse zu ziehen, so muss ich der zweiten Hypothese, nach welcher das Protoplasma mehr indirect bei der Bildung der meisten Intercellularsubstanzen betheiligt ist, entschieden den Vorzug geben. Denn wenn manche Organismen sich eine Membran aus Kieselsäure oder aus kohlensaurem Kalk bilden, so macht schon die Natur dieses Materiales den Schluss unabweisbar, dass dasselbe nicht als feste organisirte Substanz unmittelbar aus dem Protoplasma hervorgegangen sein kann. Hier kann letzteres seiner ganzen chemischen Zusammensetzung nach nur eine vermittelnde Rolle gespielt haben, indem es die Stoffe aus der Umgebung ausgewählt, aufgenommen, an den Verbrauchsorten angehäuft und in bestimmter Form als feste Verbindung und wohl stets an ein organisches Substrat gebunden abgelagert hat.
Eine solche Vorstellung scheint mir auch für die Entstehung der Cellulosemembranen näher zu liegen, wenn man die leichte Umwandlungsfähigkeit der verschiedenen Kohlenhydrate in einander berücksichtigt, auf der andern Seite den complicirten chemischen Process in Betracht zieht, der jedenfalls bei Umwandlung von Protoplasma in Cellulose stattfinden müsste. Und selbst die Intercellularsubstanzen, die dem Protoplasma chemisch nahe stehen, wie Chondrin, Glutin etc., könnten unter dasselbe Bildungsgesetz fallen. Denn ausser den organisirten Proteïnstoffen, Protoplasma und Kernsubstanz, kommen in jeder Zelle auch zahlreiche, unorganisirte Proteïnstoffe als Bildungsmaterial meist in gelöstem Zustande vor, wie im Zellsaft der Pflanzenzellen, im Saft der Kerne, in Blut und Lymphe der Thiere. Anstatt dass bei der Entstehung stickstoffhaltiger Intercellularsubstanzen das Protoplasma der Zelle selbst direct angegriffen und aufgebraucht wird, könnten auch hier die unorganisirten Proteinstoffe bei der formativen Thätigkeit der Zelle in Verwendung kommen in derselben Weise, wie es oben für die Bildung der Cellulosemembran angenommen wurde.
In welcher Weise bei diesen Processen das Protoplasma die vermittelnde Rolle spielt, von der oben gesprochen wurde, entzieht sich zur Zeit, wie die Mehrzahl der biochemischen Vorgänge, unserer Kenntnissnahme. Die vermittelnde Rolle des Protoplasma könnte aber vielleicht darin bestehen, dass mit gewissen Stofftheilchen desselben (Plassome. Wiesner. V. 39) sich andere in Nährlösungen befindliche Stofftheilchen durch Molecularaddition verbinden und dadurch zu einem organisirten Product umgewandelt werden. So würden sich lösliche Kieselverbindungen mit organischen Substanzmolekülen zu einem Kieselskelet vereinigen; so würden sich Cellulosetheilchen aus löslichen Kohlenhydraten unter dem Einfluss von Substanztheilchen des Protoplasma bilden, sich mit letzteren molecular verbinden (wahrscheinlich dauernd, vielleicht aber auch nur vorübergehend) und so zu einer Zellhaut organisirt werden. Mit dieser Vorstellung lässt sich sehr gut die Beobachtung vereinbaren, dass an manchen Objecten frisch gebildete Celluloseschichten und das angrenzende Protoplasma continuirlich in einander übergehen.
2) Zur Morphologie des Stoffumsatzes. Die formative Thätigkeit der Zelle.
Die Substanzen, die beim Stoffwechsel der Zellen gebildet werden, fallen in das Bereich der morphologischen Untersuchung, soweit sie vom Protoplasma optisch unterscheidbar werden. Sie können in geformtem oder ungeformtem Zustand entweder im Innern des Protoplasmas selbst oder auf seiner Oberfläche zur Abscheidung kommen; je nachdem werden sie als innere oder äussere Plasmaproducte unterschieden. Doch ist, wie so oft bei biologischen Eintheilungen, nicht immer eine scharfe Grenze zwischen beiden Gruppen zu ziehen.
a) Die inneren Plasmaproducte.
In Wasser gelöste Substanzen können sich in grösseren und kleineren Tropfen im Protoplasma abscheiden und dadurch Höhlungen oder Vacuolen hervorrufen. Sie spielen namentlich in der Morphologie der Pflanzen eine grosse Rolle. Wie schon früher im Einzelnen genauer beschrieben (Seite 28), kann sich eine Pflanzenzelle (Fig. 62) durch Saftabscheidung in sehr kurzer Zeit um mehr als das 100fache vergrössern. Auf der summirten Wirkung zahlreicher, derartiger Zellen beruht das beträchtliche Wachsthum, welches im Frühjahr die einzelnen Pflanzenorgane zeigen.
Der Gehalt an fester Substanz kann in einem sehr wasserreichen Pflanzentheil schliesslich nur 5% oder sogar nur 2% betragen.
Der Zellsaft ist nun aber nicht bloss Wasser, sondern eine sehr zusammengesetzte Nährlösung, in welcher Pflanzensäuren und ihre Salze, Salpeter- und phosphorsaure Salze, Zucker, in geringer Menge auch gelöste Proteïnstoffe etc. enthalten sind. Zwischen Protoplasma und Saft wird daher ein beständiger Stoffwechsel stattfinden, indem jener bald Substanzen zum Verbrauch aus dieser Quelle bezieht, bald andere Substanzen wieder an dieselbe abgiebt. Indem der Saft eine concentrirte Lösung osmotisch wirksamer Substanzen darstellt, übt er auf Wasser eine kräftig anziehende Wirkung und auf die ihn umgebenden Hüllen einen oft bedeutenden inneren Druck aus, so dass sie in einem prallen Zustand, der schon früher (Seite 114) als Turgor besprochen wurde, erhalten werden.
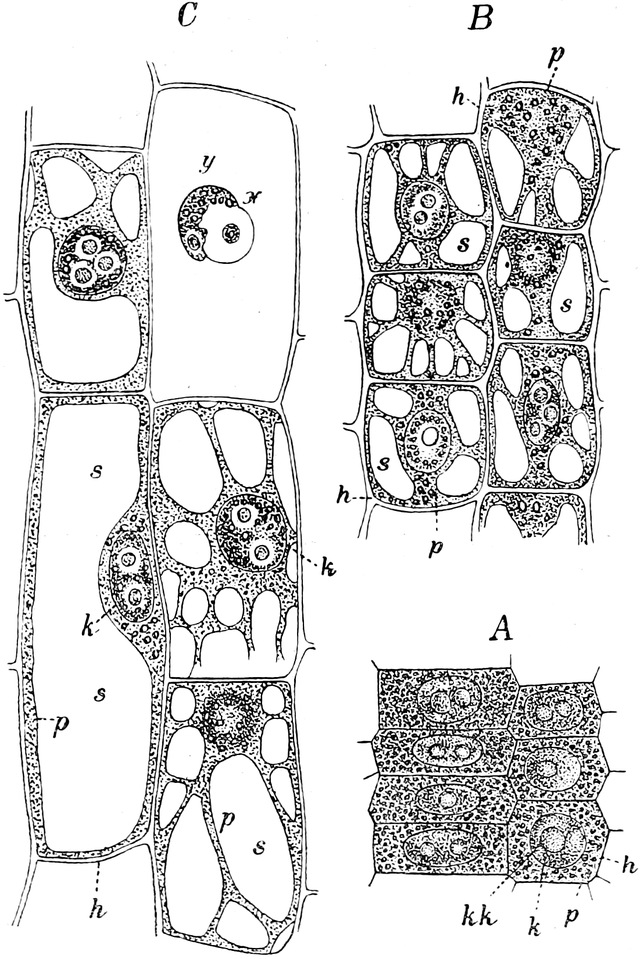
Fig. 62. Parenchymzellen aus der mittleren Schicht der Wurzelrinde von Fritillaria imperialis; Längsschnitte, nach 550maliger Vergrösserung.
Nach S
ACHS
(
II. 33
) Fig. 75.
A
dicht über der Wurzelspitze liegende, sehr junge Zellen, noch ohne Zellsaft;
B
die gleichnamigen Zellen etwa 2 Millimeter über der Wurzelspitze, der Zellsaft
s
bildet im Protoplasma
p
einzelne Tropfen, zwischen denen Protoplasmawände liegen;
C
die gleichnamigen Zellen etwa 7–8 Millimeter über der Wurzelspitze; die beiden Zellen rechts unten sind von der Vorderfläche gesehen, die grosse Zelle links unten im optischen Durchschnitt gesehen; die Zelle rechts oben durch den Schnitt geöffnet; der Zellkern lässt unter dem Einfluss des eindringenden Wassers eine eigenthümliche Quellungserscheinung wahrnehmen (
x
y
).
k
Kern.
kk
Kernkörper.
h
Membran.
Manche Botaniker, wie namentlich de Vries (V. 35) und Went, erblicken in den Vacuolen besondere Zellorgane, die sich nicht zufällig im Zellkörper neubilden, sondern nur durch Theilung hervorgebracht werden können. Schon in den allerjüngsten Pflanzenzellen sind nach ihrer Annahme ausserordentlich kleine Vacuolen vorhanden, die sich durch Theilung fortwährend vermehren und bei der Theilung der Zelle auf die Tochterzellen vertheilt werden. In Folge dessen sollen sich von den Vacuolen des Meristems die sämmtlichen Vacuolen der ganzen Pflanze herleiten, was von anderen Forschern indessen in Abrede gestellt wird. Wie das Protoplasma sich nach Aussen durch eine Hautschicht abgrenzt, besitzen nach de Vries auch die Vacuolen eine eigene Wand (den Tonoplasten), welche die Ausscheidung und Anhäufung der im Zellsaft vorhandenen, gelösten Stoffe regelt.
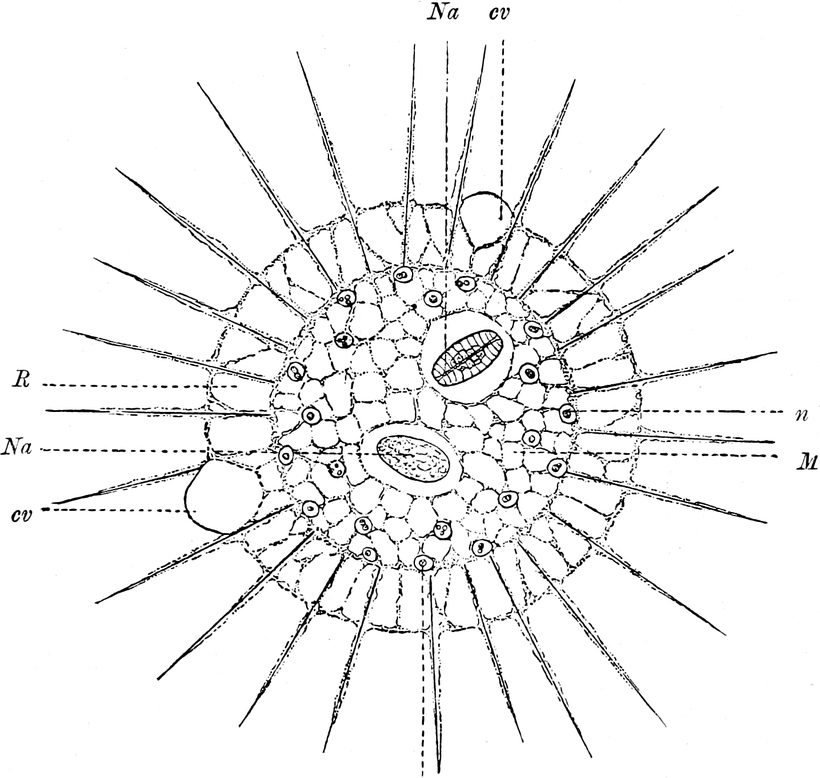
Fig. 63. Actinosphärium Eichhorni.
Nach R. H
ERTWIG
, Zoologie Fig. 117.
M
Marksubstanz mit Kernen (
n
).
R
Rindensubstanz mit contractilen Vacuolen (
cv
),
Na
Nahrungskörper.
Vacuolenbildung kommt auch bei niederen Organismen sehr häufig vor. Bei Actinosphaerium z. B. gewinnt der Protoplasmakörper in Folge der in ihm vorhandenen, zahlreichen, kleinen und grossen Saftblasen ein ganz schaumiges Aussehen.
In geringer und constanter Anzahl vorkommende Vacuolen können, so namentlich häufig bei Infusorien, eine mit besonderer Contractilität ausgestattete Wandschicht erhalten und werden dann als contractile Vacuolen oder Behälter (Seite 69) bezeichnet.
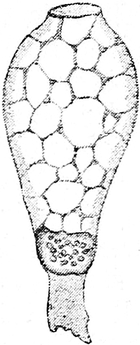
Fig. 64. Becherzelle aus dem Blasenepithel von Squatina vulgaris in Müller’scher Flüssigkeit erhärtet.
Nach L
IST
Taf. I, Fig. 9.
Ansammlung von Saft in besonderen Vacuolen wird endlich, wenn auch selten, in manchen thierischen Zellen angetroffen und zwar in Organen, die im Körper eine gewisse Stützfunction zu erfüllen haben. Die Tentakeln mancher Cölenteraten, gewisse Körperanhänge von Anneliden besitzen in ihrer Axe, ebenso wie die Chorda dorsalis der Wirbelthiere, verhältnissmässig grosse, blasige Zellen, die nach Aussen durch eine dicke Membran abgegrenzt sind und im Innern fast nur Zellsaft und eine sehr geringe Quantität Protoplasma enthalten. Dieses breitet sich in dünner Schicht unter der Zellmembran aus und schickt hie und da auch Fäden durch den Saftraum. Der Kern liegt meist in einer dichtern Ansammlung des Protoplasma entweder in der Wandschicht oder im Netzwerk eingebettet. Auch hier werden wie bei den Pflanzen die festen Zellwände in Folge osmotisch wirksamer Substanzen des Saftes prall gespannt sein. Obwohl über die Turgescenz der hier in Frage kommenden Organe noch keine experimentellen Untersuchungen vorgenommen worden sind, lässt es sich doch nur in dieser Weise vorstellen, dass die Chorda als ein stützender Stab im Körper der Wirbelthiere Verwendung findet. Indem die zahlreichen, turgescenten, kleinen Chordazellen nach Aussen durch eine feste, elastische Scheide zu einem Organe verbunden und gegen die Umgebung abgegrenzt sind, werden ihre einzelnen Turgorkräfte sich summiren und durch innern Druck die gemeinsame Scheide in Spannung erhalten.
Saftaufnahme und Saftabscheidung kommen, wie beim Protoplasma, auch bei der Kernsubstanz vor. In beiden Fällen dienen sie wohl dem Zweck, den activen Substanzen eine grössere Oberfläche zu verleihen und sie mit Nährflüssigkeit in directere Beziehung zu setzen.
Während die Bildung von Saftvacuolen in thierischen Zellen selten ist, kommt es bei ihnen dagegen häufig zur Absonderung von weichen oder festen Substanzen: von Fett, Glycogen, Schleim, Albuminaten und festen Gemischen von mehreren Substanzen.
Fett kann sich, wie der Zellsaft in jungen Pflanzenzellen, zuerst in kleinen Tröpfchen im Protoplasmakörper bilden. Wie dort die Vacuolen, vergrössern sich später die Tröpfchen, verschmelzen untereinander und stellen schliesslich einen einzigen grossen Tropfen dar, der den ganzen Binnenraum der Zelle ausfüllt und nach Aussen von einer dünneren Protoplasmaschicht mit Kern und einer feinen Zellhaut umschlossen wird.
Glycogen sammelt sich in den Leberzellen in einzelnen Tropfen an, die bei Zusatz von Jodjodkalium eine mahagonibraune Farbe annehmen und sich dadurch kenntlich machen lassen.
Schleimbildende Substanz (Mucigen) füllt den Binnenraum der mit ihrer Bereitung betrauten Zellen (Fig. 64) oft in solcher Menge an, dass die Zellen zu Blasen angeschwollen sind oder die Form eines Bechers angenommen haben. Das Protoplasma ist meist an der Basis der Zelle, wo sich dann auch der Kern befindet, noch etwas reichlicher vorhanden, umgiebt von hier die mucigene Substanz mit einer dünnen Hülle und breitet sich auch mit einzelnen Fäden netzartig in ihr aus. Durch Färbung mit manchen Anilinfarben lässt sich die mucigene Substanz vom Protoplasma schärfer unterscheiden.
Grössere Festigkeit gewinnen die inneren Plasmaproducte sehr häufig in den Eizellen, die sich in der verschiedensten Weise mit Reservestoffen beladen. Nach ihrer Form werden dieselben als Dotterkügelchen (Fig. 65), Dotterkörner, Dotterplättchen unterschieden und stellen meist in chemischer Hinsicht ein Gemisch von Albuminaten und Fetten dar. Je zahlreicher und kleiner und dichter zusammengedrängt die Dotterelemente sind, um so mehr gewinnt der Plasmakörper ein schaumiges oder netzartiges Wesen.
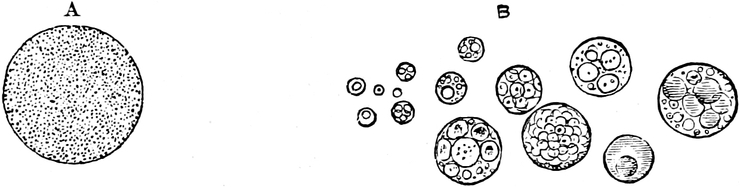
Fig. 65. Dotterelemente aus dem Ei des Huhns.
Nach B
ALFOUR
.
A
Gelber Dotter.
B
Weisser Dotter.
Manche Plasmaproducte zeigen eine krystallinische Beschaffenheit, wie die Guaninkrystalle, von denen der Silberglanz in der Haut und dem Bauchfell der Fische herrührt, oder wie die Pigmentkörnchen in den Pigmentzellen.
Aehnliche Plasmaproducte wie in thierischen kommen auch in pflanzlichen Zellen vor, hier aber gewöhnlich nur in einzelnen besonderen Organen, die entweder speciell zur Aufspeicherung von Reservestoffen oder wie die Samen zur Reproduction dienen. Dann finden sich die Zellen mit Oeltropfen erfüllt (ölige Samen) oder mit Körnern verschiedener Eiweisssubstanzen (Vitellin, Kleber, Aleuron) oder mit Eiweisskrystalloiden oder mit Stärkekörnern, auf die später noch genauer einzugehen ist.
Während die bisher besprochenen inneren Plasmaproducte beim Stoffwechsel vorübergehend angesammelt, dann wieder aufgebraucht werden und daher sehr veränderliche Bildungen sind, gibt es andere, die einen höheren Grad von Organisation erreichen und eine Theilfunction in der Zelle dauernd zu erfüllen haben. Hierher gehören die inneren Skeletbildungen des Protoplasmakörpers, die verschiedenen Körner, welche in den Pflanzenzellen mit dem gemeinsamen Namen Trophoplasten zusammengefasst werden, die Nesselkapseln der Coelenteraten, endlich die Muskelfibrillen, Nervenfibrillen u. s. w.
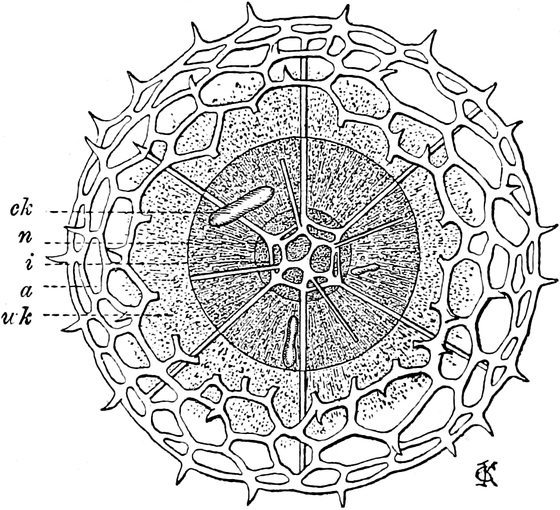
Fig. 66. Haliomma erinaceus.
Aus R. H
ERTWIG
, Zoologie Fig. 82.
a
äussere,
i
innere Gitterkugel,
ck
Centralkapsel,
wk
extracapsulärer Weichkörper,
n
Binnenbläschen (Kern).
Innere Skelete finden sich im Körper vieler Protozoen, namentlich aber in grosser Mannichfaltigkeit und Zierlichkeit der Formen bei den Radiolarien. Sie setzen sich bald aus regelmässig angeordneten Stäben, bald aus zierlichen, durchbrochenen Gitterkugeln, bald aus beiderlei Bildungen vereint (Fig. 66) zusammen. Bei einigen Familien der Radiolarien bestehen sie aus einer organischen, in Säuren und Alkalien löslichen Substanz, bei den meisten dagegen aus Kieselsäure, die an ein organisches Substrat, wie im Knochen der Wirbelthiere die phosphorsauren Salze an das Osseïn, gebunden ist. Alle diese Skelete haben eine für die Species constante und charakteristische Form und lassen ganz gesetzmässige Verhältnisse in ihrer Entwicklung (Richard Hertwig V. 40) erkennen.
Unter Trophoplasten versteht man hochorganisirte Differenzirungsproducte des pflanzlichen Protoplasma, welchen dieselbe Constanz wie dem Zellkern und eine grosse functionelle Selbständigkeit zukommt. Für die pflanzliche Ernährung sind sie sehr wichtig, da sich der ganze Assimilationsprocess und die Stärkebildung in ihnen abspielt. (Meyer V. 9–11.)
Die Trophoplasten sind kleine, meist kuglige oder ovale Körner, aus einer dem Protoplasma verwandten, aber doch von ihm unterscheidbaren Substanz. Sie sind leicht durch Wasser und Reagentien bei der Präparation zerstörbar und werden am besten durch Jodtinctur oder durch concentrirte Pikrinsäure fixirt. In Nigrosin färben sie sich alsdann stahlblau, so dass sie sich vom Protoplasmakörper scharf abheben. Sie finden sich oft in grosser Anzahl in der Zelle und können in activer Weise ihre Form verändern. Nach den Untersuchungen von Schmitz (V. 29), Schimper (V. 27, 28) und Meyer (V. 9–11) scheint eine directe Neuentstehung von Trophoplasten im Protoplasma nicht vorzukommen, dagegen vermehren sie sich wie die Kerne durch zeitweise eintretende Theilung. Von den Trophoplasten, die schon in der pflanzlichen Eizelle enthalten sind, würden somit die entsprechenden Gebilde aller aus ihr hervorgegangenen Zellgenerationen abzuleiten sein.
Die Trophoplasten können in verschiedenen Modificationen auftreten und verschiedene Functionen verrichten und werden danach als Stärkebildner, Chlorophyllkörner und Farbstoffkörner unterschieden (Amylo- oder Leukoplasten, Chloroplasten, Chromoplasten).
Fig. 67. Phajus grandifolius, Stärkebildner aus der Knolle.
Nach S
TRASBURGER
, Botanisches Prakticum Fig. 30.
A
,
C
,
D
u.
E
von der Seite,
B
von oben,
E
grün gefärbt. Vergr. 540.
Die meisten Stärkebildner (Fig. 67) finden sich in den nicht assimilirenden Zellen junger Pflanzenorgane und aller unterirdischen Theile, sowie in den Stengeln und Blattstielen. In den Scheinknollen von Phajus grandifolius, die für die Untersuchung besonders geeignet sind, stellen sie von der Fläche gesehen, ellipsoide feinkörnige Scheiben dar, in der Profilansicht erscheinen sie stäbchenförmig und heben sich bei Behandlung mit Pikronigrosin durch stahlblaue Farbe vom umgebenden Protoplasma ab. An einer Breitseite der Scheibe sitzt ein kleineres oder grösseres Stärkekorn. Ersteres ist ringsum von einem dünnen Ueberzug der Substanz des Leukoplasten umschlossen, letzteres nur an der ihm zugekehrten Oberfläche. Im zweiten Fall zeigt es eine excentrische Schichtung, und zwar der Art, dass der Kern, um den sich die Schichten herumlegen, sich in der Nähe der vom Leukoplasten abgewandten Oberfläche befindet. An dieser sind in Folge dessen die Schichten sehr dünn und verdicken sich dann allmählich nach dem Stärkebildner zu, woraus hervorgeht, dass sie von ihm aus wachsen und ernährt werden. Oft ist in der Substanz des Stärkebildners noch ein stäbchenförmiger Eiweisskrystall an der vom Amylumkorn abgewandten Fläche wahrzunehmen.
Da nun Stärke, wie wir früher gesehen haben, nur in grünen Pflanzentheilen durch Synthese erzeugt werden kann, sind die weissen Stärkebildner nicht als die eigentlichen Ursprungsstätten zu betrachten. Vielmehr müssen dieselben die Stärke in gelöster Modification, vielleicht als Zucker (Sachs) von den Orten, wo die Assimilation vor sich geht, bezogen haben, so dass dann ihre Aufgabe nur darin besteht, die gelöste Substanz wieder in ein festes und organisirtes Product umzuwandeln.
Mit dem Stärkebildner sind die Chlorophyllkörner (Fig. 68) nahe verwandt; denn sie können direct aus ihnen durch Umbildung hervorgehen, indem sich in ihrer Substanz unter dem Einfluss des Lichtes Chlorophyll entwickelt. Die Leukoplasten ergrünen dann, nehmen an Grösse zu und verlieren ihre Stärkekörner, die aufgelöst werden. Auf der andern Seite nehmen die Chlorophyllkörner auch aus den farblosen Trophoplasten, die an den Vegetationspunkten als indifferente Anlagen vorkommen, ihren Ursprung; endlich vermehren sie sich durch Theilung (Fig. 68): unter Zunahme ihrer Substanz strecken sie sich in die Länge und werden bisquitförmig, worauf sie schliesslich in ihrer Mitte durchgeschnürt werden.
Die Chlorophyllkörner bestehen aus einer Grundlage, welche die Reactionen des Eiweisses darbietet, und aus einem das Stroma durchtränkenden, grünen Farbstoff, dem Chlorophyll oder Blattgrün. Dasselbe lässt sich durch Alkohol extrahiren und zeigt in der Lösung deutliche Fluorescenz, indem es in durchfallendem Licht grün, in reflectirtem Licht blutroth aussieht.
Fig. 68. Chlorophyllkörner aus dem Blatte von Funaria hygrometrica, ruhend und in Theilung.
Vergr. 540. Nach S
TRASBURGER
, Botanisches Prakticum Fig. 25.
In den Chlorophyllkörnern sind gewöhnlich mehrere kleine Stärkekörnchen eingeschlossen, die in ihnen durch Assimilation gebildet worden sind. Am besten lassen sie sich, nachdem das Chlorophyll durch Alkohol ausgezogen ist, durch Zusatz von Jodtinktur nachweisen.
Wie durch die Untersuchungen von Stahl gezeigt worden ist, können die Chlorophyllkörner, abgesehen von den zweckmässigen Verlagerungen, welche sie durch Strömung des Protoplasma erfahren (siehe Seite 84), auch activ ihre Gestalt in auffälliger Weise unter dem Reiz der Lichtstrahlen verändern. Während sie in diffusem Tageslicht polygonale Scheiben darstellen, welche ihre Breitseite der Lichtquelle zugekehrt haben, ziehen sie sich in directem Sonnenlicht zu kleinen Kugeln oder ellipsoiden Körpern zusammen. Sie führen dadurch eine für die Chlorophyllfunction zweckmässige Bewegung aus und erreichen durch sie, „dass sie dem Sonnenlicht eine kleinere, dem diffusen Tageslicht aber eine grössere Fläche zur Aufnahme der Strahlen bieten. Uns aber geben sie dadurch einen Einblick in den hohen Grad ihrer inneren Differenzirung, wie wir ihn durch das einfache Studium ihrer chemischen Thätigkeit bei weitem nicht hätten gewinnen können.“ (de Vries V. 46.) Wie die Kerne, erscheinen sie im Hinblick auf ihre Vermehrung durch Theilung, im Hinblick auf ihr actives Bewegungsvermögen und ihre Function beim Assimilationsprocess als sehr selbständige, hoch individualisirte Plasmagebilde.
Endlich sind als eine besondere Abart der Trophoplaste noch die Farbkörner zu erwähnen, auf welche namentlich die gelbe und orangerothe Färbung vieler Blüthen zurückzuführen ist. Sie bestehen aus einem protoplasmatischen Substrat, das meist sehr unregelmässig gestaltet ist und bald die Form einer Spindel, einer Sichel, eines Dreiecks oder eines Trapezes hat. In dem Substrat sind Farbstoffkrystalle abgelagert. Auch hier lässt sich an geeigneten Objecten die allmähliche Entstehung der Farbkörper aus farblosen Trophoplasten nachweisen. Auch hier hat Weiss spontane Bewegungen und Formveränderungen wahrgenommen.
Die Besprechung der verschiedenen Arten der Trophoplasten schliessen wir ab, indem wir noch genauer auf die Structur der Stärkekörner eingehen, welche durch die Untersuchungen von Nägeli (V. 17, 20) und die daran geknüpften Schlussfolgerungen eine grosse theoretische Bedeutung gewonnen haben.
Die Stärkekörner (Fig. 69) zeigen in der Pflanzenzelle hinsichtlich ihrer Grösse ausserordentliche Verschiedenheiten. Auf der einen Seite sind sie so klein, dass sie bei der stärksten Vergrösserung nur als ein Punkt erscheinen, auf der andern Seite können sie bis zu einem Umfang von 0,2 mm heranwachsen. Charakteristisch ist ihre Reaction bei Zusatz von Jodlösungen. Je nach der Concentration derselben nehmen sie eine hellblaue bis schwarzblaue Färbung an. In warmem Wasser quellen sie beträchtlich auf und gehen beim weiteren Kochen in Kleister über.
Die Form der Stärkekörner ist bald oval, bald rundlich, bald mehr unregelmässig. Bei stärkeren Vergrösserungen ist an ihnen eine deutliche Schichtung zu erkennen, indem auf dem optischen Durchschnitt breitere, helle und schmälere, dunkle Streifen mit einander abwechseln. Nägeli erklärt diese Erscheinungen in der Weise, dass er das Stärkekorn aus wasserärmeren und wasserreicheren Lamellen von Stärkesubstanz zusammengesetzt sein lässt. Strasburger (V. 31) dagegen deutet „die dunkleren Linien als die besonders markirten Adhäsionsflächen der aufeinander folgenden Lamellen, die er sich mehr oder weniger vollständig gleichen lässt“.
Fig. 69. Stärkekörner an der Kartoffelknolle.
Nach S
TRASBURGER
, Botanisches Prakticum Fig.7.
A
ein einfaches,
B
ein halb zusammengesetztes,
C
und
D
ganz zusammengesetzte Stärkekörner,
c
der organische Kern. Vergr. 540.
Die Lamellen (Fig. 69) sind um einen Kern angeordnet, der entweder das Centrum des ganzen Korns einnimmt (B C), oder, was häufiger der Fall ist, sehr excentrisch (A) gelegen ist. Auch finden sich nicht selten Stärkekörner, bei denen um 2 (B C) bis 3 (D) Kerne mehrere Lamellensysteme angeordnet sind; sie werden daher als zusammengesetzte den Körnern mit einem einfachen Kern gegenübergestellt. Bei centraler Lage des Kerns zeigen die ihn umgebenden Stärkeschichten überall nahezu die gleiche Dicke. Bei excentrischer Lage dagegen gehen nur die innersten Schichten continuirlich um ihn herum, die peripheren besitzen die grösste Dicke an der vom Kern abgewandten Seite des Korns, verdünnen sich, je mehr sie sich dem Kern nähern und werden schliesslich an der Seite, nach welcher der excentrische Kern zu liegt, so fein, dass sie von den Nachbarlamellen nicht mehr zu unterscheiden sind, oder laufen überhaupt ganz frei aus.
In jedem Stärkekorn nimmt der Wassergehalt von der Oberfläche nach dem Centrum zu. Der Kern ist am wasserreichsten, die oberflächlichste, an das Protoplasma angrenzende Schicht zeigt das dichteste Gefüge. Hierauf ist die Erscheinung zurückzuführen, dass bei dem Austrocknen der Stärkekörner Risse im Kern und von diesem ausstrahlend nach der Peripherie hin entstehen (Nägeli V. 17).
Wie schon oben erwähnt, nehmen bei den Pflanzen die Stärkekörner gewöhnlich nicht direct im Protoplasma, sondern in besonderen Differenzirungsproducten desselben, den Stärkebildnern (Amyloplasten und Chlorophyllkörpern) ihren Ursprung. Je nachdem nun das Korn im Innern eines solchen oder an seiner Oberfläche angelegt wird, erklärt sich nach den Untersuchungen von Schimper (V. 27) die oben beschriebene, verschiedenartige Schichtung. Im ersten Fall bilden sich die Stärkelamellen gleichmässig um den Kern herum, da sie von allen Seiten her gleichmässig von der Substanz des Stärkebildners ernährt werden. Im zweiten Fall befindet sich der an die Oberfläche des Stärkebildners angrenzende Theil des Stärkekorns unter ungünstigeren Wachsthumsbedingungen. Es wird daher viel mehr Substanz an der dem Stärkebildner zugekehrten Fläche des Korns angebildet, die Schichten fallen hier dicker aus und verjüngen sich nach der entgegengesetzten Fläche. In Folge dessen wird der Kern, um welchen die Schichten herumgelegt sind, immer mehr über die Oberfläche des Stärkebildners hinausgeschoben und nimmt dementsprechend immer mehr im Schichtensystem eine excentrische Lage ein.
Dass die Stärkekörner durch Auflagerung neuer Schichten an der Oberfläche, also durch Apposition wachsen, geht namentlich aus einer Beobachtung von Schimper (V. 27) hervor. Derselbe fand Stärkekörner, an deren Oberfläche ein Auflösungsprozess stattgefunden hatte, dann aber wieder unterbrochen worden war. Denn um das corrodirte Korn hatten sich wieder frische Schichten herum gebildet.
Nach den Angaben von Strasburger werden Stärkekörner in einzelnen Fällen auch direct im Protoplasma ohne Mitwirkung besonderer Stärkebildner erzeugt. In den Markstrahlzellen der Coniferen fand dieser Forscher ihre erste Anlage als winzige Körnchen in den Strängen des Plasmanetzes eingeschlossen. Wenn sie grösser geworden sind, liegen sie deutlich in Plasmataschen, deren Innenwand etwas lichtbrechender ist und Mikrosomen führt.
Ein sehr kunstvoll gebautes, inneres Plasmaproduct stellen die Nesselkapseln (Fig. 70) dar, welche sich besonders bei Coelenteraten als Angriffswaffen in den über das Ektoderm vertheilten Nesselzellen entwickeln. Sie bestehen aus einer ovalen Kapsel (a u. b), die aus einer glänzenden Substanz gebildet ist und eine Oeffnung an dem nach der Oberfläche der Epidermis zugekehrten Ende besitzt. Der Innenfläche der Kapsel liegt eine feine Lamelle dicht an, die an dem Rande der Oeffnung in den oft compliciert gebauten Nesselschlauch übergeht (vergl. Fig. 70 a u. b). In der vorliegenden Figur ist der letztere aus einem weitern kegelförmigen Anfangstheil, der in das Innere der Kapsel eingestülpt und mit einigen kürzeren und längeren Widerhaken bedeckt ist, und aus einem sehr langen und feinen Schlauch zusammengesetzt. Dieser geht von der Spitze des Kegels aus und ist um denselben in vielen spiralen Windungen aufgerollt. Der freibleibende Binnenraum ist von einem nesselnden Secret erfüllt. Das an die Nesselkapsel angrenzende Protoplasma ist zu einer contractilen Hülle differenzirt, die nach Aussen ebenfalls von einer Oeffnung durchbrochen ist (Schneider V. 45).
Auf der freien Oberfläche der Zelle erhebt sich nahe der Kapselöffnung ein starrer, glänzender, haarähnlicher Fortsatz, das Cnidocil. Wenn dasselbe durch irgend einen Fremdkörper berührt wird, pflanzt es den Reiz auf das Protoplasma fort. In Folge dessen zieht sich die contractile Hülle in der Umgebung der Nesselkapsel plötzlich heftig zusammen, comprimirt dieselbe und treibt den in ihrem Innern eingeschlossenen Schlauch nach Aussen hervor, wobei er wie der Finger eines Handschuhs umgestülpt wird (Fig. 70 b). Zuerst wird der erweiterte kegelförmige Anfangstheil mit den Widerhaken nach Aussen hervorgestülpt, dann folgt der spiral aufgerollte, feine Schlauch nach. Das nesselnde Secret wird wahrscheinlich durch eine Oeffnung im Schlauchende entleert.
Auf die Entstehung dieses ausserordentlich complicirten Apparates wirft die Entwicklungsgeschichte Licht. Zuerst bildet sich in jungen Nesselzellen eine ovale Secrethöhle, die sich gegen das Protoplasma durch eine feine Membran abgrenzt; dann wächst von dem freien Zellende aus ein feiner Protoplasmafortsatz in die Secrethöhle hinein, nimmt Lage und Form des inneren Nesselapparats an und scheidet auf seiner Oberfläche die zarte Schlauchmembran ab. Zuletzt differenzirt sich noch die glänzende und derbere, äussere Wand der Kapsel mit der Oeffnung und um diese wiederum die contractile Hülle.
Fig. 70. Nesselzellen der Cnidarien
(aus L
ANG
), H
ERTWIG
, Zoologie Fig. 161.
a
Zelle mit Cnidocil und einem in der Kapsel aufgerollten Nesselfaden.
b
Nesselfaden aus der Nesselkapsel hervorgeschleudert, an der Basis mit Widerhaken bewaffnet.
c
Klebzellen einer Ktenophore.
b) Die äusseren Plasmaproducte.
Die äusseren Plasmaproducte können in 3 Gruppen eingetheilt werden, in die Zellhäute, in die Cuticulargebilde und in die Intercellularsubstanzen.
Zellhäute sind Absonderungen, mit denen sich der Zellkörper auf seiner ganzen Oberfläche umgiebt. Sie bilden namentlich bei pflanzlichen Zellen einen sehr wichtigen und stark in die Augen fallenden Bestandtheil, während sie im Thierreich häufig fehlen oder so wenig ausgebildet sind, dass sie auch bei starken Vergrösserungen schwer zu erkennen sind.
Im Pflanzenreich besteht die Zellhaut aus einem der Stärke sehr nahe verwandten Kohlenhydrat, der Cellulose. Die Anwesenheit derselben lässt sich meist leicht durch eine sehr charakteristische Reaction feststellen. Wenn man einen Schnitt durch Pflanzengewebe oder eine einzelne Pflanzenzelle zuerst mit einer dünnen Lösung von Jodjodkalium durchtränkt und darauf nach Entfernung der Jodlösung Schwefelsäure (2 Theile mit 1 Theil Wasser verdünnt) zusetzt, so nehmen die Zellwände eine bald hell-, bald dunkelblaue Farbe an. Eine Cellulosereaction erhält man auch durch Zusatz einer Chlorzinkjodlösung.
Die Membranen der Pflanzenzellen erreichen oft eine beträchtliche Dicke und Festigkeit und lassen dann auf dem Durchschnitt eine deutlich ausgesprochene Schichtung erkennen, indem wie im Stärkekorn schwächer und stärker das Licht brechende Streifen mit einander abwechseln (Fig. 71 und 72 A, B). Aber auch bei Betrachtung von der Fläche ist noch eine feinere Structur häufig nachweisbar. Die Zellhaut zeigt eine feine Streifung, als ob sie aus zahlreichen, parallel angeordneten Fasern zusammengesetzt sei. Dabei kreuzen sich die Fasern in entgegengesetzten Richtungen. Entweder verlaufen die einen in der Längsrichtung, die anderen in der Querrichtung, also ringförmig um die Zelle herum, oder sie sind schräg zur Längsaxe der Zelle angeordnet. Ueber die Beziehung dieser feinen Streifung zu den einzelnen Celluloselamellen stehen sich die Ansichten von Nägeli und Strasburger gegenüber.
Fig. 71.
Fig. 72.
Fig. 71. Querschnitt durch das Rhizom von Caulerpa prolifera an der Insertionsstelle eines Balkens. Nach STRASBURGER Taf. I, Fig. 1.
Fig. 72. A Theil einer älteren Markzelle mit sechs Verdickungsschichten von Clematis vitalba. Nach STRASBURGER Taf. I, Fig. 13.
B Eine solche Zelle, in Schwefelsäure gequollen. Nach STRASBURGER Taf. I, Fig. 14.
Nägeli (V. 19) lässt in jeder Lamelle beide Streifensysteme vorhanden sein; wie beim Stärkekorn sollen sowohl die Lamellen als auch die sich kreuzenden Streifen abwechselnd aus wasserärmerer und aus wasserreicherer Substanz bestehen und daher abwechselnd hell und dunkel erscheinen. Eine Lamelle ist daher parketartig gefeldert mit quadratisch-rechteckigen oder mit rhombischen Feldern. „Diese zeigen ein dreifach verschiedenes Aussehen; sie bestehen nämlich aus dichter, weicher und mittlerer Substanz, je nachdem sie der Kreuzungsstelle zweier dichter, zweier weicher oder eines dichten und eines weichen Streifens entsprechen.“ Nach Nägeli lässt sich daher die ganze Zellmembran „nach 3 Richtungen in Lamellen zerlegen, die alternirend aus wasserreicherer und wasserärmerer Substanz bestehen, und die sich in ähnlicher Weise wie die Blätterdurchgänge eines Krystalls kreuzen. Die Lamellen der einen Richtung sind die Schichten, die der beiden andern die zwei Streifensysteme. Die letzteren können sich fast unter jedem Winkel schneiden; beide stehen auf den Schichtenlamellen, wie es scheint, in den meisten Fällen rechtwinklig“.
Im Gegensatz zu Nägeli lassen Strasburger (V. 31–33) und andere Botaniker, deren Angaben wohl nicht anzufechten sind, die sich kreuzenden Streifen nie einer und derselben Lamelle angehören; vielmehr gestaltet sich nach ihnen das Verhältniss so, dass wenn die eine Lamelle in longitudinaler Richtung, die nächstfolgende in querer Richtung gestreift ist und so fort in wechselnder Folge. Nach Strasburger unterscheiden sich weder die einzelnen Lamellen noch die einzelnen Streifen durch ungleichen Wassergehalt. Die Lamellen sowohl wie die Streifen in denselben sind von einander durch Contactflächen getrennt, welche bei den verschiedenen Ansichten (Querschnittsbild, Flächenbild) als dunklere Linien erscheinen. Die Anordnung ist daher im Allgemeinen eine ähnliche, wie in einer Hornhaut, die sich aus Lamellen mit gekreuzten Fasern aufbaut.
Nicht selten zeigen die Cellulosemembranen, und zwar meist an ihrer inneren Fläche, feinere Skulpturen. So können Leisten nach innen vorspringen, welche entweder in einer Schraubenlinie verlaufen oder in grösserer Anzahl quer zur Längsaxe der Zelle gestellt oder in mehr unregelmässiger Weise zu einem Netz unter einander verbunden sind. Auf der andern Seite kann die Zellwand an einzelnen Stellen, wo sie an eine Nachbarzelle stösst, verdünnt bleiben und so Tüpfel oder Tüpfelkanäle erzeugen (Fig. 72 A), durch deren Vermittelung benachbarte Zellen Nahrungssubstanzen besser austauschen können.
Auch in stofflicher Hinsicht kann die Zellwand bald nach ihrer ersten Anlage ihren Charakter in verschiedener Weise verändern, entweder durch Incrustation oder durch Verholzung oder durch Verkorkung.
Nicht selten werden in die Cellulose Kalksalze oder Kieselsäure abgelagert, wodurch die Membranen eine grössere Festigkeit und Härte erhalten. Wenn solche Pflanzentheile geglüht werden, wird die Cellulose verkohlt und es bleibt an Stelle des Zellhautgerüstes ein mehr oder minder vollständiges Kalk- oder Kieselskelet zurück. Kalkablagerung findet sich bei den Kalkalgen, bei Characeen, bei Cucurbitaceen, Verkieselung bei Diatomeen, bei Equisetaceen, bei Gräsern etc.
Durch die Verholzung erhalten die Zellmembranen gleichfalls eine bedeutend grössere Festigkeit. Hier ist der Cellulose noch eine andere Substanz, der Holzstoff (das Lignin und Vanillin) beigemengt. Derselbe lässt sich durch Kalilauge oder durch ein Gemisch von Salpetersäure und chlorsaures Kali auflösen und entfernen, worauf dann noch ein die Cellulosereaction darbietendes Gerüst übrig bleibt.
Bei dem Process der Verkorkung ist mit der Cellulose Korkstoff oder Suberin in geringerer oder reichlicherer Menge verbunden. Hierdurch werden wieder die physikalischen Eigenschaften der Zellwand in der Weise verändert, dass sie für Wasser undurchlässig wird. Daher entwickeln sich denn verkorkte Zellen an der Oberfläche vieler Pflanzenorgane, um die Wasserverdunstung zu verhüten.
Während es bei der Verkalkung und Verkieselung auf der Hand liegt, dass die Kalktheilchen und die Kieseltheilchen durch Vermittelung des Protoplasma an Ort und Stelle geschafft und zwischen den Cellulosetheilchen abgelagert worden sind, wobei wieder molecularen Bindungen eine Rolle zufallen wird, bieten sich für das Zustandekommen der Verholzung und der Verkorkung zwei Möglichkeiten dar. Entweder ist der Holz- und Korkstoff in einer löslichen Modification durch Vermittelung des Protoplasma entstanden und gleich den Kalk- und Kieseltheilchen in die Cellulosemembran in unlöslicher Modification eingelagert worden, oder beide Substanzen haben sich an Ort und Stelle durch chemische Umwandlung der Cellulose gebildet. Es ist dies wieder eine Angelegenheit, welche weniger der Morphologe mit seinen Untersuchungsmethoden, als vielmehr der physiologische Chemiker wird zu entscheiden haben. (Siehe S. 124.)
Eine viel discutierte, sehr wichtige, aber nicht leicht zu entscheidende Frage ist das Wachsthum der Zellhaut. Bei demselben haben wir ein Dicken- und ein Flächenwachsthum zu unterscheiden. Das bei seiner Entstehung kaum messbar feine Cellulosehäutchen kann allmählich eine sehr bedeutende Dicke erreichen und sich hierbei aus immer zahlreicheren Lamellen zusammensetzen, deren Zahl der Dicke proportional zunimmt. Das Allerwahrscheinlichste ist, dass vom Protoplasma Schicht auf Schicht auf das zuerst abgeschiedene Häutchen neu abgelagert wird. Man nennt dies ein Wachsthum durch Apposition, im Gegensatz zu einer von Nägeli aufgestellten Theorie (V. 19), nach welcher das Wachsthum der Häute durch Intussusception vor sich gehen soll, das heisst: durch Einlagerung neuer Theilchen in Zwischenräume zwischen die bereits vorhandenen Theilchen.
Für die Appositionstheorie sprechen namentlich folgende drei Erscheinungen. 1) Wenn an der Innenfläche einer Zellhaut sich leistenförmige Verdickungen bilden, so werden dieselben schon vor ihrem Auftreten dadurch angedeutet, dass in dem Protoplasmaschlauch sich an den entsprechenden Stellen das Protoplasma in dickeren Bändern ansammelt und die Erscheinungen der Circulation darbietet. 2) Wenn durch Plasmolyse sich der Protoplasmakörper von der Zellhaut zurückgezogen hat, scheidet er auf seiner nackten Oberfläche eine neue Cellulosemembran ab (Klebs IV. 14). Man kann die Plasmolyse rückgängig machen. Der sich durch Wasseraufnahme vergrössernde Zellkörper legt sich dann mit seiner neuen Haut der alten wieder dicht an und verbindet sich mit ihr. 3) Bei der Theilung von Pflanzenzellen lässt sich oft sehr deutlich erkennen, wie jede Tochterzelle sich mit einer eigenen, neuen Hülle umgiebt, so dass dann innerhalb der alten Membran der Mutterzelle zwei neugebildete Membranen der Tochterzellen eingeschlossen sind.
Grössere Schwierigkeiten bietet die Erklärung vom Flächenwachsthum der Membran. Dasselbe könnte durch zwei verschiedene Processe bewirkt werden, die entweder allein oder mit einander combinirt Platz greifen könnten. Einmal könnte die Membran sich durch Dehnung vergrössern, wie ein Gummiball, den man aufbläst. Zweitens aber könnte sie sich auch durch Intussusception, durch Aufnahme neuer Cellulosetheilchen zwischen die alten, ausdehnen.
Dafür, dass eine Dehnung der Zellhaut stattfindet, sprechen manche Erscheinungen. Schon der früher erwähnte Turgor der Zelle ruft eine solche hervor. Denn sowie eine Zelle der Plasmolyse ausgesetzt wird, schrumpft sie erst im Ganzen unter Wasseraustritt etwas zusammen, ehe sich der Plasmaschlauch ablöst, ein Zeichen, dass sie durch inneren Druck gedehnt war. Bei manchen Algen lässt sich beobachten, dass die zuerst gebildeten Celluloselamellen durch Dehnung schliesslich gesprengt und abgeworfen werden (Rivularien, Gloeocapsa, Schizochlamys gelatinosa etc.). Jede Dehnung und Verkürzung muss mit Verlagerung der kleinsten Theilchen verbunden sein, die sich hier mehr in der Fläche, dort mehr in der Dicke anordnen.
Dadurch bietet die Vergrösserung einer Membran durch Dehnung manche Berührungspunkte mit dem Wachsthum durch Intussusception. Der Unterschied zwischen beiden Arten läuft dann darauf hinaus, dass im ersten Fall schon von früher her vorhandene Cellulosetheilchen, im zweiten Fall neue, in Bildung begriffene Theilchen in die Fläche eingelagert werden.
Das Wachsthum durch Intussusception möchte ich nun nicht, wie es Strasburger früher gethan hat (V. 31), vollkommen in Abrede stellen, vielmehr erblicke ich in ihm neben der Apposition einen zweiten wichtigen Factor bei der Membranbildung, allerdings nicht den einzigen Factor, wie es in der Theorie von Nägeli in dogmatischer Weise angenommen wird.
Viele Erscheinungen des Zellenwachsthums lassen sich, wie es von Nägeli (V. 17 u. 19) geschehen ist, durch Intussusception am ungezwungensten erklären, während die Appositionstheorie auf Schwierigkeiten stösst.
Zerreissungen von Membranschichten durch Dehnung werden im Ganzen doch in sehr seltenen Fällen beobachtet. Trotzdem vergrössern sich fast alle Zellen von ihrer Anlage bis zum ausgewachsenen Zustand so bedeutend, dass die Dehnungsfähigkeit der Haut, welche bei Cellulose wohl überhaupt nicht als eine sehr grosse angenommen werden darf, bald überschritten werden müsste. Viele Pflanzenzellen verlängern sich um das 100fache, und manche um mehr als das 2000fache (Chara).
Manche Zellen zeigen eine sehr unregelmässige Form, deren Erklärung sehr grosse Schwierigkeiten bereiten würde, wenn die Zellhaut allein durch innere Dehnung, einer Kautschukblase vergleichbar, sich in der Fläche vergrössern sollte. Caulerpa, Acetabularia etc. sind, trotzdem sie einen einzigen Hohlraum enthalten, wie eine vielzellige Pflanze in Wurzeln, Stengel und Blätter gegliedert, von denen ein jeder Theil durch eigene Wachsthumsgesetze beherrscht wird. Manche Pflanzenzellen wachsen nur an bestimmten Stellen, entweder an der Spitze oder nahe der Basis oder entwickeln seitliche Ausstülpungen und Aeste. Andere erfahren beim Wachsthum complicirte Drehungen, wie die Internodien der Characeen.
Endlich macht Nägeli noch für ein Wachsthum durch Intussusception geltend, dass manche Membranen in der Fläche und Dicke bedeutend zunehmen, nachdem sie durch Theilung des Protoplasmakörpers von diesem in Folge der Bildung von Specialmembranen um die Tochterzellen getrennt worden sind. „Gloeocapsa und Gloeocystis treten zuerst als einfache Zellen mit dicker, gallertiger Membran auf. Die Zelle theilt sich in zwei, wovon jede wieder eine gleiche blasenförmige Membran bildet; und so geht die Einschachtelung weiter.“ Die äusserste Gallertblase muss in Folge dessen immer grösser werden. Ihr Volumen betrug bei einer Art in diesen successiven Entwicklungsstadien nach Berechnungen von Nägeli im Mittel 830–2442–5615–10209 Kubikmik. Bei einer andern Art war eine Verdickung der zuerst gebildeten Gallertmembran von 10 auf 60 Mik., also um das 6fache eingetreten. „Bei Apiocystis sind die birnförmigen Kolonien, die aus sehr weicher Gallerte mit eingelagerten Zellen bestehen, von einer dichteren Membran umhüllt. Dieselbe nimmt mit dem Alter nicht bloss an Umfang, sondern auch an Mächtigkeit zu; denn bei kleineren Kolonien ist sie bloss 3 Mik., bei den grossen bis 45 Mik. dick; an jenen beträgt die Oberfläche etwa 27000, an diesen etwa 1500000 Quadrat-Mik.-Mill. Die Dicke der Hülle nimmt also von 1 auf 15, der Flächeninhalt von 1 auf 56, und der Kubikinhalt von 1 auf 833 zu. Von einer Apposition auf der inneren Seite dieser Hülle kann keine Rede sein; denn ihre innere glatte Fläche wird von den kleinen, kugeligen Zellen entweder gar nicht oder nur an einzelnen wenigen Stellen berührt.“
In allen diesen Fällen muss ich dem Ausspruch von Nägeli zustimmen, dass wir hier auf Unwahrscheinlichkeiten stossen, wenn wir das Flächenwachsthum der Zellenmembran bloss aus der Auflagerung von neuen Schichten erklären wollen, während die oben namhaft gemachten „Erscheinungen (Aenderung der Gestalt und Richtung, ungleiches Wachsthum der Theile, Drehung) sich durch Intussusception auf die einfachste und leichteste Art nachweisen lassen. Alles hängt davon ab, dass die neuen Theilchen zwischen die schon vorhandenen an bestimmten Stellen, in bestimmter Menge und in bestimmter Richtung eingelagert werden.“
Der Process der Intussusception selbst ist vollends nicht in Abrede zu stellen, wo Kalk- oder Kieselsalze in die Membran abgelagert sind, da dies meist erst nachträglich und oft nur in den oberflächlichen Schichten geschieht. Dass in ähnlicher Weise nicht auch Cellulosetheilchen sollten eingelagert werden können, würde als unmöglich nur dann erwiesen sein, wenn gezeigt wäre, dass Cellulose in der That nur durch directe Umwandlung von Protoplasmaschichten gebildet wird. Dies ist aber doch nichts weniger als erwiesen, und wird der Pflanzenanatom es wahrscheinlich durch mikroskopische Beobachtung allein überhaupt nicht feststellen können, sondern nur mit Hülfe einer weit fortgeschrittenen Mikrochemie, Verhältnisse, über welche das auf Seite 123–124 Gesagte zu vergleichen ist. Bei Berücksichtigung der dort gegebenen Darlegungen wird man überhaupt finden, dass bei gewissen Bedingungen der Cellulosebildung zwischen Apposition und Intussusception gar nicht der schroffe Gegensatz besteht, wie er von mancher Seite herausgekehrt wird. — —
Cuticulargebilde sind hautartige Absonderungen, mit welchen sich eine Zelle anstatt allseitig nur einseitig an ihrer nach Aussen gekehrten Oberfläche bedeckt. Im Thierreich sind häufig die Zellen, welche die Oberfläche des Körpers einnehmen oder die Innenfläche des Darmkanals auskleiden, mit einer Cuticula versehen, welche das darunter gelegene Protoplasma gegen die schädlichen Einflüsse der umgebenden Medien schützt. Die Cuticula ist gewöhnlich aus dünnen Lamellen gebildet und ausserdem von feinen, parallel verlaufenden Poren durchsetzt, in welche vom darunter gelegenen Protoplasma zarte Fädchen eindringen. Als Cuticulargebilde eigenthümlicher Art, welche zugleich eine sehr ausgesprochene Schichtung aufweisen, sind auch die Aussenglieder der Stäbchen und Zapfen in der Netzhaut anzuführen.
Cuticulare Abscheidungen membranartig angeordneter Zellen verschmelzen sehr häufig untereinander und stellen dann ausgedehnte Häute dar (Fig. 73), welche namentlich bei Würmern und Arthropoden der ganzen Oberfläche des Körpers zum Schutz dienen. Dieselben bestehen meist aus Chitin, einem Stoff, welcher nur in kochender Schwefelsäure löslich ist. In ihrer feinen Structur zeigen sie grosse Uebereinstimmung mit den Cellulosemembranen, nämlich eine Schichtung, welche auf ein Wachsthum durch Apposition neuer Lamellen an der Innenseite der zuerst gebildeten hinweist.
Zeitweise werden die alten Chitinhäute gesprengt und abgeworfen, nachdem sich unter ihnen eine jüngere, weichere Haut zum Ersatz gebildet hat, ein Vorgang, der als Häutung bezeichnet wird. Zur Verstärkung der Chitinhaut können Kalksalze auf dem Wege der Intussusception in sie abgelagert werden.
Fig. 73.
Fig. 74.
Fig. 73. Epithel mit Cuticula einer Blattwespe. (Cimbex coronatus.) Aus R. HERTWIG Fig. 24 f.
c Cuticula. e Epithel.
Fig. 74. Knorpel (nach GEGENBAUR).
c Knorpeloberhaut. b Uebergang zum typischen Knorpel a.
Intercellularsubstanzen endlich entstehen, wenn eine grössere Anzahl von Zellen an ihrer ganzen Oberfläche feste Stoffe ausscheidet, ihre Abscheidungsproducte aber sich nicht, wie die Zellmembranen, getrennt erhalten, sondern unter einander zu einer zusammenhängenden Masse verschmelzen, in welcher man nicht erkennen kann, was von der einen, was von der anderen Zelle abstammt (Fig. 74). Die Gewebe mit Intercellularsubstanzen sind daher nicht in einzelne Zellen, wie ein Stück Pflanzengewebe, zerlegbar. In der continuirlichen Grundsubstanz, welche aus sehr verschiedenen chemischen Stoffen (Mucin, Chondrin, Glutin, Ossein, Elastin, Tunicin, Chitin etc.) bestehen kann, welche ferner bald homogen, bald faserig aussieht, sind kleine Höhlen vorhanden, in welchen die Protoplasmakörper eingeschlossen sind. Da der die Höhle umgebende Bezirk der Intercellularsubstanz am meisten unter dem Einfluss des in ihr gelegenen Protoplasmakörpers stehen wird, nannte ihn Virchow (I. 33) ein Zellenterritorium. Dasselbe ist aber in der Natur, wie gesagt, von den Nachbarterritorien nicht abgegrenzt.
Unter den Zellproducten, die ihrer Lage nach bald mehr als äussere, bald mehr als innere aufgefasst werden können, sind endlich noch die Muskel- und Nervenfibrillen zu nennen. Selbst aus Proteïnsubstanzen aufgebaut, stehen sie in stofflicher Hinsicht dem Protoplasma am nächsten, lassen sich aber den bisher besprochenen Bildungen insofern anreihen, als sie von ihm deutlich gesondert sind, als eigenartige Theile sich darstellen lassen und nur eine ganz specifische Function im Zellenleben auszuüben vermögen. Wegen ihrer feineren Structur ist auf das zweite Buch, die Gewebe, zu verweisen.
Literatur. V.
1) Baumann. Ueber den von O. Löw und Th. Bokorny erbrachten Nachweis von der chemischen Ursache des Lebens. Pflüger’s Archiv. Bd. XXIX. 1882.
3) Engelmann. Neue Methode zur Untersuchung der Sauerstoffausscheidung pflanzlicher und thierischer Organismen. Botan. Zeitung. 1881.
Derselbe. Generelle Morphologie.
5) Hess. Untersuchungen zur Phagocytenlehre. Virchow’s Archiv. Bd. 109.
6) Langhans. Beobachtungen über Resorption der Extravasate und Pigmentbildung in denselben. Virchow’s Archiv. 1870. Bd. 49.
7) Löw u. Bokorny. Die chemische Ursache des Lebens. München 1881.
8) Marchand. Ueber die Bildungsweise der Riesenzellen um Fremdkörper. Virchow’s Archiv. 1883. Bd. 93.
10) Derselbe. Ueber Krystalloide der Trophoplasten und über die Chromoplasten der Angiospermen. Botan. Zeitung. 1883.
14) Derselbe. Ueber den Kampf der Zellen gegen Erysipelkokken. Ein Beitrag zur Phagocytenlehre. Archiv f. patholog. Anatomie u. Physiologie. Bd. 107.
21) Derselbe. Ernährung der niederen Pilze durch Kohlenstoff- u. Stickstoffverbindungen. Untersuch. über niedere Pilze aus dem pflanzenphysiolog. Institut in München. 1882.]
24) Derselbe. 1) Ueber Aufnahme und Ausgabe ungelöster Körper. 2) Zur Kenntniss der Plasmahaut und der Vacuolen nebst Bemerkungen über den Aggregatzustand des Protoplasmas u. über osmotische Vorgänge. Abhandl. der Mathemat. physik. Classe d. kgl. sächs. Gesellsch. d. Wissenschaft. Bd. XVI. 1890.
30) Schützenberger. Die Gährungserscheinungen. 1876.
32) Derselbe. Ueber das Wachsthum vegetabilischer Zellhäute. Histologische Beiträge. Heft 2. 1889.
34) A. Weiss. Ueber spontane Bewegungen und Formänderungen von Farbstoffkörpern. Sitzungsber. d. kgl. Akademie d. Wissensch. zu Wien. Bd. XC. 1884.
37) Went. Die Vermehrung der normalen Vacuolen durch Theilung. Jahrb. f. wissensch. Botanik. Bd. 19. 1888.
38) Jul. Wortmann. Ueber die Beziehungen der intramolecularen u. normalen Athmung der Pflanzen. Arbeiten des botanischen Instituts zu Würzburg. Bd. II. 1879.