SECHSTES CAPITEL. Die Lebenseigenschaften der Zelle. IV. Die Fortpflanzung der Zelle auf dem Wege der Theilung. (continued 2)
Reading edition
Knospungsprocesse kommen bei einigen Abteilungen einzelliger Organismen häufiger vor, und entnehme ich aus ihrem Kreise ein zweites Beispiel, die von Richard Hertwig (VI. 35) untersuchte Podophrya gemmipara, eine marine Acinete, welche mit ihrem hinteren Körperende vermittelst eines Stiels an anderen Gegenständen festsitzt. Am freien Körperende, welches Fangfäden und Saugröhren trägt, bilden sich nicht selten 8–12 Knospen aus, welche zu einem nur das Centrum der freien Fläche freilassenden Kranz angeordnet sind. Der Kern ist hierbei in eigenthümlicher Weise betheiligt. Derselbe bildet, wie bei vielen Infusorien, solange die Podophrya noch jung und noch nicht in den Knospungsprocess eingetreten ist, die Form eines langen, hufeisenförmig gewundenen Bandes (Fig. 119 b). Später wachsen aus ihm zahlreiche Fortsätze in verticaler Richtung nach der freien Seite des Körpers hervor; sie schwellen mit ihren Enden bald kolbig an, während ihre Verbindung mit dem Haupttheil des Kerns sich meist zu einem feinen Faden verdünnt. Ueberall, wo die kolbigen Kernenden an die freie Fläche herantreten, bilden sich kleine Hügel, welche die Kernenden, wenn sie noch weiter vor wachsen, in sich aufnehmen, je ein Hügel ein kolbiges Kernende. Die ganze Knospe vergrössert sich hierauf noch etwas, schnürt sich am Ursprung vom Mutterorganismus etwas ein; der in sie hineingewachsene Kerntheil nimmt die Form eines Hufeisens an und löst sich dann von dem feinen Verbindungsfaden ab, durch den er mit dem mütterlichen Kern zusammenhing. Die Knospen sind jetzt reif und bewegen sich nach ihrer Abtrennung vom Mutterorganismus eine Zeit lang im Meerwasser als Schwärmer fort.
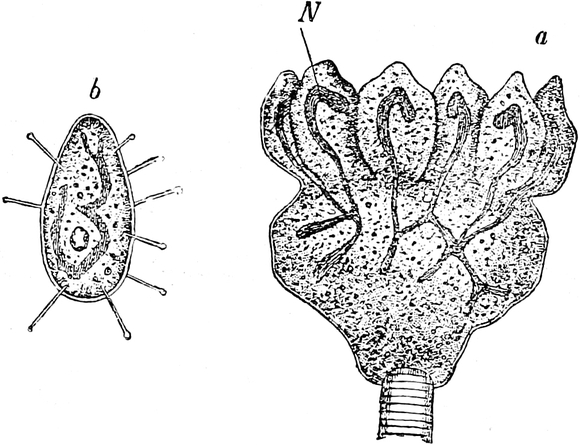
Fig. 119. Zellknospung. Podophrya gemmipara mit Knospen.
O. H
ERTWIG
, Zoologie Fig. 21.
a
Knospen, die sich ablösen und zum Schwärmer
b
werden,
N
Kern.
II. Partielle Theilung.
Die partielle Theilung kommt, von einigen Protozoen (Noctiluca) abgesehen, wohl nur bei Eizellen vor, sie lässt sich von der inäqualen ableiten und bildet sich in allen den Fällen aus, wo der Dottergehalt ein sehr grosser geworden ist und ein Theil des Protoplasma sich von ihm schärfer abgesondert und als Scheibe am animalen Pol angesammelt hat (Fig. 108). Der in der Scheibenmitte gelegene Kern muss, wenn er sich zur Spindel umwandelt, eine horizontale Lage einnehmen. Die erste Theilebene entsteht daher in verticaler Richtung und tritt zuerst, wie beim inäqual sich furchenden Ei (Fig. 92), am animalen Pol in der Mitte der Scheibe auf (Fig. 120 A, 121 A). Während sie aber dort allmählich in die Tiefe dringt und bis zum vegetativen Pol durchschneidet, zerlegt sie hier nur die Keimscheibe in zwei gleiche Segmente, welche wie zwei Knospen der ungeteilten Dottermasse mit breiter Basis aufsitzen und vermittelst derselben noch untereinander verbunden sind. Bald darauf erscheint eine zweite, verticale Furche, welche die erste unter rechtem Winkel kreuzt und gleichfalls auf die Keimscheibe beschränkt bleibt, die nun in vier Segmente zerlegt ist (Fig. 120 B, 121 B). Auch hier bildet sich eine Brechungslinie aus.
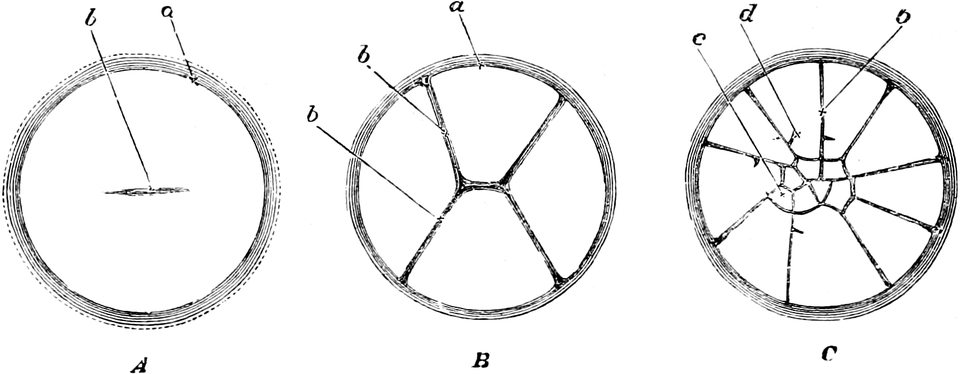
Fig. 120. Oberflächenansicht der ersten Furchungsstadien des Hühnereies
nach C
OSTE
.
a
Rand der Keimscheibe,
b
verticale Furche,
c
kleines centrales,
d
grosses peripheres Segment.
Jedes der vier Segmente wird dann wiederum von einer radialen Furche halbirt. Die so entstandenen Theilstücke entsprechen Kreisausschnitten, die im Centrum der Keimscheibe mit spitzen Enden zusammenstossen und mit ihren breiten Enden nach der Peripherie gewandt sind. Von jedem dieser Segmente wird die Spitze durch eine quere oder dem Aequator der Eikugel parallel gerichtete Furche abgetrennt, wodurch central gelegene, kleinere, jetzt allseitig vom Dotter isolirte und grössere, mit dem Dotter noch zusammenhängende, periphere Theilstücke entstehen (Fig. 120 c). Indem von nun an radiale und dem Aequator parallele Furchen alternirend auftreten, zerfällt die Keimscheibe in immer zahlreichere Stücke, welche so angeordnet sind, dass die kleineren im Centrum der Scheibe, die grösseren nach der Peripherie zu liegen (Fig. 121 c). Manche der mit dem Dotter verbundenen Segmente werden sich dabei in der Weise abschnüren, dass die Kernspindel sich in schräger oder verticaler Richtung einstellt, was zur Folge hat, dass bei der Theilung der eine Tochterkern in die Dottermasse zu liegen kommt. Auf diese Weise entstehen bei der partiellen Furchung die viel besprochenen Dotterkerne, welche in grösserer Anzahl namentlich an der Peripherie der abgefurchten Keimscheibe in die oberflächlichsten Dotterschichten eingebettet sind. Vergleiche auch die interessanten Beobachtungen von Rückert (VII. 36) und Oppel (VII. 34), aus denen hervorgeht, dass bei Selachiern und Reptilien Dotterkerne in Folge von Ueberfruchtung ihren Ursprung nehmen.
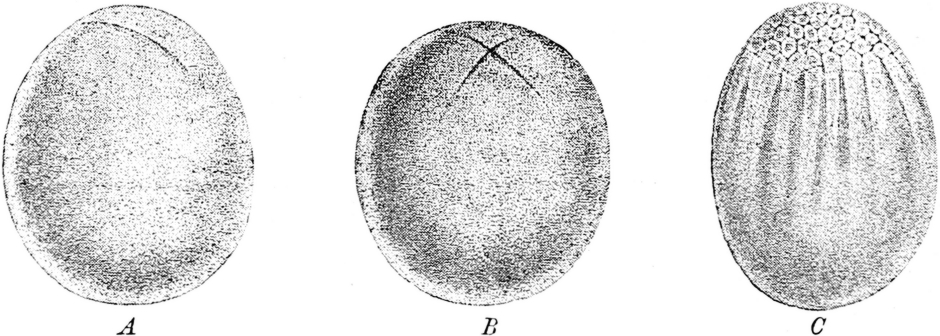
Fig. 121. Discoidale Furchung des Cephalopodeneies
nach W
ATASE
. Aus R. H
ERTWIG
Fig. 99.
III. Die Vielzellbildung.
Das Eigenthümliche der Vielzellbildung besteht darin, dass sich der Kern in einer Zelle mehrfach hintereinander theilt, während der Protoplasmakörper längere Zeit ungetheilt bleibt, ja nicht einmal die Neigung zu einer partiellen Zerlegung zeigt. Durch öfters sich wiederholende Zweitheilung kann die Anzahl der Kerne in dem einheitlichen Protoplasmakörper sich allmählich auf mehrere Hunderte belaufen. Diese ordnen sich dann in regelmässigen Abständen voneinander an. Endlich tritt eine Zeit ein, in welcher die vielkernige Mutterzelle auf einmal oder mehr allmählich in so viele Tochterzellen zerfällt, als sie Kerne einschliesst.
Vielzellbildung kommt bei Thieren und Pflanzen, namentlich bei der Entwicklung der Geschlechtsproducte, häufiger vor. Zur Veranschaulichung wähle ich drei Beispiele: die superficielle Furchung der centrolecithalen Eier von Arthropoden, die Bildung des Endosperms in dem Embryosack der Samenknospen von Phanerogamen und die Sporenbildung in den Sporangien der Saprolegnien.
Bei den Eiern der Arthropoden ist gewöhnlich die Dottermasse im Centrum des Eies angesammelt und von einer dünnen Rindenschicht von Protoplasma umgeben. Sie werden daher als centrolecithale Eier oder Eier mit mittelständigem Dotter den telolecithalen Eiern oder Eiern mit polständigem Dotter gegenüber gestellt (Balfour VI. 3). Der Furchungskern findet sich gewöhnlich, von einer Protoplasmahülle umgeben, in der Mitte des Nahrungsdotters; hier theilt er sich in zwei Tochterkerne, ohne dass eine Theilung der Eizelle auf dem Fusse folgt. Die Tochterkerne (Fig. 122 A) theilen sich wieder in 4, diese in 8, 16, 32 Kerne und so weiter, während das Ei als Ganzes immer noch ungetheilt bleibt. Später rücken die Kerne auseinander, wandern zum grössten Theil allmählich an die Oberfläche empor (Fig. 122 B) und dringen in die protoplasmatische Rindenschicht ein, wo sie sich in gleichmässigen Abständen voneinander anordnen. Jetzt erst erfolgt auch am Ei der Furchungsprocess, indem die Rindenschicht in so viele Zellen zerfällt, als Kerne in ihr liegen, während der centrale Dotter ungetheilt bleibt oder erst sehr viel später abgefurcht wird. Letzteres tritt ein, wenn er wie bei den Insecten, ähnlich den Eiern mit polständigem Dotter, einige Dotterkerne oder Merocyten einschliesst (Fig. 122 C).
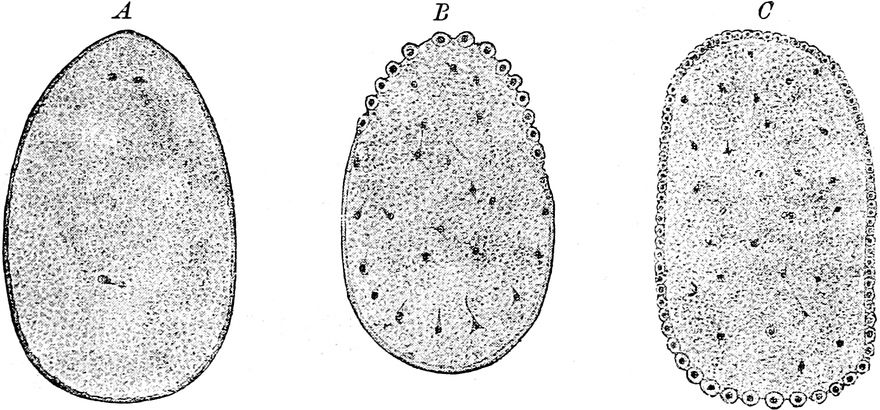
Fig. 122. Superficielle Furchung des Insecteneies (Pieris crataegi)
nach B
OBRETZKY
. Aus R. H
ERTWIG
Fig. 100.
A
Theilung des Furchungskerns.
B
Heraufrücken der Kerne zur Bildung der Keimhaut (Blastoderm).
C
Bildung der Keimhaut.
Der Embryosack der Phanerogamen wird von einem protoplasmatischen Wandbeleg ausgekleidet, der auf einem gewissen Entwicklungsstadium viele hundert regelmässig vertheilte Kerne einschliesst, die man früher durch freie Kernbildung wie die Krystalle aus einer Mutterlauge entstehen liess. Wir wissen jetzt, dass sie von einem Mutterkern durch oftmals wiederholte Zweitheilung, wie im Ei der Arthropoden, abstammen (Fig. 123). Die Theilungen spielen sich in einem Bezirk des Embryosackes ziemlich gleichzeitig ab. Hat es daher bei Anfertigung eines Präparates der Zufall glücklich gefügt, so kann man auf kleinem Raum gleich Hunderte von Theilungsstadien (Fig. 123) vor Augen haben.
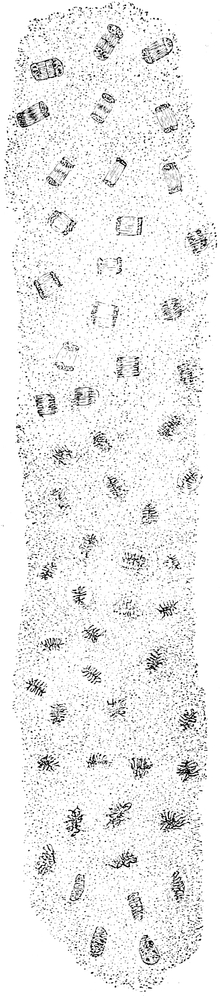
Fig. 123. Fritillaria imperialis. Protoplasmatischer Wandbeleg aus dem Embryosack. Ein Streifen alle Phasen der Kerntheilung zeigend.
Vergr. 90. Nach S
TRASBURGER
, Botan. Prakticum Fig. 190.
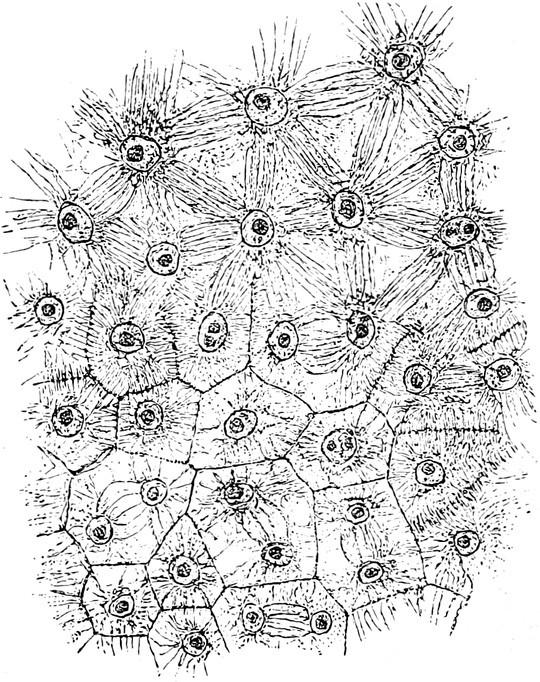
Fig. 124. Reseda odorata. Protoplasmatischer Wandbeleg des Embryosacks zu Beginn der freien Zellbildung.
Vergr. 240. Nach S
TRASBURGER
, Botan. Prakticum Fig. 192.
Wenn Kerne in genügend grosser Anzahl entstanden sind, so tritt ein Stadium ein, in welchem es zur Zellbildung im Wandbeleg kommt (Fig. 124). Zwischen den in regelmässigen Abständen vertheilten Kernen differenzirt sich das Protoplasma in radiäre Fäden. Es bilden sich nach allen Richtungen Verbindungsfäden aus, die sich in ihrer Mitte verdicken und eine Zellplatte erzeugen. In den Zellplatten entstehen in der früher geschilderten Weise leicht quellende Cellulosewände, durch welche um je einen Kern ein Theil des protoplasmatischen Wandbelegs zur Zelle abgekapselt wird. Zuweilen sind in einer Zelle zwei Kerne eingeschlossen, die dann entweder noch nachträglich durch eine Scheidewand getrennt werden, oder auch wie bei Corydalis cava zu einem einzigen Kern untereinander verschmelzen.
Das Sporangium der Saprolegnien ist Anfangs eine lange von Protoplasma erfüllte Zelle. In derselben werden zunächst die Kerne durch Zweitheilung, die meist gleichzeitig eintritt, beträchtlich vermehrt. Später vertheilen sie sich regelmässig im Zellraum. Um jeden Kern sondert sich die angrenzende Protoplasmapartie zu einem kleinen Klümpchen, welches sich auf seiner Oberfläche mit einer festen, glänzenden Hülle umgiebt, und so zerfällt der Zellinhalt gleichzeitig in so viel einzelne Sporen, als kleine Kerne vorher vorhanden waren. Dieselben werden später durch Platzen der Membran der Mutterzelle (des Sporangiums) nach Aussen entleert.
Die früher erwähnte Schwärmerbildung der Radiolarien (Seite 170) ist auch als ein besonderer Fall der Vielzellbildung zu betrachten.
IV. Die Reductionstheilung.
In die letzte Entwicklung der Ei- und Samenzellen greifen eigenthümliche Theilprocesse ein, welche den Zweck haben, die Geschlechtszellen für ihre Bestimmung vorzubereiten. Das Wesentliche derselben beruht darin, dass sich zwei eng zusammengehörige Theilungen unmittelbar aufeinander folgen und zwar so, dass sich an die erste gleich die zweite Theilung anschliesst, ehe noch der Kern in das Ruhestadium eingetreten ist. In Folge dessen werden die aus der ersten Theilung herrührenden Gruppen von Kernsegmenten sofort ohne vorausgegangene Längsspaltung abermals in zwei Tochtergruppen gesondert. Am Schluss der zweiten Theilung erhalten daher die reifen Ei- und Samenzellen nur halb so viel Kernsegmente und in Folge dessen auch nur halb so viel Nucleïnmasse als sonst die Kerne bei einer gewöhnlichen Zelltheilung desselben Thieres. (Hertwig VI. 34.) Dies Verhältniss soll durch den Namen Reductionstheilung (Weismann VI. 77) ausgedrückt werden.
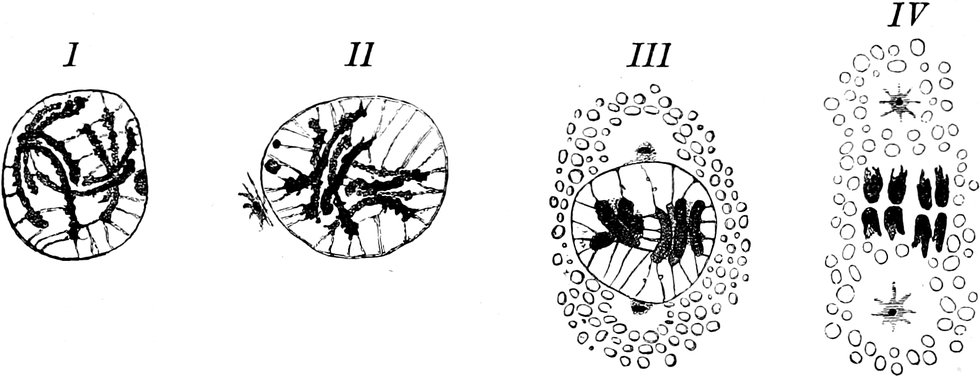
Fig. 125. Vier Kerne von Samenmutterzellen von Ascaris megalocephala bivalens auf verschiedenen Vorbereitungsstadien zur Theilung.
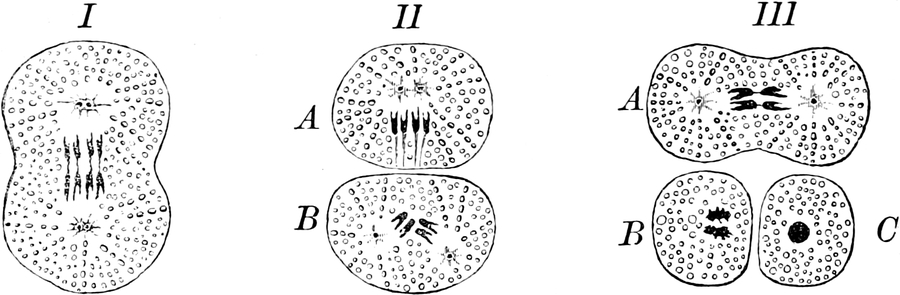
Fig. 126. Schema für die Entstehung der Samenzellen aus einer Samenmutterzelle von Ascaris megalocephala bivalens.
I
Theilung der Samenmutterzelle in zwei Samentochterzellen.
II
Die beiden Samentochterzellen (
A
u.
B
) bereiten sich gleich nach der ersten Theilung zu einer zweiten Theilung vor.
III
Die Samentochterzelle
A
theilt sich in zwei Samenenkelzellen.
B
und
C
sind Samenenkelzellen, welche durch Theilung der Samentochterzelle
B
der Fig.
II
hervorgegangen sind.
Die Reductionstheilung der Samen- und Eizellen lässt sich am klarsten bei Ascaris megalocephala verfolgen:
In der Hodenröhre wird eine bestimmte Zellenfolge mit dem Namen der Samenmutterzellen belegt. In dem grossen, bläschenförmigen Kern (Fig. 125 I) bilden sich aus der chromatischen Substanz (ich wähle zur Beschreibung Asc. megal. bivalens) acht lange Kernfäden, die in zwei Bündel angeordnet und mit der Kernmembran durch überallhin ausgespannte Lininfäden verbunden sind. Während der Nucleolus in einzelne Kügelchen zerfällt, erscheinen dicht an der Aussenfläche der Kernmembran zwei Polkörperchen nahe bei einander im Protoplasma, von einer kleinen Sphäre umgeben (Fig. 125 II). Die Segmente verkürzen sich und werden dicker (Fig. 125 II, III). Die Polkörperchen rücken weiter auseinander und sind schliesslich an entgegengesetzten Punkten des bläschenförmigen Kerns und zwar in einiger Entfernung von demselben anzutreffen. Zu dieser Zeit sind die Reste des Nucleolus geschwunden; die Kernmembran löst sich auf, die zwei Bündel von je vier Kernsegmenten ordnen sich im Aequator zwischen den Polkörperchen an und trennen sich darauf in zwei Tochterbündel von je zwei Kernsegmenten, die nach den Polen auseinander weichen (Fig. 125 IV, Fig. 126 I). Die Samenmutterzelle zerfällt hierauf durch Einschnürung in zwei gleich grosse Tochterzellen (Fig. 126 II). Während noch die Durchschnürung im Gange ist, beginnen schon die Veränderungen, die zur zweiten Theilung führen (Fig. 126 I). Das Polkörperchen jeder Tochterzelle spaltet sich in zwei Hälften, welche, von ihren besonderen Sphären umgeben, parallel zur ersten Theilungsebene nach entgegengesetzten Richtungen auseinander rücken (Fig. 126 II, A und B). Die von der ersten Theilung herrührenden Kernsegmente liefern mit Ueberspringung des bläschenförmigen Ruhezustandes gleich wieder das Material zur zweiten Theilung. Sie kommen durch Umlagerung zwischen die neuentstandenen Pole der zweiten Theilungsfigur zu liegen (Fig. 126 II, B) und trennen sich dann in zwei Gruppen von je zwei Kernsegmenten, die nach den Polen auseinander weichen, worauf die zweite Einschnürung beginnt (Fig. 126 III, A). Während bei der ersten Theilung jede Tochterzelle von den im ruhenden Kern schon vorgebildeten, acht Kernsegmenten deren vier erhält, bekommt jetzt jede Enkelzelle nur ihrer zwei. Denn im Laufe der ohne Ruhezustand sich folgenden zwei Theilungen hat eine Vermehrung der Kernsubstanz und eine Zunahme der Kernsegmente auf dem Wege der Längsspaltung nicht stattgefunden. In Folge dessen ist die Anzahl der Segmente durch die zweite Theilung auf die Hälfte der typischen Zahl herabgesetzt oder reducirt worden.
In genau derselben Weise vollzieht sich eine Reductionstheilung beim Reifeprocess des Eies von Ascaris megalocephala.
Der Samenmutterzelle entspricht das unreife Ei oder die Eimutterzelle. Auch hier entstehen im Keimbläschen acht in zwei Bündeln angeordnete Kernsegmente (Fig. 127 I). Nach Auflösung der Kernmembran ordnen sie sich im Aequator der ersten Richtungsspindel an, die zur Oberfläche des Dotters emporsteigt (Fig. 127 II) und in früher beschriebener Weise (Seite 184) die erste Polzelle bildet. Dieser Process ist der Theilung der Samenmutterzelle in zwei Tochterzellen vergleichbar. Wie dort (Fig. 126 I) erhält von den zwei Bündeln von je vier Segmenten ein jedes der beiden hier ungleich grossen Theilproducte, (Fig. 127 III) die Ei-Tochterzelle und die durch Knospung entstandene Polzelle, zwei Tochterbündel von je zwei Segmenten. Auch hier folgt mit Ueberspringung des Ruhestadiums gleich eine zweite Theilung. Aus dem Material der in der Ei-Tochterzelle zurückgebliebenen, halben Spindel bildet sich direkt eine zweite volle Spindel aus mit nur vier paarweise verbundenen Segmenten. Aus der zweiten Knospung entsteht die zweite Polzelle (Fig. 127 IV) und die Ei-Enkelzelle oder das reife Ei, ein jedes Theilproduct mit nur zwei Kernsegmenten.
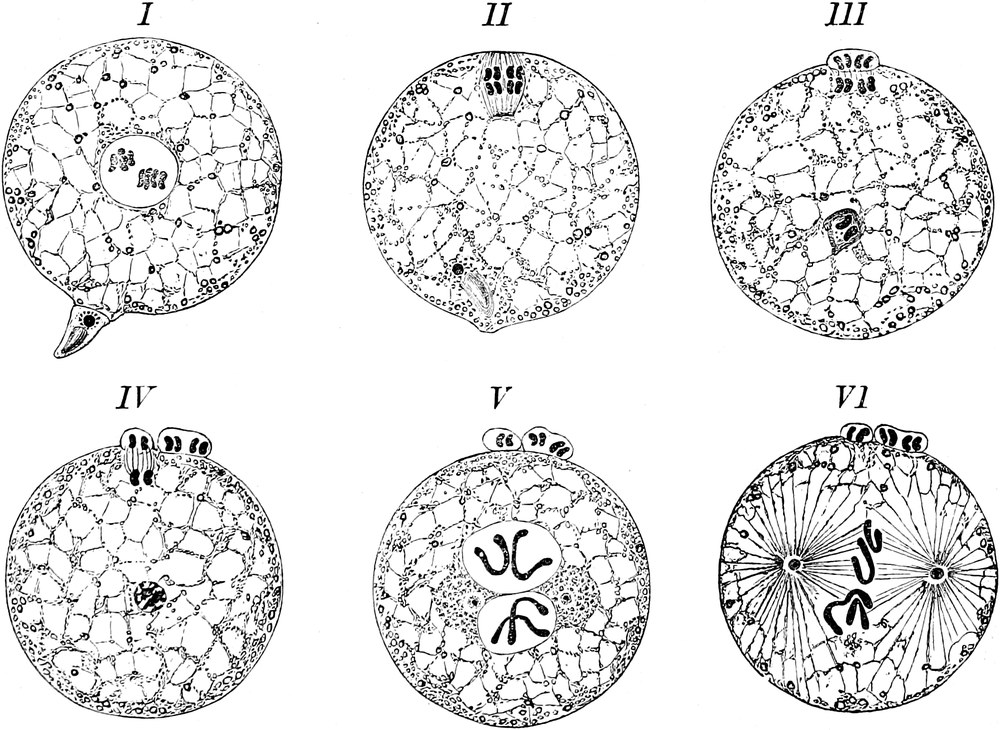
Fig. 127. Schema für die Bildung der Polzellen und die Befruchtung des Eies von Ascaris megalocephala bivalens.
Abgesehen davon, dass die Theilproducte bei der Eireife von so ungleicher Grösse sind (Knospung), gleichen die Vorgänge den oben beschriebenen Theilungsprocessen bei der Samenbildung so vollständig, dass durch sie Licht auf die Bedeutung der Polzellen geworfen wird. Während aus einer Samenmutterzelle (Fig. 126 I) sich vier Samenzellen entwickeln (Fig. 126 III, A B C), entstehen aus einer Eimutterzelle (Fig. 127 I) ein befruchtungsfähiges Ei (Fig. 127 V) und drei Abortiveier. Diese haben sich in rudimentärem Zustande erhalten, weil sie bei der physiologisch wichtigen Reductionstheilung eine Rolle spielen.
Aehnliche Verhältnisse, wie bei den Nematoden, aus welchen hervorgeht, dass die reifen Geschlechtsproducte nur halb so viel Kernsegmente besitzen als die Gewebszellen des betreffenden Organismus, sind noch für viele andere Objecte festgestellt worden: so von Boveri (VI. 6) für die reifen Eizellen von Thieren, welche den verschiedensten Klassen des Thierreichs angehören, von Flemming (VI. 13 II), Platner (VI. 52), Henking (VI. 27), Ishikawa (VI. 40), Häcker (VI. 24), vom Rath (VI. 55) für die reifen Samenzellen von Salamandra, Gryllotalpa, Pyrrhocoris, Cyclops etc., von Guignard (VI. 23b) für die bei der Befruchtung in Verwendung kommenden Kerne der Pollenzellen und für den Kern der reifen Eizelle der Phanerogamen.
Auch bei Infusorien findet vor der Befruchtung eine Reduction von Kernsubstanz nach den Untersuchungen von Maupas (VII. 30) und Richard Hertwig (VII. 21) statt, worüber noch einige nähere Angaben in Capitel VII, Seite 216 folgen werden.
In allen hier beschriebenen Fällen geschieht die Reduction der Kernsubstanz vor der Befruchtung der Eizelle durch die Samenzelle. Es scheint nun aber auch die Reduction der Kernmasse, was ja a priori recht gut möglich ist, erst nach der Befruchtung durch die ersten Kerntheilungen erfolgen zu können. In dieser Weise möchte ich wenigstens die so interessanten Beobachtungen deuten, welche Klebahn (VI. 43) bei zwei Vertretern der niederen Algen-Gattung der Desmidiaceen, bei Closterium und Cosmarium, gemacht hat. Eine genauere Darstellung wird erst im Capitel „Befruchtungsprocess“ (Seite 224) gegeben werden, auf welches hiermit der Leser hingewiesen wird.
IV. Beeinflussung der Zelltheilung durch äussere Factoren. Abnorme Kerntheilungsfiguren. Kerndegenerationen.
Das complicirte Kräftespiel, das sich dem Beobachter bei jeder Zelltheilung darbietet, kann ebenso wie das früher studirte Phänomen der Protoplasmabewegung durch äussere Factoren in auffälliger Weise beeinflusst werden. Nur werden hier aus naheliegenden Gründen die Verhältnisse verwickelter als bei der Protoplasmabewegung, weil stofflich verschiedene Theile, Protoplasma, Kernsegmente, Spindelfasern, Polkörperchen von der Störung betroffen und in sehr verschiedenartiger Weise abgeändert werden können. — Das ganze Gebiet ist noch wenig experimentell in Angriff genommen. Wenn wir die Frage aufwerfen, wie verhalten sich die einzelnen Stadien des Kerntheilungsprocesses thermischen, mechanischen, elektrischen und chemischen Reizen gegenüber, so können wir nur eine sehr unbefriedigende Antwort darauf geben. Die zusammenhängendsten Untersuchungen besitzen wir zur Zeit über Echinodermen-Eier, deren Verhalten gegen thermische und chemische Reize während der Theilung einer Prüfung unterworfen wurde.
Was zunächst die thermischen Einflüsse betrifft, so ist im Allgemeinen bekannt, dass je nach dem Grade der Temperatur die Zelltheilung langsamer oder rascher verläuft; wo aber das Temperaturoptimum, wo das Minimum liegt, und welche Veränderungen Temperaturen, die über das Optimum hinausgehen, an den Kernfiguren hervorrufen, muss durch Experimente genauer festgestellt werden. Ueber den Einfluss von Kältegraden von 1 bis 4 Grad Celsius habe ich selbst (VI. 32, 33) eine Reihe von Experimenten ausgeführt:
Wenn Echinodermen-Eier 15 bis 30 Minuten lang auf 1 bis 4 Grad Celsius unter 0 abgekühlt werden, während sie sich auf charakteristischen Theilungsstadien befinden, so wird binnen wenigen Minuten der ganze achromatische Theil der Kernfigur rückgebildet und vernichtet, während der chromatische, aus den Kernsegmenten bestehende Theil keine oder nur geringfügige Veränderungen erfährt. Am lehrreichsten sind die Stadien, auf denen die Kernsegmente im Aequator angeordnet (Fig. 128 A) oder schon nach beiden Polen vertheilt sind. Wie Figur 128 B lehrt, sind die Protoplasmastrahlungen und ebenso die Spindelfasern spurlos verschwunden; die Sphären in der Umgebung der Polkörperchen sind noch durch hellere Stellen im Dotter bezeichnet. Die Kernsegmente allein sind nach Aussehen und Lage ganz unverändert geblieben.
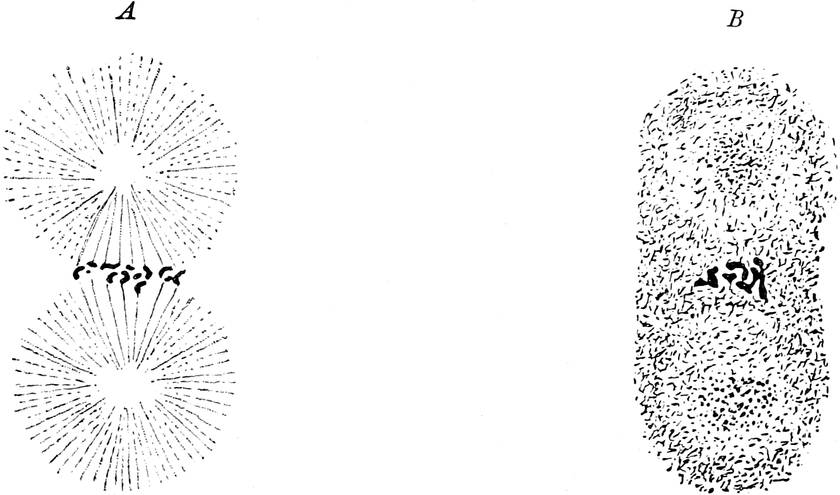
Fig. 128.
A
Kernfigur eines Eies von Strongylocentrotus 1 Stunde 20 Minuten nach der Befruchtung.
B
Kernfigur eines Eies von Strongylocentrotus, welches 1½ Stunden nach Vornahme der Befruchtung 2 Stunden 15 Minuten in eine Kältemischung von −2 °C. gebracht und dann getödtet wurde.
Während der Dauer der Kältewirkung bleibt die Kernfigur in diesem Zustand fest gebannt; die Starre beginnt aber in kürzester Zeit zu schwinden, wenn die Eier in einem Tropfen Wasser auf einen Objectträger gebracht und unter dem Einfluss der Zimmertemperatur allmählich erwärmt werden. Schon nach 5 bis 10 Minuten bilden sich die beiden Polstrahlungen an denselben Stellen, erst schwach, dann in ursprünglicher Schärfe wieder aus; zwischen den beiden Polen treten wieder die Spindelfasern hervor, worauf es bald zur regelrechten Theilung kommt. In diesen Fällen hat die Kälte nur als Hemmung gewirkt. Der Theilungsprocess setzt einfach an dem Punkte wieder ein, an welchem er durch die Kälte zum Stillstand gebracht worden war.
Intensivere Störungen werden durch 2- bis 3stündige Abkühlung auf 2 bis 3 Grad Celsius unter 0 hervorgerufen. Die ganze Kernfigur wird von Grund aus umgeändert und muss sich, wenn die Kältestarre vorüber ist, wieder von Anfang an neu aufbauen, wozu eine längere Zeit der Erholung erforderlich ist. Entweder verschmelzen die Kernsegmente zu einem unregelmässigen, gezackten Körper untereinander, oder es bildet sich sogar aus ihnen wieder, wie bei dem Reconstructionsprocess nach der Theilung, ein kleiner bläschenförmiger Kern. Dann beginnen von Neuem Veränderungen, welche zur Entstehung von Polstrahlungen und von häufig mehr oder minder abnorm gestalteten Kerntheilungsfiguren führen. Auch die Theilung des Eikörpers erfolgt nicht nur sehr verspätet, sondern ist oft pathologisch abgeändert.
In analoger Weise wie die Kälte, haben einige chemische Stoffe (Chinium sulfuricum in 0,05%iger Lösung und 0,5% Chloralhydrat) eine überraschende Wirkung auf den Theilungsprocess. Werden Eier, welche die Spindel gebildet haben und äquatoriale Anordnung der Kernsegmente zeigen, 5 bis 10 Minuten der Einwirkung der oben genannten Stoffe ausgesetzt, so beginnen bald die Polstrahlungen vollkommen zu verschwinden, entstehen aber nach einiger Zeit der Ruhe wieder von Neuem, worauf es zu normaler Theilung kommt. Bei einer Einwirkung der Stoffe während 10 bis 20 Minuten jedoch wird die Störung eine tiefer greifende und führt in vielen Fällen einen sehr eigenthümlichen und in seiner Art typischen Verlauf des Theilungsprocesses herbei. Nicht nur die Polstrahlungen und die Spindelfasern werden vollkommen zurückgebildet, sondern es geht auch aus den Kernsegmenten in langsamer Umwandlung der bläschenförmige Ruhezustand des Kerns wieder hervor (Fig. 129 A). Derselbe giebt bald den Ausgangspunkt für eine neue, jetzt aber wesentlich modificirte Theilung ab (O. und R. Hertwig VI. 38).
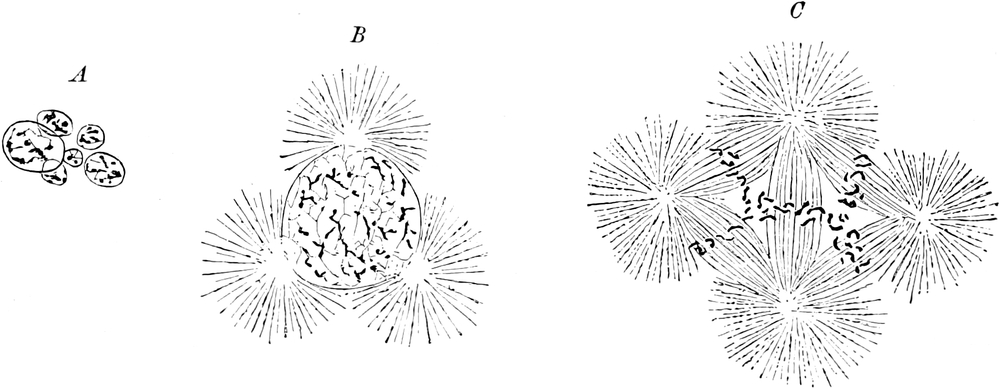
Fig. 129. Kerne von Eiern von Strongylocentrotus, welche 1½ Stunden nach Vornahme der Befruchtung 20 Minuten in einer 0,025procentigen Chininlösung gelegen haben.
A
Kernfigur eines Eies, das
eine
Stunde nach Herausnahme aus der Chininlösung abgetödtet wurde.
B
Kernfigur eines Eies, das etwas später abgetödtet wurde.
C
Kernfigur eines Eies, das 2 Stunden nach Herausnahme aus der Chininlösung abgetödtet wurde.
Anstatt zweier, bilden sich gleich vier Strahlungen an der Oberfläche der Kernblase aus (Fig. 129 B, in welcher eine Strahlung verdeckt ist). Diese werden nach Behandlung mit Chinin bald scharf ausgeprägt, bleiben dagegen nach Chloralbehandlung auf die Dauer matt und auf die nächste Umgebung des Kerns beschränkt. Hierauf löst sich die Kernmembran auf; zwischen den vier Polen entwickeln sich fünf Spindeln, auf welche sich die Kernsegmente in äquatorialer Anordnung vertheilen und dabei eine charakteristische Figur erzeugen (Fig. 129 C). Dann weichen die Kernsegmente nach den vier Polen auseinander und geben die Grundlage für vier bläschenförmige Kerne ab, welche nach der Oberfläche des Dotters auseinander rücken. Das Ei beginnt sich darauf durch zwei Kreuzfurchen den Kernen entsprechend in vier Lappen einzuschnüren; in der Regel kommt es aber nicht zu einer vollständigen Theilung in vier Stücke, sondern zuvor schicken sich die vier Kerne wieder zu einer neuen Theilung an, indem sie sich in Spindeln mit zwei Polstrahlungen umwandeln. Dabei vertiefen sich die eben erwähnten Einschnürungen langsam, und jede Spindel kommt in einen Höcker oder eine Knospe zu liegen. Entweder wird die Trennung jetzt schon eine ziemlich vollständige, oder es treten, noch ehe die Furchen weit in den Dotter eingeschnitten haben, die vier Spindeln, indem die Kernsegmente nach den Polen auseinanderweichen, zuvor in Theilung ein. Dies hat dann wieder zur Folge, dass sich die vier ersten Höcker, noch ehe sie voneinander getrennt sind, abermals einzuschnüren beginnen (Knospenfurchung).
Das Auffälligste bei den beschriebenen Erscheinungen ist das plötzliche Auftreten von vier Polstrahlungen, denen nach Allem, was wir wissen, ebenso viele Polkörperchen zu Grunde liegen müssen. Eine Erklärung hierfür bietet sich in den Vorgängen, welche sich an die Befruchtung des Echinodermen-Eies anschliessen und welche ihre Besprechung auf Seite 209 finden, auf welche hiermit verwiesen wird.
Modificationen von der in Figur 129 C. dargestellten Form der Kernumwandlung kommen nicht selten vor; sie bestehen darin, dass eine Strahlung von den drei übrigen etwas weiter entfernt liegt (Fig. 130). In diesem Fall sind nur die drei näher zusammen gelegenen Strahlungen durch drei Spindeln zu einem Triaster vereinigt. Im Mittelpunkt des so gebildeten gleichschenkligen Dreiecks stossen drei Kernplatten zusammen, wieder eine regelmässige Figur erzeugend. Die vierte abseits liegende Strahlung verbindet sich durch eine einzige Spindel mit der nächsten Strahlung des Triasters.
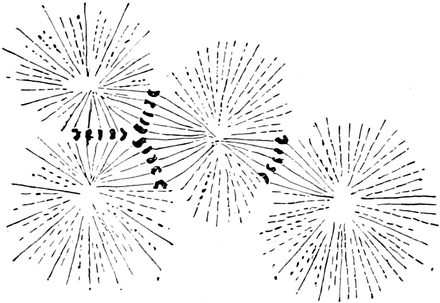
Fig. 130
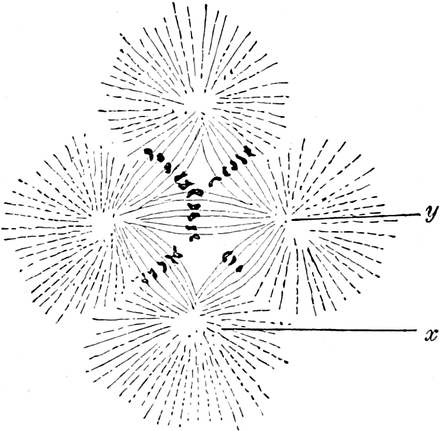
Fig. 131
Fig. 130 u. 131. Vierpolige Kernfiguren von Eiern von Strongylocentrotus, die 1½ Stunden nach Vornahme der Befruchtung 20 Minuten in einer 0,05procentigen Chininlösung gelegen haben und nach Herausnahme aus der Chininlösung nach 2 Stunden getödtet worden sind.
Als ein Uebergang zwischen den Figur 129 und 130 lässt sich wohl Figur 131 betrachten. Hier gehen von der mehr isolirt gelegenen Strahlung x zwei Spindeln nach dem übrigen Theil der Kernfigur, welche einen Triaster darstellt. Von den beiden Spindeln ist die eine nur schwach und unvollständig ausgebildet und fällt sofort durch die geringe Anzahl ihrer Kernsegmente auf. Sie würde wahrscheinlich gar nicht zur Anlage gelangt sein, wenn die Strahlung x noch etwas weiter von der Strahlung y entfernt wäre.
Drei-, vier- und mehrpolige Kerntheilungsfiguren (Triaster, Tetraster, Polyaster, pluripolare Mitosen) sind auch in krankhaft veränderten Geweben von pathologischen Anatomen, Arnold, Hansemann, Schottländer, Cornil, Denys etc. (VI. 1, 10, 11, 25, 67), häufig beobachtet worden, besonders häufig in bösartigen Geschwülsten, wie in den Carcinomen. Sie gleichen in auffallender Weise den an Eizellen experimentell erzeugten und in den Figuren 129 bis 131 abgebildeten Kernfiguren. Wahrscheinlich ist auch hier die Ursache für die abnormen Erscheinungen in chemischen Reizen zu suchen. So konnte Schottländer (VI. 67) pathologische Kerntheilungen im Endothel der Descemet’schen Membran dadurch hervorrufen, dass er die Hornhaut des Froschauges mit Chlorzinklösung von bestimmter Concentration anätzte und so in Entzündung versetzte. Bemerkenswerth ist das veränderliche Zahlenverhältniss der Kernsegmente in den einzelnen Spindeln. Denn während in einigen Spindeln zwölf Segmente, wurden in anderen nur sechs oder sogar nur drei von Schottländer aufgefunden. Dieselbe Erscheinung wurde bei den Echinodermen-Eiern beobachtet.
Mehrpolige Kerntheilungsfiguren können übrigens wahrscheinlich noch durch andere Ursachen, von denen uns zur Zeit die wenigsten bekannt sind, veranlasst werden. Eine häufige Ursache ist zum Beispiel das Vorkommen vieler Kerne in einer Zelle. Man kann leicht einen solchen Zustand auf experimentellem Wege willkürlich hervorrufen, wenn man Eizellen durch irgend welche geeignete Eingriffe schädigt und dann befruchtet (Fol VI. 19b, Hertwig VI. 30a 32, 33, 38). Anstatt eines einzigen Samenfadens, wie es bei der normalen Befruchtung die Regel ist, dringen dann zwei, drei und mehr in den Dotter hinein. Die Folge einer derartigen Ueberfruchtung (Polyspermie) ist die Ausbildung vieler, der Zahl der eingedrungenen Samenfäden entsprechender Samenkerne. Dieselben legen sich zum Theil dem Eikern an, und da jeder von ihnen ein Centralkörperchen mit in das Ei hineingebracht hat, entstehen um den Eikern entsprechend viele Polstrahlungen. Und so wandelt sich, je nach der Zahl der Samenfäden, der Eikern in eine drei-, vier- und mehrstrahlige Kerntheilungsfigur um.
Auch die nicht mit dem Eikern verbundenen, sondern bei der Ueberfruchtung im Dotter isolirt gebliebenen Samenkerne werden sehr häufig der Ausgang eigenthümlicher, mehrpoliger Kernfiguren. Zunächst werden sie zu kleinen Samenspindeln. Benachbarte Spindeln rücken dann häufig zusammen der Art, dass zwei Polstrahlungen und mithin wohl auch die in ihnen gelegenen Polkörperchen zu einem einzigen verschmelzen. Auf diese Weise können durch allmählich erfolgende Verschmelzungen, namentlich bei höheren Graden der Ueberfruchtung, die verschiedenartigsten Spindelaggregate zu Stande kommen. Auch die vom mehrfach befruchteten Eikern ausgehende, vielstrahlige Figur kann nachträglich durch Anlagerung von Samenspindeln noch eine complicirtere Structur erhalten.
In ähnlicher Weise erkläre ich mir die interessanten Befunde, welche an den Riesenzellen des Knochenmarks von Denys und an den Riesenzellen der embryonalen Säugethierleber von Kostanecki (VI. 46) beobachtet worden sind. Im Verhältniss zu den zahlreichen Kernen werden auch viele Centralkörperchen in der Zelle enthalten sein. Wenn daher das ganze Kernaggregat in Theilung eintritt, werden sich viele Polstrahlungen entwickeln müssen, zwischen denen sich dann die Kernsegmente, deren Zahl unter Umständen mehrere hundert betragen kann, zu eigenthümlich verzweigten Kernplatten anordnen, wie eine solche in Figur 132 nach Kostanecki abgebildet worden ist. Wenn sich später die Muttersegmente in Tochtersegmente spalten, wandern letztere gruppenweise nach den einzelnen Polen der complicirten Kerntheilungsfigur und bilden dort zahlreiche, kleine Kreise (Fig. 133). Aus jedem Kreis wird weiterhin ein Kern; zuletzt theilt sich die Riesenzelle in so viele Stücke als Kerne, resp. Kreise von Tochtersegmenten, vorhanden waren.
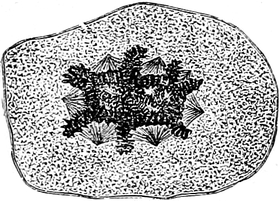
Fig. 132.
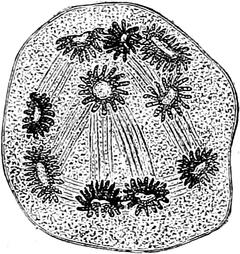
Fig. 133.
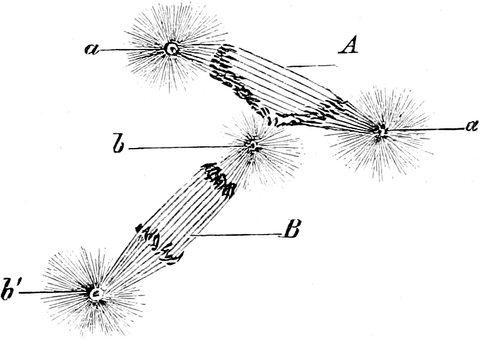
Fig. 134.
Fig. 132. Vielpolige Kerntheilungsfigur mit vielen Gruppen von Muttersegmenten aus einer Riesenzelle der embryonalen Säugethierleber. Nach KOSTANECKI.
Fig. 133. Vielpolige Kerntheilungsfigur einer Riesenzelle aus der embryonalen Säugethierleber. Die Tochtersegmente bilden viele Gruppen, die nach den zahlreichen Polen zu auseinander gerückt sind. Nach KOSTANECKI.
Fig. 134. Zwei Kernspindeln aus dem Dotter einer Forellenkeimscheibe. Das Polkörperchen der einen Spindel übt einen störenden Einfluss auf die Anordnung und Vertheilung der Tochtersegmente in der zweiten Spindel aus. Nach HENNEGUY.
In dieselbe Reihe gehören die von Henneguy (VI. 28) am Forellenei gemachten Beobachtungen. Bekanntlich sind bei partiell sich furchenden Eiern zahlreiche Kerne, die Merocyten, in der Dotterschicht, welche unter den Keimzellen liegt, zerstreut. Zuweilen treten einige von ihnen, indem sie sich zur Theilung gleichzeitig vorbereiten, zu kleinen Spindelaggregaten zusammen. Dafür, dass die Pole hierbei als Attractionscentren wirken, ist sehr lehrreich der folgende von Henneguy mitgetheilte Fall (Fig. 134): Zwei in Theilung begriffene Merocyten liegen in der gemeinsamen Dottermasse dicht bei einander und zwar so, dass die Spindelaxe von B in ihrer Verlängerung die Spindel A im Aequator schneiden würde und dass das eine Polkörperchen b sich in grosser Nähe von Spindel A befindet. Dadurch ist bei der letzteren die Vertheilung der Tochtersegmente in ganz auffälliger Weise gestört worden. Anstatt in zwei Gruppen nach den Polen a a, wie bei normalem Verlauf, auseinander zu weichen, hat sich eine Anzahl von ihnen, welche sich am meisten in der Wirkungssphäre des Polkörperchens b der nahegelegenen, fremden Spindel befunden hat, nach b begeben. Mit einem Wort: das Polkörperchen der einen Spindel hat ganz offenbar einen störenden Einfluss auf die Anordnung und Vertheilung der Tochtersegmente in der zweiten Spindel ausgeübt.
An demselben Object hat Henneguy in Keimzellen, die sich von der Merocytenschicht nachträglich abtrennen, auch Triaster, wie ein solcher in Figur 135 abgebildet ist, und Tetraster wahrgenommen.
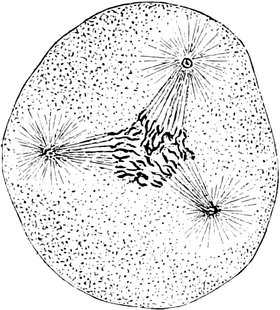
Fig. 135.
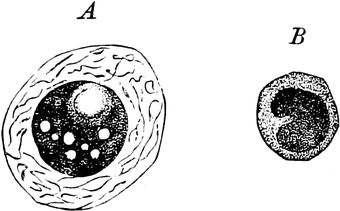
Fig. 136.
Fig. 135. Zelle mit einer dreipoligen Kernfigur aus einem Forellenkeim. Nach HENNEGUY.
Fig. 136. A Samenzelle mit entartetem Kern aus dem Hoden von Salamandra maculata. Aus FLEMMING Taf. 25, Fig. 51a.
B Zwischenkörperchen (corps résiduel) aus dem Hoden von Ascaris megalocephala. Kernrückbildung.
Am Schluss des vierten Abschnitts sei endlich noch auf Degenerationsvorgänge hingewiesen, denen zuweilen die Zellkerne unterliegen, wahrscheinlich, weil sie sich unter schädlichen Einflüssen befinden. Namentlich in den Geschlechtsorganen scheinen sich häufig einzelne Keimzellen oder Gruppen von solchen, ehe sie die volle Reife erlangt haben, zurückzubilden, wie von Flemming und Hermann für Salamandra maculata, von mir für Ascaris megalocephala festgestellt worden ist. An den Kernen geht das Gerüst zu Grunde. Das Nucleïn sammelt sich zu einem compacten Klumpen an, der sich durch eine auffallend starke Färbbarkeit in den verschiedensten Farbstoffen auszeichnet. Das Protoplasma nimmt im Verhältniss zu entsprechenden normalen Keimzellen an Masse ab. Derartig verkümmerte Zellen mit ganz desorganisirten Kernen sind in Figur 136 abgebildet. A ist eine Samenzelle aus einem Hodenfollikel von Salamandra, B eine Keimzelle von Ascaris, wie sie sowohl im Hoden als im Eierstock vorgefunden wird und in der Literatur unter dem Namen corps résiduel oder Zwischenkörperchen bekannt ist. Wasielewski hat durch Injection von Terpentin in den Hoden von Säugethieren die Kerne von Keimzellen in einen entsprechenden Zustand der Degeneration auf experimentellem Wege versetzen können.
Ueber die physiologische Bedeutung des Kerntheilungsprocesses vergleiche Capitel IX, Abschnitt 3, besonders den Theil: Die gleichwerthige Vertheilung der sich vermehrenden Erbmassen auf die aus dem befruchteten Ei hervorgehenden Zellen.
Literatur. VI.
2b) Derselbe. Zur Kenntniss der thierischen Zellen. Sitzungsber. d. kgl. preuss. Akademie der Wissenschaften zu Berlin. 1890.
5) Born. Ueber den Einfluss der Schwere auf das Froschei. Archiv für mikroskop. Anatomie. Bd. XXIV.
9) Carnoy. Siehe Literatur IV.
15) Derselbe. Ueber Theilung und Kernformen bei Leukocyten u. über deren Attractionssphären. Archiv f. mikrosk. Anatomie. Bd. XXXVII. 1891. pag. 249.
21) Frenzel. Die nucleoläre Kernhalbirung etc. Archiv für mikroskop. Anatomie. Bd. XXXIX. 1892.
26) Derselbe. Ueber asymmetrische Zelltheilung in Epithelkrebsen und deren biologische Bedeutung. Virchow’s Archiv. Bd. CXIX.
37) Derselbe. Ueber den Bau und die Entwicklung der Spirogona gemmipara. Jenaische Zeitschrift. Bd. XI. 1877.
42) Johow. Die Zellkerne von Chara foetida. Botanische Zeitung. 1881.
51) Platner. Die Karyokinese bei den Lepidopteren als Grundlage für eine Theorie der Zelltheilung. Internationale Monatsschrift. Bd. III. 1885.
57) Derselbe. Thier u. Pflanze. Akademisches Programm. Zoolog. Anzeiger. 1881.
62) Retzius. Studien über die Zellentheilung. Biolog. Untersuchungen. Jahrgang 1881.
63) Roux. Ueber die Bedeutung der Kerntheilungsfiguren. Leipzig 1883.
69) Derselbe. Untersuchungen über die Reifung und Befruchtung des Amphibieneies. Zeitschrift f. wissenschaftl. Zoologie. Bd. XLV. 1887.
74) Vejdovsky. Entwicklungsgeschichtliche Untersuchungen. Prag 1888.
75) Vialleton. Recherches sur les premières phases du développement de la seiche. Paris 1888.
78) R. Zander. Ueber den gegenwärtigen Stand der Lehre von der Zelltheilung. Biolog. Centralblatt. Bd. XII. 1892.
79) H. E. Ziegler. Die biologische Bedeutung der amitotischen Kerntheilung im Thierreich. Biolog. Centralblatt. Bd. XI. 1891.
80) Ziegler u. vom Rath. Die amitotische Kerntheilung bei den Arthropoden. Biolog. Centralblatt. Bd. XI. 1891.