5. Klasse. Mammalia. Säugetiere.[116] (Bearbeitet von M. Schlosser.)
Reading edition
5. Klasse. Mammalia. Säugetiere.[116] (Bearbeitet von M. Schlosser.)
Warmblütige, meist behaarte, seltener nackte oder mit knöchernen Platten oder hornigen Schuppen bedeckte Land- und Wassertiere mit ausschließlicher Lungenatmung. Herz mit doppelter Kammer und doppelter Vorkammer. Hinterhaupt mit zwei Gelenkköpfen. Coracoid (fast immer) verkümmert und mit der Scapula verschmolzen. Jeder Unterkieferast aus einem Stück bestehend und mit dem Schläfenbein artikulierend. Gliedmaßen als Gehfüße, seltener als Hände oder Flossen ausgebildet.
Die Säugetiere nehmen unter den Vertebraten die höchste Rangstufe ein. Ihre Funktionen sind spezialisierter, ihr Nervensystem, ihre Sinnesorgane entwickelter, ihr Gebiß und ihre Bewegungsorgane verschiedenartiger differenziert als in irgend einer anderen Tierklasse. Auch an Größe und Mannigfaltigkeit der äußeren Erscheinung können sich nur die Reptilien und Fische mit den Säugetieren messen. Mit einziger Ausnahme der Monotremen gebären die Säugetiere lebendige Junge; die Embryonen sind von einem Amnion umgeben, mit Allantois versehen und besitzen keine äußeren Kiemen. Die Jungen werden nach der Geburt mehr oder weniger lang durch in Milchdrüsen (Mammae) der Mutter abgesonderte Milch ernährt. Das Herz ist in zwei Kammern und zwei Vorkammern abgeteilt, das Blut warm.
Die Wirbelsäule der Säugetiere besteht aus Hals-, Rücken-, Lenden-, Sacral- und Schwanzwirbeln; ein besonderer Sacralabschnitt fehlt nur den Cetaceen und Sirenen. Die Verbindung der Wirbel wird nicht durch Gelenke bewerkstelligt, wie bei Vögeln und Reptilien, sondern durch zwischengelagerte elastische Knorpelscheiben; es sind darum auch die vorderen und hinteren Flächen der Wirbelzentren eben; nur die Halswirbel vieler Huftiere zeigen opisthocöle Gelenkverbindung. Die oberen Dornfortsätze haben in der Rücken- und Lendenregion ihre stärkste Entwicklung, verkümmern dagegen häufig in der Hals- und Schwanzregion. Die Bögen verwachsen frühzeitig mit dem Zentrum; dagegen bilden sich am vorderen und hinteren Ende des Wirbelkörpers durch selbständige Verknöcherung besondere dünne Knochenscheiben (Epiphysen) aus, welche später mit dem Zentrum verschmelzen.
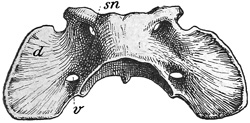
Fig. 472.
Erster Halswirbel (Atlas) vom Hund (von oben). d verbreiterter Querfortsatz, v Arterienkanal, sn Nervenkanal.
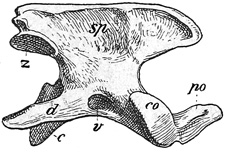
Fig. 473.
Zweiter Halswirbel vom Hund (von d. Seite). sp Spina dorsalis, c Zentrum, d Diapophyse, z Postzygapophyse, v Arterienkanal, sn Nervenkanal, po processus odontoideus, co Gelenkfasette für den Atlas.
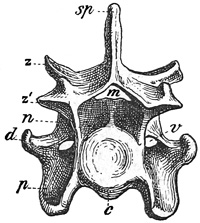
Fig. 474.
Sechster Halswirbel vom Hund (von hinten). c Zentrum, sp Spina dorsalis, n oberer Bogen, d Diapophyse, p Parapophyse mit der nach unten verlängerten Lamina, v Arterienkanal, m Rückenmark-(Medullar-) Kanal, z vordere, z' hintere Zygapophyse.
Der Hals besteht fast regelmäßig aus 7 Wirbeln. Die Länge des Halses wird also nicht, wie bei den Reptilien und Vögeln durch die Zahl, sondern durch die Streckung der einzelnen Wirbel bedingt. Durch Verbindung der nach abwärts gebogenen Enden der vom oberen Bogen ausgehenden Diapophysen (d) mit den vom Zentrum entspringenden Parapophysen (p) entsteht jederseits vom Zentrum ein Loch (v), durch welches die Halsarterie verläuft. Der erste Halswirbel oder Atlas (Fig. 472) zeichnet sich durch den Mangel des Zentrums und Dornfortsatzes, sowie durch starke Verbreiterung seiner Querfortsätze aus, an deren Basis sich vorne die beiden konkaven Gelenkflächen für die Gelenkköpfe des Hinterhaupts und hinten die Gelenkfasetten für den zweiten Halswirbel oder Epistropheus (Axis) befinden. Dieser (Fig. 473) hat am vorderen Ende seines Zentrums einen starken, bald konischen, bald halbzylindrischen oder löffelförmigen Fortsatz, Processus odontoideus (po), der entwicklungsgeschichtlich als Zentrum des Atlas zu betrachten ist.
Die Brust- oder Rückenwirbel (Fig. 475 A) zeichnen sich in der Regel durch starke Dornfortsätze, kurze, am distalen Ende mit Gelenkfasetten für das sog. Tuberculum der Rippen versehene Diapophysen und biplane Zentren aus. Die Gelenkflächen der vorderen Zygapophysen sind nach oben, jene der Postzygapophysen nach unten gerichtet. Als ersten Brustwirbel betrachtet man denjenigen, dessen Rippen mit dem Brustbein in Verbindung treten. In der Regel sind 13 (seltener 10-20) Dorsalwirbel vorhanden. An die Lendenwirbel (Fig. 475 B) heften sich keine Rippen an; dagegen sind ihre Querfortsätze sehr stark entwickelt, die kräftigen Dornfortsätze meist schräg nach vorne gerichtet, und die Zentren erheblich länger als jene der Brustwirbel.
Das Kreuzbein oder Sacrum dient zur Anheftung des Hüftbeines und fehlt als differenzierter Teil der Wirbelsäule nur bei den Walen und Sirenen, deren hintere Extremitäten durch Verkümmerung verloren gegangen sind. An der Bildung des Sacrums nehmen meist 3-4, zuweilen auch 2, oder 8-9 Wirbel teil. Ihre Zentren und oberen Bögen und öfters auch ihre Dornfortsätze sind mehr oder weniger vollständig miteinander verschmolzen, so daß das Sacrum einen unbeweglichen, von vorne nach hinten an Breite abnehmenden Abschnitt der Wirbelsäule darstellt.
Die Schwanzwirbel bieten nach Zahl und Form die größte Mannigfaltigkeit. Die vorderen besitzen in der Regel wohl ausgebildete obere Bögen, Dornfortsätze, Diapophysen, Zygapophysen und zuweilen ⋁förmige Hämapophysen (Chevron-bones). Weiter hinten tritt eine allmähliche Modifikation der Wirbel ein. Die Zentren verlängern sich, die oberen Bögen und sämtliche Fortsätze verkümmern oder verschwinden gänzlich, und das allein übrigbleibende Zentrum nimmt zylindrische oder mehrkantige Form an.
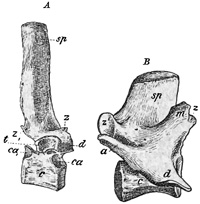
Fig. 475.
A zweiter Rückenwirbel vom Hund (von der Seite.)
B zweiter Lendenwirbel vom Hund (von der Seite.)
c Zentrum, sp Dornfortsatz, d Diapophyse, z vordere, z' hintere Zygapophyse, m Metapophyse, a Anapophyse, t Fasette für das Tuberculum, ca Fasetten für das Capitulum.
Rippen verbinden sich nur mit den Brustwirbeln; die vorderen (wahren Rippen) heften sich durch besondere knorpelige oder unvollkommen verknöcherte Sternocostalstücke an das Brustbein an, die hinteren »falschen« Rippen endigen frei in den Muskeln des Brustkorbes. Das Tuberculum lenkt sich in eine schwach vertiefte Fasette der Diapophyse ein, während das Capitulum am vorderen Teil des Wirbelkörpers oder an der Basis des oberen Bogens befestigt ist. Sehr häufig liegt die vertiefte Fasette für das Capitulum zwischen zwei Wirbeln, so daß ihre vordere Hälfte noch auf das hintere Ende des Zentrums des vorhergehenden Wirbels übergreift.
Das Brustbein (Sternum) besteht nicht aus einer einfachen Knochenscheibe wie bei Vögeln und Reptilien, sondern aus einer Reihe von abgeplatteten Knochenstücken, die in der ventralen Mittellinie in einer Längsreihe hintereinander liegen.
Der Schädel (Fig. 476, 477) der Säugetiere unterscheidet sich von dem der Fische, Amphibien, Reptilien und Vögel durch geringere Zahl der ihn zusammensetzenden Knochen, durch die unbewegliche Verbindung des Oberkiefers mit der Schädelkapsel, durch die Unterdrückung des Kieferstieles und direkte Einlenkung des Unterkiefers am Schläfenbein. Der Mangel eines gesonderten Quadratbeines und die Anwesenheit von zwei Hinterhauptsgelenkköpfen sind weitere Merkmale der Säugetiere. Die Form des Schädels wird wesentlich von der Größe des Gehirns, von der Entwicklung der Kiefer, von dem Vorhandensein vorspringender Kämme, Knochenprotuberanzen, Stirnzapfen etc. bedingt und bietet bei den verschiedenen Ordnungen und Familien außerordentlich große Abweichungen.
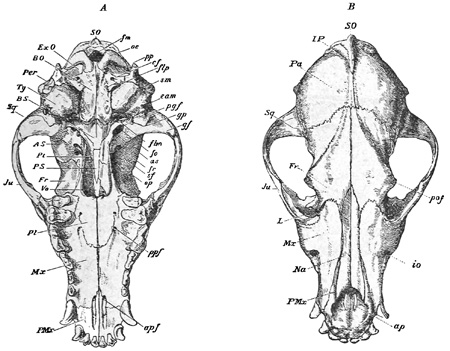
Fig. 476.
Schädel vom Hund (Canis familiaris). A von unten, B von oben. (Nach Flower.) SO oberes Hinterhauptsbein. Pa Scheitelbein, IP Interparietale, Sq Schläfenbein, Fr Stirnbein, L Tränenbein, Ju Jochbein, Mx Oberkiefer, Pmx Zwischenkiefer, Na Nasenbein, BO Basioccipitale, Exo Exoccipitale, Per Perioticum, Ty Tympanicum, BS Basisphenoid, PS Präsphenoid, AS Alisphenoid, Pt Pterygoid, Vo Vomer, Pl Palatinum, pof Processus postorbitalis, io Foramen infraorbitale, oc Condylus occipitalis, pp Processus paroccipitalis, gp Processus postglenoidalis, gf Gelenkgrube für den Unterkiefer, fm Foramen magnum (Hinterhauptsloch), cf Foramen condyloideum, flp Foramen lacerum posterius, eam meatus auditorius externus (äußerer Gehörgang), pgf Foramen postglenoidale, flm Foramen lacerum medium, fo Foramen ovale, as hintere Öffnung des Alisphenoid-Kanals, fr Foramen rotundum und vordere Öffnung des Alisphenoid-Kanals, sf Keilbeinspalte oder Foramen lacerum anterius, op Foramen opticum, ppf hintere Gaumenlöcher, ap und apf vordere Gaumenlöcher.
Man unterscheidet am Kopf die eigentlichen Schädelknochen, welche die Hirnhöhle, und die Gesichtsknochen, welche die Nasenhöhle und Mundhöhle umschließen. Von den Schädelknochen, welche das Hinterhauptsloch (Foramen magnum fm) umgeben, sind die seitlichen Hinterhauptsbeine oder Exoccipitalia (Occipitalia lateralia Exo) mit gewölbten Gelenkköpfen (Condyli occipitales oc) versehen und oben durch das unpaare große Hinterhauptsbein (Supraoccipitale SO) verbunden. Am vorderen Teil der Exoccipitalia springt ein von den Condylen durch eine tiefe Depression getrennter Fortsatz (Processus paroccipitalis p. p., Processus paramastoideus, Pr. jugularis) vor, der zur Anheftung von Muskeln dient und bei den Huftieren besonders stark entwickelt ist. Auf der Unterseite schiebt sich das untere Hinterhauptsbein oder Basioccipitale (BO) zwischen die Exoccipitalia, erstreckt sich aber mehr nach vorne und bildet einen ansehnlichen Teil der Schädelbasis. Es ist von dem kleinen runden Foramen condyloideum (cf), welches den Zungennerv durchläßt, durchbohrt. Auf das Basioccipitale folgt nach vorne in der Schädelbasis das hintere Keilbein oder Basisphenoid (BS), auf dieses das vordere Keilbein oder Praesphenoid (PS) und vorne das kleine Pflugscharbein (Vomer Vo). Das Basisphenoid ist oben in der Mitte etwas ausgehöhlt, steigt aber am vorderen und hinteren Ende wieder etwas an und bildet den sog. Türkensattel (Sella turcica) zur Aufnahme der Hypophyse (pituary body) des Gehirns. Die beiden Keilbeine verschmelzen häufig frühzeitig zu einem sog. Wespenbein. Von dem Basisphenoid entspringt jederseits eine flügelartige, nach oben und außen gerichtete Knochenplatte, das Alisphenoid (AS ala major) und vom Praesphenoid ein entsprechender Knochen, das Orbitosphenoid (OS ala minor). Das Alisphenoid ist meist von drei Öffnungen durchbohrt, von denen das hintere (Foramen ovale fo) einem Nerven Austritt gewährt, während das mittlere (Canalis alisphenoideus as) die äußere Schlagader (Carotis) und das vordere (Foramen rotundum fr) den zweiten Ast des Trigeminus-Nervs durchläßt. Zwischen dem Orbito- und Alisphenoid befindet sich das Foramen lacerum anterius (sf) als Durchgang für Nerven. Auch das Orbitosphenoid besitzt eine Öffnung (Foramen opticum op) für den Sehnerv.
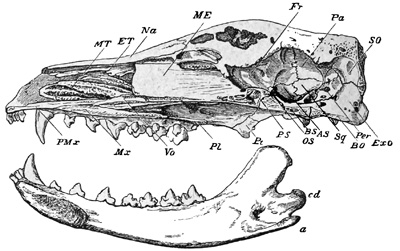
Fig. 477.
Schädel vom Beutelwolf (Thylacinus cynocephalus) in sagittaler Richtung durchgeschnitten, nebst Unterkiefer. 1/2 nat. Gr. (Nach Flower.) SO Supraoccipitale, ExO Exoccipitale, BO Basioccipitale, Per Perioticum, BS Basisphenoid, PS Präsphenoid, AS Alisphenoid, OS Orbitosphenoid, Sq Squamosum, Pa Parietale, Fr Frontale, ME Mesethmoideum, Na Nasale, ET Ethmoturbinale, MT Maxilloturbinale, Pmx Prämaxilla, Mx Maxilla, Vo Vomer, Pl Palatinum, Pt Pterygoideum, cd Unterkiefercondylus, a angulus.
Die seitlichen Flügel der Keilbeine bilden die untere Seitenwand der Hirnhöhle und grenzen oben an die großen Scheitelbeine (Parietalia Pa) und Stirnbeine (Frontalia Fr), welche das Schädeldach und den oberen Teil der Seitenwand des Schädels bilden. Zwischen die Scheitelbeine und die Hinterhauptsschuppe schaltet sich manchmal das kleine Interparietale (IP) ein, das zuweilen getrennt bleibt, zuweilen mit den Scheitelbeinen (Huftiere), noch häufiger mit der Hinterhauptsschuppe (Carnivoren) verschmilzt. Die mehr oder weniger steil abfallende Hinterhauptsfläche (Occiput) wird in vielen Fällen durch einen vorspringenden Kamm (crista occipitalis) begrenzt, welcher zur Anheftung der Nackenmuskeln dient.
Die Scheitelbeine sind in der Mitte des Schädeldachs durch die zackige Pfeilnaht (Sagittal-Naht) verbunden; sie verschmelzen meist vollständig miteinander und bilden zuweilen über der Pfeilnaht einen vorspringenden Kamm (crista sagittalis), welcher sich nach vorne meist in zwei divergierende Äste teilt. Sie sind mit der Hinterhauptsschuppe durch die Lambdanaht, mit den Stirnbeinen durch die quer zur Längsachse des Schädels verlaufende Kronennaht verbunden. Die Stirnbeine verwachsen zuweilen miteinander und tragen bei vielen Huftieren knöcherne Fortsätze (Stirnzapfen, Geweihe). In der Regel springt das Stirnbein hinter den Augenhöhlen vor und nimmt durch den Processus postorbitalis (pof) an der hinteren Umgrenzung der Augenhöhlen teil. Bei vielen Huftieren, namentlich bei den gehörnten Wiederkäuern ist nicht nur das ganze Stirnbein, sondern häufig auch das Scheitelbein, ein Teil des Oberkiefers und namentlich auch das Praesphenoid mit Luftzellen erfüllt, und bei den Proboscidiern zeichnen sich fast alle Schädel- und Gesichtsknochen durch ungewöhnlich starke Entwicklung dieser Luftzellen aus. Zwischen dem Stirnbein, dem vorderen Keilbein (Praesphenoid) und Vomer schließt eine vertikale, mehr oder weniger ausgedehnte Knochenplatte, das Siebbein (Mesethmoideum ME), die Hirnhöhle nach vorne ab. Dasselbe besteht aus einer dem Vomer aufruhenden medianen, in der Längsrichtung ausgedehnten Lamelle (lamina perpendicularis oder crista galli) und zwei seitlichen querstehenden meist siebförmig durchlöcherten Platten (laminae cribrosae), durch welche die Riechnerven aus dem Gehirn in die Nasenhöhle eindringen. Die Lamina perpendicularis geht nach vorne in die fast immer knorpelig bleibende Nasenscheidewand über.
Zwischen dem Alisphenoid und Supraoccipitale liegt oben vom Scheitelbein und zuweilen auch vom hinteren Teil des Stirnbeins begrenzt das Schläfenbein (Schuppenbein, Squamosum Sq), das mit seinem oberen flachen, schuppenartigen Teil (Schuppe) die seitliche Begrenzung der Hirnhöhle vervollständigen hilft, an seiner Basis aber einen sehr starken, dem Quadratojugale der Reptilien entsprechenden Fortsatz (Processus zygomaticus) nach außen sendet, welcher sich bald nach vorne biegt und auf seiner Unterseite eine konkave Gelenkfläche (Fossa glenoidalis gf) zur Aufnahme des Unterkiefercondylus besitzt. Der Hinterrand dieser Gelenkfläche ragt häufig als Fortsatz (Processus postglenoidalis gp) vor. Der Raum zwischen dem Schläfenbein und dem Exoccipitale wird von den Knochen der Gehörkapsel ausgefüllt. Aus einer gemeinsamen Knorpelmasse, in welcher die Ossifikation von drei Zentren beginnt, die dem Prooticum, Opisthoticum und Epioticum entsprechen, entsteht ein sehr fester Knochen, das Felsenbein oder Perioticum (Per), welches das Gehör-Labyrinth und das innere Ohr umschließt und öfters einen nach unten gerichteten Fortsatz (Processus mastoideus) besitzt. Das Pauckenbein oder Tympanicum besteht in frühester Jugend aus einem einfachen knöchernen Ring und behält bei den Marsupialiern und manchen Insectivoren diese Beschaffenheit auch zeitlebens bei. In der Regel verlängert sich aber bei weiterer Entwicklung der äußere Rand des Ringes in horizontaler Richtung nach außen und bildet den zur Ohrmuschel führenden äußeren Gehörgang (meatus auditorius externus eam); die Unterseite wird durch eine Knochenplatte bedeckt, welche sich zuweilen zu einer blasig aufgetriebenen, hohlen oder mit zelligem Knochengewebe erfüllten Anschwellung (Bulla tympanica Ty) umgestaltet. Am vorderen Ende des Tympanicum ragt zuweilen ein griffelförmiger zugespitzter Fortsatz (Processus styloideus) nach unten vor. In dem Zwischenraum zwischen Perioticum und Tympanicum und zwar zwischen dem vom Trommelfell geschlossenen äußeren Gehörgang und der Fenestra ovalis liegen die drei Gehörknöchelchen Ambos (Incus), Hammer (Malleus) und Steigbügel (Stapes). Am vorderen und inneren Ende des Paukenbeins liegt die Mündung der Eustachischen Röhre, welche Luft in die Gaumenhöhle führt, und hinten dringt die innere Kopfblutader durch das Foramen lacerum posterius (flp) ein und tritt am vorderen Ende des Tympanicums durch das Foramen lacerum medium (flm) wieder aus.
Die Physiognomie des Schädels wird sehr wesentlich durch die Entwicklung der Gesichtsknochen und namentlich des Oberkiefers (Maxilla Mx) bedingt. Der untere Außenrand des Oberkiefers ist meist mit Zähnen besetzt, nach innen sendet er eine horizontale Platte, welche an der Zusammensetzung des harten Gaumens teilnimmt. Am Hinterrand ragt ein zuerst nach außen gerichteter Fortsatz (Processus zygomaticus) vor, welcher sich dann nach hinten verlängert und durch das Jochbein (Jugale, Malare ju) mit dem Processus zygomaticus des Schläfenbeins in Verbindung tritt. Die beiden genannten Fortsätze und das Jochbein setzen den Jochbogen zusammen, welcher die untere Begrenzung der Augenhöhlen und der Schläfengruben bildet. Am vorderen Rand der Augenhöhle zwischen Stirnbein, Oberkiefer und Ethmoideum liegt das vom Tränenkanal durchbohrte Tränenbein (Lacrimale La). Die paarig entwickelten Zwischenkiefer (Praemaxillae Pmx) bilden den vorderen und meist auch einen Teil des Seitenrandes der Schnauze. In der Regel enthalten sie an ihrem Alveolarrand Schneidezähne. Die Nasenbeine (Nasalia Na) fügen sich in einen einspringenden Winkel am Vorderrand der Stirnbeine ein und werden seitlich vom Oberkiefer und meist auch noch vom Zwischenkiefer begrenzt. Die Nasenhöhle selbst enthält mit Ausnahme der Wale und Sirenen eigentümliche, sehr dünne, stark eingerollte und durchlöcherte Knochenlamellen, die bei Tieren mit scharfem Geruch stark labyrinthisch entwickelt sind und eine Schleimhaut tragen, in welcher sich die Verzweigungen der Riechnerven ausbreiten. Diese Riechmuscheln (conchae interiores) gehören zum Siebbein und sind lediglich als Fortsätze desselben zu betrachten; sie erscheinen in mehrere Gruppen angeordnet und werden hinten von der Lamina perpendicularis des Mesethmoids in zwei Hälften zerlegt. Die Lamellen, welche den hinteren und oberen Raum der Nasenhöhle jederseits ausfüllen, werden Ethmoturbinalia (ET) genannt, während die dem harten Gaumen aufliegenden und den vorderen und unteren Teil der Nasenhöhle einnehmenden Blätter als Maxilloturbinalia (MT) bezeichnet werden.
Die Unterseite des Schädels wird im hinteren cranialen Teil vom Basioccipitale und den Keilbeinen gebildet. Vom Basisphenoid und Alisphenoid springt eine kurze vertikale Knochenplatte, das Flügelbein (Pterygoid Pt), nach unten vor und begrenzt jederseits den hinteren Nasengang, dessen Basis durch die Haut des weichen Gaumens gebildet wird. Vorne schließt sich das Flügelbein an den vom Praesphenoid und Orbitosphenoid absteigenden Teil des Gaumenbeins (Palatinum Pl) an, welcher sich nach vorne und oben verdickt und eine horizontal ausgebreitete Platte bildet und mit der horizontalen Platte des Oberkiefers und dem Zwischenkiefer den harten Gaumen, die Basis der Nasenhöhle bildet. Der Hinterrand des Gaumenbeins ist seitlich meist etwas ausgeschnitten, springt in der Mitte häufig in eine Spina nasalis posterior vor und zeigt den Ausgang der hinteren Nasenlöcher (Choanen) in die Mundhöhle an. Der harte Gaumen wird von mehreren kleinen Öffnungen zum Austritt von Blutgefäßen und Nerven durchbohrt.
Der Unterkiefer besteht aus zwei symmetrischen, nach hinten divergierenden Ästen, welche vorne in der Mitte mit einer rauhen Fläche (Symphyse) zusammenstoßen und entweder durch Bindegewebe aneinander befestigt sind oder im Alter fest miteinander verwachsen. Der Oberrand oder Alveolarrand ist meist gerade und mit Zähnen besetzt, der Unterrand etwas verdickt und konvex, in der Symphysenregion ansteigend; das hintere Ende des Unterrandes bildet den Winkel (Angulus a), der öfters in einen vorspringenden Fortsatz ausgezogen oder nach innen gekrümmt ist. Der obere Rand steigt hinter dem letzten Backenzahn in der Regel zu einem hohen, seitlich zusammengedrückten Kronfortsatz (Processus coronoideus) an, welcher dem Temporalmuskel zur Anheftung dient. An der mehr oder weniger tief ausgehöhlten oder mit erhabenen Leisten versehenen Außenfläche des Kronfortsatzes befestigt sich der starke Massetermuskel. Der Hinterrand des aufsteigenden Astes endigt oben über dem Winkel in einem verdickten und gewölbten Gelenkkopf (Condylus cd), welcher sich in die Gelenkgrube des Schläfenbeins einfügt und bald quer verlängert, bald rundlich, bald schräg von oben nach unten gerichtet ist. Der Unterkiefer wird der Länge nach von einem ziemlich weiten Kanal durchzogen (Alveolarkanal), in welchem ein Blutgefäß und der Unterkiefernerv verlaufen, die zahlreiche Seitenäste in die Zähne aussenden. Auf der Innenseite jedes Astes verläuft zuweilen eine seichte Furche (Sulcus mylohyoideus), die bei gewissen Beuteltieren besonders deutlich entwickelt ist.
Die Hirnhöhle besitzt bei den Säugetieren meist eine viel größere Ausdehnung als bei den übrigen Wirbeltierklassen. Im allgemeinen zeigt sich bei den verschiedenen Ordnungen eine beträchtliche Abstufung in Größe und Ausbildung des Gehirns, so daß dasselbe von Owen als Basis der Systematik verwendet wurde. Sehr bemerkenswert ist die von Marsh zuerst beobachtete Tatsache, daß der Gehirnumfang bei den Säugetieren der Eocänzeit durchwegs geringer ist als jener bei verwandten Formen aus dem jüngeren Tertiär oder aus der Jetztzeit. Ja bei den riesigen eocänen Amblypoden ist die Hirnhöhle so winzig, daß man deren Ausguß durch den Medullarkanal der Wirbelsäule ziehen kann.
Entwicklung und Umgestaltung des Schädels. Wie bei den Reptilien und Vögeln ist die Schädelbasis knorpelig präformiert, während sich die Knochen der Schädeldecke in einer häutig fibrösen Grundlage entwickeln. Die verschiedenen Knochen sind anfänglich alle getrennt und entstehen von besonderen Ossifikationszentren, nach und nach stoßen sie aneinander, werden durch Nähte verbunden oder verschmelzen vollständig. Je nach der Art, wie sich diese Knochen im Verlauf der Entwicklung gestalten, hängt die Ausbildung und äußere Erscheinung des Kopfes ab und auf Grund ontogenetischer oder phylogenetischer Erfahrung lassen sich bestimmte Zustände als ursprünglich, andere als mehr oder weniger weitgehende Umgestaltungen bezeichnen.
Primitiver Zustand. Fortgeschrittener spezialisierter Zustand.
Schädelknochen durch Nähte vereinigt. Schädelknochen verschmolzen.
Hirnkapsel klein, schmal. Hirnkapsel groß, breit, gewölbt.
Schädel niedrig, Profil fast gerade. Stirnregion gewölbt oder steil ansteigend.
Schnauze vor der Hirnhöhle verlängert. Gesichtsteil kurz, steil abfallend oder Vorderpartie der Kiefer gestreckt.
Nasenbeine lang; Nasenlöcher nach vorn gerichtet. Nasenbeine kurz oder verkümmert; Nasenlöcher weit zurückreichend oder nach oben gerichtet.
Oberkiefer niedrig. Oberkiefer hoch.
Jochbogen geschlossen. Jochbogen unterbrochen oder rudimentär.
Augenhöhle hinten offen, in die Schläfengrube übergehend. Augenhöhle hinten geschlossen.
Stirnbein und Praesphenoid dicht oder mit schwach entwickelten Luftzellen. Stirnbein, zuweilen auch benachbarte Kopfknochen und Schädelbasis mit Luftzellen erfüllt.
Knochen der Schädeldecke glatt. Scheitel-, Stirn- und Hinterhauptsbeine mit vorragenden Kämmen, Protuberanzen, Stirnzapfen oder Geweihen.
Tympanicum ringförmig, unten offen, frei. Tympanicum unten geschlossen oder aufgeblasen, mit äußerem Gehörgang; mit dem Perioticum verwachsen.
Gelenkgrube für den Unterkiefer seicht, hinten mit Processus postglenoidalis. Gelenkgrube eine stark vertiefte Quer- oder Längsrinne bildend; Processus postglenoidalis fehlt.
Unterkieferäste in der Symphyse durch Ligament verbunden. Unterkieferäste in der Symphyse verschmolzen.
Der Schultergürtel hat im Vergleich mit den niedrigen Vertebratenklassen eine bedeutende Reduktion erlitten und besteht häufig nur aus dem Schulterblatt, zu dem bei denjenigen Formen, welche ihre Vorderextremitäten mehr zum Greifen als zur Fortbewegung benutzen, noch ein Schlüsselbein (Clavicula) kommt. Ein selbständig entwickeltes Coracoid nebst einem Präcoracoid findet sich nur bei Monotremen, bei allen übrigen ist dasselbe mit der Scapula verschmolzen und stark reduziert.
Das Schulterblatt (Scapula) (Fig. 478) ist eine ziemlich große, aus Knorpeln hervorgehende Knochenplatte von oval-dreieckiger Form, welche auf der Außenseite durch eine vorspringende Leiste (Spina oder Crista scapulae) in einen vorderen und hinteren Abschnitt geteilt wird. Das untere Ende dieser Leiste ragt in der Regel als ein etwas verlängerter und gekrümmter Fortsatz (Acromion) vor. Der verschmälerte Unterrand ist zu einer vertieften Gelenkfläche (Fossa glenoidalis g) zur Aufnahme des Oberarms verbreitert und endigt vorne in einem kurzen Coracoidfortsatz (c), der aus einem besonderen Ossifikationszentrum hervorgeht, in frühester Jugend auch noch durch Sutur mit der Scapula vereinigt ist, später aber vollständig damit verschmilzt.
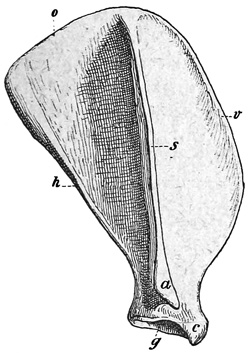
Fig. 478.
Rechtes Schulterblatt vom Hund. s Kamm (spina scapulae), a Acromion, c Coracoidfortsatz, g Gelenkfläche, v vorderer (Coracoid-) Rand, h hinterer (Glenoidal-) Rand, o oberer Rand.
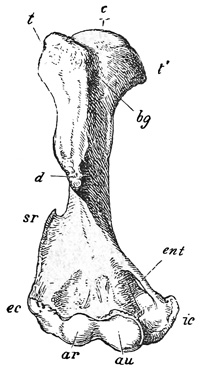
Fig. 479.
Rechter Oberarmknochen (Humerus) des Wombat (Phascolomys wombatus) von vorne. 1/2 nat. Gr. (Nach Flower.) c oberer Gelenkkopf (caput), t tuberculum majus, t' tuberculum minus, bg fossa bicipitalis, d Deltoidrauhigkeit, sr crista supinatoria, ent Foramen entepicondyloideum, ec äußerer, ic innerer Gelenkknorren, ar radiale, au ulnare Gelenkrolle.
Das Schlüsselbein (Clavicula) ist ein paariger, dünner, zylindrischer, etwas gebogener Knochen, welcher sich am Acromion des Schulterblattes und am vordersten Ende des Brustbeins mittels Ligaments befestigt. Es fehlt den Cetaceen, Sirenen, Ungulaten und den meisten Carnivoren, wo es übrigens häufig noch als Rudiment in den Muskeln liegt.
Der kräftige, gerade oder etwas gebogene Oberarm (Humerus) (Fig. 479) hat am oberen (proximalen) Ende einen ziemlich dicken, gerundeten Gelenkkopf (c) und zwei vorstehende, zur Anheftung von Muskeln bestimmte Höcker (tuberculum majus und tub. minus), welche durch die Fossa bicipitalis (bg) getrennt werden. Von dem außen gelegenen großen Höcker zieht sich in der Regel ein etwas vorstehender, breiter rauher Kamm zur Anheftung des Deltoidmuskels eine Strecke weit am Schaft des Humerus herab (crista deltoidea d). Das untere oder distale Ende ist quer verbreitert und mit einer breiten, halbzylindrischen Gelenkrolle (Trochlea) versehen, die meist durch eine mediane Vertiefung oder durch eine erhabene Leiste (crista intertrochlearis) in eine radiale (ar) und eine ulnare (au) Gelenkfläche geteilt wird. Neben der Gelenkrolle ragt außen ein knorriger Vorsprung, der äußere Gelenkkopf (Ectocondylus ec) und auf der inneren Seite der interne Condylus (ic) vor. Über dem letzteren ist der Humerus bei den primitiveren Formen der Säugetiere von einem Foramen entepicondyloideum (ent) zum Durchtritt eines Nervs und Blutgefäßes durchbohrt. Über der Gelenkrolle befindet sich auf der Hinterseite eine mehr oder weniger tiefe Grube zur Aufnahme des Ellenbogenfortsatzes der Ulna (Fossa olecrani), die zuweilen den Humerus durchbohrt. In der Jugend sind die beiden Gelenkextremitäten durch Epiphysen vom eigentlichen Schaft (Diaphyse) getrennt.
Der Vorderarm (Fig. 480) besteht aus zwei Knochen, der Speiche (Radius) und der Elle (Ulna, Cubitus), wovon der Radius mit der äußeren und vorderen, die Ulna mit der inneren und hinteren Gelenkrolle des Humerus artikuliert. Bei denjenigen Säugetieren, welche die Vorderextremität mehr zum Greifen als zum Gehen benützen, sind beide Knochen wohl ausgebildet, jedoch in der Art übereinander gekreuzt, daß am distalen Ende die Ulna außen, der Radius innen liegt, bei den übrigen steht die Ulna hinter dem Radius. Bei den vorgeschritteneren Huftieren verkümmert der untere Abschnitt der Ulna und verwächst vollständig mit dem Radius.
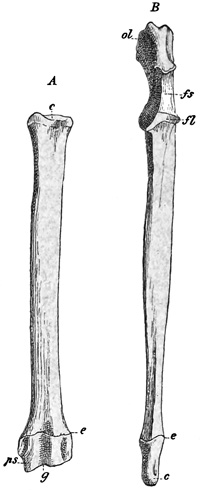
Fig. 480.
A Linker Radius vom Hund von vorne. c obere, g untere Gelenkfläche, ps processus styloideus, e Epiphyse.
B Linke Ulna vom Hund von vorne. ol Olecranon, fs Fossa sigmoidea, fl Fossa lunaris, c Capitulum, e Epiphyse.
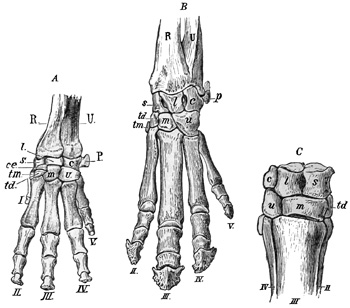
Fig. 481.
A linker Vorderfuß von Procavia (Dendrohyrax) arborea.
B Tapirus americanus. C rechter Vorderfuß vom Pferd. R Radius, U Ulna, s Scaphoideum, l Lunare, c Cuneiforme, p Pisiforme, ce Centrale, tm Trapezium, td Trapezoid, m Magnum, u Unciforme, I-V erster bis fünfter Finger.
Das obere Ende des Radius hat eine seichte, quer ovale Gelenkgrube, deren konvexer Innenrand sich dicht an die Ulna anlegt. Der Schaft ist etwas abgeplattet, das untere Ende quer verbreitert und die ausgehöhlte Gelenkfläche innen durch einen kurzen zugeschärften Vorsprung (Processus styloideus ps) begrenzt. Am oberen Ende der Ulna ragt ein starker, vierseitiger, distal abgestutzter und verdickter Knorren (Ellenbogenfortsatz, Olecranon ol) mehr oder weniger weit vor, dessen Vorderseite durch eine halbmondförmige Gelenkfläche (Fossa lunaris), an welche sich der Radius anlegt, senkrecht abfällt. Das untere distale Ende der Ulna ist in den meisten Fällen schmäler als der Radius, hat eine konvexe Gelenkfläche und meist auch einen Processus styloideus auf der Außenseite.
Der Carpus oder die Handwurzel (Fig. 481) besteht bei allen Säugetieren aus zwei Reihen kleiner platter Knöchelchen. Bei den primitiveren Formen schaltet sich, wie bei den Reptilien, ein kleines Os centrale zwischen die beiden Reihen ein. Von den drei Knöchelchen der ersten oder proximalen Reihe entspricht das innere (Scaphoideum) dem Radiale, das äußere (Cuneiforme) dem Ulnare, das mittlere (Lunare) dem Intermedium der Reptilien; ein viertes äußeres und etwas nach hinten gerichtetes Knöchelchen (das Erbsenbein oder Os pisiforme) wird nicht zu den eigentlichen Carpalknöchelchen gezählt, sondern bald als Rudiment eines sechsten Fingers, bald als ein großes Sesambein betrachtet. Die Knöchelchen der distalen Reihe werden entweder Carpalia I bis V, oder Trapezium, Trapezoid, Magnum und Unciforme (Fig. 481) genannt. Im primitiven Carpus (Fig. 481 A) bleiben sämtliche Knochen getrennt und sind eher etwas alternierend als serial angeordnet. Wird von der Hand nicht nur Beweglichkeit, sondern auch Stärke und Tragfähigkeit verlangt, so erleidet der Carpus sehr verschiedenartige, dem jeweiligen Bedürfnis entsprechende Umbildungen. Die obere Reihe gewinnt zuweilen dadurch eine größere Festigkeit, daß Scaphoideum und Lunare miteinander verschmelzen und ebenso findet in der zweiten Reihe eine Verschmelzung von zwei oder mehr benachbarten Knöchelchen statt. In anderer Weise erfolgt eine Verfestigung des Carpus dadurch, daß sich die Carpalia der zweiten Reihe derart von außen nach innen verschieben, daß eine alternierende und verschränkte Anordnung zustande kommt. Denselben Erfolg hat auch eine ungewöhnliche Breitenausdehnung eines Knöchelchens, z. B. des Magnum (Fig. 481 C). Die seitliche Verschiebung oder ungleiche Ausdehnung der distalen Carpalia führt häufig zur gänzlichen Verdrängung des Trapezium.
Auf den Carpus folgen die Metacarpalia oder Mittelfußknochen, und zwar artikulieren am Unciforme stets die zwei äußeren Metacarpalia (IV und V), während die übrigen Mittelhandknochen je einem Carpale als Stütze dienen. Ursprünglich lagen die proximalen, häufig schwach ausgehöhlten Gelenkenden der Metacarpalia in gleicher Ebene; meistens greifen dieselben aber ziemlich weit in den Carpus herein und verstärken dadurch das Knochengefüge. Der distale gewölbte Gelenkkopf der Metacarpalia wird häufig durch einen vorspringenden, zugeschärften Kamm (Leitkiel) in zwei Hälften geteilt.
Von den fünf Fingern heißt der erste oder innere Daumen (Pollex). Mit Ausnahme der Cetaceen hat kein Säugetier mehr als drei Phalangen an jedem Finger, doch verkümmern am Daumen und kleinen Finger in der Regel ein oder zwei Glieder und bei den Edentaten tritt zuweilen eine Verschmelzung von zwei Phalangen ein. Bei den Fledermäusen verlängern sich sowohl die Metacarpalia als die Phalangen in ungewöhnlicher Weise zur Befestigung der Flughaut.
Die Endphalangen haben sehr verschiedene Form und werden ringsum oder vorne von hornigen Hufen, Krallen oder Nägeln umschlossen. An den Gelenkverbindungen von Metacarpus und den ersten Phalangen liegen auf der Hinterseite der Hand sehr häufig paarig entwickelte, kleine, halbmondförmige Sesambeine, die im Bindegewebe entstehen.
Das Becken (pelvis Fig. 482) wird jederseits aus drei in der seitlich gelegenen Gelenkpfanne für den Oberschenkel zusammenstoßenden, meist sehr frühzeitig zu einem sog. Os innominatum verschmolzenen Knochen, dem Hüftbein oder Darmbein (Ilium Il), dem Schambein (Pubis Pb) und dem Sitzbein (Ischium Is) gebildet. In der Mitte der Bauchseite stoßen die beiden Beckenhälften in einer Symphyse zusammen und umschließen jederseits eine große, mit Muskeln und Bindegewebe erfüllte Öffnung (Foramen obturatorium fo).
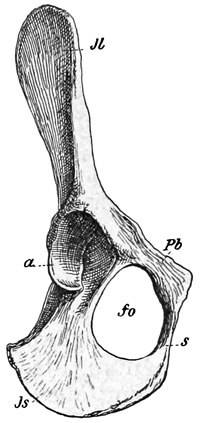
Fig. 482.
Rechte Beckenhälfte vom Hund von vorn gesehen. Il Ilium, Pb Pubis, Is Ischium, a Pfanne, fo Foramen obturatorium, s Symphyse.
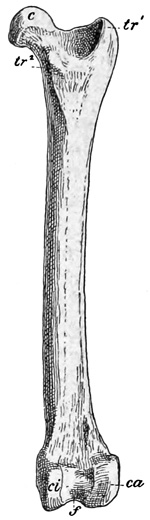
Fig. 483.
Rechtes Femur vom Hund von hinten. c Condylus, tr1 großer, tr2 kleiner, ci innerer Gelenkkopf, (Entocondylus), ca äußerer Gelenkkopf, f Fossa intercondyloidea.
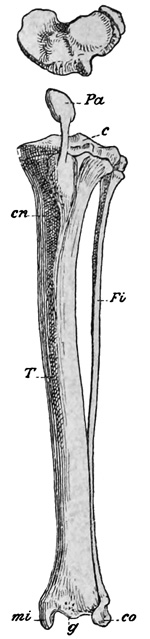
Fig. 484.
Linke Tibia (T) und Fibula (Fi) nebst Patella (Pa) vom Hund von vorne. c oberes Gelenkende, g unteres Gelenkende der Tibia, cn Procnemialkamm, mi malleus internus, co unteres Gelenkende der Fibula.
Der Oberschenkelknochen (Femur Fig. 483) ist meist lang zylindrisch. Am oberen Ende ragt ein halbkugeliger, durch eine Einschnürung (Hals) vom eigentlichen Schaft getrennter Gelenkkopf nach innen und vorne vor. Dem Kopf gegenüber befindet sich auf der hinteren und äußeren Seite ein kräftiger Muskelansatz, der große Trochanter (Trochanter major tr1), begrenzt von einer mehr oder weniger vertieften Grube (Fossa digitalis). Ein kleiner, konischer Höcker, der kleine Trochanter (Trochanter minor tr2) liegt unmittelbar unter dem Kopf auf der vorderen Innenseite. Ein dritter Trochanter (Trochanter tertius tr3) ragt am Hinterrand in einiger Entfernung unter dem großen Trochanter vor, ist jedoch nur bei Huftieren, Nagern, Insectivoren und Edentaten deutlich entwickelt. Das distale Ende des Femur wird durch die stark verdickte, vorne schmale und jederseits von einem vorragenden Kamm begrenzte Gelenkrolle gebildet. Dieselbe wird außen und innen durch je einen großen knorrigen gerundeten Gelenkkopf (Ectocondylus und Entocondylus) begrenzt, zwischen denen auf der Hinterseite eine ziemlich tiefe und breite Grube (Fossa intercondyloidea f) liegt.
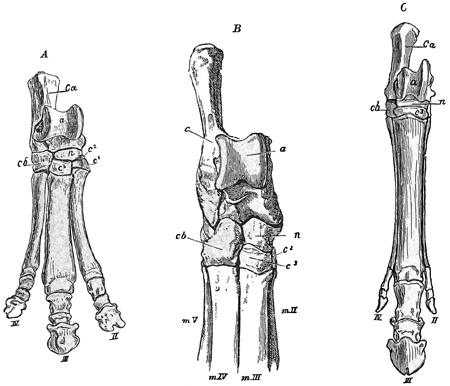
Fig. 485.
Rechter Hinterfuß A von Palaeotherium, B vom Schwein, C von Hipparion. ca und c Calcaneum, a Astragalus, n Naviculare, cb Cuboideum, c3, c2, c1 Cuneiforme tertium, secundum, primum, m Metatarsalia, II-V zweite bis fünfte Zehe.
Das verdickte obere Ende der Tibia (Fig. 484) bildet eine dreieckige, wenig vertiefte Gelenkfläche (c), die durch eine mediane Erhöhung in zwei Hälften zerlegt wird; die Hinterseite des Schaftes ist abgeplattet und jederseits kantig begrenzt; die Vorderseite bildet unter dem oberen Gelenkende einen mehr oder weniger zugeschärften Kamm (Procnemialcrista cn), und das distale Ende eine quer verbreiterte Gelenkfläche (g), die häufig durch eine gerundete Mittelerhebung halbiert wird; auf der Innenseite wird dieselbe durch einen Vorsprung (Malleolus internus mi) begrenzt. Das Wadenbein (Fibula Fi) ist stets ein dünner Knochen, dessen unteres Ende (co) häufig als ein dem Malleolus internus entsprechender Fortsatz vorragt und sich auf die vordere Außenfläche des Astragalus oder auf das Calcaneum stützt. Bei den vorgeschritteneren Huftieren verkümmert die Fibula entweder vollständig oder bis auf ein kleines distales, seltener proximales Rudiment.
Zwischen Femur und Tibia liegt auf der Vorderseite die kleine, durch Bänder mit der Tibia verbundene Kniescheibe (Patella Pa).
Die Fußwurzel oder der Tarsus (Fig. 485) besteht wie die Handwurzel aus zwei Knöchelchenreihen, zwischen welche sich jedoch stets ein wohl entwickeltes Zwischenknöchelchen (Naviculare oder Centrale) einschiebt. Die proximale Reihe besteht lediglich aus Sprungbein (Astragalus) und Fersenbein (Calcaneum). Der Astragalus (Fig. 486) liegt auf der inneren, das Calcaneum auf der äußeren Seite; ersterer bildet mit dem distalen Ende der Tibia das Sprunggelenk; seine nach vorne und oben gerichtete tibiale Gelenkfläche ist bei den plumpsten Huftieren (Amblypoda, Proboscidea) fast eben, in der Regel jedoch als ein vorspringender halbzylindrischer Gelenkkopf ausgebildet, der sich durch eine mehr oder weniger tiefe mediane Aushöhlung in eine Gelenkrolle (Trochlea) umwandeln kann. Der distale Teil des Astragalus verlängert sich häufig zu einem Hals und wird entweder durch eine flache oder schwach gewölbte Gelenkfläche für das Naviculare abgestutzt oder besitzt am distalen Ende eine breite, gewölbte, nach hinten verlängerte Gelenkrolle, die sich auf Naviculare, Cuboideum und Calcaneum stützt (Fig. 487 B). Auf der Hinterseite hat der Astragalus ein bis zwei Fasetten für das Calcaneum und eine für das Cuboideum. Bei altertümlichen Formen befindet sich oberhalb der proximalen Fasette ein Foramen.
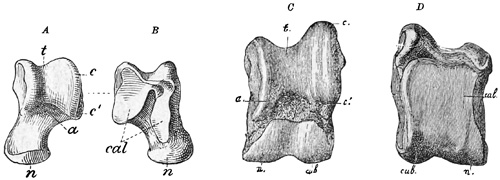
Fig. 486.
Linker Astragalus vom Hund. A von vorne und oben, B von hinten und unten. C. D. Linker Astragalus eines großen Wiederkäuers (Helladotherium). C von vorne und oben, D von hinten und unten. 1/3 nat. Gr. (Nach Gaudry.) t tibiale Gelenkrolle (Trochlea), c, c' der mit dem Calcaneum zusammenstoßende Seitenrand, a Grube zur Aufnahme des Unterrandes der Tibia, n Fasette für das Naviculare, cub Fasette für Cuboideum, cal Fasetten für Calcaneum.
Das Calcaneum (Fersenbein, Fig. 487) ist ein länglicher, kantiger Knochen, dessen hinterer Teil zu einem abgestutzten Stiel (Tuber calcis tc) ausgezogen ist, der bei den Sohlengängern auf dem Boden aufruht und die Ferse bildet, bei den Zehengängern und Huftieren aber schräg nach oben und hinten gerichtet ist. Am distalen Ende stößt das Calcaneum mit dem Cuboideum (cub) zusammen, während es mit der vorderen und oberen ausgehöhlten Seite den Astragalus stützt. Ein nach innen vorspringender Fortsatz (sustentaculum) enthält die innere oder sustentaculare Fasette (as) für den Astragalus, während am entgegengesetzten äußeren Teil sich die häufig durch einen Querkamm geteilte ektale oder peroneale Fasette (p') befindet. Zuweilen ist noch eine Gelenkfläche (p) für die Fibula vorhanden.
Das Cuboideum (Würfelbein) ist ein würfelförmiger oder unregelmäßig vierseitiger Knochen, dessen Höhe die Breite meist übertrifft. Das Naviculare breitet sich über die drei nebeneinander liegenden Cuneiformia aus.
Die Metatarsalia (Mt) stimmen im wesentlichen mit den Metacarpalia überein, doch sind ihre proximalen Gelenkflächen fast immer abgeplattet, dicht an die distalen Fasetten der Tarsalia angepreßt und meist in einer Ebene gelegen. Am Cuboideum artikulieren die zwei äußeren Metatarsalia (Mt IV und V), alle übrigen Tarsalia werden nur durch je einen Mittelfußknochen gestützt. Durch Verstärkung und Ausdehnung von Mt III und Mt IV treten am Hinterfuß dieselben Reduktionen ein wie am Vorderfuß, und zwar fällt derselben zuerst die große oder erste Zehe (Hallux), darauf die fünfte, dann die zweite und im äußersten Falle (beim Pferd) auch die vierte Zehe zum Opfer. Bei den Wiederkäuern verschmelzen Mt III und IV wie am Vorderfuß zu einem Canon.
Die Phalangen und Sesambeine der Hinterextremitäten unterscheiden sich in Zahl, Form und Größe in der Regel nicht wesentlich von denen der Vorderfüße; die Endglieder sind auch hier von Krallen, Hufen oder Nägeln umgeben.
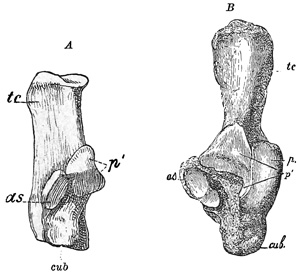
Fig. 487.
Linkes Calcaneum A vom Hund, B von Macrauchenia. tc tuber calcis, su Sustentaculum, as sustentaculare Fasette für den Astragalus, p' ectale Fasette für den Astragalus, cub distale Fasette für das Cuboideum, p Fasette für die Fibula.
Im allgemeinen steht die Ausbildung der Extremitäten im engsten Zusammenhang mit den Verrichtungen derselben, also auch mit der Lebensweise des Tieres. Da nun die Extremitäten in vielen Fällen ausschließlich zum Gehen, in anderen zum Gehen und Greifen, zum Klettern und Graben, zum Fliegen oder Schwimmen dienen, so entspricht jeder dieser Funktionen eine besondere Einrichtung, die unter Umständen in ähnlicher Weise bei Tieren von sehr verschiedener Organisation wiederkehrt. Es setzt diese Tatsache eine gewisse Plastizität des ganzen Organismus und damit auch des Knochengerüstes voraus, welche sich häufig sehr deutlich in den verschiedenaltrigen Vertretern einer bestimmten Gruppe in Gestalt phylogenetischer Durchgangsstadien kund gibt. Das Studium der Veränderungen im Säugetierskelett während der phyletischen Entwicklung, die sog. »Kinetogenese«, ist in neuester Zeit vorzüglich durch Cope und Osborn gefördert und im Sinne der Lamarckschen Anschauungen ausgebaut worden.[117]
Neben dem eigentlichen Knochengerüst hat bei den Säugetieren das Gebiß[118] das größte praktische Interesse, indem die Zähne nicht nur eine außerordentlich mannigfaltige Differenzierung aufweisen, sondern auch in engster Beziehung zur Ernährung und zum ganzen Skelettbau stehen. Sie wurden darum von jeher mit Vorliebe für die Systematik verwertet und spielen insbesondere in der Paläontologie wegen ihrer Widerstandsfähigkeit gegen die zerstörenden Einflüsse der Fossilisation eine wichtige Rolle.
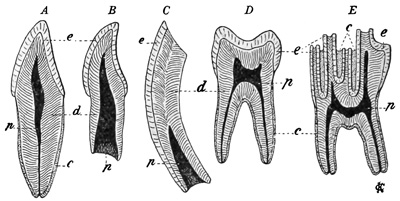
Fig. 488.
Vertikale Durchschnitte verschiedener Zähne. e Schmelz, d Dentin, c Zement, p Pulpa. A einwurzeliger Schneidezahn, ausgewachsen, die Pulpa in einen feinen Kanal ausgezogen. B junger, in der Entwicklung begriffener Schneidezahn mit weit offener Pulpa. C Schneidezahn eines Nagers nur an der Vorderseite mit Schmelz bedeckt, mit persistenter Pulpa. D zweiwurzeliger Backzahn des Menschen mit niedriger, breiter Krone. E Backzahn eines Ochsen mit hoher Krone und tiefen Schmelzfalten, deren Zwischenräume mit Zement ausgefüllt sind. Der Schmelz ist an der Oberfläche abgekaut und dadurch die Dentinsubstanz an der Usurfläche bloßgelegt.
Die meisten Säugetierzähne bestehen aus Schmelz, Dentin und Zement und enthalten eine mit zelligem Gewebe erfüllte und mit Blutgefäßen und Nerven versehene Pulpa (Fig. 488). Vasodentin kommt nur bei den Edentaten vor. Das Zement (Crusta petrosa) bedeckt in der Regel als dünner Überzug die Wurzel; nicht selten aber auch als eine mehr oder weniger dicke weiße Kruste die Krone, oder es füllt Vertiefungen und Zwischenräume derselben aus. Die Pulpa bildet an jungen Zähnen in Krone und Wurzel einen großen Hohlraum: bei mehrwurzeligen Zähnen verzweigt sie sich und sendet in jede Wurzel eine Verlängerung. An jungen in der Entwicklung begriffenen Zähnen ist die Pulpa an der Basis des Zahnes weit geöffnet und nach vorne verengt. Diese Beschaffenheit erhält sich dauernd bei allen wurzellosen, mit sog. persistenter Pulpa versehenen Zähnen. Zähne mit niedriger Krone, wohl entwickelten Wurzeln und an der Basis verengter Pulpa werden brachyodont, solche von hoher zylindrischer oder prismatischer Gestalt mit weit offener Pulpa, ohne oder mit nur im hohen Alter vorhandenen schwachen Wurzeln hypselodont oder hypsodont genannt.
Die Ausbildung der Säugetierzähne wird wesentlich durch ihre physiologische Funktion beeinflußt. Dienen sie lediglich zum Ergreifen und Festhalten der Nahrung, so entspricht der einfache Kegelzahn am besten dieser Aufgabe; werden sie als Waffe oder als Instrumente zur Beseitigung von Hindernissen verwendet, so verlängern sie sich, ragen aus der Mundhöhle vor und wandeln sich in Stoßzähne um. Ist die Nahrungszufuhr reichlich, und bedarf es zur Zerkleinerung derselben einer vollkommeneren Einrichtung, so tritt Arbeitsteilung und Spezialisierung des Gebisses ein. Gewissen Zähnen fällt die Funktion zu, die Nahrung zu ergreifen und festzuhalten, anderen dieselbe zu zerreißen oder zu zerschneiden oder zu zermalmen, und da diese Arbeiten meist in verschiedenen Teilen der Mundhöhle ausgeführt werden, so erleiden die vorderen Zähne andere Differenzierungen als die hinteren.
Ein gänzlicher Mangel an Zähnen tritt nur dann ein, wenn, wie bei den Walen, Ameisenfressern und Schnabeltieren eine Zerkleinerung der Nahrung überhaupt nicht erforderlich ist; eine gleichförmige Ausbildung aller Zähne (Isodontie) kommt nur bei Meersäugetieren vor, deren Zähne, wie die der meisten niederen Vertebraten, lediglich zum Festhalten der Nahrung dienen. Weitaus die meisten Säugetiere besitzen ein »anisodontes« differenziertes Gebiß, dessen Zähne sich in den beiden Kieferhälften symmetrisch wiederholen. Die im Zwischenkiefer und in der Symphyse des Unterkiefers eingepflanzten, stets einwurzeligen oder mit persistenter Pulpa versehenen Zähne heißen Schneidezähne (dentes incisivi J). Auf die Schneidezähne folgt jederseits im Oberkiefer unmittelbar hinter der Zwischen- und Oberkiefernaht ein meist konischer, ein- selten zweiwurzeliger Eckzahn (dens caninus oder laniarius C), dem im Unterkiefer ein ähnlich geformter Zahn entspricht, welcher bei geschlossenem Kiefer unmittelbar vor dem oberen Eckzahn eingreift. Hinter dem Eckzahn beginnen die Backenzähne (dentes molares), wovon die vorderen, meist etwas einfacher gebauten als Lückenzähne oder Praemolares (Molares spurii P), die hinteren als echte Molaren (Molares veri M) bezeichnet werden. Sind in einem Gebiß sämtliche Sorten von Zähnen vorhanden, so gilt dasselbe für vollständig; es ist unvollständig, wenn entweder Schneidezähne, Eckzähne oder Backenzähne fehlen.
Bei den Zahnwalen, Sirenen und den meisten Edentaten bleiben die einmal vorhandenen, meist sehr einfachen Zähne zeitlebens in Gebrauch. Diesen wenigen monophyodonten Formen steht die große Mehrzahl der übrigen diphyodonten Säuger gegenüber, bei denen ein Zahnwechsel stattfindet. Die Ersatzzähne bilden sich jedoch nicht wie bei Fischen, Amphibien und Reptilien das ganze Leben hindurch, sondern nur ein einzigesmal; sie verdrängen die zuerst vorhandenen sog. Milchzähne und treten als definitives oder Ersatzgebiß (Dauergebiß) an deren Stelle. Im Milchgebiß werden ebenfalls Schneidezähne, Eckzähne und Backenzähne unterschieden, wovon die beiden ersteren fast immer mit ihren Ersatzzähnen in Zahl und Form übereinstimmen, während die Milchbackenzähne in geringerer Anzahl vorhanden sind und in ihrer Ausbildung häufig mehr den hinteren echten Molaren als ihren Ersatzzähnen entsprechen. Den echten (d. h. hinteren) Molaren des definitiven Gebisses gehen niemals Milchzähne voraus, dagegen werden die Milchbackenzähne durch Praemolaren verdrängt. Nicht immer folgen sämtlichen Zähnen des Milchgebisses Ersatzzähne. Bei Huftieren treten z. B. öfters nur drei Praemolaren an Stelle von vier Milchbackenzähnen, ja bei den Beuteltieren wird meist nur ein einziger (der letzte) Milchbackenzahn ersetzt, die vorderen bleiben dauernd in Funktion und vertreten die Antemolaren der übrigen Säugetiere. Der Zahnersatz ist offenbar im Verschwinden begriffen, denn selbst bei den Säugetieren mit vollständigem Milchgebiß erfolgt der Zahnwechsel in einem früheren Altersstadium als bei ihren Ahnen im älteren Tertiär.
Die Zahl der Zähne ist bei monophyodonten Säugern höchst variabel. Bei den Diphyodonten sind nicht nur die beiden Kieferhälften symmetrisch bezahnt, sondern es herrscht auch eine bestimmte Regel in der Zahl und Verteilung der verschiedenen Zähne. Beinahe in sämtlichen Ordnungen und Familien der Säugetiere besitzen die geologisch jüngeren Formen weniger Zähne als die älteren Vertreter derselben Entwicklungsreihe. Eine Vermehrung der normalen Zahnzahl im Verlauf der phyletischen Entwicklung kommt dagegen bei diphyodonten Säugern niemals vor. Die Reduktion beginnt fast immer mit den am Ende einer bestimmten Kategorie stehenden Zähnen, z. B. mit dem ersten J, dem vordersten P oder dem letzten M und schreitet von da nach vorne oder hinten weiter.[119]
Form und Größe der verschiedenen Zähne hängt ab von ihrer Stellung, von ihrer Funktion und ihrer Ernährung. Als primitives Gebiß der Säugetiere darf man wohl eine aus konischen, einwurzeligen Zähnen bestehende, durch gleichmäßige Lücken getrennte Zahnreihe annehmen. Die geringste Abweichung vom ursprünglichen Kegelzahn zeigen die Eckzähne. Sie sind in den meisten Fällen konisch, einspitzig, öfters etwas rückwärts gekrümmt, einwurzelig (nur bei einigen fossilen Beuteltieren und Insectivoren zweiwurzelig) und dienen hauptsächlich zum Ergreifen und Zerreißen der Nahrung, sie sind darum auch bei Fleischfressern am stärksten entwickelt.
Den Schneidezähnen liegt in der Regel die Funktion ob, die Nahrung zu ergreifen und zu zerschneiden. Im ersteren Fall behalten sie konische Form und gleichen den Eckzähnen, im zweiten plattet sich die Zahnkrone in der Richtung von vorne nach hinten ab, erhält einen schneidenden Rand und wird meißel- oder schaufelförmig. Sie sind stets einwurzelig. Fallen den Schneidezähnen besondere Verrichtungen zu, so modifiziert sich demgemäß ihre Form. So werden die zum Nagen benützten Incisiven groß, gekrümmt, an der Krone zugeschärft, meist sehr lang und sind häufig nur auf der Vorderseite mit Schmelz bedeckt. Die starken, konischen oberen Schneidezähne der Sirenen werden zum Herausreißen von Wasserpflanzen benützt; die gewaltigen, mit persistenter Pulpa versehenen, entweder schmelzlosen oder nur mit einem Schmelzband bedeckten Stoßzähne der Proboscidier und des Narwal dienen als Waffe oder zur Beseitigung von Hindernissen etc. Mit der Größenzunahme und besonderen Differenzierung einzelner Schneidezähne verbindet sich in der Regel die Verminderung ihrer Zahl; gänzlichen Mangel an Schneidezähnen findet man bei den meisten Edentaten; bei den Ruminantiern gehen die oberen, bei den meisten Proboscidiern die unteren J durch Schwund verloren.
Bei weitem die mannigfaltigsten Verrichtungen kommen den Backenzähnen zu, und demgemäß weisen dieselben auch die größten Differenzierungen auf. Im allgemeinen haben sie die Tendenz, ihre Krone zu vergrößern, mit Spitzen, Höckern oder Leisten auszustatten und dadurch zum Zerkleinern der Nahrung geeigneter zu machen. Bei Fleisch- und Insektenfressern dienen die Backenzähne lediglich zum Zerschneiden der Beute und zum Zermalmen von Knochen. Zähne mit schmalen, verlängerten, zugeschärften und mehrspitzigen Kronen werden für die erste Verrichtung, breitere, mit spitzen Höckern versehene Kronen für die zweite am geeignetsten sein. Bei allen Insekten- und Fleischfressern haben demgemäß die besonders tätigen Backenzähne schneidende, mehrspitzige (sekodonte) Kronen und arbeiten wie die Blätter einer Schere, indem die unteren Zähne von den oberen umschlossen werden und letztere über die ersteren vorragen. Tiere, welche sich von gemischter Kost ernähren, haben bunodontes Gebiß, sie suchen die niedrigbleibende Krone der Backenzähne zu vergrößern und mit konischen Höckern auszustatten. Die Bewegung des Unterkiefers ist wie bei den Insekten- und Fleischfressern vertikal (orthal) und der Condylus quer gestellt.
Die verschiedenartigste Ausbildung erlangen die Backenzähne der reinen Pflanzenfresser. Auch hier zeigt sich das Bestreben, die Zahnkrone in die Breite und Länge zu vergrößern, mit Höckern auszustatten und zum Zerreiben der Nahrung geeignet zu machen. Die konischen Höcker des ursprünglich bunodonten Zahnes nehmen ⋁förmige Gestalt an, indem sich zwei konvergierende Grenzkanten bilden. Durch kräftige Entwicklung der Schenkel dieser ⋁förmigen Hügel und durch Zusammenstoßen ihrer Enden oder aber durch direkte Verbindung von zwei Höckern durch gerade oder gebogene Querkämme entstehen komplizierte, mit Jochen versehene, lophodonte Kronen. Einen wesentlichen Einfluß auf die Formierung und Richtung dieser Leisten und Joche übt die Bewegung des Unterkiefers; wird derselbe beim Kauen wie bei den meisten herbivoren Huftieren von außen nach innen (ektal) oder von innen nach außen (ental) bewegt, so sind die ⋁förmigen Höcker hintereinander nach der Längsachse des Zahnes angeordnet, und die Seitenleisten der Höcker, sowie die Querjoche stehen schief zu derselben. Sehr häufig runden sich die Spitzen der ⋁Höcker ab und bilden alsdann halbmondförmige (selenodonte) Joche. Schiebt sich der Unterkiefer beim Kauen wie bei den meisten Nagern von vorne nach hinten (proale Mastikation), wobei der Condylus in einer Längsrinne der Schläfenbeinbasis bewegt wird, so stellen sich die Joche quer zur Längsachse. Dieselbe Anordnung der Joche zeigt sich auch bei den Proboscidiern, deren Unterkiefer sich von hinten nach vorne (palinal) bewegt. Durch Fältelung der Schmelzjoche, durch Bildung von spornförmigen Fortsätzen, durch Einschaltung von Neben- und Zwischenhöckern, durch Entwicklung von Basalwülsten und schließlich durch Ansatz von Höckern und Jochen am hinteren Ende des Zahnes kann sowohl die bunodonte als auch die lophodonte Zahnkrone eine kompliziertere Ausbildung erlangen. Im allgemeinen sind die oberen Backenzähne, da sie über die des Unterkiefers vorragen, fast immer breiter als die unteren; die letzteren hingegen dehnen sich in der Längsrichtung aus.
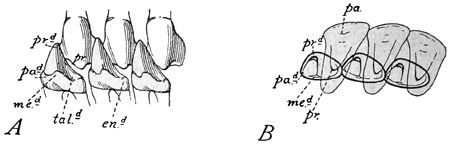
Fig. 489.
Hypothetische Entwicklung des trituberkulären Zahnes. A Obere und untere Molaren von innen. B obere und untere aufeinander gezeichnet. pr Protocon, pa Paracon, prd Protoconid, pad Paraconid, med Metaconid, end Entoconid, tald. Talonid. (Nach Gregory.)
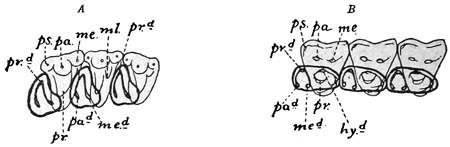
Fig. 490.
A Dryolestes. Oberer Jura. Untere M noch trituberkulär, ohne Hypoconid, obere M trituberkulär mit Parastyl. B Triisodon. Unterstes Eocän. Untere M tuberkulärsektorial. Beide Zahnreihen aufeinandergezeichnet; pr, pa, prd, pad, med, end wie in Fig. 489. me Metacon, ps Parastyl, ml Metaconulus, hyd Hypoconid. (Nach Gregory.)
E. Cope und H. F. Osborn haben versucht, die mannigfachen Modifikationen der Backzähne von dem einfachen kegelförmigen Reptilienzahn abzuleiten. Aus diesem »haplodonten« Zahn wird durch Hinzutreten von Nebenspitzen und durch beginnende Teilung der Wurzel der »protodonte« Zahn. Wenn seine Nebenspitzen fast ebenso groß geworden sind wie die ursprüngliche Hauptspitze, so entsteht entweder der »trikonodonte« Zahn, dessen Spitzen sämtlich in einer geraden Linie angeordnet sind, oder der »trituberkuläre« Zahn, dessen Nebenspitzen seitlich von der Hauptspitze stehen und mit ihr alternieren. Beide Zahntypen besitzen je zwei Wurzeln, jedoch erfolgt mit fortschreitender Komplikation des oberen trituberkulären Zahnes eine Zweiteilung seiner Außenwurzel.
Der trikonodonte Zahn ist auf ganz wenige Säugetiere beschränkt und hat auch keineswegs die Bedeutung für die weitere Entwicklung der Molaren, welche ihm früher beigelegt wurde, denn dieser liegt unzweifelhaft der trituberkuläre Zahntypus zugrunde, dessen erste Anfänge bereits bei gewissen Cynodontia, den reptilienartigen Vorläufern der Säugetiere wahrnehmbar sind.
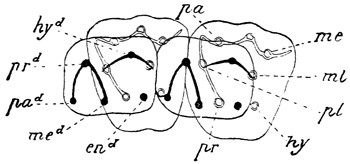
Fig. 491.
Entwicklung der Huftiermolaren. Obere und untere M aufeinandergezeichnet. pr, pa, me, ml, prd, pad, med, end, hyd wie in Fig. 490. hy Hypocon, pl Protoconulus. (Nach Osborn.)
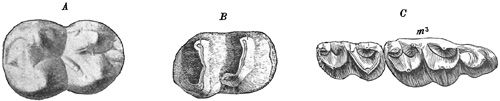
Fig. 492.
A Elotherium, unterer M bunodont, B Hyrachyus, unterer M lophodont, C Anoplotherium, Außenhügel halbmondförmig. Innenhügel konisch. M3 mit drittem Halbmond.
Der »trituberkuläre« Zahn — »Trigon« im Oberkiefer, »Trigonid« im Unterkiefer — genügte zwar, so lange die Tiere geringe Körpergröße besaßen und sich hauptsächlich von Insekten nährten. Die allmähliche Zunahme der Körperdimensionen und die hiermit verbundene Anpassung an Fleischnahrung oder gemischte Kost erforderte jedoch eine weitere Verstärkung der Backenzähne, welche dadurch bewerkstelligt wurde, daß an den unteren Molaren ein zwei- oder dreispitziges »Talonid« als Antagonist der Hauptspitze des entsprechenden oberen Molaren entstand und an den oberen Molaren die beiden Außenspitzen sich vergrößerten und außerdem zwei kleine Zwischenspitzen sich bildeten, von welchen die hintere bei gemischter Kost öfter in einen zweiten Innenhöcker umgewandelt wurde; dieser zweite Innenhöcker erweist sich aber auch nicht selten als eine aus dem Basalband hervorgegangene Neubildung. Die einzelnen Bestandteile des fünf- resp. sechshöckerigen Zahnes führen folgende Namen:
A. Obere trituberculäre Molaren.
abgekürzt
Vordere Innenspitze oder Höcker — Protoconus — pr.
hintere » » » — Hypoconus — hy.
vordere Außenspitze » » — Paraconus — pa.
hintere » » » — Metaconus — me.
vordere Zwischenspitze » » — Protoconulus — pl.
hintere » » » — Metaconulus — ml.
B. Untere tuberculärsektoriale Molaren.
Vordere Außenspitze oder Höcker — Protoconid — prd.
hintere » » » — Hypoconid — hyd.
vordere unpaare Spitze » » — Paraconid — pad.
hintere » » » — Mesoconid — msd.
vordere Innenspitze » » — Metaconid — med.
hintere » » » — Entoconid — end.
Die weitere Differenzierung äußert sich an den oberen Molaren in dem Auftreten von Außenpfeilern — Parastyl, Mesostyl, Metastyl — bei omnivorer oder herbivorer Lebensweise in Vergrößerung des Hypoconus und in Verschmelzung des vorderen Zwischenhöckers mit dem Protoconus (Fig. 493 A) quadrituberkulärer Zahn, oder es verbinden sich die Zwischenhöcker mit dem benachbarten Innenhöcker zu je einem Querjoch (Fig. 493 C) lophodonter Zahn. An den unteren Molaren verschwindet das Paraconid und alle Innen- und Außenhöcker werden gleich groß, wobei auch hier die Höcker sich paarweise zu Jochen verbinden können (Fig. 492 B). Am letzten unteren Molaren entsteht nicht selten ein dritter Lobus (Fig. 492 C). Durch Hinzutreten von Querjochen kommen polylophodonte Zähne (Fig. 495) zustande. In ähnlicher Weise könnte man sich auch die multituberkulären Zähne (Fig. 494) entstanden denken, allein sie treten bereits gleichzeitig mit dem Trituberkulär- und Trikonodontentypus auf, was sich mit der Ableitung von einem dieser beiden Typen nicht gut vereinbaren läßt. Bei den Fleischfressern hingegen verkümmern nach und nach die oberen sowie die beiden letzten unteren Molaren, desgleichen auch das Metaconid und Talonid des ersten unteren Molaren. Dafür wird jedoch Paraconid und Protoconid sowie der letzte obere Prämolar verstärkt und beide Zähne wirken zusammen als eine Schere.
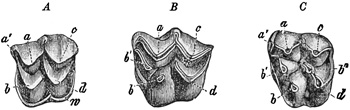
Fig. 493.
Vier-, fünf- und sechshöckerige obere Molaren von unten. A Prodremotherium, B Anoplotherium, C Lophiotherium.
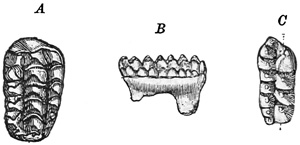
Fig. 494.
Multituberkuläre Backzähne von Allotherien. A, B Oberkieferzahn von Cimolomys. C Unterkieferzahn von Cimolomys. 3/1 nat. Gr. (Nach Marsh.)
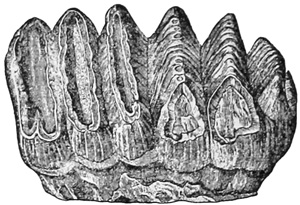
Fig. 495.
Polylophodonter oberer M von Stegodon. Ca. 1/2 natürl. Größe.
Die Praemolaren erlangen in der Regel nicht den hohen Grad der Differenzierung wie die Molaren. Sie sind meist einfacher, und selbst wenn sie ihnen gleich werden, ist doch die Reihenfolge der neu auftretenden Höcker eine andere als bei den Molaren, weshalb auch die einzelnen Höcker nicht mit denen der Molaren homologiiert werden können. Scott[120] nennt sie:
Untere P. Obere P.
1 Außenhöcker Protoconid. 1 Außenhöcker Protoconus.
Vorderhöcker Paraconid. 1 Innenhöcker Deuteroconus.
1 Innenhöcker Deuteroconid. 2 Außenhöcker Tritoconus.
2 Außenhöcker Metaconid. 2 Innenhöcker Tetartoconus.
2 Innenhöcker Tetartoconid.
Die Systematik der Säugetiere ist durch die Entdeckung zahlreicher fossiler Formen wesentlich beeinflußt worden, denn einerseits werden nicht selten durch sie scheinbar nicht verwandte lebende Gattungen und selbst Familien und Ordnungen miteinander verbunden und die vermeintlichen scharfen Grenzlinien zwischen ihnen mehr oder weniger verwischt, anderseits kamen aber auch fossile Formen zum Vorschein, für welche nicht bloß besondere Familien, sondern sogar in einem Falle eine besondere Ordnung errichtet werden mußte, weil sie den übrigen Säugetieren durchaus fremdartig gegenüberstehen. In weitaus den meisten Fällen läßt sich die Stammesgeschichte der einzelnen Gattungen, Familien und Ordnungen mit viel größerer Sicherheit ermitteln als bei den übrigen Wirbeltieren, in keiner anderen Abteilung des Tierreiches finden wir ein so massenhaftes und geeignetes Material zur Aufstellung genetischer Formenreihen.
Was die Abstammung der Säugetiere von anderen Vertebraten betrifft, so kommen Vögel und Fische als deren Ahnen nicht in Betracht. Auch die Amphibien, von welchen sie Huxley ableiten wollte, stehen den Säugetieren viel ferner als die Reptilien. Unter diesen zeigen die Theromorpha so viele Beziehungen zu den Säugetieren, daß schon Owen und Cope sie als deren Vorläufer bezeichneten, und durch die neuesten Untersuchungen Osborns wird es zur völligen Gewißheit, daß die Säugetiere von synapsiden Reptilien, und zwar von Cotylosauriern und Theriodontiern abstammen, welche ihrerseits aus Stegocephalen hervorgegangen sind.
Die Säugetiere werden in der Regel nach ihrer Embryonalentwicklung in zwei Unterklassen, Eplacentalia und Placentalia eingeteilt. Die ersteren enthalten die Ordnungen der Monotremata und Marsupialia, die letzteren die Ordnungen der Insectivora, — inkl. Tillodontia — Chiroptera, Carnivora, Cetacea, Rodentia, Edentata, Ungulata, Notoungulata, Subungulata — inkl. Sirenia — und Primates.
A. Unterklasse. Eplacentalia. Embryonalentwicklung ohne Placenta.
1. Ordnung. Monotremata.[121] Kloakentiere. (Ornithodelphia Blv.)
Brustgürtel mit selbständigem Coracoid, Praecoracoid und Interclavicula. Becken mit Beutelknochen. Schulterblatt ohne Crista. Kiefer gestreckt, zahnlos oder mit Zahnrudimenten. Fortpflanzung durch Eier. Milchdrüsen ohne Zitzen, auf getrennten Drüsenfeldern mündend. Harnröhren und Genitalgänge in die Kloake mündend, welche in das untere Ende des Mastdarms führt. Körpertemperatur nicht überall gleich.
So interessant diese Ordnung ist hinsichtlich ihrer vielen Anklänge an Reptilien einerseits und ihrer hochgradigen Spezialisierung anderseits, so hat sie doch für die Paläontologie nur geringe Bedeutung, denn die wenigen bekannten sicheren Überreste stammen aus dem Pleistocän von Australien und gehören den beiden noch lebenden Gattungen Ornithorhynchus (Fig. 496) — in der Jugend mit 22 M — und Echidna an. Es ist aber nicht ausgeschlossen, daß manche der im folgenden erwähnten mesozoischen Säugetiere Monotremen waren, wenigstens die Protodonta.
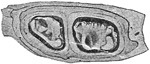
Fig. 496.
Ornithorhynchus jung. Molaren des linken Unterkiefers. 5/2 nat. Gr. (Nach Osborn.)
2. Ordnung. Marsupialia.[122] (Didelphia Blv., Metatheria Huxley.)
Verschiedenartig bezahnte heterodonte Pflanzen- oder Fleischfresser mit sehr unvollständigem Zahnwechsel. Schultergürtel ohne Coracoid, Becken mit Beutelknochen. Zitzen der Milchdrüsen meist von einer Hautfalte umschlossen, welche einen Beutel bildet, worin die ohne plazentale Entwicklung in unreifem Zustande geborenen Jungen längere Zeit getragen werden.
Die Beuteltiere bilden einen ziemlich großen Formenkreis, in welchem Fleisch- und Insektenfresser sowie huftier- und nagerähnliche Typen vertreten sind, und diese mannigfachen Differenzierungen äußern sich nicht bloß im Gebiß sondern auch im Skelett. Das Gehirn ist klein, die glatten Hemisphären des Großhirns bedecken weder die Sehhügel und Riechlappen noch das Kleinhirn. Die Nasenbeine sind groß, die Jochbogen vollständig, die Augenhöhlen hinten offen. An der Bildung der Gehörkapsel beteiligt sich das Alisphenoid, seltener das Mastoid und das halbringförmige Tympanicum. Der harte Gaumen ist stets von größeren oder kleineren Öffnungen durchbohrt. Die hintere Ecke des Unterkiefers ist nach innen eingebogen.
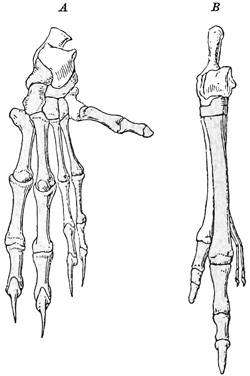
Fig. 497.
A Trichosurus, Hinterfuß mit fünf fast gleichgroßen Zehen. B Macropus, I-III Zehe reduziert (nach Dollo.).
Das Gebiß erinnert teils an das von Herbivoren oder von Nagern, teils an das von Insectivoren oder von Fleischfressern. Bei den ersteren ist die Zahl der J und P sowie der C reduziert, dafür ist jedoch in jedem Kiefer ein J sehr stark ausgebildet, die letzteren haben ein vollständiges Gebiß, in welchem meist bis zu 54 J vorhanden und die C kräftig entwickelt sind und zuweilen je zwei Wurzeln besitzen. Die P haben in der Regel einen sehr einfachen Bau und geringe Größe, nur der hinterste ist meist groß und oft stark spezialisiert. Die meist in der Vierzahl vorhandenen M sind entweder sekodont, bunodont oder lophodont. Der Zahnwechsel beschränkt sich auf den letzten P, aber die Embryonen der lebenden Beuteltiere besitzen viel mehr Anlagen von Zähnen als im definitiven Gebiß vorkommen.
Charakteristisch für die Beuteltiere ist die Anwesenheit von je einem stabförmigen Knochen am Vorderrand des Schambeins. Diese Beutelknochen finden sich bei beiden Geschlechtern, sind aber bei den Thylacyniden durch Faserknorpel ersetzt. Die Länge der Hinterbeine übertrifft häufig die der Vorderbeine. Der Hinterfuß (Fig. 497) hat fünf oder vier Zehen, von denen die vierte stets am längsten ist, während die zweite und dritte bei Herbivoren sehr dünn werden können und stets von einer gemeinsamen Haut umgeben sind. Jedoch bestehen zwischen dieser spezialisierten und der ursprünglich fünfzehigen Extremität vielfache Übergänge. Der Hallux steht öfters den übrigen Zehen rechtwinklig gegenüber oder verkümmert ganz. Dollo leitet alle Marsupialier von fünfzehigen arborikolen Formen ab.
Mit Ausnahme der in Amerika verbreiteten Didelphidae und der südamerikanischen Caenolestidae sind die Beuteltiere gegenwärtig auf Australien und die benachbarten Inseln beschränkt. Die pleistocänen Formen hatten dieselben Wohnsitze wie die lebenden. Dagegen besaß im Tertiär und in der Jurazeit nicht bloß Nordamerika — hier auch in der Kreide — sondern auch Europa eine Anzahl fossiler Marsupialier, und aus dem Tertiär von Südamerika kennt man eine ziemliche Menge verschiedenartiger Typen. Man unterscheidet am zweckmäßigsten drei Unterordnungen, die Allotheria, die Diprotodontia und die Polyprotodontia, obschon die Caenolestidae zwischen den beiden letzteren den Übergang bilden.
1. Unterordnung. Allotheria. Marsh. Multituberculata Cope.[123]
Kleine ausgestorbene herbivore oder omnivore Säuger mit vielhöckrigen M, deren Höcker in zwei oder drei Längsreihen angeordnet sind. P entweder den M ähnlich, aber einfacher oder seitlich zusammengedrückt. In jedem Kiefer ein J kräftig, nagezahnartig entwickelt. Ohne C. Unterkiefer meist mit einwärts gebogenem Eckfortsatz. Coracoid vielleicht selbständig ausgebildet.
Die Allotheria finden sich in der Trias von Europa und Südafrika, im Jura von Europa und Nordamerika, in der Kreide von Nordamerika und im untersten Tertiär von Europa und Nordamerika. Auch gehören hierher möglicherweise einige Formen aus dem Eocän von Südamerika.
Von den meisten Gattungen liegen nur vereinzelte Zähne, Unterkiefer, selten Oberkiefer und Schädelteile vor. Nur von Ptilodus kennt man den Schädel und einige Knochen. Die systematische Stellung ist daher bei manchen sehr unsicher, der größere Teil gehört jedoch zu den Marsupialiern, wennschon die Zähne meist eher an die rudimentären Backenzähne von Ornithorhynchus erinnern. Der Astragalus von Polymastodon gleicht nach Cope dem von Känguru.
1. Familie. Tritylodontidae Cope.
Schnauze abgestutzt, Zwischenkiefer mit je einem starken C ähnlichen J und dahinter ein kleiner stiftförmiger J. P den M ähnlich, aber einfacher, M mit drei Höckerreihen. Trias von Südafrika und Europa.
Tritylodon Owen (Fig. 498.) Trias Karrooformation Südafrika. Gehört nach Seeley zu den Reptilien (Theriodontia).
Triglyphus Fraas. Nur winzige viereckige Zähnchen mit zwei oder drei Höckerreihen bekannt. Im rhätischen Bonebed von Hohenheim bei Stuttgart.
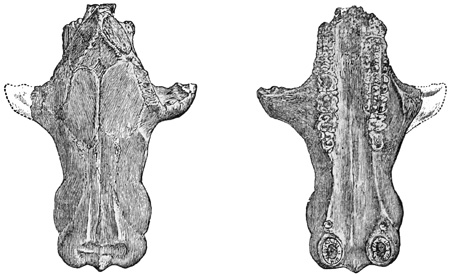
Fig. 498.
Tritylodon longaevus Owen. Trias von Basutoland. Schädel von oben und von unten. 2/1 nat. Größe. (Nach Owen.)
2. Familie. Plagiaulacidae Gill.
Zwischenkiefer mit ein bis drei J, Unterkiefer mit einem J; J1 in beiden Kiefern nagezahnähnlich. Obere P drei- bis fünfhöckerig, der letzte manchmal mit mehr Höckern. Untere P seitlich zusammengedrückt, schneidend und mit vielen Einkerbungen versehen. Untere M mit nur zwei, obere mit drei, selten mit nur zwei Höckerreihen. Unterkiefer viel kürzer als die Schnauze. Gelenk bis auf den Eckfortsatz ausgedehnt.
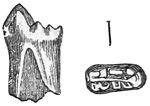
Fig. 499.
Microlestes antiquus Plieninger. Backzahn aus dem Bonebed von Echterdingen, Württemberg. 3/1.
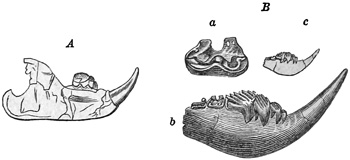
Fig. 500.
Plagiaulax Becclesi Falc. Purbeck-Schichten von Swanage, Dorsetshire. A Unterkiefer (1/1). B Plagiaulax minor Owen, ebendaher. a Molar vergrößert, b Unterkiefer vergrößert, c derselbe in nat. Gr. (Nach Falconer.)
Microlestes Plieninger (Hypsiprymnopsis Dawkins). (Fig. 499.) Nur kleine, länglich vierseitige, in der Mitte vertiefte und außen und innen mit Höckern versehene Zähnchen aus dem rhätischen Bonebed von Württemberg und Sommerset bekannt.
Plagiaulax Falconer (Bolodon Owen). (Fig. 500, 501.) 1.1.4.3.1.0.4.3. Unterkiefer mit hohem Kronfortsatz und niedrigem, über den Eckfortsatz sich erstreckenden Condylus. Vorderster oberer J vertikal nach unten, unterer J schräg nach oben und vorne gerichtet. Obere P aus zweireihig angeordneten Höckern bestehend, letzter P M-artig, untere P von vorne nach hinten größer werdend, schneidend, blattartig, mit gerieften Seitenflächen. Obere und untere M mit je zwei Reihen von Höckern. Purbeck von England.
Allodon Marsh. Oberkiefer ähnlich Plagiaulax, jedoch mit 3 J. Oberer Jura. Wyoming. Allacodon Marsh (Fig. 502.) Obere Kreide. Nordamerika.
Ctenacodon Marsh. (Fig. 503.) Untere P am Oberrand schwach gestreift. Obere M mit nur zwei großen Außenhöckern. Ober. Jura. Wyoming.
Neoplagiaulax Lemoine (Liotomus Cope). Unterkiefer nur mit einem großen, gerieften P und zwei M. Untereocän von Reims und Neumexiko.
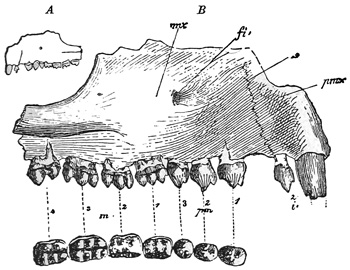
Fig. 501.
Bolodon crassidens Owen. Purbeck-Schichten von Dorsetshire. A Oberkieferfragment in nat. Gr. B dasselbe in vierfacher Vergrößerung. (Nach Osborn.) mx Oberkiefer, pmx Zwischenkiefer, s Naht zwischen Ober- und Zwischenkiefer, fi Foramen infraorbitale, pm Lückenzähne, m Backzähne.
Fig. 502.
Allacodon pumilus Marsh. Ob. Kreide. Wyoming. Die drei Prämolaren des Oberkiefers a in nat. Gr. b in dreifacher Größe. (Nach Marsh.)
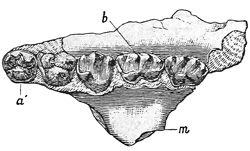
Fig. 503.
Ctenacodon potens Marsh. Ob. Jura. Wyoming. Rechter Oberkiefer von unten. 4/1. (Nach Marsh) a' erster, b vierter Prämolar, m Jochbogen.
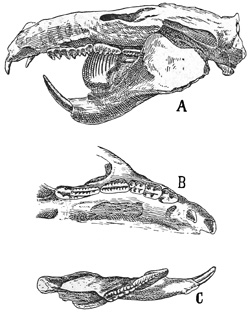
Fig. 504.
Ptilodus gracilis Gidley. Unterstes Eocän. Fort Unionbed Montana. A Schädel und Unterkiefer. B Oberkiefer (Unterkiefer). 2/3 nat. Gr. (N. Gidley.)
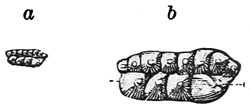
Fig. 505.
Cimolomys (Cimolodon) nitidus Marsh. Obere Kreide. Wyoming. (Nach Marsh.) a vorletzter unterer Backzahn.
Ptilodus Cope (Chirox Cope). (Fig. 504.) 1.1.4.21.0.2.2. Schädel niedrig und flach mit langer breiter Schnauze, Gaumen mit großen Lücken, Kiefergelenk nahe dem stark verbreiterten Hinterhaupt. Oberer C ähnlich aber kleiner als J, P1 mit 3, P2 mit 4, P3 mit 6 Höckern, P4 langgestreckt mit zahlreichen Höckern. M1 schmäler als P4. P3 reduziert, P4 kräftig, an beiden Seiten gerieft. M1 mit mehr Höckern als M2. Humerus massiv, mit engem Entepicondylarforamen. Auch Becken, Ober- und Unterschenkel bekannt. Untereocän von Montana und Neumexiko.
Cimolomys Marsh (Cimolodon, Nanomys, Marsh, Ptilodus, Halodon Osborn). (Fig. 505.) Obere M mit drei Höckerreihen. Obere Kreide. Laramiebed von Wyoming und Montana und mittlere Kreide von Nordwest-Canada.
Meniscoëssus Cope (Dipriodon, Tripriodon, Selenacodon, Oracodon Marsh). (Fig. 506.) Fast nur isolierte Zähne bekannt. Obere M mit drei Höckerreihen. Obere Kreide. Laramiebed von Nordamerika.
3. Familie. Polymastodontidae Cope.
Beide Kiefer jederseits mit einem starken, nagezahnartigen J und zwei großen M, vor denen sich ein kleiner einfacher P befindet, der von J durch eine lange Zahnlücke getrennt ist. Hinter dem großen oberen J noch ein kleiner J vorhanden. Die unteren M mit zwei, die oberen mit drei Längsreihen von stumpfen Höckern. Unterkieferecke umgebogen. Kiefergelenk fast in der Hinterhauptsfläche gelegen. Im untersten Tertiär, Puerco von Neu-Mexiko.
Polymastodon Cope (Taeniolabis, Catopsalis Cope). (Fig. 507.) 2.0.1.2.1.0.1.2. Von den Dimensionen eines Bibers.
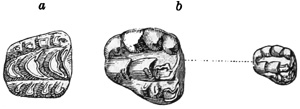
Fig. 506.
A Meniscoëssus conquistus Cope. Oberer Molar aus der obersten Kreide (Laramie-Stufe) von Dakota. 2/1. (Das Cope'sche Original nach Osborn.)
B Tripriodon coelatus Marsh. Ob. Kreide. Wyoming. Wahrscheinlich letzter oberer Molar in natürlicher und in doppelter Gr. (Nach Marsh.)
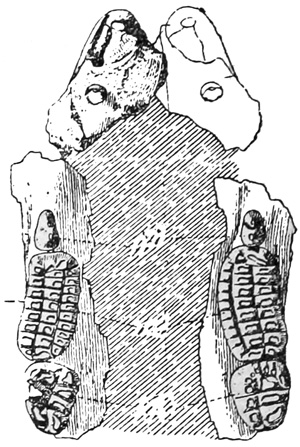
Fig. 507.
Polymastodon attennatus Cope. Unterstes Eocän. Neu-Mexiko. Gaumen mit beiden Zahnreihen. Nat. Gr. (Nach Osborn.)
4. Familie. Polydolopidae. Ameghino.
Untere J fast horizontal. P3 und P4 und unterer P4 höher als die M und meist als gezähnelte Schneide entwickelt. Obere M mit zwei oder drei, untere stets mit zwei Höckerreihen und von vorne nach hinten kleiner werdend. Meist drei, selten fünf Höcker in einer Reihe. 1.0.2.3.1.0.2.3.
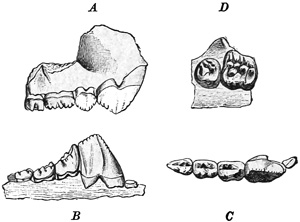
Fig. 508.
Polydolops Thomasi Ameghino. Eocän. Notostylops-Schichten. Patagonien. A Ob. Zahnreihe, B unt. Zahnreihe von außen, C von oben. D Pliodolops primulus Ameghino. Ebenda. Obere M. 2/1 nat. Gr. (nach Ameghino.)
Im älteren Tertiär von Patagonien (Notostylops-Schichten). Sie sind wahrscheinlich die Nachkommen von Plagiaulaciden. Ihre Verwandtschaft mit den Caenolestiden ist schon wegen ihrer beträchtlichen Größe unwahrscheinlich, wenn auch zwischen Polydolops und Abderites einige Ähnlichkeit vorhanden ist.
Von den zahlreichen Gattungen, welche Ameghino meist nur auf einzelne Zähne begründet hat, zeichnen sich Orthodolops und Amphidolops durch undeutlich, Polydolops (Fig. 508), Pseudolops und Pliodolops durch scharf von einander geschiedene Höcker aus. An den oberen M von Pliodolops (Fig. 508 D) stehen sie in mehreren Reihen.
Propolymastodon (Promysops?) Ameghino 1.0.2.3.1.0.1.3. unterscheidet sich von den übrigen Gattungen durch den Besitz von nur einem, überdies ganz einfachen, ungekerbten P.
Eommanodon Ameghino. Miocän Colpodon-Schichten. Systematische Stellung unsicher.
2. Unterordnung. Diprotodontia. Owen.
Meist Pflanzenfresser mit je vier vierhöckerigen oder zweijochigen M. P den M ähnlich oder blattartig und schneidend. C fehlend oder sehr schwach entwickelt. Oben 4-1 J, davon der vorderste vergrößert, unten nur ein einziger aber sehr kräftiger nagezahnartiger J.
Die Diprotodontia sind wahrscheinlich Nachkommen von Polyprotodontia, welche sich einer gemischten oder ausschließlich vegetabilischen Kost angepaßt haben. Mit Ausnahme der südamerikanischen Gattung Caenolestes sind sie jetzt auf Australien beschränkt, wo sie auch im Pleistocän vorkommen. Aus dem Tertiär von Patagonien kennt man eine Anzahl erloschener Gattungen und Arten.
1. Familie. Caenolestidae. Trouessart. (Paucituberculata Ameghino.)
Kleine, höchstens mittelgroße Beutler mit 3-4 kleinen vertikalen oberen J und einem großen horizontal gestellten unteren J. Dahinter drei bis vier einfache stiftförmige Lückenzähne, von denen einer im Oberkiefer zuweilen als kräftiger C entwickelt ist. Obere P2 und P3 klein, P4 größer und schneidend wie die beiden unteren P. M vierhöckerig, von vorne nach hinten kleiner werdend. Unterer M1 häufig vergrößert, fünfhöckerig und zusammen mit dem oberen P4 als Schere funktionierend, die übrigen M vierhöckerig lophodont. Obere M mit schwachem zweiten Innenhöcker. Fuß nicht syndaktyl. Lebend und fossil in Südamerika.
1. Unterfamilie. Caenolestinae.
4.1.3.4.1.4-5.2.4. Kein P oder M schneidend ausgebildet. Untere M tuberkulärsektorial. P und M denen von Beutelratten ziemlich ähnlich.
Caenolestes Thomas. Lebend in Ecuador.
Garzonia (Fig. 510) und Halmarhiphus Ameghino aus dem Miocän von Santacruz, die erstere Gattung mit trituberkulären oberen M.
Stilotherium (Fig. 510 B) und Cladoclinus Ameghino (Pitheculites Clenialites) Amegh. Miocän von Patagonien.
Zygolestes Ameghino Pliocän. Parana-Stufe von Argentinien.
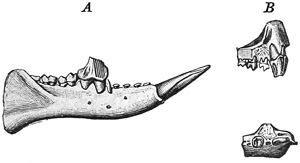
Fig. 509.
Abderites meridionalis Ameghino. Miocän. Santa Cruz. Patagonien. A Unterkiefer, B Oberkiefer. Nat. Gr. (Nach Ameghino.)
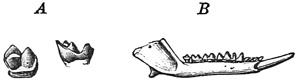
Fig. 510.
A Garzonia typica Ameghino. Miocän. Santa Cruz. Oberer M von unten und hinten. 3/2 nat. Gr. B Stilotherium dissimile Amegh. Ebenda. Unterkiefer, nat. Gr. (nach Ameghino.)
2. Unterfamilie. Palaeothentinae.
?.1.3.4.1.4-3.1.4. Oberer P4 und unterer M1 zu einer Schere umgestaltet. Im Unterkiefer hinter J1 drei bis vier kleine Lückenzähne. Schädel, namentlich Hinterhaupt stark verbreitert. Jochbogen weit vorspringend.
Palaeothentes Moreno (Fig. 511) (Epanorthus, Metepanorthus, Parepanorthus Ameghino). Miocän von Patagonien. Alle M fast gleich groß. P kräftig. Callomenus, Decastis, Acdestis Ameghino. Ebenda. M von sehr ungleicher Größe. Dipilus, Metriodromus, Halmaselus, Pichipilus, Essoprion Amegh. ganz unvollständig bekannt. Palaepanorthus Amegh., Untermiocän Pyrotheriumschichten.
3. Unterfamilie. Abderitinae.
???? 1.4.1.4. P4 vergrößert, unterer M1 schneidend ausgebildet und an beiden Seiten mit Riefen versehen, die übrigen M bunolophodont, vierhöckerig.
Der untere M1 hat große Ähnlichkeit mit dem P4 der Allotheria, aber er besitzt ein Talonid, das aber bei den Arten aus den Colpodonschichten noch schwach ist. Miocän von Patagonien.
Abderites Ameghino. (Fig. 509.) Zwischen dem J1 und dem kleinen, seitlich stehenden P4 vier Lückenzähne. Miocän-Santacruz.
Parabderites Ameghino. Zwischen J1 und dem relativ großen P4 fünf Lückenzähne. Miocän Colpodonschichten und Pyrotheriumschichten.
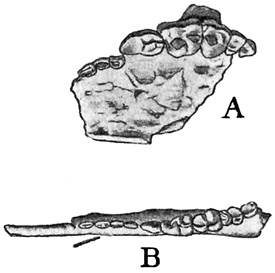
Fig. 511.
A Palaeothentes intermedius Ameghino. Obere Backenzähne. B P. minutus Am. Untere Backenzähne. Obermiocän. Santa Cruz. 3/2 nat. Gr. (n. Sinclair.)
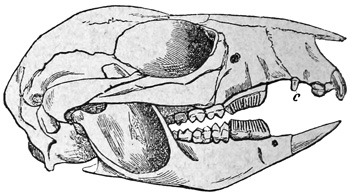
Fig. 512.
Bettongia Grayi Gould. Schädel. Lebend. Australien.
2. Familie. Phalangeridae.
Mannigfach spezialisierte Beuteltiere, teils omnivor, teils herbivor, teils zum Springen, teils zum Klettern und sogar zuweilen zum Fliegen befähigt. Gebiß niemals vollständig. 3.1.3-1.4.1.0.3-1.4. Oberer J1 größer als die übrigen, untere J horizontal, nagezahnähnlich. Oberer C stets klein, P4 in beiden Kiefern in der Regel schneidend, öfters gerieft, oder sämtliche P M-artig. M vierhöckerig, Höcker gleich groß und paarweise zu Jochen verbunden. Vorderbeine meist kürzer als die Hinterbeine, an welchen die vierte Zehe stets am kräftigsten ist. Zweite und dritte Zehe reduziert und von einer gemeinsamen Haut umgeben. Schwanz meist lang und kräftig und teils als Greiforgan, teils zum Abschnellen dienend.
Lebend in Australien, Neuseeland, zum Teil auch in Neuguinea. Fossil im Pleistocän von Australien.
1. Unterfamilie. Hypsiprymninae. Känguruh-Ratten.
Langgeschwänzte Beutler, höchstens von Kaninchengröße. 3.1.1.4.1.0.1-2.4. P4 in beiden Kiefern schneidend und an beiden Seiten gerieft. Extremitäten gleich lang. Hinterfuß meist fünfzehig.
Aepyprymnus und Bettongia (Fig. 512), letztere ohne Hallux, lebend in Australien, fossil im Pleistocän von Neu-Süd-Wales. Hypsiprymnodon mit zwei P.
Wynyardia Baldwin. Tertiär (Turritella Sandstein von Tablecap) vereinigt im Schädel- und Extremitätenbau Merkmale der Diprotodontia und Polyprotodontia. Systematische Stellung wegen des Fehlens der Zähne durchaus unsicher.
2. Unterfamilie. Thylacoleoninae. Owen.
3.1.3.1.1.0.2.3. Große ausgestorbene Beutler mit kräftigem ersten Incisivenpaar und langen schneidend entwickelten P4. Die Lückenzähne und M stark reduziert.
Thylacoleo Owen. (Fig. 513.) Schädel dem des Löwen an Größe gleich kommend, hinten breit, Schnauze stark verkürzt und verschmälert. Jochbogen sehr kräftig, weit ausladend. Skelett unvollständig bekannt. Endphalangen der Füße große stark gekrümmte Krallen. Im Pleistocän von Australien, namentlich in Knochenhöhlen.
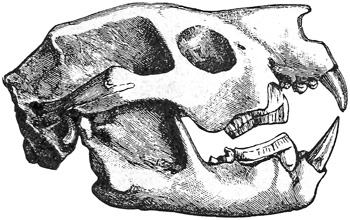
Fig. 513.
Thylacoleo carnifex. Owen. Schädel von der Seite. 1/5 nat. Gr. Pleistocän. Queensland (nach Owen.)
3. Unterfamilie. Phalangerinae. Kletter- und Flugbeutler.
3.1.3-2.4.1.0.2-1.4. Vorder- und Hinterextremität fünfzehig, an der letzteren die zweite und dritte Zehe dünn und miteinander verbunden.
Einige der in Australien lebenden Gattungen sind auch im Pleistocän vertreten.
4. Unterfamilie. Macropodinae. Kängurus.
3.0-1.2-1.4.1.0.2-1.4. Obere J meißelartig, untere nagezahnähnlich, horizontal. P und M mit hohen Querjochen. Hinterbeine stark verlängert, fünfte, zweite und dritte Zehe reduziert, und die beiden letzteren in einer gemeinsamen Haut steckend. Hallux rudimentär.
Neben den in Australien lebenden Gattungen Macropus Shaw (Halmaturus Illiger) finden sich im dortigen Pleistocän eine Anzahl fossiler Formen (Sthenurus, Palorchestes etc.) von zum Teil riesiger Größe.
3. Familie. Phascolomyidae. Wombate.
Nagerähnliche plumpe Pflanzenfresser mit dickem Kopf, kurzem Hals, kurzen Beinen und stummelartigem Schwanz. 3-1.0.1.4.1.0.1.4. J oben und unten verlängert, Backenzähne brachyodont oder prismatisch. Extremitäten plump, fünfzehig, vordere und hintere fast gleich lang. Lebend und im Pleistocän von Australien.
Phascolarctus Blainv. 31 J. Backenzähne brachyodont mit je vier, teils ⋁förmigen, teils mehr konischen Höckern.
Phascolomys Geoffroy. 11 J. Backenzähne zylindrisch, aus zwei Querjochen bestehend, von denen jedes aus zwei ⋁förmigen Höckern zusammengesetzt ist.
Phascolonus Owen, fossil im Pleistocän, unterscheidet sich nur durch seine viel beträchtlichere Größe.
Nothotherium und Diprotodon Owen. 21 J. (Fig. 514.) Von der letzteren Gattung, welche fast Rhinozerosgröße besaß, kennt man eine Anzahl Skelette vom Kallabonnasee. Am Hinterfuß sind alle Knochen der ersten Zehe zu einem einzigen Stück verschmolzen. Hand und Fuß bestehen praktisch fast nur aus den vergrößerten Carpalien und Tarsalien und dem fünften Metapodium. P und M aus je zwei durch ein breites Tal getrennten Querjochen gebildet. Beide Gattungen nur fossil.
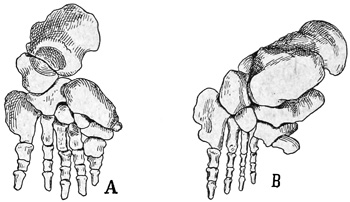
Fig. 514.
Diprotodon australis Owen. Pleistocän. Kallabonna-See. Australien. A rechter Vorderfuß, B rechter Hinterfuß, stark verkleinert. (Nach Stirling und Zietz.)
3. Unterordnung. Polyprotodontia. Owen.
Fleisch- oder Insektenfresser von meist geringer oder mittlerer Größe. Gebiß vollständig. Im Oberkiefer 4-5, selten 3, im Unterkiefer 3-4 kleine J. C spitz und hoch, zuweilen zweiwurzelig, P einspitzig, seltener mit Nebenspitzen, meist zweiwurzelig, M bei fossilen Formen öfters in größerer Anzahl, bei den rezenten in Vierzahl vorhanden, trikonodont oder trituberkulär.
Zu den polyprodonten Beuteltieren gehören die australischen Myrmecobiidae, Peramelidae, Dasyuridae, die amerikanischen Didelphyidae und eine große Anzahl fossiler Formen, unter denen sich die pleistocänen und tertiären enge an lebende anschließen, während die mesozoischen eigentümliche primitive Merkmale aufweisen, die ihre Einteilung in das zoologische System erschweren. Owen betrachtete die letzteren als Vorläufer der Polyprotodontia, betonte jedoch bereits ihre Beziehungen zu den placentalen Insektivoren.
1. Familie. Dromatheriidae Osborn. (Protodonta Osborn? Promammalia Haeckel).
P griffelförmig, einspitzig. M mit großer Hauptspitze und schwacher Vorder- und Hinterspitze, die Wurzel unvollkommen geteilt. Unterkiefer hauptsächlich aus dem Dentale bestehend, höchstens mit schwachem Eckfortsatz.
Diesen winzigen und nur durch spärliche Überreste vertretenen Formen wird jetzt eine hervorragende phylogenetische Bedeutung beigelegt, weil sie die Cynodontia mit den Säugetieren verbinden sollen.
Dromatherium Emmons (Fig. 515) mit 3.1.4.6. im Unterkiefer. Untere J aufrecht, vordere P vorwärts geneigt, Unterkiefer ohne Eckfortsatz und Microconodon Osborn mit niedrigeren M und schwachem Eckfortsatz, vielleicht mit getrenntem Angulare am Unterkiefer. Obere Trias von Nordcarolina.
Fig. 515.
Dromatherium sylvestre Emmons. Ob. Trias. Chatham, Nordcarolina. Unterkiefer nat. Gr.
Tribolodon Seeley. M mit kräftigen Nebenspitzen, aber undeutlicher Wurzelteilung, ohne Eckfortsatz und Karoomys Broom aus der Trias von Südafrika, der letztere ganz ungenügend bekannt.
2. Familie. Triconodontidae. Osborn.
Kleine Beutler mit 4 P. und 3-6 M. Wurzeln der Backenzähne vollständig geteilt. P ähnlich den M aber einfacher. M mit je drei in einer Reihe stehender Spitzen und starkem Basalband. C zuweilen zweiwurzelig. Winkel des Unterkiefers einwärts gekrümmt. Condylus nicht scharf vom Eckfortsatz geschieden. Kronfortsatz breit, Zahnwechsel auf den letzten P beschränkt. Jura von England und Nordamerika.
Triconodon Owen (Tricanthodon Owen). (Fig. 516.) ?.1.4.3-4.3.1.4.3-4. Oberer C zweiwurzelig. P mit kleiner Vorder- und Hinterspitze, M mit drei fast gleich starken Spitzen. Purbeck-Schichten von England.
Priacodon Marsh. Oberer Jura von Wyoming.
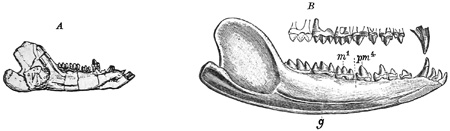
Fig. 516.
Triconodon mordax Owen. Purbeck-Schichten von Durdlestone Bay, Dorset. A Unterkiefer (nat. Gr.) nach Owen. B Oberkieferzähne und Unterkiefer. 2/1 restauriert. (Nach Osborn.)
Amphilestes Owen. 4.1.4.5. P und M wenig verschieden. Mittelspitze höher als die vordere und hintere. Großoolith. Stonesfield. England.
Phascolotherium Owen. 4.1.2.5. Hinter dem C eine Lücke. Mittelspitze der P und M höher als die Nebenspitzen. Großoolith von England.
Menacodon Marsh. ?.1.3.4. Nebenspitzen kleiner als Hauptspitze und etwas einwärts gerückt. Oberer Jura. Wyoming.
Tinodon Marsh. Ebendaher.
Spalacotherium Owen. 3.1.4.6. Purbeck. England. Sp. tricuspidens Owen.
3. Familie. Myrmecobiidae.
Die in Australien lebende Gattung Myrmecobius steht den mesozoischen Pantotheria in der Zahnzahl und in der Kieferform sehr nahe.
4. Familie. Peramelidae.
Extremitäten stark spezialisiert. Hand öfters zum Graben eingerichtet. Fuß mit reduzierten Seitenzehen. Im Pleistocän von Australien durch spärliche Reste vertreten.
5. Familie. Notoryctidae.
Extremitäten ähnlich wie beim Maulwurf zum Graben spezialisiert. Notoryctes Stirling. Lebend in Australien.
6. Familie. Pantotheriidae. (Trituberculata Osborn, Pantotheria Marsh.)
Kleine Insektivoren, ohne umgebogenen Unterkiefereckfortsatz, mit primitiven tuberkulärsektorialen unteren M und trituberkulären oberen M. Untere J meist vorwärts geneigt, P3 und P4 größer als M. Meist 11 Zähne — 4 P, 7 M — hinter dem meist zweiwurzeligen C. Jura und Kreide von England und Nordamerika.
Diese kleinen, auf das jüngere Mesozoicum beschränkten Formen werden jetzt von Osborn zu den Placentalia gestellt. Es läßt sich zwar nicht läugnen, daß manche von ihnen gewiß den Ausgangspunkt für Insectivora und allenfalls auch für Credontia darstellen, allein sie schließen sich doch auch einerseits an die Triconodonta und anderseits an Myrmecobius an, von welchen der letztere trotz der kaum bemerkbaren Umbiegung des Eckfortsatzes zu den Marsupialia gehört und dürften daher schon wegen der zahlreichen M doch besser ebenfalls zu diesen gestellt werden. An den unteren M ist das aus Protoconid, Paraconid und Metaconid bestehende Trigonid wohl entwickelt, das Talonid hingegen noch sehr klein und meist nur durch einen Zacken repräsentiert. Auch werden die M zuweilen durch Reduktion einspitzig. Zu den drei Höckern der oberen M kommen manchmal noch Nebenhöcker.
1. Unterfamilie. Amphitheriinae. Owen.
Untere J fast senkrecht, untere M tuberkulärsektorial mit kräftigem Talonid, zweiwurzelig. Kronfortsatz breit, Eckfortsatz gerundet, abwärts gerichtet. Gelenk tiefstehend. Hinter C 9-12 Zähne.
Amphitherium Owen (Thylacotherium Val.). (Fig. 517.) Dogger von England. 4.1.5.6. Ein schon im Jahre 1818 gefundener Kiefer wurde von Cuvier einem Beuteltier, von Blainville hingegen einem Reptil zugeschrieben.
Amphitylus Owen. Ebenda.
Peramus, Leptocladus Owen. Oberer Jura. Purbeck von England.
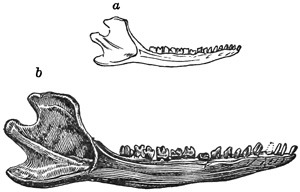
Fig. 517.
Amphitherium Prevosti Blv. Dogger. Stonesfield bei Oxford. Linker Unterkiefer von außen, a in nat. Gr., b vergr. (Nach Owen.)
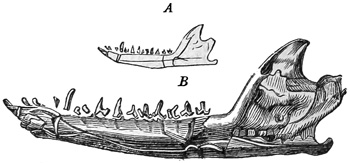
Fig. 518.
Amblotherium soricinum Owen. Ob. Jura. Purbeck. England. Rechter Unterkieferast. A in nat. Gr. B vergr. (Nach R. Owen.)
2. Unterfamilie. Amblotheriinae Osborn. (Stylacodontidae Marsh.)
M allmählich einspitzig und einwurzelig werdend. C einwurzelig, Coronoidfortsatz schlank, Unterkiefereckfortsatz nicht scharf abgesetzt. J vorwärts geneigt, P3 und P4 größer als M. Hinter C 11-12 Zähne.
Amblotherium Owen. (Fig. 518.) Oberer Jura. Purbeck England. 4.1.4.7. Hierher vielleicht die oberen M von Peralestes Owen, die außer Protocon, Metacon und Paracon auch Parastyl und Metastyl besitzen.
Peraspalax Owen und Achyrodon Owen. Oberer Jura. Purbeck England.
Phascolestes (Dryolestes.) Marsh. Oberer Jura. Wyoming.
Laodon und Asthenodon Marsh. Ebenda.
Stylodon Owen. (Stylacodon? Marsh.) Obere M Kurtodon Owen. (Fig. 519.) Oberer Jura. Purbeck von England.
3. Unterfamilie. Paurodontinae Marsh.
M zweiwurzelig, undeutlich tuberkulärsektorial, mit winzigen Nebenzacken. Unterkiefer kurz und massiv. Hinter C höchstens 7 Zähne. Jura von Wyoming.
Paurodon Marsh. Wohl 3.1.4.3. wie die meisten Placentalier.
4. Unterfamilie. Diplocynodontinae Marsh.
Obere M mit großem Protocon, untere M mit breitem, beckenförmigem Talonid. Jura von Wyoming.
Diplocynodon Marsh. (Dicrocynodon Marsh.) 3.1.4.8. (Fig. 520). Mittelspitze der M und P hoch. Kronfortsatz breit. Eckfortsatz klein. Kiefergelenk höher als die Zahnreihe.
Enneodon, Docodon Marsh.
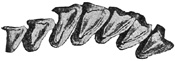
Fig. 519.
Kurtodon Osborn. Obere Backenzähne. Oberer Jura von England, vergrößert. (Nach Osborn.)
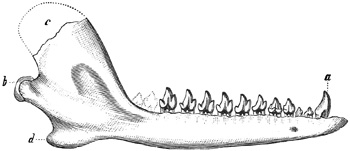
Fig. 520.
Dicrocynodon victor Marsh sp. Ob. Jura. Wyoming. Recht. Unterkiefer von außen. 2/1. (Nach Marsh.) a Eckzahn, b Condylus, c Kronfortsatz, d Winkel.
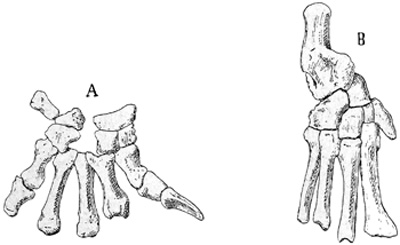
Fig. 521.
Cladosictis lustratus Ameghino. Obermiocän. Santa Cruz. Patagonien. A Hand, B Fuß, nat. Gr. (nach Sinclair.)
7. Familie. Dasyuridae. Raubbeutler.
Carnivore Beutler von mittlerer Größe. 3-4.1.3.4.3.1.3.4. J und C normal entwickelt. Obere M trituberkulär mit zwei äußeren Spitzen, einer großen Innenspitze, Protocon, und einem schneidenden Metastyl. M4 meist stark reduziert. Untere M mit schneidendem Vorderzacken — Paraconid — und Hauptzacken — Protoconid — und kleinem grubigen oder sekodonten Talonid, aber ohne Metaconid. P in beiden Kiefern einspitzig, zweiwurzelig, von vorne nach hinten gleichmäßig größer werdend, selten P4 vergrößert. Vorderfuß mit fünf bekrallten Zehen; Hinterfuß mit 5 oder 4 Zehen, Hallux häufig reduziert, zuweilen fehlend. Unterkiefereckfortsatz einwärts gebogen.
Bei den noch in Australien lebenden und daselbst auch im Pleistocän vorkommenden Gattungen Dasyurus Geoffr. Sarcophilus Cuv. und Thylacinus Temm. wird nur der hinterste der drei P gewechselt. Auch hat der Gaumen eine Lücke.
Bei den folgenden, auf das patagonische Tertiär beschränkten Gattungen — den Sparassodonta Ameghinos — fehlt die Gaumenlücke und der Zahnwechsel soll sich auch auf den C, sowie auf zwei P erstrecken. Der Schädel ist groß, Hals und Schwanz lang, Beine kurz.
Cladosictis Ameghino (Fig. 521). 43 J. M1-3 mit kräftigem Protocon M4 stark reduziert. Untere M mit mäßig starkem Talonid. P gleichmäßig an Größe zunehmend. Schädel mit Alisphenoidbulla. Hallux reduziert. Humerus mit Foramen entepicondyloideum. Krallen spitz, komprimiert. Miocän. Santa Cruz.
Hathlyacynus Mercerat. Ebenda. Procladosictis, Pseudocladotictis Ameghino. Eocän. Notostylopsschichten.
Amphiproviverra (Protoproviverra) Ameghino. (Fig. 522.) 43 J. Obere M mit drei kräftigen Spitzen und kurzem Metastyl. M4 wenig reduziert. Untere P und M schlank, die M mit großem beckenförmigem Talonid. Hallux groß, opponierbar. Humerus ohne Foramen. Krallen spitz. Miocän. Santa Cruz.
Perathereutes, Sipalocyon, Agustylus, Acyon, Ictioborus Ameghino. Miocän. Santa Cruz.
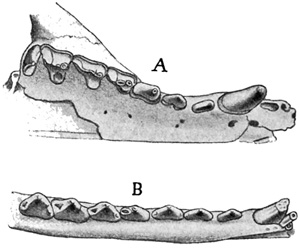
Fig. 522.
Amphiproviverra manzaniana Ameghino. Obermiocän. Santa Cruz. A obere, B untere Zahnreihe. Nat. Gr. (nach Sinclair.)
Prothylacinus Ameghino. 43 J. M1 und M2 mit deutlichem, M3 ohne Protocon, M4 mit kleinem Protocon und Metacon, P4 wenig größer als P3. Untere M mit schwachem Talonid. Schädel lang, ohne Alisphenoidbulla. Unterkiefer mit fester Symphyse. Hallux stark reduziert. Krallen spitz, zusammengedrückt. Miocän. Santa Cruz.
Napodonictis Ameghino. Ebenda. Pseudothylacinus Ameghino. Miocän. Colpodonschichten.
Borhyaena Ameghino. 33 J. Zähne plump, dicht aneinanderschließend. M4 knopfartig. Talonid nur an M1 und M2 gut entwickelt. Schädel kurz, mit weit abstehenden Jochbogen. Ohne Alisphenoidbulla. Humerus ohne Entepicondylarforamen. Endphalangen stumpf, rundlich, an der Spitze gespalten. Miocän. Santa Cruz.
Acrocyon, Conodonictis Ameghino. Ebenda. Pseudoborhyaena. Miocän. Colpodonschichten. Proborhyaena, Pharsaphorus Ameghino. Pyrotheriumschichten.
8. Familie. Didelphyidae. Beutelratten.
Meist kleine carnivore Beutler. 5.1.3.4.4.1.3.4. J klein, dicht gedrängt. C stark entwickelt. Dem letzten, meist sehr hohen P geht ein lange funktionierender Milchzahn voraus. Obere M trituberkulär dreieckig, Protocon, Paracon und Metacon ⋁förmig, am Außenrand in der Regel einige kleine Basalhöcker vorhanden. Untere M tuberkulärsektorial mit kräftigem Metaconid und mehrhöckerigem, wohlausgebildetem Talonid. Extremitäten fünfzehig, Hallux opponierbar. Humerus mit Entepicondylarforamen.
Die beiden lebenden Gattungen Didelphys und Chironectes sind in Amerika verbreitet von Patagonien bis Canada. Fossile Vertreter sind im älteren Tertiär von Europa und Nordamerika nicht selten, in Südamerika im Tertiär und Pleistocän. Die ältesten Formen kennt man aus der Kreide. Laramiebed von Nordamerika. Von den Gattungen Didelphops, Cimolestes, Pediomys, Telacodon und Batodon Marsh aus der oberen Kreide von Wyoming sind nur isolierte Zähne und Kieferfragmente bekannt.
Didelphys Lin. (Peratherium Aymard. Oxygomphius Meyer, Amphiperatherium Filhol, Herpetotherium, Embassis Cope. (Fig. 523.) 5.1.3.4.4.1.3.4. Außer den drei ⋁förmigen Haupthöckern auch Nebenhöcker am Außenrand der oberen M vorhanden. Untere M schlank. In Europa vom Obereocän bis Untermiocän, in Nordamerika im Eocän, Oligocän und Pleistocän.
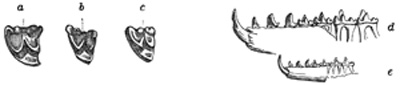
Fig. 523.
Didelphys (Oxygomphius) frequens H. v. Meyer. Miocän. Eckingen bei Ulm. a, b, c drei Oberkieferzähne vergr. 3/1. e Unterkiefer in natürl. Gr. und d vergr. (Nach Schlosser.)
Microbiotherium Ameghino. J kräftig. Obere M aus drei konischen Höckern und einfachem Basalband bestehend, untere massiv mit großem Talonid. Obermiocän. Santa Cruz. Daselbst die problematischen Gattungen Hadrorhynchus, Stylognathus, Eodidelphys. Im Eocän, Notostylopsschichten von Patagonien Ideodidelphys Ameghino. Proteodidelphys Ameghino aus angeblichen Kreideschichten Patagoniens.
9. Familie. Caroloameghinidae Ameghino.
5.1.3.4.4.1.3.4. C klein, P einfach langgestreckt. Obere M trituberkulär mit Zwischenhöckern. Untere M mit niedrigem Trigonid und großem Talonid und Nebenhöcker vor und hinter dem hohen Metaconid. Unterkiefer schlank und niedrig.
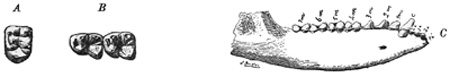
Fig. 524.
Caroloameghinia mater Ameghino. Eocän. Notostylopsschichten. Patagonien. A oberer Molar. B unteren Molaren. 3/1 nat. Gr. C Unterkiefer, nat. Gr. (nach Ameghino.)
Die Form der M erinnert teils an Primaten, teils an Nager.
Caroloameghinia Ameghino. (Fig. 524.) Eocän. Notostylopsschichten von Patagonien.
Zeitliche und räumliche Verbreitung der Marsupialier.
Trias Dogger Oberer Jura Ob. Kreide Tertiär Pleisto- cän Jetzt- zeit
Europa Nordamerika Südafrika Europa Europa Nordamerika Nordamerika Europa Nordamerika Südamerika Australien Australien Amerika Australien Amerika
I. Allotheria
1. Tritylodontidae
2. Plagiaulacidae
3. Polymastodontidae
4. Polydolopidae
II. Diprotodonta
1. Caenolestidae
2. Phalangeridae
3. Phascolomyidae
III. Polyprotodonta
1. Dromatheriidae
2. Triconodontidae
3. Myrmecobiidae
4. Peramelidae
5. Notoryctidae
6. Pantotheriidae
7. Dasyuridae
8. Didelphyidae
9. Caroloameghinidae
B. Unterklasse. Placentalia.
1. Ordnung. Insectivora. Insektenfresser.[124]
Meist kleine, in der Regel fünfzehige, bekrallte Sohlengänger. J manchmal teilweise vergrößert, nicht selten teilweise reduziert. C wenig von den J und P verschieden, manchmal auch groß und zweiwurzelig oder auch verkümmert, P zugespitzt, letztere öfters sekodont, M lophodont oder bunodont, die unteren mit meist fünf scharfen Höckern, die oberen tri- oder quadrituberkulär, Milchgebiß meist frühzeitig ausfallend, selten funktionierend. Gehirn klein, mit glatten Hemisphären. Schlüsselbeine fast immer vorhanden.
Die typischen Insectivoren sind kleine, häufig unterirdisch lebende, grabende, nächtliche, seltener kletternde oder schwimmende Landtiere, welche sich von Insekten und Würmern nähren. Sie bilden unter den Placentaliern die primitivste Ordnung und haben enge Beziehungen zu den polyprotodonten Beuteltieren, wenigstens zu den Pantotheriidae. Jetzt werden ihnen auch eine Anzahl gänzlich erloschener Formen angereiht, die zum Teil ansehnliche Körpergröße besitzen und früher teils zu den Primaten gestellt, teils für eine besondere Ordnung angesehen wurden.
Gegenwärtig bewohnen die Insectivoren nur die Alte Welt und Nordamerika, sie fehlen dagegen in Südamerika und Australien. Die fossilen Formen haben im wesentlichen die nämliche Verbreitung, nur eine Gattung ist bloß auf Südamerika beschränkt. Sie beginnen mit ziemlich vielen, großenteils erloschenen Formen im Eocän und Oligocän von Nordamerika, spielen aber hier im späteren Tertiär nur eine untergeordnete Rolle, während sie in Europa vom Oligocän bis in das Obermiocän trotz ihrer Kleinheit keineswegs zu den Seltenheiten gehören.
Der Schädel zeichnet sich durch gestreckte, niedrige Form, durch das breite Hinterhaupt, durch die meist starke Entwicklung der Gesichtsknochen, die hinten meist offenen Augenhöhlen, die unvollständige Verknöcherung der Gehörkapsel, durch das ringförmige Tympanicum und durch die Kleinheit der Gehirnhöhle aus. Die Großhirnhemisphären sind glatt, der Jochbogen ist zuweilen verkümmert. Die Lendenregion besitzt öfters Intercentren. Der Humerus hat in der Regel ein Entepicondylarforamen. Ulna und Radius bleiben getrennt, dagegen sind Tibia und Fibula häufig distal verwachsen. Das Femur trägt manchmal einen dritten Trochanter. Die plantigrade Hand ist fast immer fünf-, sehr selten vierfingerig. Der Hallux kann verschwinden. Bei den grabenden Formen sind die Knochen der Vorderextremität stark spezialisiert.
Das Gebiß enthält alle Arten von Zähnen, doch sind die C und die vorderen P oft sehr wenig voneinander verschieden. Die normale Zahnzahl 3.1.4.3.3.1.4.3. erleidet manchmal eine Reduktion. Die J sind zuweilen stark verlängert, fast nagezahnartig und mit Nebenzacken versehen und der C hat nicht selten zwei Wurzeln. Die Zahl der M übersteigt niemals die Zahl 3. Der letzte P wird manchmal M-artig. Die M sind secondont, die oberen meist trituberkulär, selten quadrituberkulär, ihre Höcker frei oder durch Joche verbunden. Die unteren bestehen aus einem dreizackigen Trigonid und einem niedrigen, oft sehr kleinen zweispitzigen Talonid. Der Zahnwechsel erfolgt häufig schon im Embryonalzustand, bei einigen Gattungen erhält sich hingegen das Milchgebiß sehr lange. Die Insectivoren zerfallen in zwei Unterordnungen: die Menotyphla, deren Symphyse von den beiden Pubes und Ischia gebildet wird und die Lipotyphla, bei welchen eine Symphyse entweder fehlt oder sich nur auf die beiden Pubes erstreckt. Die Menotyphla umfassen die in Ostasien lebenden Tupajidae und die afrikanischen Macroscelididae. Sichere fossile Formen sind hiervon nicht bekannt.
Die Lipotyphla werden eingeteilt in Zalambdodonta und Dilambdodonta, welchen jetzt noch mehrere ausgestorbene Familien angereiht werden, die teils Anklänge an Primaten, teils an Creodontier, teils an Nager aufweisen.
1. Unterordnung. Zalambdodonta. Gill.
Obere M infolge der Reduktion der Außenhöcker undeutlich trituberkulär, untere mit kräftigem Trigonid und stark reduziertem Talonid.
1. Familie. Chrysochloridae.
Diese jetzt in Südafrika lebende und nach Art der Maulwürfe spezialisierte, aber mit hypselodonten P und M versehene Familie soll in Nordamerika im Oligocän (White Riverbed) einen Vertreter besitzen in Xenotherium Douglass.
2. Familie. Necrolestidae. Scott.[125]
Necrolestes Ameghino. 4.1.3.3.4.1.3.3. J klein, C normal entwickelt, P2 in beiden Kiefern zweiwurzelig, der untere mit Vorder- und Hinterspitze, die übrigen wie die M hypselodont und trituberkulär. Im Schädel-, Zahnbau und Spezialisierung der Extremitäten sehr ähnlich den südafrikanischen Chrysochloridae, aber langschnauziger. Obermiocän von Santa Cruz. Patagonien.
3. Familie. Centetidae.
Diese Familie ist heutzutage auf Madagaskar beschränkt, mit Ausnahme der auf Kuba lebenden Gattung Solenodon und mit den westafrikanischen Potamogalidae nahe verwandt. Fossil in Nordamerika. Oligocän (White Riverbed) von Montana.
Micropternodus Matthew. (Fig. 525.) 3.1.3.3. M wie bei Centetes aus hohem Trigonid und kleinem Talonid bestehend.
Apternodus Matthew. 2.1.3.3.2.1.3.3. Talonid sehr stark reduziert. P4 in beiden Kiefern M-artig. Schädel dem von Ericulus ähnlich, aber durch die starke Entwicklung des Mastoids ausgezeichnet.
2. Unterordnung. Dilambdodonta. Gill.
Obere M echt trituberkulär, oft mit Hypocon versehen. Untere M tuberkulär sektorial, mit kräftigem Talonid.
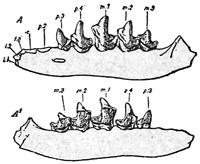
Fig. 525.
Micropternodus borealis Matthew. Oligocän. Unterstes White Riverbed Montana. Unterkiefer von außen und innen. 2/1 nat. Gr. (nach Matthew.)
1. Familie. Leptictidae. Cope.
2.1.4.3.2-3.1.4.3. Obere M sehr breit, dreieckig, trituberkulär, meist mit schwachem Hypocon. Außenhöcker konisch. J spitz, wenig verschieden von den C. P4 in beiden Kiefern M-artig. Schädel meist mit zwei Scheitelkämmen, schlanken Jochbogen und spitzer, mäßig langer Schnauze. Humerus mit Entepicondylarforamen.
Palaeictops Cope. Untereocän (Wasatchbed) von Nordamerika, Phenacops Matthew, Diacodon Cope.
Leptictis, Ictops Leidy. (Fig. 526.) Schädel mit doppeltem Scheitelkamm. Oligocän. White Riverbed von Nordamerika.
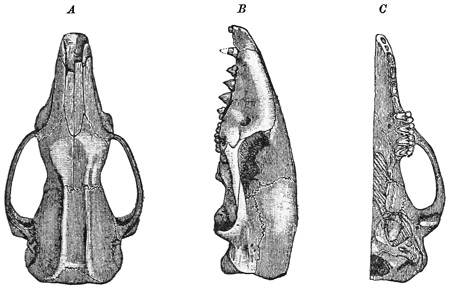
Fig. 526.
Leptictis Haydeni Leidy. Unt. Miocän. Dakota. Schädel von oben, von der Seite und unten.
Nat. Gr. (Nach Leidy.)
2. Familie. Talpidae. Maulwürfe.
3-2.1.4-3.3.3-1.1.4-3.3. Obere M trituberkulär, Außenhöcker ⋁förmig. Schnauze stark verlängert, Jochbogen dünn. Bullae osseae gewölbt. Vorderextremität als breites, schaufelartiges Grabwerkzeug entwickelt. Tibia und Fibula distal verschmolzen. Becken stark verlängert. Schwanz kurz.
Die Talpiden sind kleine, unterirdisch lebende Wühler mit verkümmerten Augen und langer Schnauze. Beim Maulwurf reicht das Manubrium bis unter den zweiten Halswirbel und nimmt vorne das kurze fast quadratische Schlüsselbein auf, welches mit dem distalen Ende des kurzen, stark verbreiterten Humerus artikuliert und durch Bänder mit der schmalen langgestreckten Scapula verbunden ist. Der Humerus besitzt einen weit vorspringenden Deltoidkamm und neben jedem Condylus einen spornartigen Fortsatz. In den oligocänen Phosphoriten von Quercy Amphidozotherium Filhol, im europäischen Miocän die Gattungen Scaptonyx M. Edwards, Proscapanus Gaillard und Talpa Linn (Fig. 527), die letztere auch im Pliocän und Pleistocän. Eine Art auch im Miocän von Montana.
Proscalops Matthew. (Fig. 528.) J vergrößert. P mit Ausnahme von P4 klein. Zähne niedriger als bei Scalops. Schädel hinten stark verbreitert. Untermiocän. Colorado.
Domnina Cope. Oligocän. White Riverbed von Nordamerika.
Nyctitherium (Talpavus, Nyctilestes) Marsh. Obere M mit kräftigem Hypocon. Mittleres Eocän. Bridgerbed von Nordamerika.
Fig. 527.
Talpa Meyeri Schlosser. Unt. Miocän. Weisenau bei Mainz. Humerus a von innen, b von hinten, c von außen, d von vorne, e von unten. Nat. Gr. (Nach Schlosser.)
Entomacodon (Centracodon) Marsh. Myolestes und Entomolestes Matthew. Ebendaselbst.
Echinogale Pomel im Untermiocän von Frankreich. Systematische Stellung unsicher.
Myogale Cuvier. Lebend und im Pleistocän von Europa.
3. Familie. Soricidae. Spitzmäuse.
Die Spitzmäuse zeichnen sich durch kräftige, im Oberkiefer vierzackige M und durch die Vergrößerung des vordersten J aus. Der obere J ist hakenförmig, der untere steht horizontal und besitzt einen zugeschärften oder gezackten Oberrand. Die zwischen diesen J und den M befindlichen Zähne 4-62 sind mit Ausnahme des P4 wenig, die Extremitätenknochen dagegen stark differenziert. Überreste von Soriciden finden sich in Europa vom Oligocän an, Phosphorite von Quercy, im Untermiocän von Ulm und Mainz, im Obermiocän von La Grive St. Alban und im Pleistocän. Sie gehören den Gattungen Sorex Lin. (Fig. 529.) Crocidura und Crossopus Wagler an.
Protosorex Scott. Im Oligocän (White Riverbed) von Nordamerika mit zahlreichen P.
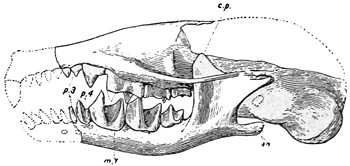
Fig. 528.
Proscalops miocaenus Matthew. Miocän. Colorado. Schädel und Unterkiefer. 2/1 nat. Gr. (nach Matthew.)
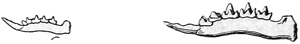
Fig. 529.
Sorex pusillus Meyer. Miocän. La Grive St. Alban. Isère. Unterkiefer von innen in nat. Gr. und vergr. (Nach Depéret.)
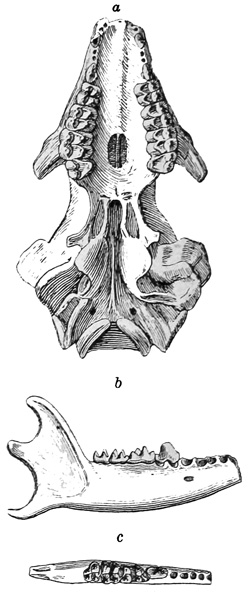
Fig. 530.
Necrogymnurus Cayluxi Filhol. Phosphorit. Quercy. a Schädel von unten, b Unterkiefer mit drei Molaren und P4 von der Seite, c derselbe von oben. Nat. Gr. (Nach Filhol.)
4. Familie. Dimylidae.
22 M, davon M1 in beiden Kiefern sehr groß. J, C, P mit Ausnahme von P4 sehr einfach. Humerus ähnlich dem von Talpa. Nur aus dem europäischen Miocän bekannt.
Dimylus und Cordylodon Meyer. Letzterer mit knopfförmigen P. Im Untermiocän.
Plesiodimylus Gaillard und Metacordylodon Schlosser im Obermiocän.
5. Familie. Erinaceidae. Igel.
Obere M meist vierhöckerig, viereckig. P4 M-ähnlich, die übrigen P einfacher.
Gymnurinae. 3.1.4.3.3.1.4.3. C kräftig.
Necrogymnurus (Cayluxotherium) Filhol. (Fig. 530.) Eocän. Phosphorite von Quercy.
etracus Aymard. Oligocän. Ronzon.
Galerix Pomel. (Parasorex v. Meyer.) (Fig. 531.) Im Obermiocän von Europa.
Erinaceinae mit weniger als 44 P.
Erinaceus Linn. 3.1.3.3.2.1.2.3. Vorderster J vergrößert, die übrigen, sowie C und M3 reduziert. Obermiocän bis Gegenwart.
Palaeoerinaceus Filhol. Untermiocän.
Proterix Matthew. 3.1.3.3. Oligocän. White River. Süd-Dakota.
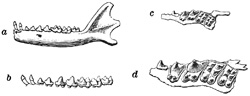
Fig. 531.
Galerix exilis Blv. sp. (Parasorex socialis H. v. Meyer.) Miocän. Steinheim, Württemberg. a Unterkiefer nat. Gr., b Unterkieferzähne vergr., c Oberkiefer von Grive-St. Alban nat. Gr., d vergr. (Nach Depéret.)
6. Familie. Adapisoricidae Lemoine.
Kleine ausgestorbene, unvollständig bekannte Insectivoren mit 2 J, 1 C, 4 P, 3 M im Unterkiefer. Obere M trituberkulär. Untere J klein, nagezahnartig. C klein. P zweiwurzelig mit Hauptspitze und Talonid. M mit hohem dreizackigem Trigonid und starkem, grubigem Talonid. Systematische Stellung durchaus unsicher. Adapisorex und Adapisoriculus Lemoine im untersten Eocän von Cernays und Ay bei Reims.
7. Familie. Hyopsodontidae Schlosser.
3.1.4.3.3.1.4.3. Schädel niedrig, Schnauze mäßig lang, mit breiter Stirn und breitem Hinterhaupt. Obere M viereckig, sechshöckrig, untere vierhöckerig, Trigonid kaum höher als Talonid. Alle vorderen Zähne einspitzig, fast aneinander schließend und allmählich in einander übergehend, obere P2 bis P4 mit Innenhöcker, unterer P4 sehr kompliziert.
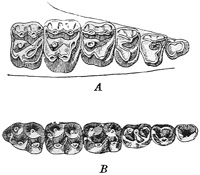
Fig. 532.
Hyopsodus paulus Leidy. Eocän (Bridgerbed.) Wyoming. A obere Backzähne von unten vergr. 2/1 nat. Gr. B untere Backzähne von oben, 2/1 nat. Gr.
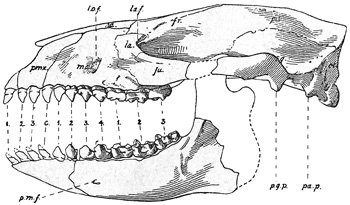
Fig. 533.
Hyopsodus decipiens Matthew. Mitteleocän. Bridgerbed. Wyoming. Schädel und Unterkiefer nat. Gr. (nach Matthew.)
Diese gänzlich erloschene Familie wurde bisher vor kurzem wegen der Ähnlichkeit ihrer Zähne zu den Primaten gestellt. Der Schädel zeigt jedoch Anklänge an den von Erinaceus, und die Metapodien haben keine knopfförmige, sondern eine gekielte distale Gelenkfläche. Auch fehlt die Opponierbarkeit der ersten Zehe und des Daumens. Wir haben es vermutlich mit dem Überrest einer Insectivorengruppe zu tun, welche dem Ausgangspunkt der Primaten sehr nahe steht. Sie schließt sich anderseits auch wieder an die kleineren Mioclaeniden an.
Hyopsodus Leidy (Lemuravus Marsh). (Fig. 532, 533.) J, C und die vordersten P spitz, kegelförmig, P3 und P4 mit großen, dicken Außen- und ⋁förmigem Innenhöcker. Obere M mit zwei kantigen Außen-, zwei ⋁förmigen Innenhöckern und zwei kräftigen Zwischenhöckern. Unterer P4 mit großer Innenspitze und zweihügeligem Talonid. Untere M mit vier stumpfen, undeutlich alternierenden Höckern und kleinem Hinterhöcker. An dem breiten Schädel steht die Augenhöhle seitlich; das Tympanicum bildet keine knöcherne Bulla. Humerus mit Entepicondylar- und Supratrochlearformen. Extremitätenknochen denen von Erinaceus ähnlich. Astragalus mit flacher Trochlea. Endphalangen klein, rundlich, nicht gespalten. Zahlreiche Arten im Eocän von Nordamerika. Wasatchbed. H. lemoinianus; miticulus Cope, Wind Riverbed. H. Wortmani Osborn, Bridgerbed. H. paulus, minusculus Leidy. Uintabed uintensis Osborn.
8. Familie. Mixodectidae Cope (Proglires Osborn).
3-1.1.3.3.3-1.1.2.3. Obere M nicht viel breiter als lang, mit konischen Außen- und kleinen Zwischenhöckern, ⋁förmigem Protocon und schwachem Hypocon. Unterer und oberer J1 vergrößert und vorwärts geneigt. J1 und J3 meist fehlend, klein, ebenso P1 oder P2 oder fehlend, oder P3 wie P4 schneidend, mit hoher Spitze. P4 anfangs zweihöckerig, später kompliziert. Untere M mit fünf undeutlich alternierenden Höckern, die beiden inneren konisch, Protoconid und Hypoconid ⋁förmig. Paraconid nur als Kante entwickelt. Trigonid nicht viel höher als Talonid, das namentlich an M3 sehr groß wird.
Die Backenzähne haben große Ähnlichkeit mit jenen der Anaptomorphiden, weshalb die Mixodectiden früher zu den Primaten gestellt wurden. Wegen der Vergrößerung des J2 und der Reduktion der übrigen J und der vorderen P hielt sie Osborn für die Vorläufer der Nager und nannte sie Proglires. Wegen der Ähnlichkeit der M mit denen der Hypsodontidae dürfte es sich empfehlen, sie ebenfalls provisorisch zu den Insectivoren zu stellen, obschon eine gewisse Verwandtschaft mit Primaten — Chiromys — nicht ausgeschlossen zu sein scheint.
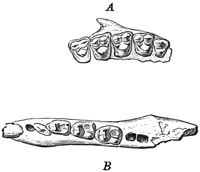
Fig. 534.
A Microsyops gracilis Leidy, Oberkiefer. B M. elegans, Unterkiefer. Mitteleocän. Bridgerbed Wyoming (nach Wortman.)
Olbodotes Osborn. Mit 3 unteren J. Untereocän. Torrejonbed. Neu-Mexiko. O. Copei Osborn. Ein ähnlicher M auch aus dem Fort Unionbed von Montana bekannt.
Mixodectes Cope. J2 stark vergrößert. P3 öfters noch vorhanden. Trigonid höher als Talonid. Ebenda. M. pungens Cope.
Microsyops Leidy. (Fig. 534.) (Limnotherium, Bathrodon, Mesacodon Marsh, Palaeacodon Leidy.) Talonid fast ebenso hoch wie Trigonid. Wind Riverbed. M. scottianus Cope. Bridgerbed. M. gracilis Leidy, speciosus Marsh.
Indrodon Cope. 2.1.3.3. Nur Oberkiefer bekannt. P einfach. Untereocän. Torrejonbed.
Cynodontomys Cope. C klein. P4 M-ähnlich. Untereocän. Wasatchbed. C. latidens Cope.
Smilodectes Wortman. P4 kurz. Mitteleocän. Bridgerbed. S. gracilis Marsh sp.
Metolbodotes Schlosser. Mit 3 J. Höcker der M innig miteinander verbunden. M1 > M2 und M2 > M3. Oligocän Fajum. Ägypten M. Stromeri. Schl.
9. Familie. Plesiadapidae Lemoine.
2.1.2.3.1.0.2.3. Unterkiefer hoch mit breitem Kronfortsatz und Diastema hinter dem vergrößerten J. Oberer J2 zweispitzig, J3 und C klein. Obere P und M trituberkulär. Untere M tuberkulärsektorial mit mäßig hohem Trigonid und großem niedrigem Talonid. Untereocän von Europa.
Die Form des Unterkiefers und die Beschaffenheit des Gebisses spricht dafür, daß wir es möglicherweise mit einem Vorläufer der Nager zu tun haben.
Plesiadapis Lemoine. Untereocän von Reims und Belgien, vielleicht auch im Bohnerz von Egerkingen.
Protoadapis Lemoine. 2.1.3.3. Ohne Diastema. Eocän von Reims. Systematische Stellung ganz unsicher.
10. Familie. Pantolestidae Matthew.
3.1.4.3.3.1.4.3. C normal. Obere J isoliert, P einfach schneidend. Obere M trituberkulär, untere tuberkulärsektorial mit dreispitzigem Trigonid und Talonid. Schnauze kurz und breit, Cranium lang und verbreitert mit hoher Supraoccipitalcrista und schwachem Scheitelkamm, ohne knöcherne Bulla.
Die Pantolestiden wurden zuerst für Artiodactylen gehalten. Matthew stellt sie jetzt zu den Insectivoren wegen der Anwesenheit eines Mentalforamens unter M1 und der Kürze und Breite der Schnauze. Abgesehen von diesen Verhältnissen könnte man sie auch bei den Creodonten unterbringen. Der stark gekrümmte Humerus besitzt eine kräftige Deltoidcrista, und ein Entepicondylarforamen, das Femur ist mit einem dritten Trochanter versehen und Tibia und Fibula sind distal miteinander verwachsen. Der Astragalus hat eine breite, ausgefurchte Trochlea und einen kurzen Hals, die Krallen sind abgeflacht und breit. Der Schwanz hat beträchtliche Länge. Die Extremitäten zeigen Anpassung an das Leben im Wasser.
Pantolestes Cope. (Passalacodon, Anisacodon Marsh.) Paraconid klein. Mitteleocän. Bridgerbed.
Palaeosinopa Matthew. Paraconid kräftig. Untereocän. Wasatchbed.
Pentacodon Cope. Untereocän. Torrejonbed. Neu-Mexiko.
? Ptolemaia Osborn. Paraconid schwach. J und vordere P reduziert. Oligocän von Ägypten.
11. Familie. Tillodontidae. (Tillodontia Marsh.)[126]
Ausgestorbene, fünfzehige, bekrallte Sohlengänger mit vergrößertem, nagezahnähnlichen J2 und brachyodonten M. Obere M trituberkulär, mit Nebenhöckern, untere mit hohem, halbmondförmigem Trigonid und etwas niedrigerem halbmondförmigem Talonid. Scaphoid getrennt vom Lunatum.
Der Schädel ist im ganzen raubtierähnlich. Die Breite der Schnauze und des Hinterhauptes, das Fehlen einer postorbitalen Einschnürung und die Beschaffenheit der Ohrregion — flache Bulla — sowie die Form des Unterkiefergelenkes gestatten die Angliederung dieser Familie an die Insectivoren, womit sich auch die Differenzierung der J und C gut in Einklang bringen läßt. Von den J geht das erste Paar verloren, das zweite wird vergrößert, die C verwandeln sich in kleine Lückenzähne, wofür die hinteren P M-ähnlich werden.
Von Tillotherium ist das Skelett ziemlich vollständig, von Esthonyx aber nur teilweise bekannt. Nur im Eocän von Nordamerika und von England.
1. Unterfamilie. Esthonychinae.
2.1.3.3.3.1.3.3. J ringsum von Schmelz bedeckt, mit Wurzeln. C ziemlich groß.
Esthonyx Cope. (Fig. 535.) Im unteren Eocän. Wasatchbed von Wyoming und Neu-Mexiko.
Platychoeropus Charlesworth im Londonton von England.
Plesiesthonyx Lemoine. Untereocän von Reims. Durchaus problematisch.
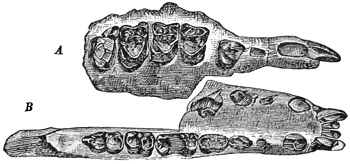
Fig. 535.
Esthonyx Burmeisteri Cope. Untereocän (Wasatch Beds) von Big Horn. Wyoming. A Zahnreihe des Oberkiefers, B des Unterkiefers, von der Kaufläche gesehen, 2/3 nat. Gr. (nach Cope.)
2. Unterfamilie. Tillotheriinae.
2.1.3.3.2.1.2.3. Oberer und unterer J2 stark entwickelt, nur an der Vorderseite mit Schmelz bedeckt und mit persistierender Pulpa. Zwischen den J, den kleinen C und den vordersten P kurze Lücken.
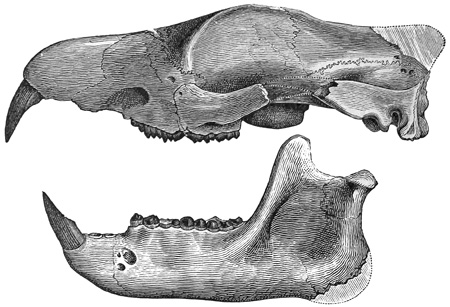
Fig. 536.
Tillotherium fodiens Marsh. Eocän. Bridger. Wyoming. Schädel und Unterkiefer. 1/4 nat. Gr. (Nach Marsh.)
Tillotherium Marsh. (Fig. 536.) Schädel von Bärengröße mit kleiner Gehirnhöhle und verschmälerter Schnauze. Orbita hinten nicht von den Schläfengruben abgetrennt. Stirnbeine groß mit Luftzellen. Wirbel raubtierartig. Humerus mit Entepicondylarforamen. Femur mit drittem Trochanter. Fibula dünn, Astragalus niedrig. Mitteleocän. Bridgerbed. Wyoming.
Trogosus (Anchippodus) Leidy. Ebendaselbst.
2. Ordnung. Chiroptera. Fledermäuse.[127]
Kleine Insekten-, selten Früchtefresser mit stark verlängerten und durch Flughaut verbundenen Vorderextremitäten. Gebiß vollständig, J reduziert, C groß, meist mit kräftigem Basalband, P zugespitzt. M sekodont, oder bunolophodont, obere trituberkulär mit ⋁förmigen Höckern, untere tuberkulärsektorial. Milchgebiß rudimentär. Hirn klein und glatt. Zwei brustständige Zitzen.
Die Fledermäuse bilden einen spezialisierten Seitenzweig von primitiven Insectivoren. Sie unterscheiden sich von den echten Insectivoren nicht bloß durch die eigentümliche Ausbildung der Vorderextremität, sondern auch durch die meist verkürzte Schnauze, den in der Regel sehr kräftigen Scheitelkamm, durch die starke postorbitale Einschnürung und die solid verknöcherte Gehörblase.
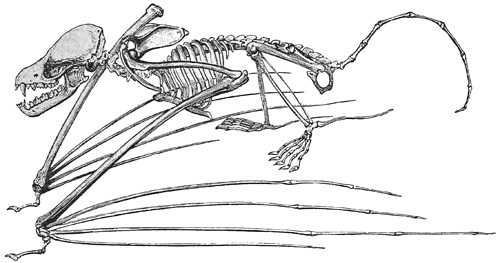
Fig. 537.
Vespertilio murinus Lin. Skelett. (Nach Blainville.)
Die Vorderextremität ist zu einem Flugorgan umgebildet. Das lange Schlüsselbein verbindet das Brustbein mit dem Acromion des Schulterblattes. Der Humerus ist schlank und im Verhältnis zur Größe des Caput und des Deltoidkammes sehr lang. Die Länge des Vorderarms übersteigt die des Oberarms mindestens um ein Drittel, oft aber um das Doppelte. Die Ulna ist stark reduziert. Die proximalen Carpalia verschmelzen miteinander. Die Phalangen sind mit Ausnahme des kurzen, opponierbaren Daumens zu dünnen, langen, nadelähnlichen Gebilden umgestaltet und durch Flughaut verbunden, welche sich auch am Rumpf und am Schwanz sowie an einem langen knöchernen Sporn, der vom Calcaneum ausgeht, anheftet. Im Gegensatz zur Vorderextremität ist die Hinterextremität und das Becken schwach entwickelt. Der Fuß hat fünf gleichlange, mit Krallen versehene Zehen.
Die Fledermäuse zerfallen in die zwei Gruppen der Megachiroptera, welche nur große frugivore Formen enthalten und in die kleinen, insektenfressenden Microchiroptera.
Zu den Megachiroptera gehört wahrscheinlich die Gattung Archaeopteropus Meschinelli aus dem Oligocän von Monteviale.
Überreste von Microchiropteren fanden sich in größerer Menge nur in den Phosphoriten von Quercy sowie im Pleistocän in europäischen Höhlen und in Höhlen Brasiliens, aber diese pleistocänen Reste gehören fast ausschließlich rezenten Arten an. Im Eocän — Paris und Aix — sowie im Miocän sind Fledermausreste sehr selten mit Ausnahme von der Lokalität La Grive St. Alban.
Die Chiropteren aus den Phosphoriten verteilen sich auf die Gattungen Pseudorhinolophus (Fig. 538) und Vespertiliavus Schlosser, Taphozous Geoffr., Alastor und Necromantis Weithofer, von welchen sich die letzte Gattung an lebende südamerikanische Formen anschließt, was auch wohl für Provampyrus Schlosser aus dem Oligocän von Ägypten gilt. Im Miocän finden sich neben der ausgestorbenen Gattung Palaeonycteris schon die lebenden Gattungen Vespertilio, Vesperugo, Rhinolophus und Cynonycteris.