5. Klasse. Mammalia. Säugetiere.[116] (Bearbeitet von M. Schlosser.) (continued 4)
Reading edition
Fünf Metacarpalia sind bis jetzt nur bei Oreodontiden und Anthracotheriiden beobachtet worden, doch ist Metacarpale I auch hier klein und stummelartig und trägt nur bei den Oreodon kurze Phalangen. Die vier übrigen Mc bleiben bei den primitiveren Formen aller Linien und bei den Hippopotamiden und allen Suiden getrennt. Bei den Wiederkäuern verkümmern die seitlichen Metacarpalia und die dazu gehörigen Zehen stecken entweder als kurze Afterklauen frei in der Haut, oder sie gehen vollständig verloren. Sind die seitlichen Metapodien griffelartig oder ganz verschwunden, so zeigen die mittleren Neigung, zu verschmelzen. Der so entstehende »Canon« hat jedoch stets zwei Markhöhlen, das distale Ende bleibt gespalten und ist mit zwei Gelenkflächen versehen. Die Verwachsungsstelle wird äußerlich auf der Vorderseite des Canon durch eine Furche angedeutet. Die Länge der Metapodien bedingt die Lauffähigkeit, sie sind daher bei den Wiederkäuern schlank und lang, bei den Suiden und Hippopotamiden kurz und dick.
Stets übertreffen die zwei gleichgroßen mittleren Metacarpalien (III u. IV) die beiden seitlichen (II u. V) an Stärke und Länge und zwar um so beträchtlicher, je mehr die Extremitäten zum Laufen und Springen dienen. Die distalen Gelenkköpfe der vorderen und hinteren Metapodien tragen Leitkiele, die namentlich bei den vorgeschritteneren Formen sehr gut entwickelt sind, indem sie sich auch über die ganze Vorderseite erstrecken.
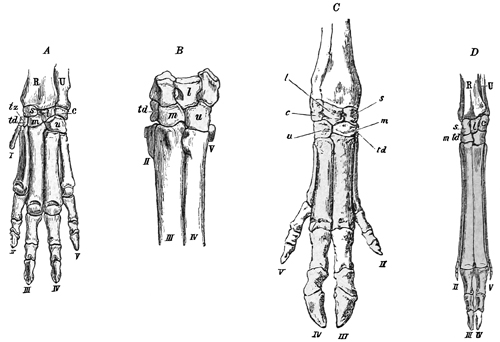
Fig. 652.
Vorderfuß A von Oreodon, B von Xiphodon mit inadaptiver Reduktion, C von Sus, D von Tragulus mit adaptiver Reduktion.
Im ursprünglichen Artiodactylenvorderfuß artikulierte Mc I mit dem Trapezium, Mc II mit Trapezium, Trapezoid und Magnum, Mc III mit Magnum und Unciforme und Mc IV und V mit dem Unciforme. Diese Anordnung kann festgehalten werden bei Reduktion der Seitenzehen, es behauptet bei dieser von Kowalewsky als »inadaptive Reduktion« (Fig. 652 AB) bezeichneten Umbildung jedes Metacarpale hartnäckig seinen Platz unter den dazugehörigen Handwurzelknochen, namentlich gilt dies von dem Mc II. Bei der »adaptiven Reduktion« (Fig. 652 CD) rücken die beiden mittleren Metacarpalia fast in gleiche Höhe, ihre proximalen Gelenkflächen breiten sich aus, drängen die seitlichen Metapodien nach außen und hinten und bemächtigen sich ihrer Ansatzstellen am Carpus. Mc II wird von der Verbindung mit dem Magnum ausgeschlossen und artikuliert nur mehr mit dem Trapezium und einem Teil des Trapezoids. Der Fuß erlangt hiedurch größere Festigkeit und Schnelligkeit. Alle noch jetzt existierenden Artiodactylen mit reduzierten Extremitäten gehören in die »adaptive« Reihe.
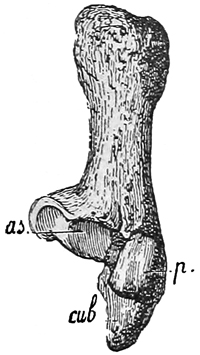
Fig. 653.
Calcaneum von Anoplotherium commune von vorne. as Gelenkfläche für den Astragalus, p Gelenkfläche für die Fibula, cub für das Cuboideum, 1/3 nat. Gr. (Nach Gaudry.)
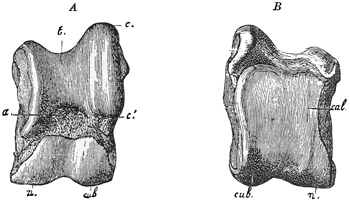
Fig. 654.
Astragalus (Sprungbein) von Helladotherium Duvernoyi. A von vorne und B von hinten. 1/3 nat. Gr. (Nach Gaudry.) t tibiale Gelenkfläche (Trochlea), n naviculare Gelenkfläche, cub cuboidale Gelenkfläche, cal hintere Calcaneumfasette, c, c' seitliche Fasette für das Calcaneum, ex freier Innenrand des Astragalus.
Das Becken ist gestreckt, das Hüftbein schmal. Dem Femur fehlt der dritte Trochanter. Tibia und Fibula sind bei den primitiveren Formen getrennt, und die letztere ist wohl entwickelt. Bei den vorgeschrittenen verkümmert die Fibula zu einem griffelartigen Knochen, von dem zuletzt nur ein kurzes, distales Stück erhalten bleibt. Das Calcaneum (Fig. 653) hat an seiner Vorderseite eine gewölbte Gelenkfläche für die Fibula. Am Astragalus (Fig. 654) ist die obere und vordere Gelenkrolle für die Tibia tief ausgehöhlt, sein distales, dem Naviculare und Cuboid aufruhendes Ende ist nicht abgestutzt wie bei den Perissodactylen, sondern bildet ebenfalls eine konvexe Gelenkrolle, welche auf der Hinterseite in eine große gewölbte Fläche (cal) übergeht. Bei den primitiveren vierzehigen Formen mit gut ausgebildeten Seitenzehen bleiben alle Tarsusknochen getrennt. Bei den Traguliden und den Wiederkäuern verschmelzen Naviculare und Cuboid, ebenso verwachsen Unciforme III und II und zuweilen sogar alle Tarsalia mit Ausnahme von Cuneiforme I.
Auch am Hinterfuß verkümmern oft die seitlichen Metapodien und Zehen. Mt I ist, wenn überhaupt anwesend, nur als Stummel vorhanden. Bei Anoplotheriiden und bei Dicotyles wird der Hinterfuß durch einseitige Verkümmerung einer Seitenzehe dreizehig. Auch die zwei mittleren Metatarsalia können zu einem Canon verwachsen und zwar sogar schon früher als die Metacarpalien (Hyaemoschus, Gelocus, Dicotyles). Bei der inadaptiven Ausbildung der Extremitäten bewahren die einzelnen Metatarsalia ihren Platz unter den entsprechenden Tarsalien. Bei der adaptiven Reduktion werden die seitlichen Metatarsalia von den sich ausbreitenden mittleren nach außen und hinten verdrängt. Die Zehen beider Extremitäten sind gleichartig gebaut, die Endphalangen dreieckig — nur bei den Anoplotheriiden und bei Agriochoerus krallenartig — und von Hufen umgeben.
Für das phylogenetische Verständnis der Extremitätenumbildung bei den Artiodactylen ist es von großem Interesse, daß selbst bei den vorgeschrittensten Paarhufern (Cavicornia) die im späteren Alter verschmolzenen Knochen bei Embryonen getrennt angelegt sind und somit den geologisch älteren Formen entsprechen. Die scheinbar so weit auseinander liegenden Entwickelungsstadien des plumpen, kurzen, vierzehigen Hippopotamusfußes und der schlanken, langgestreckten, zweihufigen Wiederkäuerextremitäten werden somit gewissermaßen in kurzer Folge auch in der Ontogenie der höchststehenden Paarhufer durcheilt.
Nach dem Gebiß zerfallen die Artiodactylen in drei Hauptgruppen:
A. Bunodontia. B. Bunoselenodontia. C. Selenodontia.
1. Suidae 5. Anthracotheriidae 8. Xiphodontidae
2. Elotheriidae 6. Anoplotheriidae 9. Caenotheriidae
3. Leptochoeridae 7. Dichobunidae 10. Oreodontidae
4. Hippopotamidae 11. Camelidae
12. Tragulidae
13. Hypertragulidae
14. Cervicornia
15. Antilocapridae
16. Cavicornia.
A. Bunodontia.
1. Familie. Suidae. Schweine.[149]
3-2.1.4-3.3.3.1.4-3.3. brachyodont und bunodont. Obere und untere M mit vier stumpf konischen Höckern und häufig mit vielen warzenartigen Nebenhöckerchen. Älteste Formen mit einem Zwischenhöcker — Metaconulus — in der Vorderhälfte der oberen M. P einfacher als M. C stark vorragend. Carpalia und Tarsalia nicht verschmolzen. Untere Hälfte des Astragalus gegen die obere etwas seitlich verschoben. Extremitäten vierzehig, der Hinterfuß zuweilen dreizehig. Metapodien getrennt. Seitenzehen dünner und kürzer als die Mittelzehen.
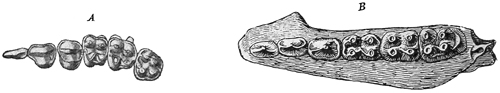
Fig. 655.
A Cebochoerus Rütimeyeri Stehlin. Mitteleocäne Bohnerze von Egerkingen, Schweiz. Obere Backenzähne nat. Gr. (nach Stehlin.) B Cebochoerus minor Gervais. Obereocän. Phosphorite von Quercy. Unterkiefer nat. Gr. (Nach Gaudry.)
Die Suiden stehen den Anthracotheriiden wenigstens anfangs ziemlich nahe. Beide dürften auf eine gemeinsame Stammform zurückgehen. In der Gegenwart bewohnen Suiden alle Kontinente mit Ausnahme von Australien. Ächte Suiden beginnen in Europa im Mitteleocän, in Nordamerika im Oligocän. Die Hauptentwicklung der Schweine fällt in die Zeit vom Miocän bis in die Gegenwart.
Cebochoerus Gervais (Dichobune Rütimeyer, Acotherulum Gervais). (Fig. 655.) Oberer C vertikal, dolchförmig, unterer C als vierter J und der zweiwurzelige untere P1 als C entwickelt, obere M fast quadratisch, mit fünf Höckern, davon drei in der vorderen Hälfte. Unterkiefer hinten sehr hoch, mit gerundetem Eckfortsatz. Mitteleocän. Bohnerz von Egerkingen C. Rütimeyeri Stehlin. Obereocän. Mormont C. helveticus Pictet. St. Hippolyte de Caton, Phosphorite von Quercy C. minor Gerv. Débruge C. saturninus Gervais sp.
Choeromorus Pictet (Leptacotherulum Filhol). Obere M etwas breiter als lang. Unterer C und P1 normal ausgebildet. P4 mit Innenhöcker. Außenhöcker der unteren M ⋁förmig. Stammvater der echten Schweine. Obereocän. Mormont. Ch. helveticus Pictet.
Eohyus Marsh. Eocän. Wyoming, durchaus problematisch.
Choeropotamus Cuvier. Oberer C dolchförmig, P1 vergrößert, unterer C J-ähnlich, P1 C-artig. M mit vier Haupt- und vielen Nebenhöckern, obere auch mit Mesostyl. Unterer P4 ohne Innenhöcker. Unterkiefer niedrig, hinten weit ausgezogen. Obereocän. Frankreich und England. Ch. parisiensis Blv.
Palaeochoerus Pomel. (Fig. 656.) Zahnreihe fast noch geschlossen. C nicht viel stärker als J und P. Obere und untere M mit vier konischen Höckern und Basalband, unterer M3 mit fünf Höckern. Untermiocän Europa. P. Meisneri Meyer, typus Pomel. Mittelmiocän. P. aurelianensis Stehlin.
Propalaeochoerus Stehlin. Oligocän. Phosphorite von Quercy.
Choerotherium Depéret (Colobus Fraas). Klein, sehr einfache P und M. Obermiocän. Steinheim, Sansan, Schlesien etc.
Xenochoerus Zdarsky. Sehr komplizierte, M-ähnliche P. Obermiocän. Steiermark.
Hyotherium Meyer. (Figur 657.) Ähnlich Palaeochoerus, jedoch größer. Oberer C zweiwurzelig. Höcker der M kantig. Im europäischen Mittel- und Obermiocän weit verbreitet. H. Sömmeringi Meyer. Unterpliocän Indien. H. perimense Lydekker.
Perchoerus Leidy. 44 P. Oligocän (White Riverbed) und Chaenohyus, Bothrolabis Cope, Desmathyus Matthew. Untermiocän (John Day) und Thinohyus Marsh im Obermiocän von Nebraska mit nur drei unteren P sind die palaeochoerusähnlichen Vorläufer von:
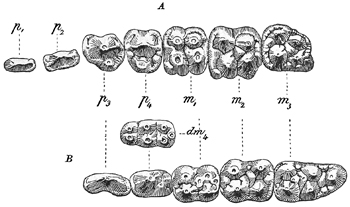
Fig. 656.
Palaeochoerus Meisneri v. Meyer. Untermiocän. Ulm. A obere, B untere Backenzähne, nat. Gr.
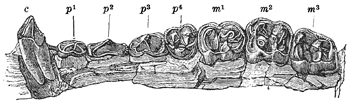
Fig. 657.
Hyotherium Sömmeringi v. Meyer. Obermiocän. Eibiswald. Steiermark. Oberkiefer. 1/2 nat. Gr. (nach Peters.)
Dicotyles Cuvier. 2.1.3.3.3.1.3.3. Oberer C dreikantig, vertikal, hintere P wie die M mit zwei Höckerpaaren und Nebenwarzen. Metatarsale III und IV proximal verschmolzen. Mt V zu einem kurzen Stummel reduziert. Lebend und im Pleistocän von ganz Amerika.
Platygonus Le Conte. Vor den drei P langes Diastema. Höcker der M zu Jochen verbunden. Seitenzehen fast ganz reduziert. Obermiocän bis Pleistocän von Nordamerika. Mylohyus Leidy. 22 J. Höcker konisch. Metacarpale II und V noch mit Zehengliedern. Pleistocän. Nordamerika.
Prosthenops Matthew. Diastema nicht sehr lang. Oben nur 2 J, 1 C, 3 P. Obermiocän und Pliocän von Nebraska.
Doliochoerus Filhol. Höcker jochartig angeordnet. Oligocän. Phosphorite von Quercy.
Listriodon Meyer. (Fig. 658.) 33 P. Obere J mit breiten Kronen, untere horizontal, meißelförmig. Oberer C dick und kurz, dreikantig und aufwärts gekrümmt. Untere C lang, dreikantig, bogenförmig. P4 dreihöckerig, die übrigen kurz und dick. M mit zwei Querjochen. Mittel- und Obermiocän von Europa L. splendens Meyer und in den indischen Siwalikschichten.
Hippohyus Falconer. Molarhöcker mit zahlreichen Falten. Siwalik. Ostindien.
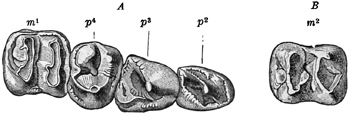
Fig. 658.
Listriodon splendens v. Meyer. Miocän (Sarmatische Stufe.) Nußdorf bei Wien. A Prämolaren und erster Molar des Oberkiefers. B zweiter Molar des Unterkiefers. 3/4 nat. Gr.
Sus Lin. (Fig. 659.) J und C wie bei Listriodon, M mit vier stumpfen, niedrigen Haupthöckern und zahlreichen Nebenhöckern. M3 mit langem Talon. Lebend in Europa, Asien und Nordafrika. Fossil im Unterpliocän von Montebamboli — S. choeroides Pomel — im Unterpliocän von Eppelsheim, Pikermi etc. S. antiquus Kaup, erymanthius Roth. Mehrere Arten in China und in den Siwalik. Im Oberpliocän von Toskana S. Strozzii Meneghini und im Pleistocän von Europa S. scrofa Linn.
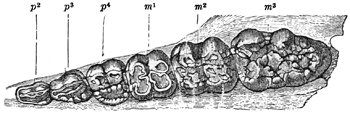
Fig. 659.
Sus erymanthius Roth und Wagner. Unterpliocän. Pikermi bei Athen. Backenzähne des Oberkiefers, 1/2 nat. Gr. (Nach Gaudry.)
2. Familie. Elotheriidae.[150]
3.1.4-3.3.3.1.4-3.3. Schädel mit schmalem kleinem Cranium und langer Schnauze. J, C und P kräftig entwickelt. J und C konisch. P höher als die M und mit Ausnahme von P4 einspitzig. Hypocon der oberen fünfhöckerigen M aus dem Basalband entstanden. Vordere Hälfte der unteren M höher als die hintere. Extremitäten vier- oder zweizehig.
Die Elotheriidae unterscheiden sich von den Suiden hauptsächlich durch die primitive Ausbildung der J, C und P, sowie dadurch, daß der zweite Innenhöcker der oberen M nicht aus dem Metaconulus, sondern aus einer Basalwarze entstanden ist.
Achaenodon Cope (Parahyus Marsh?). Schädel bärenähnlich, 33 P. Obereocän. Uintabed. Wyoming. A. insolens Cope.
Protelotherium Osborn. Jochbogen ohne Fortsatz, breite Stirn. Nur drei obere P vorhanden, obere M fünfhöckerig. Extremitäten vierzehig. Obereocän. Uintabed P. uintense Osborn.
Elotherium Pomel (Entelodon Aymard, Archaeotherium Leidy). (Fig. 660.) Obere M fünfhöckerig, mit Zwischenhöcker in der Vorderhälfte, alle mit starkem Basalband. Unterer M3 ohne Hinterhöcker. Jochbogen mit nach unten gerichtetem Fortsatz. Unterkiefer mit Protuberanzen am Unterrand. Extremitäten zweizehig. 13 Brust- und 6 Lendenwirbel. Oligocän von Ronzon (Hte. Loire), Lobsann im Elsaß, Phosphorite von Quercy (E. magnum Aymard) und im Oligocän (White River) E. Mortoni Leidy, Untermiocän (John Day) von Nordamerika E. (Boochoerus, Daeodon) humerosus Cope.
Dinohyus Peterson, ähnlich Elotherium. Miocän. Nebraska.
3. Familie. Leptochoeridae. Leidy.
Obere M viel kürzer als breit, trituberkulär mit Zwischenhöckern, untere M vierhöckerig. Vorderhälfte viel höher als die Hinterhälfte. P gestreckt, die unteren sehr kompliziert. Metapodien dünn.
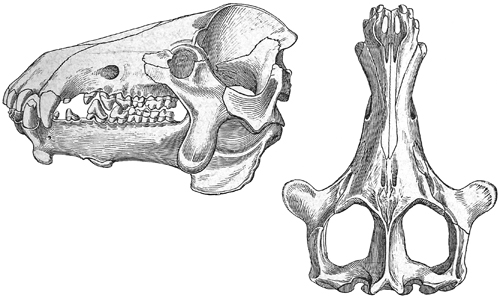
Fig. 660.
Elotherium crassum. Oligocän (White Riverbed.) Dakota. Schädel von der Seite u. von oben, 1/8 nat. Gr. (Nach Marsh.)
Kleine Formen von nicht ganz sicherer systematischer Stellung und auf das Oligocän von Nordamerika beschränkt.
Leptochoerus Leidy. (Laopithecus Marsh, Menotherium, Stibarus Cope, Oligocän (White Riverbed).
4. Familie. Hippopotamidae. Flußpferde.
3-2.1.4.3.3-1.1.4.3. Obere und untere M mit vier stumpfen gefalteten Höckern, bei der Abkauung eine kleeblattartige Figur bildend. P einfach. Obere C sehr dick, kurz, vorne abgekaut. Untere C gewaltig groß, dreikantig, bogenförmig, hinten mit Abkauungsfläche. Untere J zylindrisch, sehr lang, wurzellos, nach vorne gerichtet. Alle Carpalia, Tarsalia und Metapodien getrennt. Füße vierzehig, seitliche Zehen nicht viel schwächer und kürzer als die mittleren. Endphalangen mit nagelartigen Hufen.
Die einzige noch jetzt lebende Gattung dieser Familie ist auf das tropische Afrika beschränkt. Fossil findet sie sich im Pliocän und Pleistocän von Asien, Europa und Afrika.
Hippopotamus Lin. wird je nach der Zahl der J in die Subgenera Hexaprotodon und Tetraprotodon Falconer zerlegt. Im Pliocän von Ostindien H. sivalensis Falconer, im Mittelpliocän von Ägypten und Algier H. hipponensis Gaudry, im Oberpliocän von Val d'Arno H. major und Pentlandi Falconer im europäischen Altpleistocän dem lebenden amphibius nahestehend. Im Altpleistocän von Trinil (Java) sivajavanicus Dubois. Aus Algier beschreibt Pomel mehrere Arten. Zwergformen sind aus Höhlen auf Malta, Cypern und Kreta bekannt, sowie aus sehr jungen Ablagerungen von Madagaskar, H. madagascariensis Grandidier.
B. Bunoselenodontia.
5. Familie. Anthracotheriidae.[151]
Ausgestorbene Paarhufer mit vollständigem Gebiß. 3.1.4.3.3.1.4.3. Obere M mit vier Haupthöckern und einem Zwischenhöcker in der vorderen Hälfte, untere M mit je zwei konischen Innen- und halbmondförmigen Außenhöckern. P meist kurz, die drei vorderen einspitzig, meist durch ein Diastema vom C getrennt. Carpalia, Tarsalia und Metapodien nicht verwachsen. Füße vierzehig, die Seitenzehen meist dünner und kürzer als die mittleren. Untere Astragalus trochlea nicht gegen die obere verschoben.
Die Anthracotheriiden bilden eine primitive Gruppe der Paarhufer, welche vorzugsweise in Europa, spärlicher in Nordamerika, Nordafrika und Ostindien verbreitet war. Die ältesten Überreste finden sich im Eocän (Bohnerze, Phosphorite), das Hauptlager für Anthracotherien ist das Oligocän. Die jüngsten Formen erlöschen im Miocän.
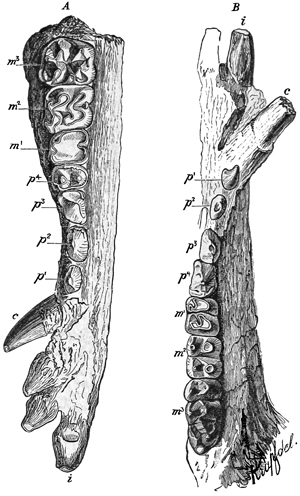
Fig. 661.
Anthracotherium magnum Cuv. Oligocän. La Rochette bei Lausanne. A Oberkiefer, B Unterkiefer. 1/3 nat. Gr.
Anthracotherium Cuv. (Fig. 661.) Obere M breiter als lang, mit vier ⋁förmigen oder konischen Höckern und einem vorderen sichelförmigen Metaconulus. Untere M vierhöckerig, M3 mit drittem Halbmond. J oben und unten schaufelförmig, C sehr kräftig entwickelt. Diastema klein. Häufig im Oligocän von Europa, namentlich in kohleführenden Ablagerungen, selten im Miocän? von Ostindien. Die Arten variieren in der Größe zwischen Rhinoceros (A. magnum Cuv., A. alsaticum Cuv.) und Schwein (A. minus Cuv. valdense Kow.). Auch im Oligocän (White Riverbed) von Nordamerika kommen Anthracotherium und ähnliche Formen vor — Heptacodon, Octacodon Marsh.
Brachyodus Gervais. Backenzahnreihe geschlossen. Obere M quadratisch. Oberoligocän B. porcinus Gerv., und Mittelmiocän von Europa B. onoideus Gerv. und Untermiocän von Ägypten B. africanus Andrews.
Ancodus Pomel (Hyopotamus Owen, Bothriodon Aymard). (Fig. 662, 663.) Schädel länger und niedriger als bei Anthracotherium. C schwächer und durch langes Diastema vom ersten P getrennt. Hügel der oberen M ausgezeichnet ⋁förmig, die Innenhöcker der unteren M spitz konisch. Oligocän, besonders häufig in Ronzon (Hte. Loire). A. velaunus Cuv., bovinus Owen. Im Oligocän von Ägypten A. Gorringei Andrews, in dem von Nordamerika A. americanus Leidy. Die nordamerikanischen Formen unterscheiden sich durch die kürzere Schnauze und durch den Besitz eines großen Daumens.
Elomeryx Marsh. Arretotherium Douglass. Oligocän. Montana. Obere M mit nur vier ⋁förmigen Höckern. Vordere P schwach.
Merycopotamus Falcon und Cautley. Obere M mit nur vier ⋁förmigen Hügeln. Untere Siwalikschichten von Ostindien. M. nanus Lydekker.
Rhagatherium Pictet (Hyopotamus Rütimeyer). Obere M mit fünf spitzen Höckern und mit Mesostyl. P4 M-artig, unterer P4 und die übrigen P sehr kompliziert und gestreckt. Zahnlücke vor P2. Eocäne Bohnerze. R. valdense Pictet von Mormont, frohnstettense Kow. von Sigmaringen.
Haplobunodon Depéret (Dichodon, Acotherulum Rütimeyer, Anthracotherium Lydekker). M wie beim vorigen, P einfach, P1 Cartig, weit von P2 abstehend. Unterkiefer niedrig. Eocän. Bohnerze der Schweiz. H. Mülleri Rütimeyer und solodurense Stehlin von Egerkingen.
Thaumastognathus Filh. Phosphorite von Quercy. Lophiobunodon Depéret. Obereocän.
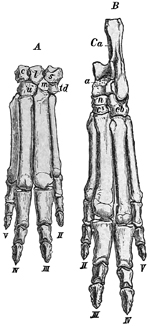
Fig. 662.
Ancodus (Hyopotamus) velaunus Cuv. sp. Oligocän. Ronzon bei Le Puy. A Vorderfuß, B Hinterfuß. 1/5 nat. Gr. (Nach Kowalewsky.)
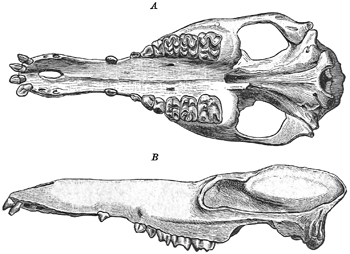
Fig. 663.
Ancodus (Hyopotamus) velaunus Cuv. sp. Oligocän. Ronzon bei Le Puy. Schädel von oben und unten, 1/4 nat. Gr. (Nach Filhol.)
6. Familie. Anoplotheriidae.
3.1.4.3.3.1.4.3. Zahnreihe meist vollständig geschlossen. J1 öfters vergrößert, vertikal und voneinander getrennt. Alle J, C und P meist allmählich ineinander übergehend, die vorderen P verlängert und schneidend. M bunoselenodont. Obere M im Umriß trapezoidal, mit vier ⋁förmigen Höckern und konischem Protocon. Untere M mit ⋁förmigen Außenhöckern und zwei oder drei konischen Innenhöckern, im letzteren Falle zwei in der Vorderhälfte jedes M. Hand mit vier bis zwei, Hinterfuß mit vier bis drei Zehen. Bei Anwesenheit von vier Zehen mittlere Metapodien kurz und plump, Seitenzehen dünn, bei nur drei Zehen, die zweite kurz und dick und seitlich abstehend. Carpalia und Tarsalia frei, Endphalangen krallenähnlich. Schwanz sehr lang.
Der Schädel hat, abgesehen von der Kürze und Breite der Schnauze, einige Ähnlichkeit mit dem von Camelus. Durch die Länge des Schwanzes und die mit krallenähnlichen Endphalangen versehenen Extremitäten gleichen die Anoplotherien eher Carnivoren als Huftieren. Sie sind auf das Eocän und ältere Oligocän von Europa beschränkt.
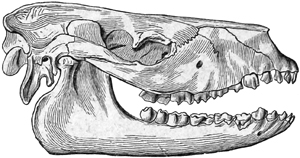
Fig. 664.
Anoplotherium commune Cuv. Ob. Eocän (Gips). Montmartre bei Paris. Schädel 1/5 nat. Gr. (Nach Blainville.)
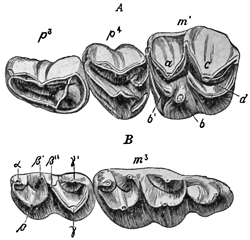
Fig. 665.
Anoplotherium latipes Gerv. sp. Ob. Eocän (Phosphorite) Escamps. Quercy. A die zwei hinteren P und der vorderste M des Oberkiefers. B die zwei letzten M des Unterkiefers (nat. Gr.).
Anoplotherium Cuv. (Eurytherium Gervais). (Fig. 664, 665.) Außenwand der oberen M W-förmig, Zwischenhügel nur in der vorderen Hälfte klein, vorderer Innenhöcker konisch, hinterer ⋁förmig. Untere M mit zwei Halbmonden auf Außenseite und drei spitzen Höckern auf Innenseite, davon zwei in der Vorderhälfte des Zahnes. C in beiden Kiefern P ähnlich. Die Anoplotherien waren kurzbeinige, gedrungene, mit langem kräftigen Schwanz versehene Huftiere von Tapirgröße, die wahrscheinlich den Schwanz als Schwimmorgan benutzten. Ihre drei Zehen waren wohl durch Schwimmhaut verbunden. Im Obereocän von Paris A. commune Cuv. Hand mit nur zwei Zehen. Débruge bei Apt A. (Eurytherium) latipes Gervais. Hand dreizehig.
Diplobune Rütimeyer (Hyracodontherium Filhol). (Fig. 667.) Sehr ähnlich Anoplotherium, jedoch kleiner. Oberer erster J vergrößert. Die oberen M sind relativ breit, und an den unteren M stehen die beiden vorderen Innenhöcker ganz dicht beisammen. Extremitäten dreizehig. Wangenfläche ohne Grube. Im Oligocän, Bohnerz von Ulm und Pappenheim und in den Phosphoriten von Quercy. D. Quercyi Filhol, D. bavaricum Fraas. Im Eocän D. secundarium Cuv. sp.
Fig. 666.
Orthaspidotherium. Unt. Eocän von Reims. A oberer Molar, B unterer M3 2/1 nat. Gr.
Dacrytherium Filhol (Plesidacrytherium Filhol). Wangenfläche mit tiefer Infraorbitalgrube. Vorderer Innenhöcker der unteren M schwach entwickelt. P relativ einfach. Zwei wohlentwickelte, aber dünne Seitenzehen. Mittel- und Obereocän. Phosphorite. Schweizer Bohnerze.
Leptotheridium Stehlin (Rhagatherium, Caenotherium Pictet, Hyopotamus Rütimeyer). Klein. Eocän. Schweiz. Bohnerze.
Catodontherium Depéret. Wange mit seichter Vertiefung. Schnauze schmal. P gestreckt. P4 einfach. Vorderster Innenhöcker der unteren M sehr schwach. Eocän. Schweizer Bohnerze C. fallax Stehlin. Robiac C. robiacense Depéret.
Mixtotherium Filhol (Adrotherium Filhol, Hyopotamus Rütimeyer). P4 fast M-artig. C fast normal entwickelt. Schnauze kurz, Unterkiefer sehr hoch, Schädel mit kleinem Cranium und weit abstehenden Jochbogen. Eocän. Phosphorite.
Orthaspidotherium Lemoine (Fig. 666). Untereocän. Reims. Sehr klein.
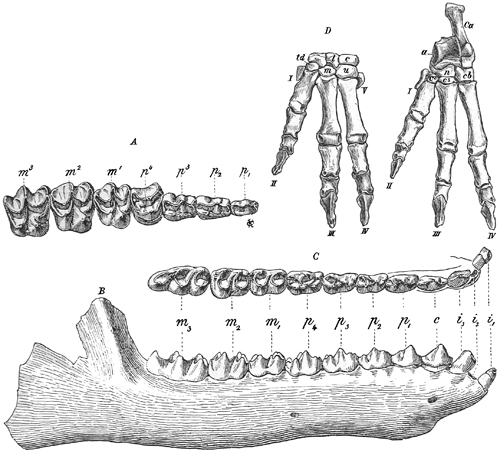
Fig. 667.
Diplobune Quercyi Filhol. Bohnerz. Eselsberg bei Ulm. A Backenzähne und Prämolaren des Oberkiefers. B rechter Unterkiefer von der Seite. C Unterkieferzähne von oben (2/3 nat. Gr.) D Vorderfuß, E Hinterfuß (1/4 nat. Gr.).
7. Familie. Dichobunidae.
Ausgestorbene, kleine Paarhufer mit vollständigem Gebiß 3.1.4.3.3.1.4.3. Obere M mit drei Höckern in der hinteren Hälfte, die Innenhöcker ⋁förmig, die übrigen meist konisch. Untere M mit konischen Innen- und ⋁förmigen Außenhöckern. Vorderer Innenhöcker meist doppelt. Vorderhälfte der unteren M etwas höher als die hintere. Extremitäten vierzehig. Seitenzehen dünn. Schädel Tragulusähnlich.
Durch den Besitz von drei Höckern in der Hinterhälfte der oberen M unterscheidet sich diese Familie von allen übrigen Paarhufern, obwohl sie im übrigen viele Ähnlichkeit mit primitiven Suiden, Anthracotheriiden und Traguliden aufweist. Die Dichobuniden beginnen in Europa schon im ältesten Eocän, sterben aber im Oligocän aus. In Amerika sind sie auf das Obereocän beschränkt.
Dichobune Cuvier (Fig. 668). (Microchoerus Wood, Hyopotamus Rütimeyer. Obere Zahnreihe geschlossen. Obere M mit Mesostyl. Alle Höcker mehr oder wenig konisch. P einfach. Obereocän, Bohnerze, Pariser Gips bis Oligocän. D. leporina Cuv.
Hyperdichobune Stehlin. Oberer P1 kompliziert. Eocän. Schweizer Bohnerze.
Mouillacitherium Filhol (Necrolemur, Hyopsodus Rütimeyer). Ohne Zwischenhöcker in Vorderhälfte der oberen M. Untere P gestreckt. Eocän. M. Cartieri Rütimeyer sp.
Meniscodon Rütimeyer (Phenacodus, Protogonia Rütimeyer). Mittelgroße Tiere. Obere M ohne Mesostyl, mit großem Parastyl. Mitteleocän. Bohnerz von Egerkingen. M. europaeus Rütimeyer sp.
Metriotherium Filhol (Deilotherium, Spaniotherium Filhol). Groß. Phosphorite von Quercy.
Protodichobune Stehlin. Untereocän von Epernay.
Homacodon Marsh. Obere M sechshöckerig, untere M vierhöckerig, dichobuneähnlich und Helohyus Marsh. Obere M mit fünf Höckern, untere M mit zwei Innenhöckern in der Vorderhälfte. Mitteleocän. Bridgerbed. Wyoming.
Sarcolemur Cope. Sehr spitze Höcker an den unteren M. Ebendaselbst.
Trigonolestes Cope. Obere M dreihöckerig (?). Untereocän, Wasatchbed von Wyoming. T. (Pantolestes) brachystomus Cope.
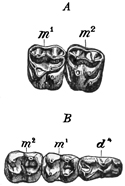
Fig. 668.
Dichobune leporina Cuv. Phosphorite. Escamps. Quercy. A zwei Molaren des Oberkiefers, B letzter Milchzahn und die zwei vorderen Molaren des Unterkiefers. (Nat. Gr.)
C. Selenodontia.
8. Familie. Xiphodontidae.
Zahnreihe geschlossen. 3.1.4.3.3.1.4.3. Backenzähne selenodont. Obere M mit vier oder fünf Halbmonden, der Zwischenhügel in der vorderen Hälfte. Untere M mit zwei komprimierten Innenhöckern und zwei äußeren Halbmonden. Vordere P gestreckt, unterer P4, seltener auch der obere P4 sehr kompliziert. Unterer P1 als Eckzahn ausgebildet, oder J, C und P ineinander übergehend. Extremitäten lang, schlank, zweizehig. Seitliche Metapodien zu kurzen proximalen Stummeln reduziert, mittlere getrennt.
Im europäischen Obereocän. Phosphorite von Quercy, Bohnerze, Débruge bei Apt.
Die Xiphodontiden sind schlanke, hochbeinige, an Hirsche erinnernde Selenodonten, die aber sehr bald vollständig erlöschen.
Xiphodon Cuv. (Fig. 669.) Obere M mit fünf Halbmonden. P4 einfach. Cuboid und Naviculare getrennt. Eocän. X. gracile Cuv., castrense Kowalewsky.
Amphimeryx Pomel (Hyaegulus Pomel, Xiphodontherium Filhol). Außenhöcker der fünfhöckerigen oberen M halbmondförmig. Zahnlücke zwischen den unteren P2 und P3. Unterkieferrand ohne Einbuchtung. Eocän. Bohnerze der Schweiz, Pariser Gips, Débruge, Phosphorite von Quercy. Oligocän. Ronzon.
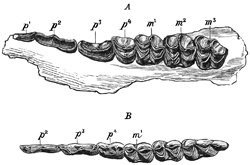
Fig. 669.
Xiphodon gracile Cuv. Ob. Eocän. Débruge bei Apt. Vaucluse. A Backenzähne des Oberkiefers, B des Unterkiefers. 3/4 nat. Gr.
Pseudamphimeryx Stehlin (Caenotherium Pictet, Mioclaenus, Plesiomeryx Rütimeyer). Ohne Zahnlücke zwischen P2 und P3. Unterkieferrand eingebuchtet. Schweizer Bohnerze. Phosphorite von Quercy.
Eine oder beide Gattungen besitzen fadenartige seitliche Metapodien. Cuboid und Naviculare verschmolzen.
Dichodon Owen. Obere M mit vier Halbmonden. Ecken der Außenmonde der oberen und der Innenhöcker der unteren M weit vorspringend. Letzter P in beiden Kiefern sehr kompliziert, der obere P4 M-artig, P4 D4 ähnlich. Obereocän. England. D. cuspidatus Owen. Bohnerz von Sigmaringen D. frohnstettensis Fraas.
Haplomeryx Schlosser. P mäßig kompliziert. Obere M anfangs mit fünf, später mit vier Halbmonden. Eocän. Phosphorite, Schweizer Bohnerze.
Tapirulus Gervais. Obere M fünfhöckerig, ohne Mesostyl. Höcker der oberen und Innenhöcker und Monde der unteren M paarweise zu Jochen verbunden. Zahnreihe geschlossen. P mit Ausnahme von P4 trikonodont. Phosphorite. Schweizer und Ulmer Bohnerze. Systematische Stellung unsicher, vielleicht eine Suide.
9. Familie. Caenotheriidae.
Zahnreihe fast vollständig geschlossen, in der Regel 3.1.4.3.3.1.4.3. Obere M aus fünf halbmondförmigen Höckern bestehend, der Protocon in die Hinterhälfte der Krone verschoben. Untere M mit zwei äußeren Halbmonden und zwei konischen Innenhöckern, von denen der zweite nach vorwärts gerückt ist. P ziemlich einfach, oberer C klein, unterer als vierter J, und P1 als Eckzahn entwickelt. Extremitäten vierzehig, die Seitenzehen kürzer und dünner als die Mittelzehen. Cuboid und Naviculare getrennt. Obereocän bis Untermiocän. Europa.
Die Überreste dieser zierlichen, kaum Hasengröße erreichenden Tiere, die offenbar in Rudeln lebten, finden sich besonders häufig in den Phosphoriten von Quercy und im Untermiocän der Auvergne und des Mainzer Beckens.
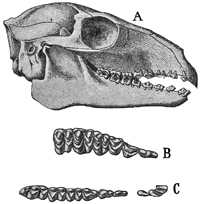
Fig. 670.
Caenotherium elongatum Filhol. Oligocän. Phosphorite von Quercy. A Schädel 2/3 nat. Gr. B obere P2 bis M3, C untere Zahnreihe. J2 bis M3.
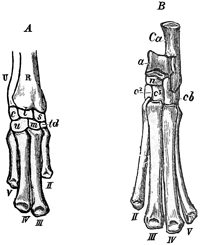
Fig. 671.
Caenotherium sp. Oligocän. Phosphorite. Quercy. A Vorderfuß, B Hinterfuß. 4/5 nat. Gr. (Nach Schlosser.) (Die nicht schattierten Carpalia und Tarsalia sind ergänzt.)
Oxacron Filhol (? Hyaegulus Pomel). Protocon der oberen M fast in der Mitte des Zahnes gelegen. 33 P. Obereocän. Phosphorite, Débruge, Mormont.
Caenotherium Bravard (Microtherium Meyer). (Fig. 670, 671.) Unterkiefer und Extremitäten relativ plump. Oligocän und Untermiocän.
Plesiomeryx Filhol. Extremitäten und Unterkiefer schlank. Ebenda.
10. Familie. Oreodontidae. Leidy.[152]
Gebiß meist vollständig. 3.1.4.3.3.1.4.3. in geschlossener Reihe, manchmal mit Diastema. Backenzähne selenodont. Obere M mit vier, selten mit fünf Halbmonden. P in der Regel einspitzig, seitlich komprimiert, ziemlich kurz. P4 zuweilen M-artig. Unterer P1 stets als Eckzahn, C als vierter Incisiv fungierend. Ulna, Radius, Carpalia, Tarsalia und Metapodien getrennt. Extremitäten vierzehig, Seitenzehen dünner und etwas kürzer als die Mittelzehen. Zuweilen noch ein Daumen vorhanden.
Die Oreodontiden sind vollkommen ausgestorben und bis jetzt nur aus dem Obereocän, Oligocän und Miocän von Nordamerika bekannt. Sie haben vermutlich mit den Cameliden die Stammform gemein.
1. Unterfamilie. Agriochoerinae.
Obere M mit tief ausgefurchten Außenhöckern. Humerus mit niedriger Trochlea. Endphalangen krallenartig. Schwanz lang. Augenhöhle nicht geschlossen.
Die Agriochoerinen haben äußerlich mehr Ähnlichkeit mit Carnivoren als mit Huftieren und gleichen hierin auffallend den Anoplotheriiden, von denen sie sich jedoch durch den Besitz von zwei Seitenzehen unterscheiden.
Protagriochoerus Scott. 44 P. Obere M mit fünf Höckern. P4 in beiden Kiefern einfach. Obereocän. Uintabed.
Agriochoerus Leidy (Artionyx Osborn, Merycopater, Coloreodon Cope, Agriomeryx Marsh). (Fig. 672.) Ohne obere J. 43 P. P4 in beiden Kiefern kompliziert. Obere M mit nur vier Höckern. Hand mit Daumen versehen. Oligocän. White Riverbed. A. major Leidy.
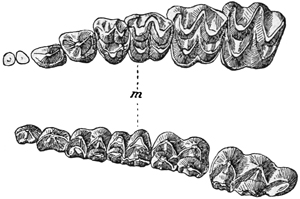
Fig. 672.
Agriochoerus latifrons Leidy. Oligocän. White Riverbed. Nebraska. Obere und untere Backenzahnreihe. 3/4 nat. Gr. (Nach Scott.)
2. Unterfamilie. Oreodontinae.
Obere M mit W-förmiger Außenwand. Humerus mit hoher Trochlea. Endphalangen hufartig. Schwanz kurz. Augenhöhle meist geschlossen.
Die älteren Oreodontiden haben sowohl in ihrem Habitus als auch in der Größe Ähnlichkeit mit den amerikanischen Schweinen, Dicotyles, die jüngeren erlangen zum Teil durch Verdickung und weites Ausbiegen der Jochbogen eine gewisse Ähnlichkeit mit Hippopotamus.
Protoreodon Scott und Osborn (Hyomeryx, Eomeryx Marsh). Zahnreihe geschlossen. Obere M mit Zwischenhöcker, Protoconulus, in der Vorderhälfte. Orbita hinten offen. Obereocän Uintabed. P. parvus Scott.
Limnenetes und Bathygenys Douglass. Ähnlich, jedoch M ohne Zwischenhöcker. Unterstes White Riverbed.
Oreodon Leidy. (Fig. 673, 674.) Zahnreihe geschlossen. Obere M aus vier Halbmonden bestehend. Orbita hinten geschlossen. Tränengruben groß. Schnauze kurz. Hand mit kurzem Daumen. Sehr häufig im Oligocän. White Riverbed von Nordamerika O. Culbertsoni, gracilis Leidy.
Eporeodon Leidy (Eucrotaphus Leidy). Schädel gestreckt. Ohne Daumen. Untermiocän. John Daybed. Nordamerika. E. major Leidy.
Mesoreodon Scott. Zahnkronen ziemlich hoch. Mittelmiocän. Deep Riverbed.
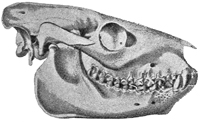
Fig. 673.
Oreodon Culbertsoni Leidy. Oligocän. White Riverbed. Nebraska. Schädel und Unterkiefer 1/3 nat. Gr. (nach Scott.)
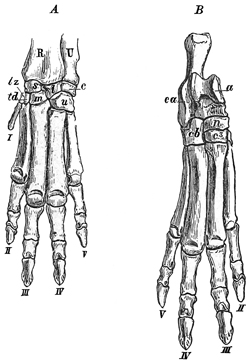
Fig. 674.
Oreodon Culbertsoni Leidy. A Vorderfuß, B Hinterfuß 1/3 nat. Gr. (nach Scott.)
Merycochoerus Leidy. Cranium hoch. Schädel kürzer als bei Oreodon. Jochbogen stärker und weiter vorragend. Schnauze lang. Prämolarreihe kurz. Skelett größer und plumper. Mittelmiocän. M. proprius Leidy.
Promerycochoerus Douglass. (Fig. 675.) Schädel und Prämolarreihe lang. Jochbogen hinten verdickt. Untermiocän. John Daybed.
Phenacocoelus Peterson. Mittelmiocän.
Merychyus Leidy (Ticholeptus Cope). Schnauze verkürzt, mit Lücke zwischen Tränen- und Stirnbein und Oberkiefer. Zähne ziemlich hochkronig. Seitenzehen stark reduziert. Mittel- und Obermiocän und Pliocän.
Leptauchenia Leidy. Schnauze verkürzt, Jochbogen hoch. Nur zwei untere J vorhanden. Zahnkronen ziemlich hoch. Oberstes Oligocän (White Riverbed) und Untermiocän.
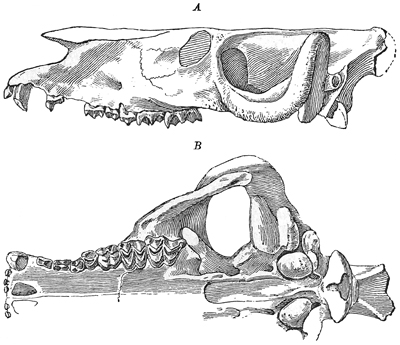
Fig. 675.
A Promerycochoerus macrostegus Cope. Schädel von der Seite. 1/4 nat. Gr. B Promerycochoerus superbus Leidy. Schädel von unten. Unt. Miocän. John-Daybed. Oregon. 1/4 nat. Gr. (Nach Cope.)
Cyclopidius Cope (Pithecistes Cope). Schädel flach. Mehrere Lücken im kurzen Gesichtsschädel, Jochbogen weit vorragend. Mittelmiocän. Deep Riverbed.
11. Familie. Camelidae. Tylopoda Illig.[153]
Gebiß mehr oder weniger vollständig 3-1.1.4-2.3.3.1.4-1.3. Backenzähne selenodont, vom C und häufig auch vom vordersten P durch Diastema getrennt. Obere M stets länger als breit. P häufig reduziert, der vorderste in beiden Kiefern C ähnlich. Halswirbel ohne Arterienkanal. Carpalia und Tarsalia frei, mit Ausnahme von Cuneiforme II und III. Extremitäten vier- oder zweizehig. Seitenzehen bei den späteren Formen gänzlich verschwunden. Mittlere Metapodien stets ohne vordere Leitkiele, bei den späteren Formen verschmolzen. Magen mit drei Abteilungen.
Von den zwei lebenden Gattungen bewohnt die eine — Camelus — Nordafrika und Asien, die andere — Auchenia — das westliche Südamerika. Die Familie stammt aus Nordamerika, wo sie vom Obereocän bis zum Pleistocän vertreten war. Im Pliocän gelangte sie nach Asien und von da nach Nordafrika. Die fossilen nordamerikanischen Formen bilden eine geschlossene Stammesreihe und führen auf indifferente, vierzehige eocäne Urformen mit getrennten Metapodien und vollständigem Gebiß zurück.
Der Schädel trägt weder Geweihe noch Hörner, seine langgestreckte Form, die schräg abfallende Schnauze mit den kurzen, aber hohen Zwischenkiefern, die stark vorspringenden, geschlossenen Augenhöhlen und die geringe Neigung der Gesichtsachse gegen die kraniale Achse verleihen ihm eine gewisse Ähnlichkeit mit dem Pferdeschädel. Das Gebiß unterscheidet sich von dem der Wiederkäuer durch die gestreckteren oberen M und durch die Anwesenheit von einem oberen C und mindestens einem oberen J. Die P können starke Reduktion erfahren.
Trotz der früh eintretenden Verschmelzung der Metapodien bleiben die Carpalia und Tarsalia frei mit Ausnahme von den miteinander verwachsenen Cuneiforme II und III. Das Trapezium kommt bei den jüngeren Formen in Wegfall. An den distalen Gelenken fehlen Leitkiele. Die fossilen Cameliden bilden in bezug auf Gebiß- und Skelettentwicklung eine ausgezeichnete, eng geschlossene Reihe, deren ältere Glieder sich mit Embryonen der lebenden Gattungen Camelus und Auchenia vergleichen lassen.
1. Unterfamilie. Leptotragulinae. Cope.
Gebiß vollständig, ohne Zahnlücke. 3.1.4.3.3.1.4.3. brachyodont, C größer als J. P mit Ausnahme von P4 schneidend. Obere M aus vier Halbmonden bestehend. Metapodien nicht verwachsen, Hand vierfingerig, Fuß zweizehig mit proximalen Griffelbeinen. Radius und Ulna erst im Alter fest verbunden. Schädeldach eben. Schnauze kurz.
Bunomeryx Wortman. Obere M mit fünf ⋁förmigen Höckern. 43 P, Molaren an Homacodon erinnernd, aber echt selenodont. Wohl eher verwandt mit Protoceras als mit den Cameliden. Obereocän. Uintabed B. elegans Wortman.
Leptotragulus Scott und Osborn (Parameryx Marsh). Uinta- bis Titanotheriumbed. Unvollständig bekannt, ebenso Oromeryx Marsh.
Protylopus Wortman. Schnauze kurz. Orbita hinten nicht geschlossen. Obereocän. Uintabed. P. Petersoni Wortman.
Eotylopus Matthew. Oligocän. Titanotheriumbed.
2. Unterfamilie. Poëbrotheriinae. Cope.
Gebiß vollständig, meist mit 3.1.4.3.3.1.4.3. Zwischenkiefer und Symphyse verlängert. Orbita hinten nicht vollständig geschlossen. Metapodien getrennt. Hand und Fuß zweizehig, digitigrad. Endphalangen hufartig. Seitenzehen nur durch proximale Stummel angedeutet. Ulna und Radius verwachsen. Oligocän und Untermiocän von Nordamerika.
Poëbrotherium Leidy (Fig. 676). Mit kleinem unteren C. Größe von Reh. Oligocän (White Riverbed). P. Wilsoni Leidy.
Paratylopus Douglass (Gomphotherium Cope). (Fig. 677.) Unterer C groß. Orbita fast geschlossen. Gesicht verkürzt. Von Wildschafgröße. Untermiocän, John Day- und Oligocän, Protocerasbed.
Oxydactylus Douglass. Protomeryx Leidy. Mittelmiocän.
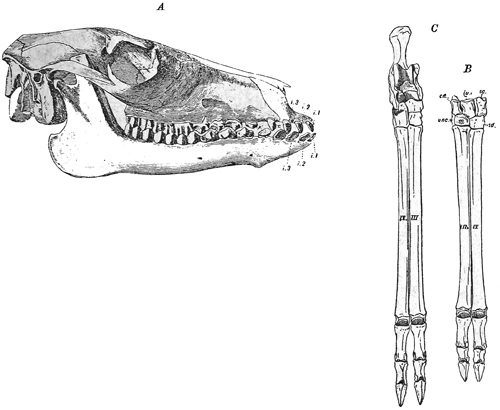
Fig. 676.
Poëbrotherium Wilsoni Leidy. Oligocän. White Riverbed. Nebraska. A Schädel und Unterkiefer 2/5 nat. Gr. B Vorderfuß. C Hinterfuß 1/3 nat. Gr. (nach Wortman.)
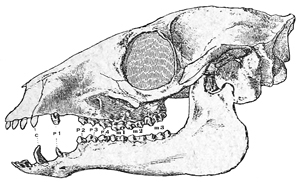
Fig. 677.
Paratylopus Sternbergi Cope sp. Untermiocän. John Daybed. Oregon. Schädel und Unterkiefer. 1/4 nat. Gr. (Nach Wortman.)
3. Unterfamilie. Protolabinae. Cope.
Gebiß vollständig. Orbita vollständig geschlossen. Extremitäten zweizehig, semidigitigrad. Hauptmetapodien meist zu einem Canon verwachsen. Ulna und Radius verwachsen.
Im Miocän von Nordamerika. Lama- bis Kamelgröße.
Protolabis Cope. 3.1.4.3.3.1.4.3. P1 zuweilen fehlend. Metapodien nicht verschmolzen. Obermiocän. Colorado.
Stenomylus Peterson. M langgestreckt und hochkronig. Mittelmiocän.
Procamelus Cope. 1.1.3.3.3.1.3.3. Selten mit vier P. Obermiocän und Pliocän.
Pliauchenia Cope. Ohne P2. Obermiocän und Pliocän von Texas und Nebraska.
Alticamelus Matthew. Ohne obere J1 und J2, jedoch mit 44 P. Hals, Metapodien, Femur und Tibia ungewöhnlich lang. Obermiocän von Colorado und Pliocän von Nebraska.
4. Unterfamilie. Camelinae. Cope.
Gebiß mehr oder weniger reduziert. Ulna mit Radius verwachsen. Extremitäten zweizehig. Alle drei Zehenglieder dem Boden aufliegend. Metapodien verschmolzen.
Im Pliocän und Pleistocän von Nord- und Südamerika und im Unterpliocän von Indien und China. Lebend in Asien, Nordafrika und Südamerika.
Camelus Lin. (Merycotherium Bojanus). 1.1.3.3.3.1.3.3. Im Milchgebiß noch drei obere Schneidezähne. J3 C-ähnlich. Zahnlücke vor und hinter C und hinter dem vordersten P. Untere J schaufelartig, C kräftig. P3 und P4 aus Außenwand und innerem Halbmond bestehend. M ziemlich hoch. Lebend in Nordafrika und Asien. Fossil im Unterpliocän von Indien C. sivalensis Falc. Cautl. und China und im Pleistocän von Sibirien und Südrußland, C. sibiricus Boj. sp., von Rumänien C. alutensis Stefanescu, von Algier C. Thomasi Pomel und von Nordamerika C. americanus Wortman.
Protauchenia Branco, Palaeolama Gervais, Hemiauchenia, Stilauchenia, Lamaops Ameghino im Pleistocän von Südamerika.
Anchenia Illiger. 1.1.2.3.3.1.1.3. Lebend und im Pleistocän von Südamerika.
Camelops Leidy, Holomeniscus und Eschatius Cope stehen Auchenia nahe, sind aber nur unvollständig bekannt. Pliocän? und Pleistocän von Oregon, Kalifornien und Mexiko.
12. Familie. Tragulidae. Zwerghirsche.[154]
Schädel geweihlos. 0.1.4-3.3.3.1.4-3.3. Ohne obere J. Oberer C säbelartig, unterer als vierter Incisiv ausgebildet. Zahnlücke ziemlich weit. M selenodont, mit nur vier Höckern, die oberen allseitig vom Basalband umgeben. P verlängert, seitlich komprimiert und mit Ausnahme von P4 schneidend. Carpalia und Tarsalia teilweise verschmolzen. Mittlere Metapodien viel stärker als die vollständig erhaltenen seitlichen, getrennt oder zu einem Canon verwachsen. Reduktion der Seitenzehen adaptiv. Magen mit drei Abteilungen.
Die Traguliden erreichen höchstens die Dimensionen vom Reh. Sie beginnen im Oligocän von Europa und gehen wohl auf Dichobune ähnliche Formen zurück. Im Miocän sind sie bereits überaus selten und nur durch Dorcatherium vertreten, aus welchem sich die jetzt in Westafrika lebende Gattung Hyaemoschus entwickelt hat. Dagegen ist der Vorfahre der jetzt in Südindien und auf den Sundainseln verbreiteten Gattung Tragulus bis jetzt noch nicht ermittelt.
Der hornlose Schädel, die freibleibende Ulna, die unvollständige Verschmelzung der Hauptmetapodien, die Persistenz der seitlichen Metapodien, die bei den Gelocinen freilich in der Mitte aufgelöst werden, und die gestreckten einfacheren und schneidenden P verleihen den Traguliden ein ursprünglicheres Gepräge gegenüber den Cervicornia und den Cavicornia, von welchen sich die beiden lebenden Gattungen auch durch die diffuse Placenta und den dreiteiligen Magen unterscheiden. Hingegen fehlen auch bei ihnen schon die oberen J, und die M haben große Ähnlichkeit mit jenen der Cervicornia, welche auch sicher auf gewisse Traguliden — Gelocinen — zurückgehen, denn sie sind mit diesen durch die geweihlosen Gattungen Amphitragulus und Dremotherium innig verbunden. Auch für die Cavicornia mit hirsch- und rinderähnlicher Bezahnung ist die Abstammung von den Gelocinen sehr wahrscheinlich.
1. Unterfamilie. Tragulinae.
Hinterhaupt groß und schmal. Bullae mit zelligem Gewebe erfüllt. P einfach, langgestreckt, mit Ausnahme von P4. Untere M meist mit schräger, von der Spitze des ersten Innen- und öfters auch des ersten Außenhöckers nach hinten verlaufenden Leiste. Obere M mit starkem Cingulum. Seitliche Metapodien vorne und hinten vollständig. Cuboid und Naviculare, später auch die Cuneiformia zu einem Knochen verschmolzen.
Fossil im Oligocän, Miocän und Unterpliocän von Europa und im Pliocän und Pleistocän von Südasien. Lebend in Südostasien und Westafrika. Die oligocänen Gattungen haben keine Nachkommen hinterlassen.
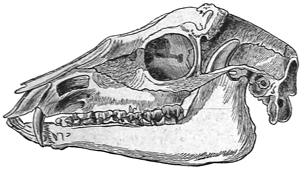
Fig. 678.
Dorcatherium Naui Kaup. Unt. Pliocän. Eppelsheim bei Worms. Schädel, 1/3 nat. Gr. (Nach Kaup.)
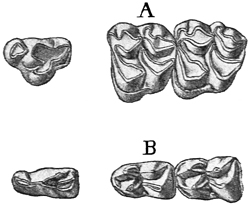
Fig. 679.
Dorcatherium crassum Lartet sp. Obermiocän. Günzburg. A obere P3, M2, M3. B unterer P3, M1, M2.
Cryptomeryx Schlosser. 34 P. Untere M mit Leiste am ersten Innenhöcker. Oligocän? Phosphorite von Quercy.
Lophiomeryx Pomel. Obere M vierhöckerig, untere ohne Leiste, mit konischem ersten Innenhöcker. Metapodien getrennt. Oligocän. Cournon, Frankfurt a. M., Phosphorite von Quercy.
Dorcatherium Kaup. (Fig. 678, 679.) 34 P, obere M vierhöckerig, untere M mit Leiste am ersten Innen- und Außenhöcker. Oberer C dolchartig. Vordere Metapodien getrennt, hintere verschmolzen. Seitenzehen sehr dünn. Obermiocän von Europa. D. guntianum Meyer, crassum Lart. sp. Unterpliocän. D. Naui Kaup. Pliocän von Indien. D. majus Lyd.
Hyaemoschus Gray. 33 P. Lebend in Westafrika.
Tragulus Brisson. (Fig. 652 D.) Kleiner. Mittlere Metapodien im Alter fest verwachsen. Pliocän und Pleistocän von Südindien T. sivalensis Lyd. Lebend T. meminna Gray.
2. Unterfamilie. Gelocinae.
Untere M ohne Leisten am ersten Innen- und am ersten Außenhöcker. Mittlere Metapodien mehr oder weniger fest zu einem Canon verwachsen, seitliche dünn und in der Mitte aufgelöst. Cuboid und Naviculare miteinander verschmolzen. Oligocän von Europa.
Unter den Gelocinen haben wir sowohl die Ahnen der Hirsche, als auch die Stammeltern der Cavicornier mit hirsch- oder rinderähnlichen Backenzähnen zu suchen.
Gelocus Aymard. (Fig. 680.) Obere M niedrig, mit vier Höckern. Innenhöcker der unteren M massiv. P einfach, langgestreckt. Kleiner unterer P1 vorhanden. Im Oligocän von Ronzon, Ulm, Böhmen und Phosphorite von Quercy.
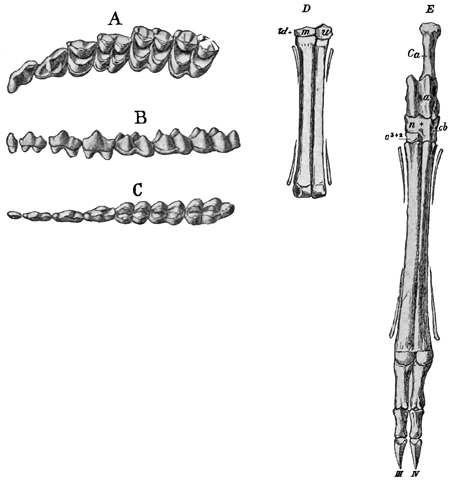
Fig. 680.
Gelocus communis Aymard. Oligocän. Ronzon (Haute Loire). A obere Backenzähne, B untere P und M von außen. C von oben. D Vorderfuß, E Hinterfuß 1/2 nat. Gr. (n. Kowalewsky.)
Paragelocus Schlosser. Obere M mit fünf Höckern und Pseudogelocus Schlosser mit komplizierten unterem P4. Oligocän. Bohnerze von Ulm.
Bachitherium Filhol. 33 P, unterer P4 kompliziert, und Prodremotherium Filhol. (Fig. 681, 682.) 33 P, einfach gebaut. Oligocän. Phosphorite von Quercy.
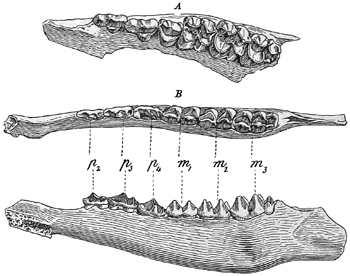
Fig. 681.
Prodremotherium elongatum Filhol. Oligocän (Phosphorite). Quercy. A Oberkiefer von unt., B Unterkiefer von oben u. von innen. 3/4 nat. Gr.
13. Familie. Hypertragulidae.[155]
Schädel anfangs ohne knöcherne Auswüchse, später mit Geweih versehen, das stets von Haut bedeckt bleibt, mit Ethmoidallücken, meist mit großen Bullae osseae und mit vorspringender, hinten geschlossener Orbita. Unterkiefer lang und schlank. Ohne obere J; oberer C meist klein, unterer C als J entwickelt. M brachyodont, selenodont, untere M ohne Falte auf Hinterseite des ersten Außenmondes. Obere M vierhöckerig. P ziemlich einfach. Vorderextremität vierzehig, mittlere Metacarpalien niemals zu einem Canon verwachsen. Seitenzehen wohl entwickelt. Hinterextremität zweizehig. Mittlere Metatarsalien zu einem Canon verschmolzen. Seitenzehen rudimentär. Cuboid und Naviculare verwachsen.
Die Hypertraguliden sind auf Nordamerika beschränkt. Sie treten hier zuerst im Oligocän (White Riverbed) auf und erreichen im Miocän ihre höchste Entwicklung in der Gattung Blastomeryx, welche nach Matthew den Vorfahren der südamerikanischen Hirschgattung Mazama darstellt.
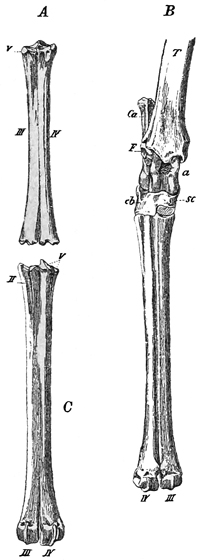
Fig. 682.
Prodremotherium elongatum Filhol. Oligocän (Phosphorite). Quercy. A Metacarpus von hinten. B Tibia, Tarsus und Metatarsus von vorne. C Metatarsus von hinten. (T Tibia, F Rudiment der Fibula, Ca Calcaneum, a Astragalus, cb + sc Cubo-scaphoideum.)
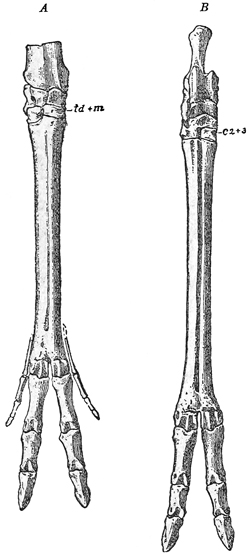
Fig. 683.
Blastomeryx gemmifer Cope. Unt. Pliocän (Loup Fork-Stufe). Nebraska. A teleometacarpaler Vorderfuß, B Hinterfuß, 2/5 nat. Gr. (Nach Scott.)
Die Hypertraguliden wurden früher mit den Traguliden vereinigt, von welchen sie sich jedoch durch das Fehlen der Falte an der Innenseite des Metaconids und des ersten Außenmondes der unteren M unterscheiden.
Leptomeryx Leidy. Ohne P1, unterer P1 klein. Radius und Ulna frei. Oligocän. White Riverbed. L. Evansi Leidy. Untermiocän von Montana. Ist der Vorfahre von Blastomeryx.
Hypertragulus Cope. Oberer C und unterer P1 groß, die folgenden P kurz. Radius und Ulna verwachsen. Oligocän und Untermiocän (John Daybed von Oregon). H. calcaratus Cope.
Allomeryx Merriam und Sinclair. Untermiocän. Oregon.
Blastomeryx Cope. 34-..3 1 0..3.1.4-3.3. Schädel geweihlos, oberer C lang, M brachyodont, untere ohne Palaeomeryxfalte. P einfach. Oberer P2 und P3 mit kleinem Innenhöcker, untere P mit unverästelten Kulissen an der Innenseite. Radius und Ulna getrennt. Vorderfuß vierzehig, mittlere Metapodien getrennt, Hinterfuß zweizehig mit proximalen Resten der Seitenzehen. Untermiocän. B. Olcotti, primus Matthew. Bl. gemmifer Cope (Fig. 683.) mit kurzem Gablergeweih und rudimentären Seitenzehen ist jünger und auch generisch verschieden.
14. Familie. Cervicornia. Geweihträger.[156]
Schädel der Männchen in der Regel mit Geweih oder knöchernen Fortsätzen versehen. 0.0-1.3.3.3.1.3.(4).3. Oberer C bald lang und säbelartig, bald schwach oder ganz fehlend, unterer als vierter J fungierend. Langes Diastema hinter den C. Backenzähne selenodont, brachyodont. Obere P kurz, mit äußerem und innerem Halbmond. Carpalia — Magnum und Trapezoid — und Tarsalia — Cuboid und Naviculare — teilweise verschmolzen. Hauptmetapodien stets zu einem Canon verwachsen. Seitliche Metapodien dünn, meist nur als proximale oder distale Reste erhalten, mit kurzen Afterzehen.
Das Skelett der Cervicornia zeichnet sich wie das der Traguliden durch spröde Knochensubstanz mit reichlichen Osteoblasten und durch die dünnen Schädelknochen aus.
Der Schädel ist lang gestreckt, und seine faziale Achse ist nicht gegen die kraniale Achse geknickt wie bei den meisten Cavicornia. Die gewölbte Hirnkapsel wird oben vorzugsweise von den Scheitelbeinen und nur zum geringeren Teil von den Stirnbeinen gebildet, seitlich gewinnen die Schuppen der Schläfenbeine ansehnliche Ausdehnung. Die ungewöhnlich großen Tränenbeine sind außen mit Vertiefungen, den Tränengruben, versehen. Zwischen Tränenbein, Nasenbein, Stirnbein und Oberkiefer ist sehr häufig eine »Ethmoidallücke« vorhanden, die zu einem von dünnen Knochenlamellen und Lufthöhlen erfüllten Raume führt. Die seitlich vorstehenden Orbiten sind hinten geschlossen. Das Geweih hat nur geringen systematischen Wert, denn es fehlt den weiblichen Individuen außer beim Renntier immer und bei den ältesten fossilen Formen auch den Männchen. Auch können ähnliche Geweihformen bei Hirscharten vorkommen, die nicht näher miteinander verwandt sind. Auf die Gesamtbildung des Schädels übt es einen viel geringeren Einfluß aus als die knöchernen Stirnzapfen der Cavicornia. Bei den Giraffen und Protoceratinen bleiben die Knochenfortsätze auf den Stirnbeinen dauernd von Haut bedeckt. Meist aber wird sie nach und nach abgerieben, »gefegt«, und die Geweihe ragen dann frei vor. Die basalen Knochenzapfen, welche die eigentlichen nach der Brunstzeit abwerfbaren Geweihe tragen, heißen Rosenstock, der knotige Wulst an der Basis des Geweihes Rose. Bei den mit mehrfach gegabeltem Geweih versehenen Formen beginnt es mit einem einzigen Sprossen, Spießer, der sich im zweiten Jahre in zwei Äste gabelt. In den folgenden Jahren kommt jedesmal ein neuer Sproß zu den bereits vorhandenen hinzu. In ähnlicher Weise verläuft auch die phylogenetische Entwicklung. Die ältesten, untermiocänen Formen besitzen überhaupt kein Geweih, bei mittel- und obermiocänen Formen besteht es lediglich aus einer oder zwei Sprossen, ebenso bei Dicrocerus, doch wird es hier schon bei einer Art abgeworfen. Im Pliocän beginnen Hirsche mit kurzem Rosenstock, langer Stange und zwei bis drei Nebensprossen. Erst im Oberpliocän und Pleistocän entfalten die Geweihe jene Üppigkeit, Größe und reiche Verzweigung, wie sie beim Edelhirsch, Renntier, Elch und in höchster Potenz beim Riesenhirsch beobachtet werden.
Im Gebiß (Fig. 684) fehlen die oberen J stets und die oberen C sind bei den jüngsten Formen meist nur bei den Männchen vorhanden. Der untere C hat die Form und Funktion eines J. Die Backenzähne sind brachyodont und die oberen drei-, die unteren zweiwurzelig. Die Krone ist mit dickem, runzeligem Schmelz bedeckt und in der Regel mit einem Basalpfeiler versehen, der sich an den oberen M auf der Innen-, an den unteren M auf der Außenseite befindet. Die Außenseite der oberen M trägt stets zwei Vertikalfalten — Parastyl und Mesostyl. Zwischen jedem Außenhöcker und dem benachbarten inneren Halbmond befindet sich die Marke, in welche meist vom inneren Halbmond aus ein spornartiger Fortsatz hineinragt. Die oberen P sind kurz und stellen scheinbar halbe Molaren dar. Die unteren M sind niedrig, typisch selenodont. Die ziemlich kurzen unteren P bestehen aus einem kürzeren hinteren und einem längeren vorderen Abschnitt und tragen auf ihrer Innenseite vertikale Vorsprünge, Kulissen. Die ältesten fossilen Formen besaßen zum Teil noch vier P, bei den übrigen sind immer nur drei P vorhanden.
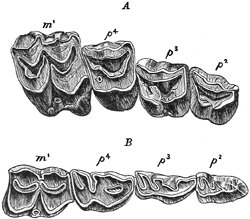
Fig. 684.
Cervus (Polycladus) dicranius Nesti. Ob. Pliocän. Val d'Arno. Toskana. A die drei P und der erste M des Oberkiefers. B desgleichen vom Unterkiefer. Nat. Gr.
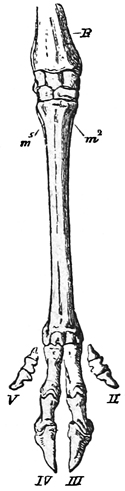
Fig. 685.
Plesiometacarpaler Vorderfuß von Cervus elaphus Lin., 1/7 nat. Gr. (Nach Flower.) m5 und m2 proximale Stücke der seitlichen Metacarpalia, II-V zweite bis fünfte Zehe.
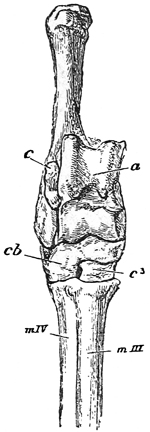
Fig. 686.
Hinterfuß vom Hirsch (Cervus elaphus), 1/3 nat. Gr. (Nach Flower.) c Calcaneum. a Astragalus, cb + bc Cubo-scaphoideum, c2 Cuneiforme, mIV und mIII Metatarsalia.
Von den Carpalien verwachsen Magnum und Trapezoid miteinander, die mittleren Metapodien verschmelzen frühzeitig zu einem Canon, die seitlichen (II und V) sind meist unvollständig, indem bald nur die proximalen (Plesiometacarpi) (Fig. 685), bald nur die distalen Teile (Teleometacarpi) (Fig. 683) als griffelartige Rudimente zur Entwicklung kommen. Kurze Afterzehen sowohl an der Vorder- als an der Hinterextremität besitzen alle echten Hirsche, dagegen fehlen sie den Giraffen. Im Tarsus verwachsen stets Cuboid und Naviculare und ebenso Cuneiforme II und III, dagegen bleibt das kleine Cuneiforme I stets frei. Von den äußeren Metatarsalia sind nur die proximalen Enden ausgebildet, aber auch häufig mit dem Canon verwachsen.
Die Cervicornia bewohnen gegenwärtig ganz Asien, Europa und Amerika und in der Form von Giraffen auch das zentrale und südliche Afrika. In der alten Welt sind die plesiometacarpischen Formen, in der neuen die teleometacarpischen vorherrschend. Die echten Hirsche beginnen im unteren Miocän von Europa. Im oberen Miocän und Pliocän haben sie auch Vertreter in Nordamerika, im Pliocän auch in Asien. Den Höhepunkt ihrer Entwicklung erreichen sie im Pleistocän und in der Jetztzeit.
1. Unterfamilie. Moschinae. Moschushirsche.
Schädel geweihlos, obere C lang, säbelartig. 33 P. Distale Rudimente der seitlichen Metapodien mit langen dreigliederigen Afterzehen.
Die beiden lebenden Gattungen (Moschus, Hydropotes) bewohnen die zentralasiatischen Hochländer. Fossile Reste von Moschus werden aus den Siwalikschichten von Indien erwähnt.
2. Unterfamilie. Cervulinae. Muntjakhirsche.
Schädel geweihlos, oder Männchen mit kurzem, meist nur dichotom gegabeltem oder wenig sprossigem Geweih, das auf einem hohen Rosenstock sitzt und bei den älteren Formen nicht abgeworfen wurde. Obere C lang, säbelartig, hinten schneidend. M aus vier Monden bestehend. Untere M mit Leiste hinter dem ersten Außenmond. P wenig verlängert, untere mit Kulissen. Vorderfuß meist plesiometacarpisch, selten teleometacarpisch.
Lebend in Südostasien. Fossil in Europa vom Miocän an.
Amphitragulus Pomel. Schädel geweihlos, ohne Tränengrube und Ethmoidallücke. M niedrig, die unteren mit Palaeomeryxleiste. 4 P im Unterkiefer. Häufig mit distalen Resten der seitlichen Metapodien nebst Phalangen. Im Untermiocän. Auvergne, Ulm, Mainz, Pyrimont (Savoyen). A. elegans, lemanensis, gracilis Pomel. Hasen- bis Rehgröße.
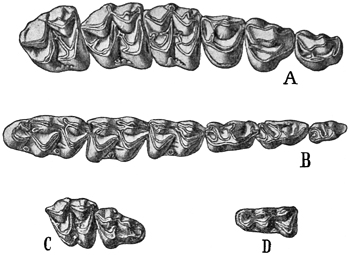
Fig. 687.
Dicrocerus furcatus Hensel sp. Obermiocän. Steinheim Württemberg. A obere, B untere Backenzähne, C obere Milchzähne (D3 und D4), D unterer D4 nat. Gr.
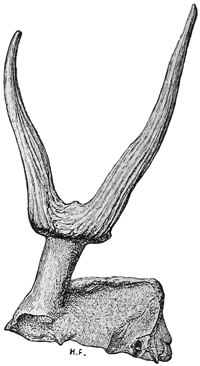
Fig. 688.
Dicrocerus elegans Lartet. Obermiocän. Sansan. Gers. Geweih, 1/3 nat. Gr. (nach Gaudry.)
Dremotherium Geoffroy. Nur drei untere P. Molarhöcker plump. Seitliche Metapodien nur durch proximale Griffel angedeutet, sonst wie vorige Gattung. Untermiocän. Auvergne, Ulm, Mainz. D. Feignouxi Pomel.
Micromeryx Lartet. Klein, mit relativ hohen M. Obermiocän. Sansan, Steinheim, La Grive St. Alban.
Palaeomeryx v. Meyer. Schädel geweihlos, M mit runzeligem Schmelz. Untere M mit Leiste an Außenseite des vorderen Halbmondes. Meist große Formen. Mittelmiocän. Böhmen annectens Schlosser. Obermiocän P. Bojani, eminens v. Meyer.
Im Pliocän (?) von Nebraska kommen große Palaeomeryx ähnliche Formen vor, welche durch die schwache Ausbildung der Falte an den unteren M und die Komplikation des unteren P4 scheinbar den Übergang zu den Camelopardaliden vermitteln.
Dicrocerus Lartet (Procervulus Gaudry) (Fig. 687, 688). Wie vorige Gattung, jedoch Schädel mit zweisprossigem, selten dreisprossigem Geweih. Obermiocän. Schlesien, Steinheim etc. D. furcatus Hensel, Geweih ohne Rose, wohl persistierend. Sansan, Steiermark, bayerische Hochebene. D. elegans Lartet, Geweih mit Rose und wechselnd.
Lagomeryx Roger. Ähnlich, aber klein. Mit Spießer- oder kurzem verästeltem Geweih. Mittelmiocän. Solnhofen, L. simplicicornis Schlosser. Obermiocän. Steiermark, Südbayern L. Meyeri Hofmann.
Cervavus Schlosser. Obere C ziemlich kräftig, untere M noch mit Spuren der Palaeomeryxfalte. Geweih dichotom. Größe von Reh. Unterpliocän von China. C. Oweni Koken sp.
Cervulus Blainv. Lebend in Südasien und fossil im Pleistocän von Indien und Java.
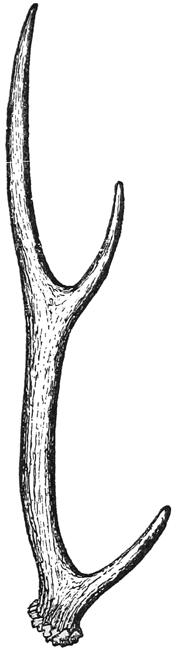
Fig. 689.
Cervus (Axis) pardinensis Croizet und Jobert. Oberpliocän. Auvergne. Geweih. 1/8 nat. Gr. (Nach Gaudry.)
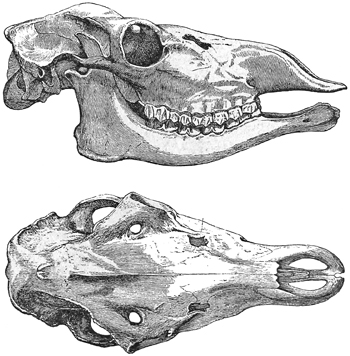
Fig. 690.
Cervus (Megaceros) hibernicus Owen. Torf von Irland. Weiblicher Schädel. 1/7 nat. Gr. (nach Owen.)
3. Unterfamilie. Cervinae.
Geweih mit kurzem Rosenstock, mehrfach gegabelt, periodisch wechselnd und abgesehen von Ren, nur bei den Männchen vorhanden. Obere C schwach oder fehlend. Backenzähne brachyodont. Vorderfuß plesiometacarpal bei den altweltlichen Hirschen (mit Ausnahme von Elentier, Ren und Reh), teleometacarpal bei den neuweltlichen (mit Ausnahme von Cervus canadensis). Lebend auf der nördlichen Hemisphäre und in Südamerika. Fossil vom Pliocän an in Europa und Asien, in Amerika erst im Pleistocän.
Der Gattungsname Cervus sollte nur mehr für nicht näher bestimmbare Hirschreste Anwendung finden, die besser erhaltenen fossilen lassen sich meist ziemlich ungezwungen unter die folgenden Subgenera verteilen.
Capreolus Ham. Smith. Geweih aufrecht, dreisprossig. Im Unterpliocän von Cucuron, Baltavar C. Matheroni Gerv., im Mittelpliocän C. australis de Serres, ruscinensis Depéret, im Oberpliocän der Auvergne C. cusanus Croiz. et Job. Im Pleistocän C. capreolus Linn.
Furcifer, Blastoceras Gray, Mazama Rafinesque. Lebend und fossil in Südamerika. Odocoileus. Pleistocän und Gegenwart in Nordamerika.
Axis Ham. Smith. (Fig. 689.) Geweih schlank mit drei bis vier zylindrischen Nebensprossen. Plesiometacarpal. Pliocän der Auvergne (C. borbonicus, pardinensis Croiz. et Job.), im Crag von England. Lebend und im Pleistocän von Indien. Im Pleistocän von Trinil auf Java A. Lydekkeri Martin.
Rusa Ham. Smith. Asien. Fossil im Pleistocän von China. C. Aristotelis Cuv.
Elaphus Gervais. Geweih vielsprossig, im Querschnitt gerundet. Pliocän C. Perrieri, arvernensis, issiodorensis Croiz. et Job., Pleistocän von Europa C. elaphus und canadensis, auch in Nordasien und Nordamerika. Ähnliche Zähne schon im Unterpliocän von China.
Polycladus Gerv. (Fig. 684). Geweih vielsprossig, Sprossen distal abgeplattet. Pliocän Europa C. ramosus Croiz. Job., Sedgwicki Falcon.
Dama Ham. Smith. (Megaceros Owen). (Fig. 690.) Geweih anfangs zylindrisch, distal abgeplattet, später schaufelartig. Lebend C. dama Lin. Südeuropa und Kleinasien. Fossil im Pliocän und Pleistocän von Europa C. Browni Dawkins. Die größte Art ist der Riesenhirsch Megaceros euryceros Aldrov. im älteren Pleistocän. In Torfmooren von Irland finden sich ganze Skelette von Megaceros hibernicus Owen. Weibchen geweihlos.
Cervalces Scott. Pleistocän von Nordamerika.
Alces Ham. Smith. (Elentier). Lebend und im Pleistocän von Europa, Nordasien und Nordamerika. Im europäischen Unterpleistocän A. latifrons Dawkins.
Rangifer Ham. Smith. Beide Geschlechter mit starkem, gegabeltem Geweih, Sprossen abgeplattet. Das Renntier (C. tarandus Lin.) bewohnt die Polarländer der nördlichen Hemisphäre. Im Pleistocän in ganz Mitteleuropa verbreitet, besonders häufig als Begleiter des Magdalénien-Menschen. In pliocänen Bohnerzen finden sich Rangifer-ähnliche Zähne. Im Pliocän von Piemont C. pliotarandoides de Alessandrini.
4. Unterfamilie. Protoceratinae. Marsh.[157]
3-0.1.4.3.3.1.4.3. Backenzähne brachyodont, mit runzeligem Schmelz. Obere und untere C bei beiden Geschlechtern vorhanden. Schädel lang und flach, ohne Bulla, bei den späteren Formen mit paarigen knöchernen Auswüchsen. Carpalia getrennt. Vorderfuß mit zwei starken mittleren und zwei schwächeren seitlichen Metapodien. Hinterfuß anfangs mit vier freien Metatarsalia, später mit unvollständig verschmolzenem Canon und proximalen Seitengriffeln. Alle Tarsalia frei.
Die Protoceratinen sind auf Nordamerika beschränkt, aber wahrscheinlich die Ahnen der Sivatheriinae.
Camelomeryx Scott mit 23 J und Leptoreodon Wortman mit 33 J. Beide mit großem oberen C. Unterer C als vierter J und unterer P1 als C entwickelt. Hinter P1 in beiden Kiefern ein langes Diastema. Schädel ohne Protuberanzen. Hand und Fuß vierzehig, mittlere Metapodien nicht verwachsen. Systematische Stellung unsicher. Obereocän. Uintabed.
Heteromeryx Matthew. Orbita hinten geschlossen. Vorderfuß vierzehig, Hinterfuß zweizehig. Oligocän. Unteres White Riverbed.
Protoceras Marsh. (Fig. 691.) 33 J. Schädel beim Männchen mit knöchernen Zapfen auf Stirn- und Scheitelbeinen, und vertikalen Knochenplatten auf Oberkiefer und Stirnbeinen, Weibchen nur mit schwachen Auswüchsen auf Scheitelbeinen. Vorderfuß vierzehig, Seitenmetacarpalia dünn, Hinterfuß zweizehig mit unvollständig verschmolzenem Canon und proximalen Resten der seitlichen Metatarsalia. Oberes Oligocän (White Riverbed).
Calops Marsh, Schädel ohne Hornzapfen. Ebendaselbst.
Syndyoceras Barbour, je ein einfaches Hornpaar auf Nasen- und Stirnbeinen.
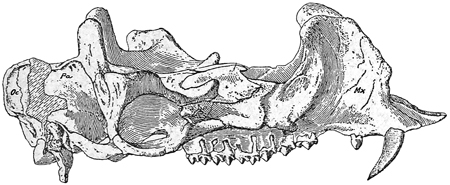
Fig. 691.
Protoceras celer Marsh. Oligocän. Oberstes White Riverbed. Nebraska. 2/5 nat. Gr. (nach Osborn.)
5. Unterfamilie. Giraffinae.
Große hochbeinige Tiere mit langgestrecktem, entweder glattem oder mit kurzen paarigen, einfachen Stirnzapfen versehenem Schädel ohne Tränengrube, mit kleinen ringsum geschlossenen Orbita. Schädelknochen pneumatisch. Obere C fehlen, untere zweilappig. Backenzähne niedrig, gedrungen, hirschartig. Seitliche Metapodien und Afterzehen vollständig verkümmert.
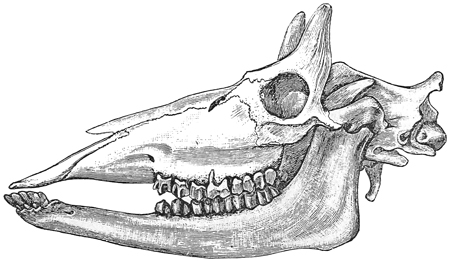
Fig. 692.
Samotherium Boissierri Forsyth Major. Unt. Pliocän. Samos. Schädel verkleinert. (Nach Lydekker.)
Lebend in Zentralafrika, fossil im Unterpliocän von Südeuropa, Persien, Indien und China.
Helladotherium Gaudry. Schädel ohne Stirnzapfen. Untere P und M ziemlich hoch. Hals mäßig lang. Hinterfuß und Vorderfuß fast gleich lang. Unterpliocän von Pikermi und Maragha. Ein ähnlicher Schädel aus den Siwalik gehört wohl zu Hydaspitherium grande.
Palaeotragus Gaudry. Klein. Schädel niedrig, mit weit vorne stehenden Hörnern. Zähne plump. Unterpliocän Pikermi. P. Roueni Gaudry.
Alcicephalus Rodler. Samotherium Forsyth Major. (Fig. 692.) Männlicher Schädel mit zwei stumpfen Knochenzapfen über den Orbita. Zähne plump. Hals kürzer als bei Giraffe. Unterpliocän von Samos, Persien und China.
Camelopardalis Schreber. Auf der Grenze von Stirn- und Scheitelbein ein Paar kurze Knochenzapfen und auf den Nasenbeinen eine Protuberanz. P sehr kompliziert, M ziemlich schlank. Hals lang. Vorderbeine länger als Hinterbeine. Unterpliocän von Pikermi, Samos, Maragha, Siwalik, China und lebend.
Okapia R. Lancaster. Lebend Zentralafrika.
6. Unterfamilie. Sivatheriinae.
Große Wiederkäuer mit stark ausgedehnten Stirnbeinen und pneumatischem Schädeldach. Vor der Occipitalkante, auf den hinteren Außenecken der Stirnbeine zwei mächtige, öfters auf gemeinsamer Basis stehende, abgeplattete, schwach verästelte, unten mit Hohlräumen versehene Knochenzapfen. Zuweilen auch ein Paar konischer Knochenzapfen auf dem vorderen Teil der Stirnbeine. Backenzähne massiv und brachyodont.
Lydekker und Forsyth Major schließen die Sivatheriinen an die Giraffen an, während Murie und Rütimeyer Antilopencharaktere erkennen wollen. Das Gehörn erinnert an das Schaufelgeweih von Alces.
Sämtliche besser bekannte Vertreter dieser Gruppe (Sivatherium, Bramatherium Falconer und Hydaspitherium megacephalum Lydekker stammen aus den indischen Siwalikschichten. Im Unterpliocän von China kommen Zähne von Sivatheriinen vor, und aus Sanden von Adrianopel hat Abel einen Sivatherium-ähnlichen Hornzapfen beschrieben.
15. Familie. Antilocapridae.[158]
Schädel antilopenähnlich mit weit ausgedehnten Scheitelbeinen. Stirnbeine auf den supraorbitalen Teil des Schädeldaches beschränkt, mit gegabelten Knochenzapfen, welche von einer jährlich erneuerten Hornscheide umgeben sind. Lacrimale groß, mit Grube, an Ethmoidallücke stoßend. Backenzähne hypselodont. Meist ohne obere Eckzähne und Schneidezähne. Außenseite des oberen M3 nach rückwärts verlängert. 33 sehr kurze P.
Auf Nordamerika beschränkt.
Hypisodus Cope. (Fig. 693.) Kaninchengröße. Schädel ohne Stirnzapfen. 33 J. Hand und Fuß ohne Canon, mit vollständigen seitlichen Metapodien. Oligocän, White Riverbed.
Merycodus (Cosoryx) Leidy. (Fig. 694.) Schädel mit zwei- oder dreisprossigem, aufrechtstehendem und mit einem Rosenstock versehenen Geweih. Vorder- und Hinterfuß mit Canon und mit Afterzehen. Mittelmiocän bis Pliocän von Colorado und Kansas M. Osborni Matthew, furcatus Leidy.
Capromeryx Matthew. Nur Unterkiefer bekannt mit hypselodonten M und reduzierten P. Pleistocän Nebraska.
Antilocapra Ord. Lebend und fossil. Nordamerika.
16. Familie. Cavicornia. Hohlhörner.[159]
Schädel beider Geschlechter, seltener nur der Männchen mit knöchernen, von Hornscheiden umgebenen Fortsätzen. Gebiß 0.0.3.3.3.1.3.3. Zahl der P zuweilen nur 22. Backenzähne selenodont und brachyodont oder hypselodont. Carpus und Tarsus wie bei den Cervicornia. Hauptmetapodien zu einem Canon verschmolzen, mit scharfen distalen Leitkielen. Seitliche Metapodien niemals vollständig, häufig ganz verkümmert. Afterzehen öfters vorhanden.
Fig. 693.
Hypisodus minimus Cope. Oligocän. White Riverbed, Colorado. Schädel mit Unterkiefer. 3/4 nat. Gr.
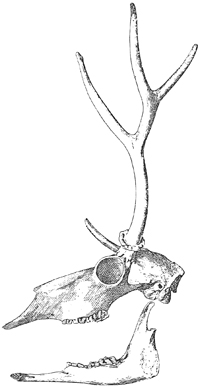
Fig. 694.
Merycodus Osborni Matthew. Obermiocän. Colorado. Schädel 1/4 nat. Gr. (nach Matthew.)
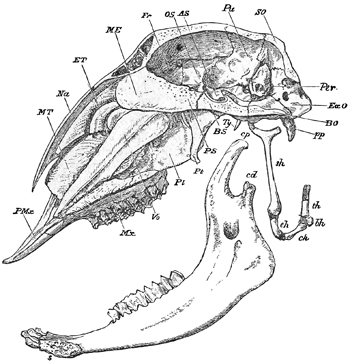
Fig. 695.
Schädel eines hornlosen Schafes, in der Mittelebene vertikal durchschnitten, 1/3 nat. Gr. (Nach Flower.) PMx Zwischenkiefer, Na Nasenbein, MT Conchae des maxillaren, ET des ethmoidalen Riechrohres, ME Mesethmoideum, Vo Vomer, Pl Gaumenbein, Pt Flügelbein, PS Präsphenoid, Fr Stirnbein mit Lufthöhlen, OS Orbitosphenoid, AS Alisphenoid, BS Basisphenoid, Pa Scheitelbein, Per Felsenbein (Perioticum). Ty Griffelfortsatz des Tympanicum, SO Supraoccipitale, ExO Exoccipitale, BO Basioccipitale, pp Processus paroccipitalis, cp Kronfortsatz, cd Condylus, s Symphyse des Unterkiefers. sh, eh, ch, bh, th verschiedene Abschnitte des Zungenbeins.
Die Cavicornier sind in mancher Hinsicht vorgeschrittener und spezialisierter als die Cervicornier. Die horizontal gestellte kraniale Achse bildet mit der Gesichtsachse einen stumpfen Winkel. (Fig. 695.) Die Stirnbeine zeigen eine ungewöhnliche Ausdehnung. Die Frontalzone nimmt hinter den Orbiten den größten Teil des Schädeldaches ein und drängt die stark verkürzten Scheitelbeine nach hinten, bei den extremsten Formen verlagern sich letztere sogar ganz auf die Hinterhauptsfläche. Mit der Ausdehnung der Stirnbeine ist häufig eine bedeutende Erweiterung der Sinus frontales verbunden, die Diploe wird durch Lufthöhlen ersetzt und die Stirn wird pneumatisch. Die verschiedenen Antilopen zeigen alle Stadien dieser Ausbildung der Frontalzone, z. B. bei gewissen Gazellen haben die Stirnbeine noch wie bei den Hirschen eine Knochendiploe, bei anderen treten schon kleinere oder größere Lufträume auf. In der hinteren Stirnregion über oder hinter den mehr oder weniger vorragenden geschlossenen Orbiten erheben sich — zuweilen nur beim Männchen — die knöchernen, bald massiven, bald pneumatischen Hornzapfen, deren hohle Basis mit den Lufträumen im Stirnbein kommuniziert. Bei den primitiveren Formen stehen die Zapfen aufrecht oder schräg nach hinten gerichtet zwischen den Augenhöhlen, bei den extremsten — Bos — rücken sie weit nach hinten und außen in die Hinterecken des Schädels und richten sich fast rechtwinklig und horizontal nach außen. Nasenbeine, Oberkiefer und Tränenbeine sind meist stark entwickelt, die Jochbogen dagegen dünn und kurz. Tränengruben und Ethmoidallücken finden sich häufig bei Antilopen, niemals bei den Rindern, Schafen und Ziegen.
Das Gebiß ist unvollständig und ohne obere J und C. Der untere C hat sich in einen vierten J verwandelt. Von den 33 P kann zuweilen der vorderste verschwinden. Die selenodonten Molaren blieben bei den primitiveren Formen — gewisse Antilopen — brachyodont, bei den vorgeschritteneren sind sie dagegen hypselodont und nicht selten sogar prismatisch. Der Schmelz ist bald glatt, bald runzelig, akzessorische Pfeilerchen fehlen entweder oder sie werden (Bovinen) sogar ungewöhnlich stark. An den oberen M besteht die durch Vertikalfalten verstärkte Außenwand aus zwei sichelförmig gebogenen Blättern, die halbmondförmigen Innenhügel bilden meist geschlossene Marken. Die unteren M unterscheiden sich, abgesehen von ihrer Schmalheit dadurch, daß ihre Innenseite den Bau der Außenseite und ihre Außenseite den Bau der Innenseite der oberen M imitiert. Basalpfeiler finden sich nicht selten an der Außenseite der unteren und an der Innenseite der oberen M. Die kurzen oberen P bestehen aus einem äußeren und einem inneren Halbmond, die unteren aus einem nach innen etwas konkaven, nach vorne und hinten abfallenden Kamm, dessen Innenseite kulissenartige Vorsprünge trägt, deren Zahl am letzten P am größten ist. Die J und C sind als horizontal gestellte Schaufeln ausgebildet, von denen die innerste die breiteste ist.
Das Skelett unterscheidet sich nicht wesentlich von dem der Cervicornier, jedoch erreicht die Reduktion der Seitenzehen einen höheren Grad als bei diesen. Die Hauptmetapodien verschmelzen schon frühzeitig zu einem vorne ausgefurchten Canon. Von den seitlichen Metapodien bleiben manchmal noch Griffel erhalten. Afterzehen sind häufig vorhanden. Carpus und Tarsus sowie Uterus und Placenta verhalten sich wie bei den Cervicornia.
Die Cavicornia sind die jüngste und formenreichste Gruppe von allen Huftieren. Sie haben erst in der Gegenwart den Höhepunkt ihrer Entwicklung erreicht und zeigen durch ihre Umbildungsfähigkeit bei der Züchtung, daß ihnen noch eine gewisse Plastizität und Jugendlichkeit innewohnt. Der Schauplatz, auf welchem sich die Cavicornier entwickelt und ausgebreitet haben, ist in der Hauptsache die Alte Welt, jedoch hat auch Nordamerika einen gewissen Anteil an ihrer Stammesgeschichte. Heute erscheint Afrika als ihr Verbreitungszentrum, in Wirklichkeit wurde es aber erst ziemlich spät von Asien und Europa her besiedelt.
Die bisherige Einteilung der Cavicornia in Antilopen, Ovinen und Bovinen wird der Stammesgeschichte nicht gerecht, es empfiehlt sich vielmehr, die unnatürliche, umfangreiche Gruppe der Antilopinen nach dem Zahnbau in zwei Abteilungen zu zerlegen und diese mit den Ovinen, bzw. den Bovinen zu vereinigen, so daß sich zwei große Familien ergeben, die Aegodontia mit schon frühzeitig hypselodont werdenden Molaren, von denen auch die oberen bedeutend länger als breit sind und die Boodontia, mit mehr oder weniger hirschähnlichen Molaren, von denen die oberen fast quadratischen Umriß besitzen.
Die ältesten fossilen echten Cavicornier finden sich im Miocän von Europa. Sie gehen auf hirschähnliche Formen, vielleicht auf Dremotherium zurück und sind ihrerseits die Stammeltern aller Boodontia, welche vom Pliocän an einen großen Formenreichtum entfalten, aber erst im Pleistocän einen Vertreter auch in Nordamerika aufzuweisen haben. Hier sind jedoch aus Antilocapriden, etwa aus der oligocänen Gattung Hypisodus, die Aegodontia entstanden, welche dann im Pliocän in Asien mit zahlreichen Boodontia zusammentrafen. Von Asien aus verbreiten sie sich mit diesen über Afrika und entsenden auch schon bald, hauptsächlich aber erst im Pleistocän Repräsentanten nach Europa. Eine Anzahl von ihnen scheint jedoch in Nordamerika einen selbständigen Entwicklungsgang genommen zu haben, wenigstens die Moschusochsen.
1. Unterfamilie. Aegodontia.
Schädel fast stets gewölbt, häufig mit Tränengruben oder Ethmoidallücken oder auch mit beiden, oder mit einem Spalt neben den Nasenbeinen. Scheitelbeine ausgedehnt, Schädelachse meist geknickt, Lufthöhlen in der Regel auf die Basis der dicht an den Orbiten beginnenden Hornzapfen beschränkt. Hörner selten gerade und zylindrisch, meist seitlich komprimiert und rückwärts gebogen, selten spiralig oder auswärts gedreht. M fast immer hypselodont, selten mit Basalpfeiler, und nur ausnahmsweise mit schwachen Vertikalrippen an den Außen- resp. Innenhöckern. P und M stets mit glattem Schmelz.
Die Aegodontia umfassen die Neotraginen, Gazellinen (Antilopinen Sclaters), die Rupicaprinen, Ovicaprinen und die Ovibovinen. Die beiden ersteren unterscheiden sich von den übrigen Antilopen im weitesten Sinne sehr wesentlich in ihrem Zahnbau, dagegen schließen sie sich hierin den Ovicaprinen so enge an, daß ihr gemeinsamer Ursprung überaus wahrscheinlich wird, und zwar kommen als ihre Ahnen die nordamerikanischen Antilocapriden in Betracht, unter welchen die Gattung Hypisodus bereits im Oligocän einen hohen Grad von Hypselodontie erreicht hat.
Für die Verwandtschaft der Ovicaprinen mit den Gazellinen spricht auch der Umstand, daß sie noch lange Griffelbeine besitzen, die bei den ersteren — Capra — allerdings auf Metacarpale V beschränkt sind, während bei den Boodontia wie bei den plesiometacarpischen Hirschen Verkürzung oder völliger Verlust dieser Rudimente eintritt. Bei den Gazellinen findet öfters Verlust des vordersten P statt.
1. Gruppe. Neotraginae.
Schädel wenig gewölbt, ohne Ethmoidallücken, mit Tränengruben, Hörner zylindrisch nach rückwärts geneigt. Spitze vorwärts gedreht. M brachyodont.
Neotragus, Oreotragus, Raphiceros, Madoqua und Ourebia nur lebend in Afrika.
2. Gruppe. Gazellinae.
Schädel höchstens mäßig gewölbt, meist flach, mit Tränengruben und Ethmoidallücken, Hörner zylindrisch oder seitlich komprimiert, rückwärts gebogen, nur selten spiralig, niemals gekielt. Zähne in der Regel stark hypselodont.
Lithocranius Kohl, lebend in Afrika und
Antilope Ogilby im Pleistocän und lebend in Indien, beide brachyodont.
Gazella Blv. (Fig. 696.) Hornzapfen steil aufgerichtet oder rückwärts gebogen, meist zylindrisch, selten komprimiert. Unterpliocän von Pikermi, Cucuron, Baltavar, Maragha G. brevicornis Wagn. deperdita Gervais, Samos und Maragha G. Gaudryi Schloss. Mehrere Arten im Pliocän von China. Im Oberpliocän der Auvergne G. borbonica Bravard, der Bresse G. burgundica Depéret, und von England G. anglica Newton. Lebend in Asien und Afrika, fossil in Algier.
Saiga Gray (Colus Wagner). (Fig. 697.) Stirnzapfen kurz, steil aufgerichtet. Im Pleistocän von Mitteleuropa und lebend in den Steppen des östlichen Europas und des westlichen Asiens.
Pantholops Hodgson. Im Pliocän von Tibet. P. hundesiensis Lyd. Lebend in Asien.
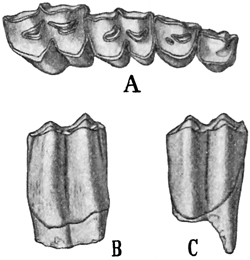
Fig. 696.
Gazella dorcadoides Schlosser. Unterpliocän. China. A obere Backenzähne. P3 bis M2, B oberer M von innen, C unterer M2 von außen. Nat. Gr.
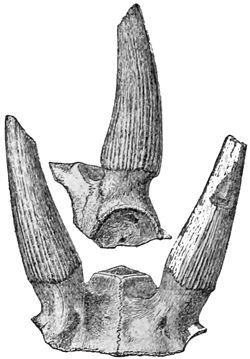
Fig. 697.
Hornzapfen von Saiga tatarica Forst. ♂ pleistocän. Twickenham. England. 1/4 nat. Gr. (Nach Smith Woodward.)
3. Gruppe. Rupicaprinae.
Schädel mit oder ohne Tränengruben und mit spaltförmiger Ethmoidallücke. Hornzapfen zylindrisch, aufrecht oder rückwärts geneigt. Zähne schwach hypselodont.
Rupicapra Ham. Smith. Gemse, selten fossil im Pleistocän von Mitteleuropa.
Nemorrhaedus Ham. Smith. Nur lebend in Asien.
4. Gruppe. Ovicaprinae.
Schädel stark gewölbt, Schädelachse geknickt, Hornzapfen meist hohl, gekielt, einfach gebogen oder spiralig. Tränengruben und Ethmoidallücken höchstens schwach entwickelt. Zähne meist stark hypselodont und seitlich komprimiert.
Oioceros Gaillard (Antidorcas Roth, Helicophora Lydekker?) mit kleiner Tränengrube und Ethmoidallücke. Hornzapfen spiralig, gekielt. Zähne schwach hypselodont. Unterpliocän. Pikermi O. Rothi Gaudry sp., Maragha O. Atropatenes R. u. W., Samos O. proaries Schlosser.
Ovis Linné. (Fig. 695.) Mit Tränengrube, ohne Ethmoidallücke, Stirnbeinnähte nach vorwärts konvergierend. Scheitelnähte geradlinig. Stirnzapfen dreikantig, vorne breit, spiralig. Selten im europäischen Pleistocän O. Savinii Newton, O. argalioides Nehring.
Capra Linné. Ohne Tränengrube, mit spaltförmiger Ethmoidallücke. Stirnbeinnähte geradlinig. Scheitelbeinnähte nach vorne konvergierend. Hörner komprimiert, rückwärts gebogen. Im Pliocän von Ostindien C. sivalensis, perimensis Lydekker. Im Pleistocän Europas C. pyrenaica Schimp., Ibex cebennarum Gervais, fossilis Nehring.
Haploceros Ham. Smith (Oreamnus Rafin). Lebend und pleistocän in Nordamerika, in Höhlen von Kalifornien.
Bucapra Rütimeyer. Großer Schädel aus dem Pliocän der Siwalik. B. Daviesi Rüt.
Pseudobos Schlosser. Zähne von Rindergröße, hypselodont. M stark komprimiert, P reduziert. Unterpliocän von China und von Maragha.
5. Gruppe. Ovibovinae.
Schädel kaum gewölbt. Basis der Hörner meist stark verdickt, Hornspitzen auswärts gerichtet. Zähne mäßig hypselodont, M stark komprimiert.
Ovibos Blainv. (Symbos Osgood). Basis der hinter den Augen gelegenen Hornzapfen stark angeschwollen, aus schwammiger Knochensubstanz bestehend. Metapodien plump. O. moschatus Blv., der Moschusochse, bewohnt heutzutage nur die nördlichsten Teile von Nordamerika. Im Pleistocän war er nicht nur in Nordamerika, sondern auch in Europa weit verbreitet.
Euceratherium Sinclair. Schädel rinderähnlich. Scheitelbeine auf die fast vertikal stehende Hinterhauptsfläche verdrängt. Hörner komprimiert, weit hinter den Orbiten stehend, mit auswärts und vorwärts gedrehten Spitzen. Zähne mäßig hypselodont. Metapodien kurz und plump. Pleistocän, Höhlen von Kalifornien. E. collinum Sinclair und Furlong.
Preptoceras Furlong. Ähnlich, jedoch Hornzapfen mit rundem Querschnitt. Ebendaselbst.
2. Unterfamilie. Boodontia.
Schädeldach gerade oder gewölbt, mit oder ohne Tränengrube und Ethmoidallücken, selten mit beiden. Scheitelbeine meist ausgedehnt. Schädelachse mehr oder weniger stark geknickt. Lufthöhlen in der Basis der Hornzapfen oder einen großen Teil der Schädelknochen erfüllend. Hornzapfen bald nahe an den Augenhöhlen beginnend, bald mehr oder weniger weit nach hinten verschoben, in der Regel von rundem Querschnitt, zuweilen auch gekielt. M brachyodont, selten hypselodont, häufig mit Basalpfeilern und mit Vertikalrippen an den Außenhöckern der oberen und an den Innenhöckern der unteren M. Schmelz rauh, öfters mit starkem Zementbelag.
Die Boodontia beginnen mit Formen, deren Zähne jenen der Hirsche noch sehr ähnlich sind. Die Tragelaphinen und Cephalophinen verharren noch jetzt in diesem Zustande, dagegen werden die Bubalidinen, Hippotraginen und Cervicaprinen im Zahnbau den Bovinen sehr ähnlich. Die Pseudotraginen nehmen bezüglich der Höhe ihrer M eine Mittelstellung ein. Reduktion von P findet nur sehr selten statt. Der anfangs gerade Schädel erleidet Veränderung teils durch Knickung der Schädelachse, teils durch Verlagerung der Hörner, wobei die Scheitelbeine immer mehr nach rückwärts und auf die Seiten verdrängt werden, so daß sie kaum mehr an der Bildung des Schädeldaches teilnehmen oder ganz verkümmern. Die Unterschiede zwischen den bisher als »Antilopen« bezeichneten Bubalidinen, Hippotraginen und Cervicaprinen gegenüber den Bovinen bestehen, abgesehen von der Beschaffenheit der Hörner nur darin, daß diese Formen immer bloß einen Teil der für die Bovinen charakteristischen Spezialisierungen erreichen, nämlich entweder nur deren Zahnbau oder nur deren Schädelbau. Von Seitenzehen finden sich meist nur proximale Rudimente, die bei den Bovinen auch vollständig fehlen.
Die Boodontia sind ein altweltlicher Stamm, welcher sich wohl schon im Untermiocän von geweihlosen Cervicorniern abgezweigt hat und im europäischen Obermiocän durch mehrere indifferente, als „Antilope“ cristata, clavata und Martiniana beschriebene Formen mit hirschähnlichem Gebiß und durch die mäßig hypselodonte Gattung Protragocerus vertreten ist. Ihre Organisation gestattet die Ableitung fast aller späteren Formen.
1. Gruppe. Cephalophinae.
Schädel wenig gewölbt, Schädelachse nicht geknickt, große Tränengruben, ohne Ethmoidallücken, Hörner kurz, zylindrisch, nach rückwärts geneigt, M brachyodont, ohne Basalpfeiler.
Protetraceros Schlosser. Unterpliocän von China. P. Gaudryi Schl.
Tetraceros Leach. Pliocän bis Gegenwart in Indien.
Cephalophus S. Smith. Lebend in Afrika, fossil im Pleistocän von Algier.
Boselaphus Blv. (Portax S. Smith). Pliocän, Pleistocän und lebend in Indien, von Rütimeyer zu den Cephalophinen, von den meisten anderen Autoren dagegen zu den Tragelaphinen gestellt, bildet wohl eine besondere Gruppe und steht der Urform der Rinder sehr nahe.
Duboisia Stremme. Sehr ähnlich, Altpleistocän von Java.
Paraboselaphus Schlosser. Zähne aus den schwäbischen Bohnerzen und aus dem Unterpliocän von China.
2. Gruppe. Pseudotraginae Schlosser.
Schädel mäßig oder stark gewölbt, mit großer Tränengrube, ohne Ethmoidallücken. Hörner gerade oder gebogen, Spitzen stets nach rückwärts geneigt, mit elliptischem oder rundem Querschnitt. Backenzähne brachyodont oder schwach hypselodont, zuweilen mit Basalpfeilern. Mittelmiocän bis Unterpliocän.
Diese Gruppe umfaßt die ältesten Cavicornier, die aber nur zum Teil Nachkommen hinterlassen haben. Die unterpliocänen Gattungen dürften vollständig erloschen sein.
Fig. 698.
Eocerus (Antilope) cristatus Biedermann sp. Obermiocän. Leoben. Steiermark. A obere M2 und M3 von unten, B unterer M3 von oben und außen (nat. Gr.)
Eocerus Schlosser. (Fig. 698.) Größe von Schaf. Hörner gerade, stark nach hinten geneigt, mit rundlichem oder elliptischem Querschnitt. Zähne brachyodont, Cerviden-ähnlich. Obermiocän von Sansan, Steiermark, Süddeutschland Antilope Martiniana, sansaniensis, clavata Lartet, cristata Biedermann, „Cervus“ lunatus und haplodon Meyer.
Pseudotragus Schlosser. Schädel ähnlich Capra. Zähne brachyodont. Unterpliocän von Samos P. capricornis Schlosser.
Pachytragus Schlosser. Hörner nur wenig gebogen, von gerundet polygonalem Querschnitt. Zähne schwach hypselodont. Unterpliocän. Samos P. crassicornis Schlosser.
Protoryx Major. Schädel lang und schmal. Hornspitzen rückwärts gebogen. Hornquerschnitt elliptisch. Zähne mäßig hypselodont. Unterpliocän von Samos, Maragha und Pikermi, vielleicht auch bei Odessa P. Carolinae Major.
Protragocerus Depéret. Hörner gerade, kurz, von gerundet dreieckigem Querschnitt. Zähne fast brachyodont. Obermiocän. La Grive St. Alban (Isère) P. Chantrei Depéret.
Tragocerus Gaudry. Schädel lang, schmal. Hörner stark komprimiert, wenig gebogen, an Vorderseite gekielt. M fast brachyodont. Unterpliocän von Pikermi, Cucuron, Baltavar etc. T. amaltheus Wagn. sp., eine Varietät auch in Maragha und auf Samos. Unterpliocän von China T. gregarius Schlosser.
Neotragocerus Matthew. Hornzapfen kurz, gerade mit ovalem Querschnitt. Zähne brachyodont. Pliocän Nebraska. N. improvisus Matthew.
3. Gruppe. Bubalidinae.
Schädel lang und schmal, mit oder ohne Tränengrube, ohne Ethmoidallücken, Hörner weit nach hinten gerückt, meist von rundlichem Querschnitt, mehr oder weniger gedreht. Zähne meist hypselodont, ohne Basalpfeiler.
Bubalis Cuvier (Alcelaphus Blv.). Lebend in Mittel- und Südafrika, fossil im Pleistocän von Algier.
Damaliscus Sclater. Hörner lang, Scheitelbeine kurz. Lebend und fossil in Afrika. Fossil Unterpliocän der indischen Siwalik D. palaeindicus Lyd.
Prodamaliscus Schlosser. Scheitelbeine lang, Hörner stark rückwärts geneigt. Zähne mäßig hypselodont. Unterpliocän von Samos P. gracilidens Schlosser.
Connochaetes Lichtenst. Schädel und Hörner rinderähnlich. Lebend Südafrika. Pleistocän von Algier. In den schwäbischen Bohnerzen kommen Zähne vor — Antilope Jägeri Rütimeyer —, welche denen vom Gnu nicht unähnlich sind.
Criotherium Major (Urmiatherium Rodler). (Fig. 699.) Scheitelbeine fast auf die Hinterhauptsfläche verdrängt. Cranium mit zahlreichen Lufthöhlen, Hörner weit nach hinten verschoben, kurz, spiralig und gekielt. Zähne fast brachyodont. Unterpliocän von Samos und Maragha C. argalioides Major.
Fig. 699.
Criotherium argalioides Forsyth Major. Unterpliocän. Samos. Schädel. 1/4 nat. Gr.
4. Gruppe. Hippotraginae.
Schädelachse geknickt. Schädel lang, mit Ethmoidallücken, ohne Tränengruben. Hörner lang, dicht an den Orbita gebogen oder gerade, von rundlichem Querschnitt. Zähne teils hypselodont und mit starken, teils brachyodont und mit schwachen Basalpfeilern.
Hippotragus Sundew. Hörner gebogen. Zähne hypselodont mit starken Basalpfeilern. Pliocän von Indien H. palaeindicus Lydekker. Pleistocän von Algier, lebend in Afrika.
Oryx Blv. Hörner lang, gerade, rückwärts geneigt. Lebend in Afrika.
Palaeoryx Gaudry. Groß. Hörner rund, mäßig lang, wenig gekrümmt, wenig nach rückwärts geneigt. Zähne brachyodont. Unterpliocän von Pikermi und Maragha P. Pallasi Wagn., Samos Majori, Stützeli Schlosser, Majori auch bei Odessa. Oberpliocän Meneghinii Rütimeyer, P. boodon und Cordieri Gervais.
Tragoreas Schlosser. Klein. Hörner stark rückwärts geneigt. Unterpliocän von Samos. T. oryxoides Schlosser.
Addax Rafinesque. Leierförmige, spiralige, lange Hörner. Lebend in Afrika.
Plesiaddax Schlosser. Mäßig hypselodonte, Addax ähnliche Zähne. Unterpliocän von China. P. Depereti Schlosser.
5. Gruppe. Cervicaprinae.
Schädel schwach gewölbt, mit Ethmoidallücken, ohne Tränengruben, Hörner wenig geneigt, leierförmig. Zähne bovinen-ähnlich.
Cobus A. Smith. Zweifelhafte Arten aus dem Pliocän der Siwalik. Pleistocän von Algier, lebend in Afrika.
Cervicapra lebend in Afrika. Pleistocän von Algier.
Pelea nur lebend in Afrika.
6. Gruppe. Tragelaphinae.
Schädel wenig gewölbt, mit Ethmoidallücken, bei den fossilen meist auch mit Tränengruben. Hörner lang, leierförmig, gekielt und spiralig, meist von rundem Querschnitt. Zähne stets brachyodont, bei den fossilen mit schwachen Basalpfeilern.
Tragelaphus Blainv., Strepsiceros Ham. Smith, Taurotragus Sclater, Oreas Desmarest. Lebend in Afrika. Von Strepsiceros und Oreas je eine Art im Pliocän der Siwalik (St. Falconeri Lyd., O. latidens Lyd.). Strepsiceros-ähnliche Zähne auch im Unterpliocän von China. Strepsiceros kudu fossil im Pleistocän von Algier.
Palaeoreas Gaudry. Hörner mit zwei Kielen. Unterpliocän von Pikermi und Maragha P. Lindermayeri Wagner sp., eine Art auch im Unterpliocän von China. Im Pliocän der Auvergne „Antilope“ torticornis Aymard, vielleicht identisch mit P. Montis Caroli Major aus Val d'Arno.
Protragelaphus Dames. Hörner mit nur einem Kiel. Unterpliocän von Pikermi — P. Skouzesi Dames — und Samos und Maragha.
Prostrepsiceros Major. Hörner mit zwei Kielen und dreieckigem Querschnitt. Unterpliocän von Maragha. „Tragelaphus“ Houtum-Schindleri Rodler.
Illingoceras Merriam. Hörner spiralig, gerade und gekielt. Vielleicht ein Antilocaprine. Pliocän? West-Nevada. I. Alexandrae Merriam.
Helicophora Major. Hörner mit nur einem Kiel und einwärts gedrehten Spitzen. Unterpliocän von Pikermi.
7. Gruppe. Bovinae.[160]
Hornzapfen hohl, kräftig, zylindrisch oder dreikantig, meist rechtwinklig nach außen gerichtet, ziemlich weit hinter den Orbita und an die Kante des Schädels gerückt. Stirnbeine groß, bis zum Occiput reichend. Scheitelbeine sehr kurz. M prismatisch, oft mit starken Basalpfeilern und mit ziemlich dicker Zementschicht.
Bei den Rindern haben die Merkmale der Cavicornier ihre höchste Ausbildung erlangt. Die mit Lufträumen erfüllten Stirnbeine gewinnen die größte Ausdehnung und bilden fast die ganze Bedachung des Gehirns. Dagegen werden die Scheitelbeine zuweilen ganz auf die Hinterhauptsfläche gedrängt und die Hörner rücken weit nach hinten und außen. Tränengruben und Ethmoidallücken fehlen, Tränenbeine und Nasenbeine haben ansehnliche Länge.
Fossil erscheinen die Rinder zuerst im Pliocän der indischen Siwalik, später auch in Europa, jedoch werden sie erst im Pleistocän häufiger und gelangen auch nach Nordamerika.
Rütimeyer unterscheidet fünf Typen:
A. Bubalus. Büffel.
Stirnzone stark gewölbt. Scheitelbeine noch etwas auf der Oberseite des Schädeldaches liegend. Hornzapfen abgeplattet, meist dreikantig, zuerst nach hinten, dann nach außen gerichtet, nahe an der Mittellinie des Schädels beginnend. M mit ungemein kräftigen, oft gefältelten Basalpfeilern.
Die Büffel verbinden in osteologischer Hinsicht die Rinder mit der Gattung Boselaphus (Portax).
Im Tertiär von Ostindien die erloschenen Gattungen Probubalus Rütimeyer (Hemibos, Peribos Falconer) und Amphibos Falconer. Ebendaselbst und im Pleistocän, sowie in dem von Java Buffelus Blumb. Im Pleistocän von Europa und Indien Bubalus Rütimeyer.
B. Leptobos.
Schädel niedrig, lang. Hörner dicht hinter den Orbiten, weit außen entspringend, nicht sehr kräftig, fast zylindrisch, nach hinten gerichtet. Scheitelbeine relativ groß, noch auf der Oberseite des Schädels gelegen.
Leptobos Rütimeyer. Im Pliocän, L. Falconeri Rütimeyer, und Pleistocän von Ostindien. Nach F. Major gehört auch Bos etruscus Falconer aus dem Oberpliocän von Val d'Arno, der Auvergne und von Spanien zu Leptobos.
C. Bibos.
Stirnbeine hinten quer verbreitert. Stirn groß und flach. Scheitelzone auf das Hinterhaupt gedrängt. Hörner mehr oder weniger abgeplattet, nahe dem Hinterhaupt beginnend, in der Jugend nach hinten, im Alter seitwärts gerichtet.
Bibos Hodgson. Lebend und fossil in Indien und im Pleistocän von Java.
D. Bison.
Schädel niedrig, Stirn flach, überaus breit, relativ kurz. Hörner nahe den weit vorspringenden Orbiten beginnend, zylindrisch, nach außen und oben gerichtet. Scheitelbeine kurz und breit, stets noch auf der Oberseite des Schädeldaches. Gesichtsteil kurz. Nasenbeine kurz, hinten breit.
Die Gattung Bison erscheint zuerst im Oberpliocän von Indien (B. sivalensis Falconer). Spuren hiervon auch im Pliocän von Nordamerika. Im Pleistocän von Europa und Nordasien B. priscus v. Mey., im Pleistocän von Nordamerika B. antiquus Leidy und latifrons Harlan. Der fossile europäische B. priscus, Wisent, steht den amerikanischen Bisonten näher als dem B. europaeus.
E. Taurus. Ochsen.
Stirnbein enorm ausgedehnt, das ganze Schädeldach bildend, die kurzen Scheitelbeine ganz auf das Hinterhaupt gedrängt. Hörner zylindrisch, an den hinteren Außenecken des Schädels sitzend.
In den Taurina hat der Schädelbau der Bovinen seinen Kulminationspunkt erreicht bezüglich der Ausbreitung der Stirnbeine und der Reduktion der Scheitelbeine.
Die einzige Gattung Bos erscheint zuerst in — jedenfalls jüngeren — Siwalikschichten von Indien B. planifrons, acutifrons Lydekker. Im Pleistocän von Indien B. namadicus Falc., im Pleistocän von Europa, Asien und Nordafrika B. primigenius Bojanus und als Ur noch bis in die Bronzezeit. Er stammt nach Dürst von planifrons ab, während acutifrons und namadicus sich an die Bibovina und die Zebu anschließen. In Europa ist er gezähmt worden und der Ahne der Primigenius- oder Trochoceros-Rasse, aus der wahrscheinlich auch die Frontosus-Rasse hervorgegangen ist. Dagegen wurde die Brachyceros-Rasse — Brachyceros palustris — Torfkuh der Pfahlbauten, wohl aus Asien oder Nordafrika eingeführt.
5. Unterordnung. Amblypoda.[161] Cope.
Ausgestorbene, meist große plantigrade Huftiere mit kurzen, fünfzehigen Füßen und breiten, von Hufen umgebenen Endphalangen. Zweite Reihe des Carpus mit der ersten alternierend. Astragalus sehr breit und niedrig, mit Tibia und mit Fibula artikulierend, die tibiale Gelenkfläche schwach gewölbt oder eben, nicht ausgehöhlt. Gebiß meist vollständig. Backenzähne brachyodont und lophodont. Gehirn sehr klein.
Zu den Amblypoden gehören die größten Landsäugetiere der Eocänzeit. Ihre Extremitäten und Zähne und ihr ganzer Knochenbau zeigen neben primitiven Merkmalen auch sehr weitgehende Spezialisierungen, die sich zum Teil bei Perissodactylen, zum Teil auch bei Artiodactylen, zum Teil aber bei den Proboscidiern und Astrapotheria wieder finden.
Sie beginnen in der Puerco-Stufe (Unterstes Eocän) mit verhältnismäßig kleinen und schlanken Formen (Pantolambda), die durch trituberkuläre obere Molaren und semidigitigrade Extremitäten ihr primitives Gepräge verraten; in der Wasatchstufe und in den gleichaltrigen alteocänen Ablagerungen Europas dominieren die plumpen und großen Coryphodonten mit einem vollständigen Gebiß, in welchem die Molaren bereits lophodonten Bau erlangt haben. Stärker differenziert sind die auf Nordamerika beschränkten mitteleocänen riesigen Dinoceratidae. Hier verkümmern die oberen J; die oberen C ragen als mächtige Hauer über den Unterkiefer vor, während die unteren Eckzähne winzig klein werden und den Schneidezähnen gleichen. Die Backenzähne werden ausgezeichnet lophodont und die P den M ähnlich.
Die Extremitäten sind stämmig, mäßig hoch, vorne und hinten fünfzehig. Die Carpalia bilden schwach alternierende Reihen; zuweilen ist ein Os centrale vorhanden. Im Hinterfuß zeigen die Tarsalia eine starke, seitliche Verschiebung. Der niedrige, ungemein breite Astragalus bedeckt nicht nur das Naviculare, sondern im Gegensatz zu den Proboscidiern auch einen großen Teil des Cuboideums. Das Naviculare ruht auf den drei Cuneiformia. Dem Astragalus fehlt sowohl ein abgesetzter Kopf, als auch eine eigentliche Trochlea, indem die schwach gewölbte tibiale Gelenkfläche keine Ausfurchung besitzt, weshalb nur eine sehr unvollkommene Beugung des Fußgelenkes ermöglicht wird. Ein Flexorforamen, sowie eine Fasette am Hinterrand des Astragalus für ein sogenanntes Tibiale (Sesamoid) sind wie bei den Condylarthra vorhanden. Das Calcaneum und die kurzen, plumpen Metatarsalia erinnern an den Proboscidierfuß. Am Femur ist ein dritter Trochanter bei den ältesten Formen vorhanden, fehlt aber bei den Dinoceratiden. Die Fibula artikuliert bei diesen nur mit dem Astragalus.
Die Amblypoden besitzen unter allen Huftieren die kleinste Gehirnhöhle. Das Großhirn ist nahezu glatt und bedeckt weder die Riechlappen noch das Cerebellum.
Osborn leitet die Amblypoda von den Gattungen Protolambda, Ectoconodon und Synconodon aus der Laramiekreide ab, die jedoch nur auf isolierte trituberkuläre resp. tuberkulärsektoriale Molaren begründet sind. Auch vereinigt er die bunodonten Periptychidae mit den Pantolambdidae in eine Unterordnung, die Taligrada.
1. Familie. Pantolambdidae (Taligrada). Cope.
Schädel raubtierähnlich, mit hoher Sagittalcrista. 3.1.4.3.3.1.4.3. J und C normal entwickelt. Obere P aus einem äußeren und einem inneren eckigen Halbmond bestehend, obere M mit ⋁förmigem Paracon, Metacon und Protocon nebst zwei Zwischenhöckern. Untere M mit hohem ⋁förmigem Trigonid und einem niedrigen, ebenfalls ⋁förmigem Talonid, das an den P sehr klein bleibt. Humerus mit Foramen entepicondyloideum, Femur mit drittem Trochanter. Astragalus flach mit schwach gewölbter Gelenkfläche für die Tibia und mit Foramen. Carpus mit freiem Centrale. Schwanz lang.
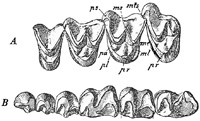
Fig. 700.
Pantolambda cavirictus Cope. Unterstes Eocän. Torrejonbed. Neumexiko. A Obere P4 bis M3. B Untere Backenzähne. 2/3 nat. Gr. (nach Osborn.)
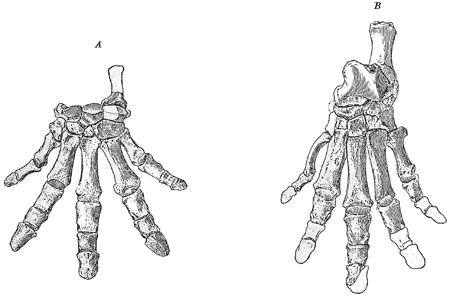
Fig. 701.
Pantolambda bathmodon Cope. Unterstes Eocän. Torrejonbed. Neumexiko. A Vorderfuß. B Hinterfuß. 1/2 nat. Gr. (nach Osborn.)
Pantolambda Cope. (Fig. 700, 701.) Unterstes Eocän. Torrejonbed von Neumexiko. P. bathmodon, cavirictus Cope.
2. Familie. Coryphodontidae. Owen.
Schädel länglich, mit breiter, schräg abfallender Stirn. Gebiß vollständig. Obere M mit Vorjoch und zwei durch ein ⋁förmiges Joch verbundenen Außenhöckern nebst einem oder zwei ungleich starken Innenhöckern, von denen Joche nach den Außenhöckern verlaufen. Untere M mit zwei ⋁förmigen, nach innen geöffneten Jochen, wovon der vordere Schenkel mehr oder weniger verkümmert. P einfacher als M. Schneidezähne konisch, obere und untere Eckzähne spitz, stark vorragend. Rumpf im Verhältnis zum Schädel sehr klein. Humerus ohne Foramen entepicondyloideum. Femur mit drittem Trochanter. Astragalus sehr niedrig, ohne Kopf, mit schwach gewölbten Gelenkflächen für Tibia und für Fibula.
Die Coryphodontiden waren plumpe, vorne digitigrade, hinten plantigrade Tiere von ansehnlicher Größe. Ihr Gebiß spricht für omnivore Nahrung, der Bau des Hand- und Fußgelenkes für langsame und ungeschickte Bewegung. Dem Schädel fehlen die sonderbaren Stirnzapfen der Dinoceraten, dagegen dienten die mächtigen, spitzen Eckzähne als gefährliche Waffen. Im Habitus hatte Coryphodon mehr Ähnlichkeit mit Bär als mit einem wirklichen Huftier.
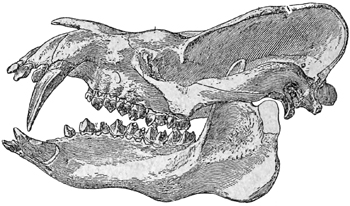
Fig. 702.
Coryphodon testis Cope. Untereocän. Wasatchbed. Wyoming. Schädel und Unterkiefer. 1/6 nat. Gr. (nach Osborn.)
Von den Gattungen Coryphodon Owen (Bathyopsis, Bathmodon, Metalophodon Cope) (Fig. 702-704), Ectacodon und Manteodon Cope ist nur die erste genauer bekannt und in den Wasatch und Wind River Beds von Wyoming und Neu-Mexiko durch mehr als ein Dutzend Arten vertreten, unter welchen sich mehrere Entwicklungsreihen erkennen lassen. Manche Arten kommen teils im Schädelbau, teils in der Ausbildung der C oder der J den Dinoceratiden schon sehr nahe. In Europa finden sich C. eocaenus Owen und C. Oweni Hébert in Nordfrankreich, Belgien und England.
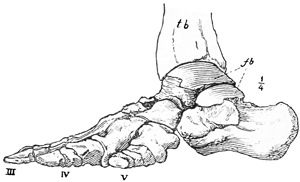
Fig. 703.
Coryphodon anax Cope. Unt. Eocän. Wasatch. Wyoming. Linker Hinterfuß. 1/4 nat. Gr. (nach Osborn.) (tb Tibia, Fb Gelenkfasetten des Astragalus und Calcaneums für die Fibula, III-V dritte bis fünfte Zehe.)
3. Familie. Dinoceratidae. Marsh.
Schädel mit je einem Paar vorragender Knochenfortsätze auf Scheitelbein, Oberkiefer und Nasenbein. Zahnformel: 0.1.3.3.3.1.4-3.3. Obere J fehlen. Obere P den M ähnlich, wie diese mit zwei nach innen konvergierenden Jochen, untere M mit zwei schrägen Querjochen. Oberer C gewaltig groß, weit über die untere Zahnreihe vorragend. Untere J und C klein. Unterkiefercondyli nach hinten gerichtet und nur wenig höher als die Zahnreihe. Femur ohne dritten Trochanter. Häufig im oberen Eocän (Bridger Beds) von Wyoming.
Die Dinoceraten gehören zu den gewaltigsten und sonderbarsten Landsäugetieren. Die größten Arten von Loxolophodon (Tinoceras) erreichten eine Rückenhöhe von 2 m und eine Länge von nahezu 4 m, standen also dem Elefanten an Größe beinahe gleich; andere kleinere Formen übertrafen Flußpferd und Rhinozeros nur wenig an Höhe.
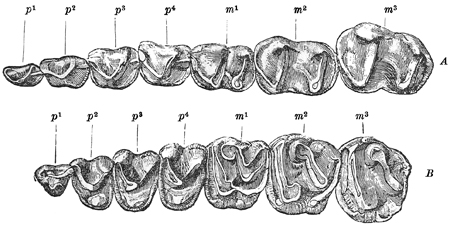
Fig. 704.
Coryphodon hamatus Marsh. Unt. Eocän. Wyoming. Backenzähne des linken Oberkiefers (A) und des linken Unterkiefers (B). 1/2 nat. Gr. (Nach Marsh.)
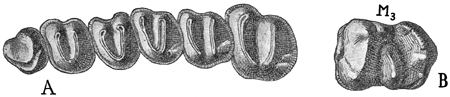
Fig. 705.
Uintatherium mirabile Marsh. Mitteleocän. Bridgerbed. Wyoming. A obere Backenzähne. 3/1 nat. Gr. B linker unterer M3, 1/2 nat. Gr.
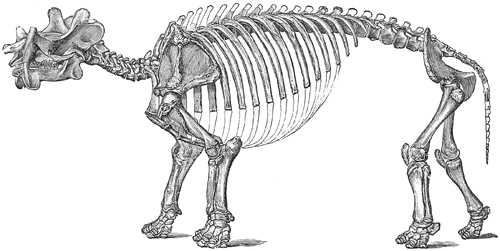
Fig. 706.
Uintatherium mirabile Marsh sp. Restauriertes Skelett. 1/13 nat. Gr. (Nach Marsh.)
Uintatherium Leidy (Dinoceras Marsh, Octotomus Cope) (Fig. 705, 706). Die Protuberanzen auf den Nasenbeinen klein, vertikal, die porösen Knochenkämme auf den Scheitelbeinen hoch, über den Condylen des Unterkiefers. Dem mächtigen oberen Eckzahn entspricht am Unterkiefer ein nach unten vorspringender, breit gerundeter Fortsatz. Die oberen und unteren M und P besitzen zwei nach innen konvergierende Querjoche. Das Gehirn ist winzig klein. Becken und Extremitäten weisen infolge gleicher Funktion große Übereinstimmung mit den Proboscidiern auf. Die Hinterbeine sind etwas länger als die Vorderbeine. Die Füße fünfzehig. Mehrere Arten im Eocän von Wyoming.
Loxolophodon Cope (Tinoceras Marsh). Ähnliche, aber Nasenprotuberanzen stärker, schief nach vorne gerichtet, die Scheitelkämme hinter die Condyli reichend.
Zeitliche Verbreitung der Ungulata.
Unt. Eocän Mittl. Eocän Ober. Eocän Oligocän Unt. Miocän Mittl. Miocän Ober. Miocän Unt. Pliocän Ober. Pliocän Pleistocän Gegenwart
Condylarthra
Mioclaenidae
Periptychidae
Phenacodontidae
Meniscotheriidae
Pleuraspidotheriidae
Litopterna
Bunolitopternidae
Macraucheniidae
Proterotheriidae
Adiantidae
Perissodactyla
Tapiridae
Rhinoceridae
Equidae
Titanotheriidae
Chalicotheriidae
Artiodactyla
Suidae
Elotheriidae
Leptochoeridae
Hippopotamidae
Anthracotheriidae
Anoplotheriidae ?
Dichobunidae
Xiphodontidae
Caenotheriidae ?
Oreodontidae
Camelidae
Tragulidae
Hypertragulidae
Cervicornia
Antilocapridae
Cavicornia
Amblypoda
Pantolambdidae
Coryphodontidae
Dinoceratidae
8. Ordnung. Notoungulata. Santjago Roth[162]
Ausgestorbene, auf Südamerika beschränkte, plantigrade bis semidigitigrade, fünf- bis dreizehige Pflanzenfresser mit flachem, niedrigem Schädel, breiter Stirne und breitem Hinterhaupt. Jochbogen kräftig, hinten bis zur Supraoccipitalcrista verlängert, Nasalia breit, Nasenöffnung in der Regel endständig. Orbita groß, nur unvollständig von den Schläfengruben getrennt, Mastoidregion meist stark ausgedehnt. Unterkiefer hoch und massiv, meist mit fester Symphyse. Gebiß in der Regel vollständig, meist ohne Zahnlücken, häufig die vordersten J vergrößert, die übrigen J sowie C, P und M allmählich ineinander übergehend. Zähne brachyodont bis hypselodont, prismatisch. Obere M mit Außenwand — Ectoloph, langem schrägen Vorjoch — Protoloph und kurzem geraden Nachjoch — Metaloph. Untere M aus zwei ungleich großen Halbmonden und zwei Innenpfeilern bestehend. Carpalia alternierend, frei, Centrale fehlend. Astragalus mit schmaler, öfters ausgefurchter Trochlea und konvexem Naviculargelenk. Fibula stets am Calcaneum artikulierend. Endphalangen als stumpfe, kleine Krallen oder als Hufe oder als kräftige, gespaltene Klauen entwickelt.
Die Notoungulata vereinigen in ihrem äußeren Habitus viele Merkmale der Hyracoidea mit solchen der Nager. Die Ähnlichkeit äußert sich namentlich in der Breite und Ebenheit des Schädeldaches, in der kräftigen Ausbildung der Jochbogen, in der Breite des Hinterhaupts, in der Lage und Größe der Orbiten, in der Höhe der Unterkiefer und in der Vergrößerung der vordersten J. Auch die einzelnen Knochen sind jenen der Hyraciden und mancher Nager nicht unähnlich. Bei näherer Betrachtung ergeben sich jedoch fundamentale Unterschiede. So sind die J im Gegensatz zu denen der Nager nicht seitlich, sondern von vorne nach hinten komprimiert und die Zahnzahl erleidet nur geringe Reduktion. Von den Hyracoiden unterscheiden sich die Notoungulata durch die alternierende Anordnung der Carpalia, durch die Artikulation der Fibula mit dem Calcaneum, durch die einfache seitliche Gelenkung des Malleolus der Tibia am Astragalus, und vor allem ist das Gebiß der Hyracoidea ursprünglich bundont, und die später entstehenden beiden Joche der oberen M, sowie die beiden Halbmonde der unteren M sind stets gleichgroß, während bei den Notoungulaten der Metaloph der oberen und der vordere Halbmond der unteren M stets viel kleiner ist als der Protoloph und der hintere Halbmond.
Den Molaren der Notoungulata (Fig. 707) liegt ein trituberkulärer bzw. tuberkulärsektorialer Bauplan zugrunde. An den oberen M verbinden sich die beiden Außenhöcker sehr innig zu einer Außenwand — Ectoloph, der vordere Innenhöcker — Protocon, wird zu einem langen schrägen Protoloph und der Hypocon zu einem kurzen geraden Metaloph. Sehr häufig bilden sich an diesen M auch Crista- oder Crochet-ähnliche Sporne und am Vorderrand entwickelt sich ein Parastyl, so daß die Zähne eine gewisse Ähnlichkeit mit den oberen M von Rhinoceros erlangen. Am Hinterrand kann sich aus einem besonderen Pfeiler noch ein weiteres Joch entwickeln. Bei den primitiveren Formen sind die M bedeutend breiter als lang. Die unteren M bestehen aus je zwei äußeren Halbmonden, von denen der vordere viel kürzer ist als der hintere, und aus zwei mehr oder weniger komprimierten Innenhöckern gebildet wird, von welchen sich der vordere mit dem Hinterende des ersten Halbmondes innig verbindet, während der hintere dem zweiten Halbmond gegenüberliegt und häufig gänzlich isoliert bleibt. Mit den M der Litopterna haben diese M zwar die ursprüngliche Anlage gemein, aber es geht ihnen kein eigentliches Bunodontenstadium voraus.
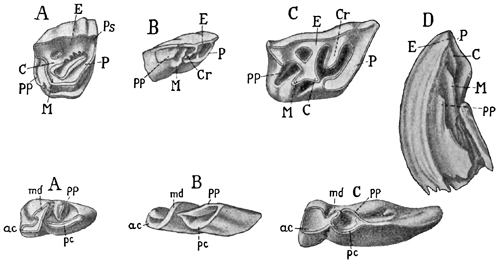
Fig. 707.
Obere und untere Molaren von Notoungulaten von oben.
Obere: A Pleurostylodon, B Protypotherium, 2/1 nat. Gr., C Rhynchippus, D Rhynchippus. M3 von hinten.
Untere: A Pleurostylodon. B Protypotherium, 2/1 nat. Gr. C Morphippus.
E Ectoloph, P Protoloph, M Metaloph, Ps Parastyl, Cr Crista, C Crochet, PP hinterer Pfeiler, ac vorderer Halbmond, pc hinterer Halbmond, md Metaconid, pp hinterer Pfeiler.
Die J, C und P gehen ihrer Zusammensetzung nach ganz allmählich in die M über, öfters kommt es zur Vergrößerung von einem oder zwei Incisivenpaaren, manchmal verschwinden auch ein oder zwei J sowie C, oder es werden die C zu echten hauerähnlichen Eckzähnen, womit zuweilen Verlust von 1 bis 3 P verbunden ist. Die Zähne sind anfangs brachyodont, später werden sie hypselodont und bewurzelt und zuletzt prismatisch wurzellos, jedoch bleiben auch in diesem Falle die P erheblich niedriger als die M.
Als wesentlichstes Merkmal der Notoungulata bezeichnet Santjago Roth die Verbreiterung und Auftreibung der Mastoidregion und die Verbindung dieses oft mit blasigem Knochengewebe erfüllten Hohlraums mit der Bulla tympanica. Wennschon diese Organisation bereits bei den ältesten Formen zu beobachten ist, so bestehen doch hinsichtlich des Grades dieser Auftreibung erhebliche Unterschiede, weshalb auch kaum ein zwingender Grund vorliegt, die Astrapotherioidea wegen des Fehlens dieses Merkmals von den Notoungulata auszuschließen.
Die Extremitätenknochen zeigen je nach den Körperdimensionen große Verschiedenheit und weitgehende Spezialisierungen. Im allgemeinen lassen sie sich jedoch eher mit denen von Fleischfressern und Nagern, als mit solchen von echten Huftieren vergleichen. Bei kleinen Formen sind die langen Röhrenknochen schlank, ihr Humerus besitzt ein Entepicondylarforamen und das Femur einen dritten Trochanter. Die Ulna ist sehr kräftig entwickelt und nicht mit dem Radius verwachsen. Beide stehen häufig gekreuzt. Die Carpalia sind sämtlich frei und alternierend angeordnet. Der Astragalus hat stets ein konvexes, meist sogar halbkugelförmiges und langgestieltes Naviculargelenk, und die meist frei bleibende Fibula artikuliert stets mit dem Calcaneum. Die Zahl der Metapodien schwankt zwischen fünf und drei, die Leitkiele ihrer distalen Gelenkfläche sind immer auf die Hinterseite beschränkt. Die Zehenendglieder sind bald krallenartig, aber vorne etwas abgeplattet, bald wirkliche breite Hufe, bald gebogene, tief gespaltene, plumpe Klauen.
Die Notoungulata zerfallen in vier Unterordnungen: Typotheria, Toxodontia, Entelonychia und Astrapotherioidea.
1. Unterordnung. Typotheria. Zitt.[163]
Ausgestorbene plantigrade oder digitigrade Pflanzenfresser mit meist vierzehigen Vorder- und Hinterfüßen. Gebiß in der Regel vollständig, die inneren oberen J vergrößert, die äußeren J und die C öfters reduziert, oder alle Zähne ineinander übergehend und in dicht geschlossener Reihe. Backenzähne oben lophodont, unten selenolophodont, anfangs brachyodont bewurzelt, später hypselodont prismatisch und wurzellos. Clavicula öfters vorhanden. Carpalia alternierend, Centrale fehlend. Humerus mit Foramen entepicondyloideum. Femur mit drittem Trochanter. Astragalus mit halbkugelförmigem Kopf. Fibula am Calcaneum artikulierend.
Die Typotheria sind auf das Tertiär und Pleistocän von Südamerika beschränkt. Sie stehen den Toxodontia sehr nahe, und sehen äußerlich manchen Nagern und den Hyracoideen sehr ähnlich, jedoch beruht dies nur auf Konvergenz und nicht auf wirklicher Verwandtschaft.
Der Schädel erinnert durch seine langgestreckte Form und die geradlinige Quernaht zwischen den Stirn- und Scheitelbeinen an Nager. Die nach vorne gerichtete Nasenöffnung wird seitlich durch die hohen Zwischenkiefer und oben durch die langen bis zur Schnauzenspitze reichenden Nasenbeine begrenzt. Die Scheitelbeine haben einen schwachen Sagittalkamm. Die hinten sehr kräftigen Jochbogen liegen sehr hoch und die weiten Orbiten sind hinten öfters von einem Processus postorbitalis des Stirnbeines begrenzt. Das Foramen infraorbitale steht vor dem Jochbogen. Das breite Hinterhaupt ist mit Supraoccipitalcrista und mit langem Paroccipitalfortsatz versehen. Die Ausdehnung und Auftreibung der Squamosomastoidregion erreicht bei den Typotheria den höchsten Grad unter allen Notoungulata, Pachyrucos, ist aber keineswegs bei allen gleich stark ausgeprägt. Diese bald hohle, bald mit blasigem Knochengewebe erfüllte Kapsel steht mit der Bulla tympanica in Verbindung und umschließt den weiten, nach aufwärts gerichteten äußeren Gehörgang. Das Gaumendach ragt oft weit hinter die letzten M hinaus. Der hohe Unterkiefer bildet eine feste Symphyse und hat mit dem von Hyrax die Breite des aufsteigenden Astes und die Kürze des Kronfortsatzes gemein.
Das Gebiß ist in der Regel vollständig mit 3.1.4.3.3.1.4.3. in geschlossener Reihe, manchmal entsteht durch Verkümmerung der äußeren J, der C und von einigen P ein weites Diastema. Bei den älteren Formen sind alle Zähne brachyodont, später nur die Milchzähne. Die unteren J zeigen häufig in der Mitte einen tiefen Einschnitt. Die oberen J1 und die unteren J1 und J2 werden größer und länger und Nagezahnähnlich, jedoch sind sie in der Richtung von vorne nach hinten, anstatt seitlich komprimiert. Die folgenden J, C und P gehen entweder ganz allmählich in die M über, oder die J und C werden zu schwachen Stiften oder fehlen sogar vollständig. Die P sind meist einfacher als die M, da ihre hintere Hälfte kleiner bleibt als die vordere. Die oberen P und M sind bei prismatischer Ausbildung nach innen, die unteren nach außen gekrümmt. Im Oberkiefer bestehen die M aus einem Ectoloph, der mit einer vorspringenden Leiste versehen ist, einem schrägen Protoloph, einem etwas kürzeren Metaloph und einer Crista nebst einem hinteren Pfeiler. Im Unterkiefer haben sie zwei Außenmonde und zwei stark komprimierte Innenpfeiler, welche sich bald zu einer Innenwand vereinigen. Der untere M3 ist stets viel größer als M2. Von den M der Toxodontia unterscheiden sich die der Typotheria dadurch, daß ihre vordere und hintere Partie fast gleich groß ist, und die Vertiefungen bei der Abkauung sehr rasch verschwinden, die oberen überdies durch die beträchtliche Streckung ihrer Kaufläche und den Besitz von sekundären Spornen. Die Zähne sind öfters mit einer dünnen Zementschicht versehen.
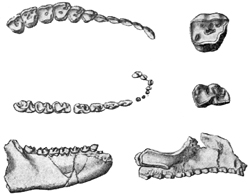
Fig. 708.
Adpithecus secans Amegh. Obereocän. Notostylops-Schichten Patagonien. Obere und untere Zahnreihe, nat. Gr. Oberer und unterer M, 2/1 nat. Gr. Unterkiefer, Oberkiefer, 2/3 nat. Gr.
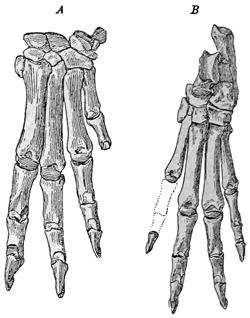
Fig. 709.
Protypotherium australe Ameghino. Obermiocän. Santa Cruz. A Vorderfuß, 3/4 nat. Gr. B Hinterfuß, 1/2 nat. Gr. (nach Sinclair.)
Die Zahl der Rückenwirbel ist 15, die der Lendenwirbel 7 und der Sacralwirbel 5, wenigstens bei den Typotherien aus dem Miocän von Santa-Cruz. Der Schwanz dürfte meist sehr lang gewesen sein. Das Schulterblatt ist mit einem Acromial- und einem Coracoidfortsatz versehen, und daran schließt sich wohl öfter eine gut entwickelte Clavicula. Der Humerus hat ein Entepicondylarforamen. Ulna und Radius sind frei und etwas gebogen. Der Carpus besitzt stets alternierende Anordnung. Das Centrale ist mit dem Scaphoid verwachsen. Die Zahl der Metacarpalia ist vier, der Daumen ist ganz verschwunden und der fünfte Finger etwas verkürzt, bei Typotherium hingegen ist der 2. bis 5. von fast gleicher Länge und der 1. zwar kurz, aber noch mit Phalangen versehen. Die Zehenendglieder sind zugespitzt, aber an der Unterseite in eine dreieckige Platte ausgezogen oder hufähnlich und an der Spitze gespalten.
Das Femur trägt einen mäßig vorspringenden dritten Trochanter. Tibia und Fibula sind bald frei, bald an dem oberen und unteren Ende verwachsen. Das Calcaneum hat einen langen, dicken Tuber, eine breite konvexe Gelenkfläche für die Fibula und eine große Fläche für das Cuboid, dagegen ragt das Sustentaculum nur ganz wenig vor. Der Astragalus zeichnet sich durch die schmale, nicht sehr tiefe Trochlea und das wohlgerundete, gestielte Caput aus. Von den vier Metatarsalien sind die seitlichen öfters etwas schwächer. Im allgemeinen zeigt das Skelett den ursprünglichen Typus der Fleischfresser nebst zahlreichen, den Nagern eigentümlichen Spezialisierungen.
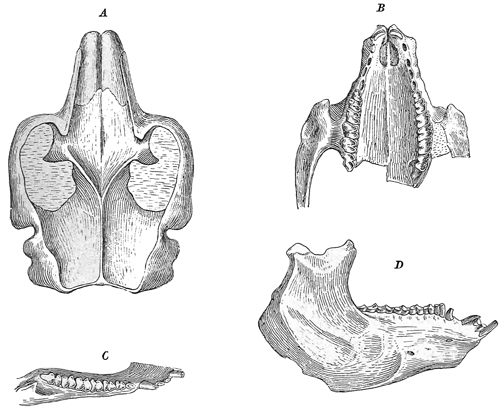
Fig. 710.
Interatherium robustum Ameghino. Obermiocän. Santa Cruz. Patagonien. A Schädel von oben, B Gaumen von unten, C Unterkiefer von oben, D von außen, nat. Gr.
1. Familie. Notopithecidae. Ameghino.
3.1.4.3.3.1.4.3. in geschlossener Reihe, brachyodont, bewurzelt. J, C und P allmählich ineinander übergehend. J1 bis P1 schneidend, untere J und C meißelförmig, P2 bis P4 dreieckig, M1 bis M2 rhombisch, M3 gerundet dreieckig — mit Außenwand, zwei ungleichen, an der Innenseite verbundenen Querjochen und hinterem Basalwulst, nebst Spornen im Zentrum. Untere M mit zwei äußeren Halbmonden und zwei Innenhöckern, davon der erste mit dem ersten Halbmond verbunden, der zweite frei. Unterkiefer ziemlich schwach.
Diese auf das Eocän — Notostylopsschichten — und Oligocän von Patagonien beschränkten Tiere von Kaninchengröße sind die Vorläufer der beiden folgenden Familien.
Notopithecus, Adpithecus (Fig. 708), Transpithecus, Infrapithecus etc. Amegh. Notostylops Schichten? Guilelmoscottia Amegh. Astraponotus Schichten.
2. Familie. Interatheriidae. Ameghino.
3.1.4.3.3.1.4.3. J1 bewurzelt, alle übrigen prismatisch. P3 und P4 einfach gebaut. Obere M mit Innenfurche. Mastoid mit blasigem Gewebe erfüllt, Malare weit hinter dem Maxillare beginnend. Unterkiefer hoch. Jochbogen mit nach unten gerichtetem Fortsatz. Tibia und Fibula frei. Seitenzehen reduziert.
Protypotherium (Patriarchus) Ameghino. (Fig. 709). Jochbogenfortsatz schwach, Zähne gleichmäßig ineinander übergehend. Miocän von Santa Cruz. P. australe, attenuatum Amegh.
Interatherium (Icochilus) Ameghino. (Fig. 710). Seitliche J und C reduziert. Jochbogen mit kräftigem Fortsatz. Humerus mit undeutlichem Foramen. Miocän von Santa Cruz. J. robustum, extensum Amegh.
Cochilius Amegh. Miocän. Colpodon-Schichten.
Plagiarthrus Amegh. Zähne im Alter bewurzelt. Pyrotherium-Schichten.
3. Familie. Hegetotheriidae. Ameghino.
J1 in beiden Kiefern vergrößert. P3 und P4 M-artig. Obere M innen konvex, außen glatt. Mastoid hohl, Malare an das Maxillare stoßend. Tibia und Fibula verwachsen. Seitenzehen ungleich reduziert.
Hegetotherium (Selatherium) Ameghino. 3.1.4.3.3.1.4.3. hintere J und C etwas reduziert. Endphalangen abgeplattet. Miocän. Colpodon-Schichten und Santacruzeno. H. mirabile Amegh. Schwanz lang. Fuchsgröße.
Archaeopilus, Prohegetotherium Amegh. Unt. Miocän. Pyrotherium-Schichten.
Prosotherium Amegh. 1.0.4.3.2.0.4.3.. Pyrotherium-Schichten.
Eohegetotherium Amegh. Zähne noch bewurzelt. Oligocän. Astraponotus-Schichten.
Pachyrucos Amegh. (Paedotherium Burmeister) 1.0.3.3.2.0.3.3.. Mastoidregion ungewöhnlich stark aufgetrieben. Endphalangen hufartig. Schwanz kurz. Miocän. Santa Cruz. P. Moyani Amegh. Kaninchengröße. Schon in den Colpodon-Schichten. Auch im Pliocän und im Pleistocän. Monte Hermoso. P. typicus Amegh.
Eopachyrucos, Pseudopachyrucos Amegh. Astraponotus-Schichten. Propachyrucos Am. Pyrotherium-Schichten.
Argyrohyrax Amegh. 3.1.4.3. Die hinteren J, C und P1 und P2 ineinander übergehend. P3 und P4 M-artig. Pyrotherium-Schichten.
4. Familie. Typotheriidae. Amegh.
1.0.2.3.2.0.1.3. J1 breit, gekrümmt, an der Basis offen, an Vorderseite mit Schmelz versehen, unterer J2 klein. Hinter den J ein langes Diastema. Obere P mit zwei, M mit drei Jochen. Vorderpartie der unteren M viel kürzer als die hintere. Alle Backenzähne prismatisch und teilweise mit Zement versehen. Carpalia alternierend. Hand mit dünnem Daumen. Fibula nicht mit dem Calcaneum artikulierend.
Typotherium Bravard (Fig. 711) erreicht fast die Größe eines Schweins. Älteres Pleistocän von Argentinien.
Trachytypotherium Ameghino. Pliocän.
Eutrachytherus und Proëdrium Amegh. mit 3.1.4.3.2.1.4.3. aus den Pyrotherium-Schichten von Patagonien von unsicherer Stellung.
An die Typotheria reihen sich am besten an die Archaeopithecidae und Acoelodidae Ameghino, beide brachyodont aus dem Eocän, Notostylops-Schichten, und die Archaeohyracidae mit prismatischen Zähnen aus dem Untermiocän, Pyrotherium-Schichten, von Patagonien. Die Archaeopitheciden sind wohl die Vorfahren der Archaeohyraciden und die Acoelodiden vielleicht Verwandte der Notohippiden. Mit Primaten oder Hyracidae haben sie natürlich nichts zu schaffen. Extremitätenknochen nicht mit Sicherheit bekannt.
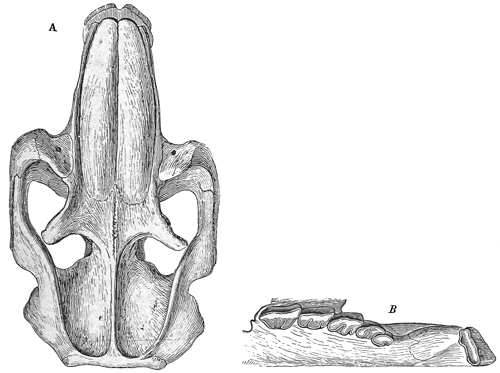
Fig. 711.
Typotherium cristatum Serres. Pampasformation. Buenos-Aires, Argentinien. A Schädel von oben. B Oberkiefer und Zwischenkiefer von unten. 1/4 nat. Gr. (Nach Gervais.)
5. Familie. Archaeopithecidae. (Henricosborniidae, Pantostylopidae) Ameghino.
P einfacher als M. Obere P und M3 dreieckig, M1 und M2 oblong, viel breiter als lang. Außenwand mit Parastyl, häufig auch mit Mesostyl und Metastyl. Protoloph schräg und länger als der gerade Metaloph. Beide Joche öfters an der Innenseite miteinander verbunden. Zuweilen Cristae und Crochet vorhanden. Hinterer Halbmond der unteren P kleiner, an den M größer als der vordere. P mit nur einem Innenhöcker — an der Vereinigung der beiden Halbmonde —, M mit zweitem Innenhöcker in der Nähe des Hinterendes des zweiten Mondes. Alle Zähne brachyodont. Unterkiefer (Selenoconus Ameghino) ziemlich niedrig. Kaninchengröße.
Nur im Eocän, Notostylops-Schichten, von Patagonien. Henricosbornia, Othnielmarshia, Archaeopithecus, Pantostylops etc. Ameghino.
Die Acoelodidae unterscheiden sich von den Archaeopitheciden im wesentlichen nur durch ihre beträchtlicheren Dimensionen — etwa Fuchsgröße — und durch den mehr schräg trapezoidalen Umriß der oberen M.
Acoelodus, Oldfieldthomasia (Fig. 712), Eohyrax, Acoelohyrax etc. Amegh. Eocän. Notostylops-Schichten von Patagonien.
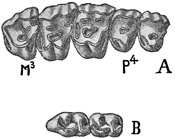
Fig. 712.
Oldfieldthomasia sp. Obereocän Notostylopssch. Patagonien. A Obere Backenzähne, B untere M2 und M3 nat. Gr.
6. Familie. Archaeohyracidae. Ameghino.
Schädel dem von Hegetotherium ähnlich, jedoch mit schwächerem Jochbogen und schlankerem Unterkiefer, 3.1.4.3.3.1.4-3.3. J1 mäßig vergrößert, die unteren J und C stiftförmig, die unteren P M-ähnlich. Oben alle Zähne ineinander übergehend, M von schräg dreieckig gerundetem Umriß und wie die P mit Parastyl versehen. Alle Zähne prismatisch. M3 mit großem dritten Lobus.
Wohl die Vorläufer von Typotherium. Untermiocän-Pyrotheriumschichten und Oligocän-Astraponotus-Schichten. Archaeohyrax. Ameghino.
2. Unterordnung. Toxodontia. Owen.[164]
Ausgestorbene, digitigrade oder semiplantigrade Pflanzenfresser mit dreizehigen Extremitäten. Gebiß meist vollständig. C stets schwach, öfters fehlend. Backenzähne gekrümmt, lophodont. Clavicula fehlt. Carpalia alternierend. Astragalus mit mäßig gewölbtem, schwach ausgefurchtem Tibialgelenk, distal abgestutzt, nur mit dem Naviculare artikulierend. Calcaneum plump, mit großer Gelenkfläche für die Fibula. Humerus ohne Foramen entepicondyloideum.
Die Toxodontia sind große bis mittelgroße, auf Südamerika beschränkte Pflanzenfresser, welche im Oligocän? von Patagonien beginnen und im Pleistocän von Argentinien und Brasilien aussterben.
Der Schädel ist mäßig hoch, das Dach häufig von der frei vorragenden Nasenspitze bis zum Hinterhaupt fast eben, die Schnauze verschmälert und ziemlich lang. Die Stirnbeine sind groß, die Scheitelbeine bilden einen schwachen Sagittalkamm. Das hohe breite Hinterhaupt fällt senkrecht ab, die Squamosomastoidregion ist nicht sehr stark aufgetrieben, und der äußere Gehörgang mündet schräg aufwärts. Die Condylen ragen ziemlich weit vor. Die Jochbogen sind ungemein hoch, aber nicht sehr dick, unter den nach hinten offenen Orbiten abwärts gebogen und zum größeren Teil aus dem Fortsatz des Squamosum gebildet. Zwischenkiefer verlängert und hoch, Tränenbein klein. Das gewölbte Gaumendach ragt über die letzten M hinaus, so daß die inneren Choanen weit nach hinten rücken. Die vorderen Gaumenlöcher liegen ganz in den Zwischenkiefern. Unterkiefer mit sehr starker Symphyse, breitem Kronfortsatz und hochgelegenem, querem Condylus. Das Gebiß ist häufig vollständig und hochspezialisiert und bildet öfters eine ganz oder nahezu geschlossene Reihe. Die J sind bald schaufelförmig, ganz oder fast allseitig von Schmelz umgeben und sämtlich oder zum Teil bewurzelt, bald stark verlängert, nagezahnähnlich, unten offen und nur vorne und hinten oder bloß auf der Vorderseite mit Schmelz bedeckt. Von den oberen J ist in der Regel J2, von den unteren J3 kräftiger entwickelt. Oben gehen alle Zähne von J3 an, unten von C an allmählich ineinander über. Von den vier P können die beiden vorderen verkümmern, die hinteren werden M-ähnlich. Die oberen M haben schief vierseitigen oder dreiseitigen Querschnitt und meist einen Parastyl. Sie bestehen aus einer Außenwand und zwei ungleichen Jochen, zwischen welchen sich ein tiefes Quertal befindet, in welches eine oder zwei Cristae hineinragen. Am Hinterrand bildet sich oft noch ein weiteres Joch. Durch Abkauung verbinden sich alle Erhabenheiten der Kaufläche, und die Vertiefungen werden zu Inseln, die später auch zum Teil oder vollständig verschwinden. Bei den primitiveren Formen sind die Kronen ganz von Schmelz umgeben, bei den spezialisierteren werden die Backenzähne prismatisch, die Wurzeln verschwinden und der Schmelz beschränkt sich auf die Außen- und Vorderseite oder auf die Außen- und Innenseite. Öfters tritt eine Zementschicht auf, die den Zahn ganz oder teilweise umhüllt. Die unteren Backenzähne bestehen aus einem kurzen vorderen und einem viel längeren, gestreckten hinteren Halbmond und zwei Innenpfeilern, von denen der vordere mit dem Hinterende des ersten, und der zweite mit seiner Basis mit dem Vorderende des zweiten Halbmondes verschmilzt. Durch die Abkauung der Erhabenheiten der Innenseite kommt eine Art von Innenwand zustande. Die ursprünglichen Vertiefungen werden auch hier zu Schmelzinseln. Die oberen J und M sind stark nach innen gekrümmt, die unteren nach vorwärts geneigt, M3 ist in beiden Kiefern verlängert. Die hinteren Milchzähne gleichen im wesentlichen den M, haben jedoch immer kurze, getrennte Wurzeln.