5. Klasse. Mammalia. Säugetiere.[116] (Bearbeitet von M. Schlosser.) (continued 3)
Reading edition
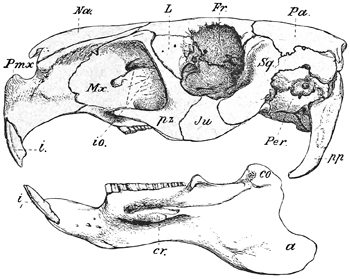
Fig. 589.
Hydrochoerus capybara Erxl. Südamerika. Schädel und Unterkiefer, 1/2 nat. Gr. (Nach Flower.) Pmx Zwischenkiefer, Mx Oberkiefer, Na Nasenbein, L Tränenbein, Fr Stirnbein, Pa Scheitelbein, Sq Schläfenbein, Ju Jochbein, Per Perioticum; i oberer, i1 unterer Schneidezahn, io Infraorbitalkanal, pz Processus zygomaticus des Oberkiefers, pp Processus paroccipitalis, co Condylus, a Angulus, cr Massetercrista des Unterkiefers.
Im Gegensatz zu dem primitiven Bau des Schädels und des Skelettes erscheint das Gebiß sogar schon bei den ältesten Nagern hochgradig spezialisiert. Die Zahnformel schwankt zwischen 2.0.3.3.1.0.3.2. und 1.0.2.1.0.2. Die Caninen sind gänzlich verschwunden und die Backenzähne trennt eine weite Lücke von den Incisiven, von welchen in der Regel auch nur je einer in jedem Kiefer und zwar der ursprüngliche J2 vorhanden ist. Nur bei den Duplicidentata steht hinter dem großen J2 noch ein kleiner J3. Die J, hier wegen ihrer Funktion Nagezähne genannt, wachsen in dem gleichen Maße weiter, als ihre Krone durch Abkauung abgenutzt wird. Die Backenzähne sind niemals vollzählig vorhanden, die P können ganz fehlen und von den M der letzte verkümmern. Abgesehen vom vordersten P haben alle Backenzähne übereinstimmenden Bau. Sie sind bald kurz, brachyodont und bewurzelt, bald hoch, hypselodont, prismatisch und unten offen und selbst im Alter wurzellos. Die ersteren haben bunodonte oder lophodonte Kronen, die letzteren bestehen aus Prismen oder Zylindern, die auf ihrer Kaufläche häufig Schmelzinseln — die Überreste früherer Quertäler — tragen oder aus komprimierten Lamellen. Ursprünglich bestanden die oberen Backenzähne aus drei oder vier und die unteren aus vier Höckern und dem kammartigen Vorder- und Hinterrand. Dann erfolgte Verbindung der benachbarten Höcker, welche sich zugleich zu Kämmen umgestalteten. Da die Schmelzdecke an den erhabenen Stellen der Krone stets durch die Abkauung entfernt wird, so unterbleibt hier die Schmelzbildung nicht selten sogar beim frischen Zahn. Die Vertiefungen des Zahnes liefern die Schmelzfalten und Schmelzinseln, welche wegen ihrer oft nur geringen Tiefe bei der Abkauung teilweise oder ganz verschwinden.
Der Zahnwechsel beschränkt sich bei den Nagern in der Regel auf die P, die J werden nur bei den Duplicidentata gewechselt. Bei den Nagern mit vier Backenzähnen sind die drei letzten die M, der vorderste ein P, der aber öfters keinen Vorläufer mehr besitzt. In den meisten Fällen geht ihm jedoch ein Milchzahn, D, voraus, welcher bei den geologisch älteren Nagern meist viel komplizierter ist und auch länger funktioniert als bei den jüngeren, wo er sogar wie bei den Caviinae schon beim Fötus gewechselt wird. An Embryonen von Sciurus hat Adloff Anlagen von drei J und dem C beobachtet.
Die Nager sind gegenwärtig die formenreichste Ordnung der Säugetiere. Man zählt mehr als 900 lebende Arten, von denen ein großer Teil Südamerika bewohnt. Nordamerika und Eurasien haben viele Gattungen miteinander gemein. In Afrika finden sich neben einer Anzahl eigentümlicher Typen auch Vertreter europäischer und asiatischer Familien und Gattungen.
Trotz ihrer Kleinheit und Zerbrechlichkeit ist die Zahl der fossilen Nagerreste nicht unbeträchtlich. In Europa kennt man ziemlich viele Arten und Gattungen aus dem Obereocän und Oligocän, namentlich aus den Phosphoriten von Quercy und aus miocänen Ablagerungen im Dep. Allier, von Mainz und Ulm, sowie von Sansan (Dép. Gers), La Grive St. Alban (Isère), von Steinheim und aus dem Ries bei Nördlingen. In Nordamerika sind Nagerreste etwas seltener und fast nur im Bridger-Eocän, im White River Oligocän, im John Day und Loup Fork-Miocän vertreten, dagegen hat Südamerika namentlich im Santacruzeno von Patagonien und im jüngeren Tertiär und im Pleistocän von Argentinien eine reiche Nagerfauna aufzuweisen. Reich an Nagerresten sind auch manche pleistocänen Höhlenablagerungen in Europa sowie in Nord- und Südamerika.
Die Systematik der Nager bietet erhebliche Schwierigkeiten, denn so gut auch die beiden Unterordnungen der Duplicidentata und Simplicidentata gegeneinander abgegrenzt sind, so schwierig ist die Einreihung gewisser Formen in die bisher üblichen drei Hauptgruppen der Sciuromorpha, Myomorpha und Hystricomorpha. Die Aufstellung einer vierten Abteilung, der Protogomorpha, ist nur ein Notbehelf, durch welchen ebenso wie durch die von Tullberg vorgenommene Gliederung in die beiden Tribus der Sciurognathi und Hystricognathi der Zusammenhang zwischen vielen fossilen Formen und ihren lebenden Verwandten verschleiert wird. Am zweckmäßigsten erscheint die von Weber gegebene Systematik, die auch hier mit Ergänzungen beibehalten wird.
1. Unterordnung. Simplicidentata.
Stets nur 11 sehr lange J. 21 meist 11 P, öfters 00 P. Schmelz der J fast stets gelb gefärbt und auf die Vorderseite beschränkt. Obere Zahnreihen näher beisammenstehend als die unteren. Gelenkgrube für den Unterkiefer schmal. Scaphoid und Lunatum meist verwachsen. Fibula nicht am Calcaneum artikulierend.
1. Familie. Aplodontoidea. Gill.
21 P. 33 M. Schädeldach eben. Masseter nicht durch das in der Regel enge Infraorbitalforamen gehend. Ohne Postorbitalfortsatz. Tibia und Fibula frei.
1. Unterfamilie. Aplodontiinae. Thomas.
Backenzähne in der Regel brachyodont. An Stelle der Höcker unregelmäßig verlaufende Kämme.
Sciurodon Schlosser. Phosphorite von Quercy.
Meniscomys Cope (Allomys Marsh). Untermiocän. John Day bed. Oregon.
Mylagaulodon Sinclair. Untermiocän. Montana.
Haplodon Rafin. hypselodont. Lebend und im Pleistocän von Nordamerika.
2. Unterfamilie. Ischyromyinae. Alston.
Backenzähne brachyodont. Eocän und Oligocän von Nordamerika.
Ischyromys Leidy. (Fig. 590.) Beide Höckerpaare der oberen M opponiert an den unteren alternierend. Oligocän. White Riverbed.
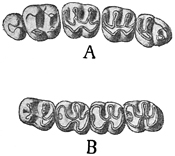
Fig. 590.
Ischyromys typus Leidy. Oligocän. White Riverbed. A obere, B untere Zahnreihe, 3/1 nat. Gr.
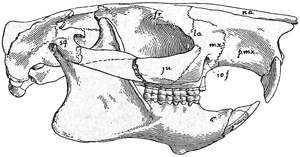
Fig. 591.
Paramys delicatus Leidy. Mitteleocän. Bridgerbed Wyoming. Schädel und Unterkiefer. 1/2 nat. Gr. (Nach Matthew.)
Mysops Leidy (Tillomys Marsh). Eocän. Bridgerbed.
Titanotheriomys Matthew. Oligocän. White Riverbed.
Paramys Leidy (Pseudotomus Cope). (Fig. 591.) Obere M trituberkulär, zweites Höckerpaar der unteren M den Hinterrand des Zahnes bildend, denen von Sciurus ähnlich. Zahlreiche Arten im Eocän von Nordamerika.
Plesiarctomys Bravard. Eocän. Débruge.
Sciuravus Marsh. Obere M vierhöckerig. Eocän von Nordamerika.
2. Familie. Sciuroidea.
21 P. 33 M. Schädel gewölbt. Infraorbitalkanal eng. Vorderer Ast des Masseter an der Vorderseite des Jochbogens angeheftet. Postorbitalfortsatz vorhanden. Tibia und Fibula frei.
Unterfamilie. Sciurinae.
Backenzähne brachyodont, bunodont oder lophodont. Letztes Höckerpaar den Hinterrand der unteren Backenzähne bildend. Obere M und P4 trituberkulär.
Die Sciuriden gehen auf Paramys zurück und sind fast über die ganze Erde verbreitet.
Plesiospermophilus Filhol. Phosphorite von Quercy.
Spermophilus Cuvier. Ziesel. Lebend auf der nördlichen Hemisphäre. Fossil im Pleistocän.
Prosciurus Matthew. White River Oligocän und John Day Miocän. Übergang von Paramys zu Sciurus.
Arctomys Gmelin. Murmeltier. Fossil im europäischen Pleistocän.
Cynomys Rafinesque. Nordamerika. Fossil vom Obermiocän an.
Sciurus Linn. Eichhörnchen. Fossil in Europa und Nordamerika im Miocän und Pleistocän.
Tamias Illiger. Lebend und im Pleistocän von Nordamerika.
Sciuropterus Cuvier. Flughörnchen. Lebend in Asien und im Norden von Europa und Nordamerika.
Pteromys Cuvier lophodont. Lebend in Südasien.
3. Familie. Castoroidea.
11 P. 3-23-2 M. Schädeldach eben, meist ohne Postorbitalfortsatz. Infraorbitalforamen eng. Backenzähne schmelzfaltig, ohne Höcker, mehr oder weniger hypselodont.
1. Unterfamilie. Castorinae. Biber.
Schädel niedrig. 33 M. Backenzähne mehr oder weniger hypselodont. Obere meist mit drei Außen- und einer Innenfalte, untere mit drei Innen- und einer Außenfalte. Falten senkrecht oder quergestellt zur Zahnreihe. Tibia und Fibula distal verwachsen. Lebend in Europa und Nordamerika, hier auch fossil vom Oligocän an, in Europa erst vom Miocän an.
Steneofiber Geoffroy (Chalicomys, Chelodus Kaup, Palaeocastor Leidy) (Fig. 592). Zahlreiche Arten im Untermiocän von Nordamerika, häufig im europäischen Miocän, selten im Pliocän. Die amerikanischen Arten haben einen breiteren Schädel.
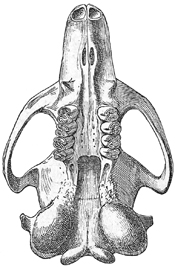
Fig. 592.
Steneofiber Eseri H. v. Meyer (= St. Viciacensis Gervais). Unt. Miocän. St. Gérand-le-Puy. Allier. Schädel von unten. 3/4 nat. Gr. (Nach Filhol.)
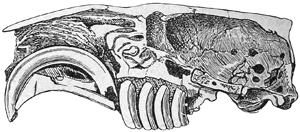
Fig. 593.
Vertikallängsschnitt durch einen Biberschädel (Castor fiber Lin.), um die Einpflanzung des Schneidezahns und der Backenzähne zu zeigen. (Nach Flower.)
Castor Lin. Biber. (Fig. 593). Zähne stark hypselodont. Lebend in Europa und Nordamerika. Fossil in Europa im Pliocän und Pleistocän, in Nordamerika im Pleistocän.
Trogontherium Fischer. Älteres Pleistocän von Europa.
Castoroides Forster. Von Bärengröße. Pleistocän von Nordamerika.
Amblyrhiza Cope. Pleistocän der Insel Antigua.
Euhapsis Matthew und Eucastor Leidy (Sigmogomphius Merriam), Miocän von Nordamerika und Dipoides Jäger, im Pliocän von Europa, China und im Miocän von Nordamerika. Zeichnen sich durch geringe Faltenzahl aus.
Eutypomys Matthew hat zwei obere P. Backenzähne mit vielen kleinen Schmelzinseln. Oligocän White Riverbed.
2. Unterfamilie. Mylagaulinae.
Schädel stark verbreitert mit Postorbitalfortsatz. 33 Backenzähne hoch, mit zahlreichen, parallel zum Kiefer gerichteten Schmelzinseln. Extremitäten plump, zum Graben geeignet. Tibia und Fibula frei. Im Miocän und Unterpliocän von Nordamerika. Nach Riggs Nachkommen von Meniscomys.
Mylagaulus Cope, Mesogaulus Riggs, Ceratogaulus Matthew, Epigaulus Gidley.
4. Familie. Geomyoidea.
11 P. 33 M. Schädel meist mit engem Infraorbitalforamen, ohne Postorbitalfortsatz, mit großen Bullae osseae. Backenzähne meist hypselodont mit einer den Zahn halbierenden Falte. Tibia mit Fibula verwachsen. Nur in Nordamerika.
1. Unterfamilie. Protoptychinae.
Infraorbitalkanal weit. Zähne bewurzelt.
Protoptychus Scott. Obereocän Uintabed.
2. Unterfamilie. Geomyinae.
Infraorbitalforamen eng. Backenzähne wurzellos, mit Außen- und Innenfalte oder nur mit einer Querfalte.
Entoptychus und Pleurolicus Cope. Untermiocän Nordamerika.
Geomys Raf. Mit nur je 22 M. Miocän und lebend in Nordamerika.
Thomomys Wied. Miocän, Pliocän, Pleistocän und lebend in Nordamerika.
5. Familie. Anomaluroidea.
11 P. 33 M Backenzähne brachyodont, bunodont oder lophodont. Infraorbitalforamen weit. Tibia und Fibula frei. Die lebenden, auf Afrika beschränkten Familien der Anomalurinae und Pedetinae sind fossil nicht bekannt. Die hier angeschlossenen fossilen Formen haben vielleicht nur zufällige Ähnlichkeit mit den Anomalurinen.
1. Unterfamilie. Pseudosciurinae.
Backenzähne bunodont. Höcker paarig gruppiert. D kleiner als P.
Sciuroides F. Major. Höckerpaare aller Backenzähne jochartig miteinander verbunden. Obere M mit undeutlichen Zwischenhöckern. Eocän und Oligocän. Schweizer und Schwäbische Bohnerze und Phosphorite von Quercy.
Pseudosciurus Hensel. (Fig. 594.) Höcker isoliert. Obere M mit deutlichen Zwischenhöckern. Bohnerze von Württemberg.
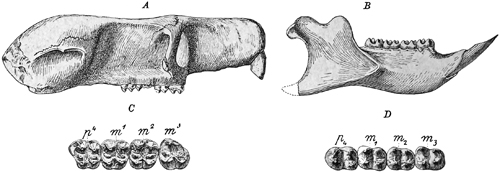
Fig. 594.
Pseudosciurus suevicus Hensel. Oligocän (Bohnerz). Eselsberg bei Ulm. A Schädel, B Unterkiefer von außen, nat. Gr., C obere, D untere Backzähne vergr.
2. Unterfamilie. Theridomyinae.
Backenzähne lophodont. Höcker nur bei den ältesten Arten kenntlich, später Kaufläche eben, mit 3 bis 4 Außenfalten und einer Innenfalte an den oberen und 3 bis 4 Innenfalten und einer oder 2 Außenfalten an den unteren Zähnen. D meist komplizierter als P. Tibia und Fibula frei. Im Eocän, Oligocän und Untermiocän von Europa.
Diese Familie hat mit der vorigen den Ursprung gemein und ist der Anfang gewisser Hystricoidea — Capromyinae, Erethizontinae, Octodontinae, Chinchillinae und Echinomyinae —.
Theridomys Jourdan. (Fig. 595.) P stets größer als M. Eocän. Débruge, Vaucluse. Schwäbische und Schweizer Bohnerze. Oligocän. Phosphorite und Ronzon.
Trechomys Lartet. P meist viel kleiner als M. D einfach. Eocän. Paris. Phosphorite von Quercy.
Phiomys Osborn. Mittlerer Querkamm kurz. Oligocän. Ägypten.
Protechimys Schlosser. Falten schräg. Backenzähne durch Vereinigung von Außen- und Innenfalte gespalten. Zahnkronen etwas erhöht. Phosphorite von Quercy.
Archaeomys Laiz. et Parieu. Ähnlich. Zahnkronen ziemlich hoch. Oligocän. Dép. Allier.
Rhodanomys Depéret. Untermiocän von Savoien und Ulm.
? Cylindrodon Douglass. White River. Oligocän. Nordamerika.
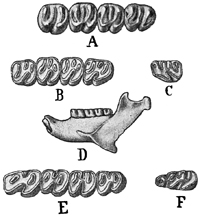
Fig. 595.
A Theridomys Vaillanti Gerv. Obereocän. Débruge. Obere P und M. 4/1 nat. Gr.
B Theridomys gregarius Schlosser. Oligocän. Phosphorite von Quercy. Obere P und M.
C oberer Milchzahn. 4/1 nat. Gr.
D Unterkiefer nat. Gr.
E untere P und M.
F unterer Milchzahn. 4/1 nat. Gr.
6. Familie. Myoxoidea. Siebenschläfer.
1-01-0 P. 33 M. Backenzähne stets brachyodont mit parallelen oder konvergierenden Schmelzleisten. Infraorbitalkanal weit und hoch gelegen. Tibia und Fibula verwachsen. Lebend im paläarktischen und äthiopischen Gebiet.
Von den mit vier Backenzähnen versehenen Gattungen haben fast alle schon im europäischen Tertiär Vertreter.
Myoxus Schreber. (Fig. 596 A.) Vielleicht schon im Eocän (Phosphorite, Pariser Gips?), sicher im Miocän.
Eliomys Wagner. (Fig. 596 B.) Im Miocän und Muscardinus Wagner. Fossil im Pleistocän.
Leithia Adams. Pleistocän von Malta.
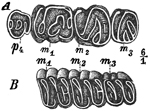
Fig. 596.
A Myoxus sansaniensis Lartet. Obermiocän. Ries. Obere Backenzähne. 6/1 nat. Gr.
B Eliomys hamadryas F. Major. Obermiocän. Steinheim. Untere Backenzähne. 6/1 nat. Gr.
7. Familie. Dipodoidea. Springmäuse.
11, 10 oder 00 P 33 M. Backenzähne brachyodont, meist bewurzelt, mit alternierenden Höckern. Infraorbitalkanal weit, gerundet. Fibula und Tibia verschmolzen. Hinterextremität verlängert, Metatarsalia öfters verschmolzen.
Die Springmäuse bewohnen gegenwärtig die Wüsten und Steppen der nördlichen Hemisphäre. Die fossilen Überreste gehören lebenden Gattungen und Arten an und sind nur aus dem europäischen Pleistocän bekannt.
Die Zapodinae haben fünf freie Metatarsalia. Sminthus Keys. Auch fossil in Europa.
Bei den Dipodinae sind die drei mittleren Metatarsalia stark verlängert und miteinander der ganzen Länge nach verwachsen.
Alactaga Cuvier. Dreizehiger Hinterfuß. Pleistocän von Europa.
Dipus Gmelin. Fünfzehiger Hinterfuß.
Sciuromys Schlosser. 11 P 33 M. Zähne ähnlich wie bei Alactaga. Phosphorite von Quercy. Systematische Stellung unsicher.
8. Familie. Myoidea. (Myomorpha.)
(? 11 P) 3-23-2 M. Infraorbitalloch weit. Jochbogen klein. Backenzähne brachyodont, bunodont oder lophodont oder prismatisch. Erster M in der Regel größer und komplizierter als M2 und M3. Unterkiefer mit hohem Kronfortsatz. Eckfortsatz am Unterrand der Alveole entspringend. Fibula mit der Tibia verwachsen.
Die Myoidea haben fast immer nur geringe Körpergröße und sind jetzt über die ganze Erde verbreitet.
1. Unterfamilie. Eomyinae.
11 P 33 M. Backenzähne brachyodont, mit je zwei opponierten Höckerpaaren, erhabenem Vorder- und Hinterrand und Kamm in Mitte des Zahnes. Oligocän von Europa und Nordamerika.
Diese durchwegs sehr kleinen Nager werden von Winge zu den Dipoidea und von Scott zu den Geomyidae gestellt. Die Zusammensetzung der Zähne wie bei Cricetodon macht es wahrscheinlich, daß sie wenigstens teilweise als primitive Murinae zu betrachten sind.
Eomys Schlosser. Phosphorite von Quercy.
Gymnoptychus Leidy. Oligocän. White Riverbed.
2. Unterfamilie. Cricetinae. Hamster.
33 Backenzähne, bunodont, bewurzelt, mit vier paarig angeordneten Höckern. M1 mit 5 oder 6 Höckern.
Die Cricetinae bewohnen die nördliche Halbkugel.
Cricetodon Lartet. (Fig. 597.) M1 fünfhöckerig. Eocän. Bohnerze. Oligocän. Phosphorite, Ronzon. Unter- und Obermiocän von Europa.
Eumys Leidy. Oligocän. White Riverbed.
Cricetus Pallas. M1 sechshöckerig. Lebend und fossil im Pleistocän. Europa. Pliocän von Roussillon.
3. Unterfamilie. Hesperomyinae.
33 M. Im Zahnbau ähnlich den Cricetinen. Lebend in Nord- und Südamerika.
Hesperomys Waterhouse. (Fig. 598.) Lebend im Pliocän und Pleistocän von Südamerika.
Neotoma Say. Lebend und im Pleistocän von Nordamerika.
Paciculus Cope und Peromyscus Gloger. Im Untermiocän von Oregon.
Habrothrix, Oxymycterus, Colomys etc. Lebend und im Pleistocän von Südamerika.
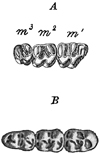
Fig. 597.
Cricetodon cadurcensis Schlosser. Phosphorit c. Mouillac, Tarn-et Garonne. A Obere Backzähne stark abgekaut 3/1 (nach Schlosser). B untere Backenzähne. 4/1 nat. Größe.
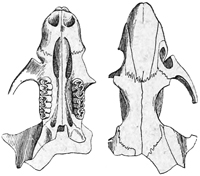
Fig. 598.
Hesperomys molitor Winge. Höhle von Escrivania. Brasilien. Schädel von unten und oben in nat. Gr. (Nach Winge.)
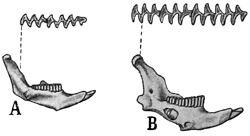
Fig. 599.
A Arvicola arvalis Blasius.
B Cuniculus torquatus Pallas sp. Pleistocän. Velburg. Unterkiefer von innen und untere Molaren von oben vergr.
4. Unterfamilie. Murinae. Ratten und Mäuse.
33 Backenzähne brachyodont bewurzelt, obere mit 3, untere mit 2 Höckerreihen. Die Murinen sind altweltlich, haben sich jedoch über die ganze Erde verbreitet. Fossile Reste finden sich spärlich im europäischen Pliocän und Pleistocän. Auch aus Asien und Australien kennt man fossile Reste; sie gehören den Gattungen Mus, Gerbillus und Nesokia an.
Mus Linné. Zuerst fossil im Pliocän von Roussillon, Acomys Geoffroy. Fossil im Unterpliocän von Pikermi. Im Miocän von La Grive St. Alban ein Nesomyine — Anomalomys Gaillard.
5. Unterfamilie. Arvicolinae. Wühlmäuse.
33 Backenzähne prismatisch, aus zwei Längsreihen von 3 bis 6 kantigen mehr oder weniger deutlichen Prismen bestehend. Die Wühlmäuse bewohnen Europa und die nördlichen Teile von Asien und Nordamerika.
Arvicola Lacepède (Hypudaeus Illiger) (Fig. 599 A). J hinter dem letzten M endend. Zahlreiche rezente Arten im Pleistocän von Europa.
Cuniculus Wagner (Halsbandlemming). (Fig. 599 B). J unter dem letzten M endend. Lebend im nördlichen Europa. Fossil im Pleistocän.
Myodes Pallas (Lemmus Linck) (Fig. 599). Vorkommen wie bei vorigen.
Microtus Schrank und Fiber Cuvier. Lebend und im Pleistocän von Nordamerika. Anaptogonia, Sycium Cope. Pleistocän von Nordamerika. Mimomys F. Major. Zähne bewurzelt, ziemlich hoch. Pliocän von Norwich. Ruscinomys Depéret. Pliocän von Roussillon. Lophiomys Depéret ebenda, von unsicherer Stellung.
6. Unterfamilie. Spalacinae.
Schädel und Zahnbau den Dipodinen ähnlich.
Siphneus Brants. Lebend und fossil im nördlichen Asien. Rhizomys Gray. Lebend in Asien, fossil im Pliocän der Siwalik.
Spalax Güldst. Fossil im Pliocän und Pleistocän von Ungarn.
9. Familie. Hystricoidea. (Hystricomorpha.)
Processus angularis von der Seitenwand der Alveole des Unterkiefers ausgehend. Kronfortsatz niedrig, Kiefer nur vor- und rückwärts beweglich. Schädel flach, ohne Postorbitalfortsatz mit sehr weitem Infraorbitalkanal. 1.0.1.3.1.0.1.3. Backenzähne schmelzfaltig, meist prismatisch-hypselodont, selten brachyodont. Fibula frei.
Die Hystricoidea erscheinen zuerst als Hystricinae, Theridomyinae und Issiodoromyinae in Europa. Die Hystricinae verbreiten sich später über die östliche Halbkugel, die beiden anderen Unterfamilien wandern nach Südamerika aus und entwickeln sich dort zu Erethizontinae, Capromyinae, Chinchillinae, Octodontinae und Caviinae. Die Ctenodactylinae und Bathyerginae sind auf Afrika beschränkt und bis jetzt nicht fossil vertreten. Vielleicht Nachkommen von Cylindrodon.
1. Unterfamilie. Hystricinae. Altweltliche Stachelschweine.
Backenzähne bewurzelt, mäßig hypselodont. Kaufläche mit Schmelzfalten und Inseln.
Hystrix Lin. Fossil in Europa vom Oligocän bis in das Pleistocän. Im Pliocän und Pleistocän auch in Indien. Eine große verwandte Gattung schon im Eocän von Quercy »Hystrix« Lamandini Filhol.
2. Unterfamilie. Erethizontinae. Neuweltliche Stachelschweine.
Backenzähne brachyodont. Nachkommen von Trechomys?
Eosteiromys Amegh. Colpodon-Schichten von Patagonien; Steiromys Ameghino im Miocän von Santa Cruz.
Coendu Lacép. Lebend in Südamerika. Fossil in Knochenhöhlen Brasiliens.
Erethizon Em. Lebend und im Pleistocän von Nordamerika.
Sciamys und Acaremys Amegh. im Miocän von Santa Cruz und Protacaremys Amegh. in den Colpodonschichten von Patagonien sind kleinere Formen.
3. Unterfamilie. Capromyinae.
Zähne biberähnlich. Meist mittelgroße Formen. Nachkommen von Theridomys?
Myocastor Herr. (Myopotamus Geoffr.). Lebend Südamerika. Fossil vom Pliocän.
Morenia, Discolomys etc. Ameghino. Pliocän von Argentinien.
Neoreomys Ameghino, im Santacruzeno von Patagonien. Hier auch die Gattungen Scleromys und Lomomys Ameghino.
4. Unterfamilie. Octodontinae.
Die Gruppe der Ctenodontinae beginnt im Pliocän von Argentinien — Dicoelophorus, Plataeomys Ameghino. Ctenomys Blv. erst im Pleistocän von Südamerika. Die Gruppe der Loncherinae hat schon Vertreter im älteren Miocän von Patagonien — Colpodon-Schichten — aufzuweisen — Protadelphomys, Prospaniomys. Im Miocän von Santa Cruz Stichomys, Adelphomys, Spaniomys etc. Ameghino. Loncheres Illiger, Echinomys, Mesomys Desm. fossil in brasilianischen Höhlen.
5. Unterfamilie. Chinchillinae.
Meist nur eine, quer über die ganze Kaufläche verlaufende Falte. Diese Familie geht wohl auf die europäische Gattung Archaeomys zurück.
Prolagostomus, Pliolagostomus Ameghino in Santacruzeno. Vorläufer von Lagostomus Brooks, fossil vom Pliocän an und lebend.
Perimys Ameghino. (Fig. 600.) Colpodon-Schichten und Santacruzeno von Patagonien.
Scotaeumys, Sphodromys Ameghino.
Megamys Laurillard. Der größte fossile Nager. Pliocän und Pleistocän von Argentinien.
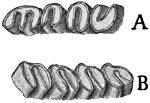
Fig. 600.
Perimys incurvatus Ameghino. Miocän. Colpodon-Schichten. Patagonien. A obere, B untere Backenzähne nat. Gr.
6. Unterfamilie. Caviinae.
Backenzähne aus zwei, selten mehr kantigen Prismen bestehend.
Cephalomys Ameghino. Pyrotherium-Schichten von Patagonien.
Eocardia, Procardia, Schistomys, Phanomys Ameghino im Santacruzeno. Vorläufer von Cavia.
Cavia, Pallas. Dolichotis Desmarest, Kerodon Cuv. lebend und im Pleistocän von Südamerika. Für die pliocänen Vorläufer hat Ameghino zahlreiche Gattungen aufgestellt — Cardiodon, Anchimys etc.
Hydrochoerus Brisson. (Fig. 589.) Der größte lebende Nager. Fossil im Pleistocän von Süd- und Nordamerika.
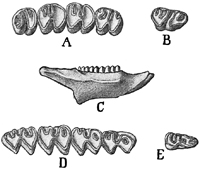
Fig. 601.
Nesokerodon Quercyi Schlosser. Oligocän. Phosphorite von Quercy. A obere P und M, B oberer Milchzahn 4/1 nat. Gr. C Unterkiefer nat. Gr. D untere P und M. E unterer Milchzahn 4/1 nat. Gr.
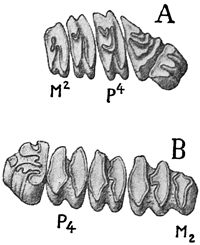
Fig. 602.
Prolagus oeningensis König. Obermiocän. La Grive St. Alban. A obere, B untere Backenzähne. 3/1 nat. Gr. (Nach Forsyth Major.)
7. Unterfamilie. Issiodoromyinae.
Diese auf das europäische Oligocän beschränkte Familie vermittelt im Zahn- und Kieferbau den Übergang von den Theridomyinae zu den Caviinae. D kompliziert und funktionierend, P und M bewurzelt.
Nesokerodon Schlosser. (Fig. 601.) Zähne frisch noch mit Außen- und Innenfalten und mit Schmelzinseln. Phosphorite von Quercy.
Issiodoromys Croïzet, Oligocän. Dép. Allier.
2. Unterordnung. Duplicidentata. (Lagomorpha).
21 J, allseitig von Schmelz umgeben, zweiter oberer J — J3 — klein und hinter den vorderen — J2 — gestellt. P 32. M 3-23-2. Backenzähne hypselodont, wurzellos, aus je zwei, selten drei kantigen Prismen bestehend. Abstand der beiden oberen Zahnreihen größer als der beiden unteren. Gelenkgrube für den Unterkiefer breit. Carpalia frei. Fibula mit Calcaneum articulierend.
Diese meist Lagomorpha genannte Gruppe unterscheidet sich von den übrigen Nagern durch den Besitz von zwei oberen Incisiven. Auch sind diese Zähne allseitig mit Schmelz bekleidet, der jedoch hinten und an den Seiten dünner ist als vorne. Der größere der beiden oberen J ist mit einer Längsfurche versehen. Die Backenzähne sind wurzellos, unten offen, und die oberen im Querschnitt merklich breiter als lang. Sie bestehen aus Pfeilern, die von vorne nach hinten zusammengedrückt erscheinen und durch Zement miteinander verkittet sind. Die Einbuchtungen zwischen den Pfeilern haben an den unteren Zähnen gleiche Tiefe, an den oberen sind die an der Außenseite viel seichter als die an der Innenseite. Der vorderste obere P und der letzte untere M bestehen manchmal nur aus je einem Pfeiler, zuweilen hat der letzte untere M jedoch drei Pfeiler. Der vorderste untere und die beiden vordersten oberen P zeigen häufig einen von den M stark abweichenden Bau. Manchmal kann man auf der Krone noch Schmelzinseln und Kämme unterscheiden, als Andeutung des ursprünglich bunodonten und lophodonten Zahnbaus. Den P gehen niedrige, bewurzelte D voraus, welche ausfallen, sobald der letzte M in Funktion tritt. Im Milchgebiß sind oben drei JD vorhanden.
1. Familie. Leporidae. Hasen.
32 P. 33 M. P2 stiftförmig, die übrigen P den M gleichend. Schädel seitlich zusammengedrückt, Clavicula unvollständig. Hinterbeine und Ohren lang, Schwanz kurz.
Palaeolagus Leidy. Oligocän White River, Untermiocän John Day. Oregon.
Panolax Cope. Miocän Nordamerika.
Lepus Linn. In Nordamerika vom John Day Miocän bis in die Gegenwart, in Europa und Asien vom Unterpliocän bis in die Gegenwart.
2. Familie. Ochotonidae (Lagomyidae). Pfeifhasen.
3-22 P 2-32-3 M. Nur P4 = M. Schädel niedergedrückt. Clavicula vollständig. Hinterbeine und Ohren kurz. Schwanz fehlt.
In Europa vom Oberoligocän bis in die Gegenwart. Lebend im östlichen Teil von Europa, in den Gebirgen Asiens und Nordamerikas — hier auch fossil.
Prolagus Pomel (Myolagus Hensel) (Fig. 602). 3.2.2.2. Miocän bis Pleistocän von Europa.
Titanomys v. Meyer. 3.2.2.2-3. Oberoligocän und Miocän. T. visenoviensis v. Meyer, Fontannesi Depéret.
Lagopsis Schlosser. 3.2.2.3. Miocän.
Ochotona Linck (Lagomys Cuv.). Lebend auf der nördlichen Hemisphäre, fossil im Pliocän und Pleistocän von Europa.
Zeitliche Verbreitung der Nager.
Die ältesten Nager sind bis jetzt die aus dem Eocän von Nordamerika — Wasatch und Bridgerbed — und zwar sind es Paramyinae und Ischyromyinae. Zu ihnen gesellt sich im Obereocän, Uintabed, der Vorläufer der noch jetzt lebenden aber stets auf Nordamerika beschränkten Geomyinae — Protoptychus. Die Paramyinae werden in Nordamerika zu Sciurinae und Haplodontinae, von welchen wenigstens die ersteren sich bald auch über Europa verbreiten. Die Ischyromyinae erlöschen im White-River-Oligocän, wo auch bereits Leporidae, Castorinae und Cricetinae erscheinen. Die Castorinae entsenden frühzeitig auch Repräsentanten nach Europa, während die letztgenannte Familie offenbar altweltlichen Ursprungs ist und die Leporidae erst im Pliocän über Asien nach Europa gelangen. Die gegenwärtige Nagerfauna Nordamerikas ist im wesentlichen die nämliche wie die von Eurasien. Zu den Nachkommen der schon im Tertiär einheimischen Familien gesellten sich im Pleistocän die aus Europa stammenden Arvicolinae und Ochotonidae und die aus Südamerika eingewanderten Erethizontinae.
In Europa entfalten die Nager schon im Eocän und noch mehr im älteren Oligocän einen nicht unbeträchtlichen Formenreichtum. Außer den von Nordamerika gekommenen Sciurinae finden wir die Pseudosciurinae, die mit ihnen ursprünglich verwandten Theridomyinae, ferner Hystricinae und Myoxinae, sowie Cricetinae, welch letztere Familie im Oligocän Vertreter nach Nordamerika ausschickt, aus welchen die Hesperomyinae entstehen, wofür dann Castorinae in Europa einwandern. Fast schon etwas früher treffen wir in Europa Ochotonidae, deren Herkunft bis jetzt freilich noch in Dunkel gehüllt ist. Alle genannten Familien erhalten sich hier mit Ausnahme der bald erlöschenden Pseudosciurinae und der Theridomyinae während des ganzen Tertiärs und ergreifen zum Teil auch Besitz von Asien und Afrika. Die im allgemeinen ziemlich spärlich vertretenen Cricetinae entwickeln sich in Europa zu Murinae und Arvicolinae von welchen die ersteren sich allmählich über die ganze Erde verbreiten, während die letzteren hauptsächlich die nördlichen Teile von Nordamerika und Eurasien besiedeln. Hervorragende stammesgeschichtliche Bedeutung kommt den Theridomyinae zu. Vom Untermiocän an verschwinden sie zwar sämtlich aus Europa, sie erreichen aber bald darauf in Südamerika ihre Blüteperiode, denn sie erweisen sich nicht nur als die Stammeltern der Erethizontinae und Capromyinae, sondern auch der Octodontinae und Chinchillinae und durch die ebenfalls aus Theridomyinae entstandenen Issiodoromyinae sogar als die Ahnen der Caviinae. In Patagonien erscheint zuerst in den Pyrotheriumschichten ein Caviine, in den Colpodonschichten treten auch Erethizontinae und Octodontinae auf, und im Obermiocän von Santa Cruz entwickeln sich aus ihnen zahlreiche Gattungen und Arten, so daß diese Nagerfauna an Mannigfaltigkeit nur wenig zurücksteht hinter jener, welche wir in Südamerika im jüngsten Tertiär, im Pleistocän und in der Gegenwart antreffen. Die heutige Nagerfauna Südamerikas unterscheidet sich von jener des Santacruzeno eigentlich bloß durch die Anwesenheit von Leporidae und Hesperomyinae. Im Gegensatz zu den Hystricoidea, welche nur aus Europa gekommen sein können, sind diese beiden Familien von Nordamerika her eingewandert, wofür aber Erethizontinae von Südamerika nach Nordamerika vordrangen.
7. Ordnung. Ungulata. Huftiere.[139]
Die Huftiere zeichnen sich dadurch aus, daß ihr Gebiß für pflanzliche, selten gemischte Kost eingerichtet ist und die Extremitäten ausschließlich zur Bewegung auf dem Boden dienen. Die Zehenendglieder sind daher meist breit, abgeplattet, seltener kantig oder gekrümmt und mit hornigen Hufen umgeben.
Der primitive Huftierfuß war nach Cope fünfzehig, plantigrad, dem der Raubtiere ähnlich, die ganze Extremität kurz und gedrungen. Die Entwicklung von Hand und Fuß vollzog sich in verschiedenen Etappen und zwar:
1. durch Umwandlung des plantigraden Fußes mittels steilerer Stellung der Metapodien in den semiplantigraden Fuß, wobei die Endphalangen und die hinten durch ein Muskelpolster gestützten und verstärkten Metapodien den Körper tragen. Aus dem semiplantigraden Fuß entwickelt sich einerseits der unguligrade Fuß, in welchem die Metapodien sich ganz vom Boden entfernen und fast senkrecht aufrichten, so daß nur die Endphalangen die Körperlast tragen, und anderseits der bei den Huftieren ziemlich seltene digitigrade Fuß — Cameliden — bei dem zwar die Metapodien sich frei erheben, die durch ein Muskelpolster verstärkten Phalangen aber sämtlich noch auf dem Boden ruhen,
2. durch Streckung der Metapodien,
3. durch Ausdehnung und Verstärkung einzelner Metapodien und Zehen auf Kosten der benachbarten, womit gleichzeitig Reduktion oder Schwund der seitlichen Metapodien und manchmal auch von Carpalien und Tarsalien verbunden ist,
4. durch seitliche Verschiebung und festere Verkeilung der ursprünglich in parallele Reihen — serial angeordneten Carpalien, Tarsalien und Metapodien,
5. durch Verschmelzung von ursprünglich getrennten Carpalien, Tarsalien und Metapodien.
Neben dem Bau der Extremitäten liefert das Gebiß die besten Anhaltspunkte für die Systematik der Huftiere. Die primitiven Ungulaten hatten ein vollständiges Gebiß mit 3.1.4.3.3.1.4.3., in welchem die Zähne, mit Ausnahme etwa der vorderen P, dicht aneinander schlossen. Durch Verlängerung der Kiefer bildeten sich größere Lücken zwischen den C und den J sowie zwischen den P. Die Schneidezähne sind stets einwurzelig und ursprünglich wie bei den Fleischfressern konisch, werden aber durch Differenzierung meißel- oder schaufelförmig, zuweilen sogar stoßzahnartig. Ihre Zahl kann Reduktion erfahren, ja es kann sogar vollständiger Verlust der J, wenigstens der oberen, stattfinden. Die Eckzähne, welche ursprünglich den C der Fleischfresser ähnlich waren, werden entweder zu kantigen Hauern, oder sie verkümmern oder es gehen zwar die oberen vollständig verloren, die unteren hingegen nehmen die Gestalt und Funktion eines vierten J an — »Ruminantia«. Die oberen Molaren bleiben nur selten auf der trituberkulären Stufe stehen und besitzen auch hier schon zwei Zwischenhöcker. Aus dem hinteren — Metaconulus — oder auch aus einem Basalhöcker entwickelt sich ein zweiter großer Innenhöcker — Hypocon. Verbinden sich die Höcker untereinander durch Joche oder Halbmonde, so werden die ursprünglich bunodonten Zähne lophodont oder selenodont. Weitere Differenzierungen ergeben sich aus der Verstärkung der Basis durch Basalwülstchen oder Pfeiler, durch Fältelung des Schmelzes, durch Entwicklung von Zement etc. Die unteren Molaren lassen sich insgesamt vom Tuberkulär-sektorial-Zahn ableiten, aus einem Zahn mit hohem dreispitzigem Trigonid und einem niedrigen, wohl ebenfalls dreispitzigen Talonid. Durch Verlust der Vorderspitze — Paraconid — und Erhöhung und Vergrößerung des Talonids entstehen vierhöckerige Zähne, die sich von den oberen hauptsächlich durch geringere Breite unterscheiden und wie jene lophodont oder selenodont werden können. Der letzte untere M besitzt häufig einen unpaaren großen Hinterhöcker oder ein bogenförmiges Joch. Die Prämolaren bleiben bei allen primitiven Ungulaten einfacher als die Molaren. Homoedontie wird nur bei vorgeschritteneren Formen erreicht. Reduktion der Backenzähne beginnt stets beim vordersten P und erstreckt sich höchstens auf zwei oder drei P.
Ursprünglich waren die Backenzähne der Huftiere niedrig — brachyodont — und die unteren zwei-, die oberen dreiwurzelig. Durch Teilung der beiden Wurzeln der unteren und der breiten Innenwurzel der oberen M entstehen vierwurzelige Zähne. Häufig erfolgt bei reinen Pflanzenfressern Erhöhung der Zahnkrone und schließlich werden ihre Backenzähne hypselodont oder sogar prismatische Säulenzähne, die lange Zeit von unten in dem Maße nachwachsen, als sie oben durch Abkauung erniedrigt werden, und erst im späten Alter Wurzeln ansetzen.
Das Milchgebiß besteht normal aus Schneide-, Eck- und Backenzähnen. Die JD und CD unterscheiden sich nur durch ihre Schwachheit von den J und C, dagegen bieten die PD mancherlei charakteristische und systematisch wichtige Eigentümlichkeiten. Ihre normale Zahl 4 kann auf 3 herabsinken, aber umgekehrt auch unverändert bleiben bei Anwesenheit von nur 3 P. Der hinterste D hat stets die Zusammensetzung eines M, im Unterkiefer der Artiodactylen besitzt D4 sogar ein drittes allerdings kleines Höckerpaar, während bei den Perissodactylen der untere D3 öfters etwas komplizierter ist als die M.
Neben dem Gebiß und den Extremitäten liefert auch der Schädel wichtige systematische Anhaltspunkte. Bei den primitivsten Huftieren ist die Hirnhöhle sehr klein, die Hemisphären des Großhirns sind schwach gewunden und lassen das Kleinhirn unbedeckt. Bei den vorgeschritteneren Formen nimmt der Umfang des Großhirns und die Zahl seiner Windungen beträchtlich zu. Der Schädel selbst läßt bei den ältesten Vertretern der einzelnen Huftiergruppen kaum wesentliche Unterschiede erkennen. Er ist niedrig, hat ein flaches Dach und auf dem schmalen Cranium einen kräftigen Scheitelkamm, bei fortschreitender Entwicklung treten jedoch mancherlei Spezialisierungen ein. So können sich die Stirnbeine mit Lufthöhlen füllen oder es sprossen aus ihnen Geweihe oder Stirnzapfen hervor — Artiodactyla. Die in der Regel horizontale Schädelachse erleidet in diesem Falle größere oder geringere Knickung. Auch die Größe und Ausbildung der Nasenbeine und der Augenhöhle verleihen dem Schädel ein charakteristisches Aussehen, das zuweilen noch durch knöcherne Auswüchse auf der Nase verstärkt wird.
Die Huftiere sind gegenwärtig in allen Weltteilen mit Ausnahme von Australien verbreitet. Im Tertiär spielten sie eine kaum minder wichtige Rolle als jetzt.
Als echte Huftiere können nur jene bezeichnet werden, welche von bunodonten Formen abstammen oder doch wenigstens von solchen, welche normale C besaßen und außerdem starke Spezialisierungen der Extremitäten aufweisen. In dieser Fassung gliedern sie sich in 5 Unterordnungen: Condylarthra, Litopterna, Perissodactyla, Artiodactyla und Amblypoda. Bei den letzten ist allerdings der Zusammenhang mit bunodonten Formen etwas zweifelhaft.
1. Unterordnung. Condylarthra. Cope.[140]
Ausgestorbene plantigrade Huftiere mit fünfzehigen Extremitäten. Astragalus mit verlängertem Hals und konvexer distaler Gelenkfläche, meist mit Foramen. Carpalia in geradlinige Reihen angeordnet. Gebiß vollständig. 3.1.4.3.3.1.4.3. M bunodont. Humerus mit Foramen entepicondyloideum. Femur mit drittem Trochanter.
Die Condylarthren sind mit Ausnahme von einigen spärlichen Resten aus dem ältesten europäischen Eocän auf das älteste Tertiär des westlichen Nordamerika — Puerco-, Torrejon- und Wasatchbed — beschränkt und erweisen sich als die primitivsten Huftiere, aus welchen teils die Perissodactylen, teils die Artiodactylen und vielleicht auch die südamerikanischen Litopterna hervorgegangen sind. Sie teilen im Schädel- und Skelettbau sowie im Gebiß mancherlei Merkmale mit den Creodontia und haben wohl mit ihnen einen gemeinsamen Ursprung.
Der niedrige langgestreckte Schädel ist wenig differenziert und vereinigt Merkmale der Creodontia und der ursprünglichen Paar- und Unpaarhufer. Die Orbita ist hinten weit geöffnet, die Profillinie des Schädels fast horizontal, das Cranium mit einer Sagittalcrista versehen, das Gehirn klein und das Kleinhirn hinter den glatten Hemisphären des Großhirns gelegen. Der Processus postglenoideus ist wohl entwickelt, das Gebiß vollständig. Die J und C stimmen mit jenen der Creodontia und der primitiven Paar- und Unpaarhufer überein. Die P sind viel einfacher als die brachyodonten, mehrwurzeligen, trituberkulären oder vierhöckerigen M.
Der Zahnwechsel ist vollständig, D4 gleicht dem M1. Die oberen M haben zwei Außen-, meist einen Innen- und zwei Zwischenhöcker, die unteren M vier Haupthöcker und ein oder zwei Nebenhöcker.
Die plantigraden oder semidigitigraden Extremitäten haben vorne und hinten fünf Zehen, wovon die drei inneren stärker entwickelt sind als die beiden äußeren. Ein Schlüsselbein fehlt, der Humerus besitzt wohl immer ein Foramen entepicondyloideum und das Femur einen dritten Trochanter. Radius und Ulna sowie Tibia und Fibula bleiben getrennt. Die Fibula endet wie bei den Carnivoren frei. Die Carpalia sind beinahe serial angeordnet, auch dürfte öfters noch ein Centrale vorhanden sein. Der Tarsus stimmt im wesentlichen mit dem der Creodontia überein. Die gewölbte Endfläche des Astragalus greift tief in das Naviculare ein und berührt nur seitlich das hohe Cuboid. Die Trochlea besitzt häufig ein Foramen für den Flexor digitorum. Die Endphalangen sind distal abgeplattet, oder wie bei den Creodontia zugespitzt.
Im äußeren Habitus waren die Condylarthra omnivoren Raubtieren ähnlicher als Huftieren. Die Beschaffenheit von Hand und Fuß gestattete keine sehr rasche Bewegung. Das Gebiß läßt auf gemischte Kost schließen. Die größten Formen erreichten meist die Dimensionen eines Wolfs, die kleinsten die eines Fuchses oder Marders.
1. Familie. Mioclaenidae. Osb. und Earle.
Obere M gerundet, dreieckig, breiter als lang, ohne zweiten Innenhöcker, untere M vierhöckerig, höchstens mit kleinem unpaaren Vorderhöcker. P einfach. P3 und P4 mit Innenhöcker. Skelett nicht bekannt.
Untereocän, Puerco und Torrejonbed von Neu-Mexiko. Sämtliche Arten kaum von Fuchsgröße.
Die Halbmondform der Außenhöcker der unteren M spricht für Verwandtschaft mit den Paarhufern. Matthew stellt die Mioclaeniden als Hyopsodontiden zu den Insectivoren, was aber wegen der Länge der P nicht zulässig ist.
Mioclaenus Cope (Fig. 603.) Zahnreihe geschlossen. P relativ kurz. M. turgidus, acolytus Cope. Eine Art auch im Fort Unionbed, Montana.
Protoselene Matthew. P gestreckt (Mioclaenus) opisthaca Cope sp.
Oxyacodon Osborn und Earle. Kurze einfache P, untere M fünfhöckerig. O. (Anisonchus) agapetillus Cope sp.
? Coryphagus Douglass. Fort Unionbed. Montana.
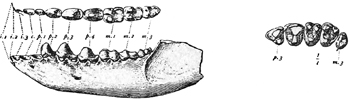
Fig. 603.
Mioclaenus lemuroides Matthew. Unterstes Eocän. Torrejonbed. Neu-Mexico. Unterkiefer und obere Zahnreihe. P3-M3 nat. Gr. (nach Matthew.)
2. Familie. Periptychidae. Cope.
Obere M trituberkulär oder quadrituberkulär. Obere und untere P sehr groß, meist einspitzig oder mit niedriger Innenspitze. Tibiale Gelenkfläche des breiten kurzen Astragalus gewölbt, in der Mitte vertieft. Naviculare seitlich mit Calcaneum und Cuboid verbunden.
Im Untereocän, Puerco und Torrejonbed von Neu-Mexiko. Nach Matthew schließen sich die Periptychiden im Extremitätenbau an die Amblypoden an. Die M unterscheiden sich jedoch wesentlich durch ihre Bunodontie.
Periptychus Cope. Mit stark differenzierten großen P und quadratischen oberen M. Etwa Größe von Schaf. P. rhabdodon Cope.
Ectoconus Cope. Ebenfalls groß mit vielhöckerigen M.
Haploconus, Hemithlaeus, Anisonchus (Zetodon) Cope. Conacodon Matthew. Alle klein, obere M viel breiter als lang, ohne Hypocon.
3. Familie. Phenacodontidae. Cope.
Obere M viereckig, breiter als lang mit je zwei Außen-, zwei Zwischen- und zwei Innenhöckern. Untere M meist mit sechs Höckern. Vordere P einfach, P3 mit Nebenspitzen. P4 trituberkulär mit Nebenspitzen, P4 fast wie M, nur schmäler. Astragalus mit ausgefurchter Trochlea. Fibula nur mit Astragalus, Naviculare mit Calcaneum und Cuboid artikulierend. Schwanz lang.
Die Phenacodontiden unterscheiden sich von den Periptychiden durch die kleineren P, durch den höheren, fester gefügten Tarsus und durch den längeren Astragalushals. P1 und P2 einfach, P3 mit Nebenspitze, P4 M-artig, aber schmäler. P4 trituberkulär.
Phenacodus Cope. Von zwei Arten dieser Gattung kennt man das ganze Skelett. Die größere, P. primaevus Cope, hatte beinahe die Größe von Tapir, die kleinere, Wortmani Cope, die einer Dogge. Untereocän. Wasatchbed.
Tetraclaenodon Scott (Protogonia Cope, Euprotogonia Matthew). (Fig. 604.) M Hyracotheriumähnlich, P sehr einfach. Zierliche Extremitäten. Untereocän. Torrejonbed. Neu-Mexiko und Montana.
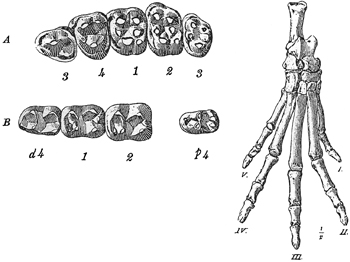
Fig. 604.
Tetraclaenodon puercensis Cope sp. A obere Backenzähne, B untere Backenzähne (D4 M1. 2, P4) nat. Gr. (Nach Osborn.) C Hinterfuß 1/2 nat. Gr. (Nach Matthew.)
Protogonodon Scott (Mioclaenus pentacus Cope) sehr groß, mit fünfhöckerigen M. Ist vielleicht der Vorläufer gewisser Artiodactylen (Achaenodon). Untereocän. Puercobed. Neu-Mexiko.
4. Familie. Meniscotheriidae.
Zahnreihe fest geschlossen. Obere M mit W-förmiger Außenwand, zwei gebogenen Zwischenhöckern und zwei ungleichen konischen Innenhöckern. Hintere P trituberkulär. Untere M und P4 mit zwei ⋁förmigen Außenmonden, P1-3 einspitzig. Astragalus stark verlängert und mit konvexem Naviculargelenk. Schwanz lang.
Die Meniscotheriiden sind die Ahnen der Chalicotheriiden.
Meniscotherium Cope. (Fig. 605.) (Hyracops Marsh?) aus dem unteren Eocän, Wasatchbed von Neu-Mexiko.
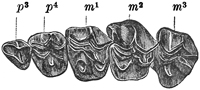
Fig. 605.
Meniscotherium terrae-rubrae Cope. Unt. Eocän (Wasatch-Stufe). Neu-Mexico. Die drei oberen Molaren u. zwei letzten Prämolaren in nat. Gr. (Nach Cope.)
5. Familie. Pleuraspidotheriidae. Lemoine.
Gebiß vollständig, J, C und P konisch. Vor und hinter P2 ein kurzes Diastema. Obere M mit zwei ⋁förmigen Innen- und zwei konischen Außenhöckern und einem kleinen vorderen Zwischenhöcker. P4 = M1. P3 mit einfachem Innenhöcker. Untere M, P3 und P4 mit vierpaarig opponierten konischen Höckern und einem unpaaren Vorderhöcker. Endphalangen der fünfzehigen Extremitäten schmal, distal, jederseits etwas verbreitert. Astragalus mit breiter Rolle und kurzem Hals.
Pleuraspidotherium Lemoine aus dem untersten Eocän von Reims hat möglicherweise phylogenetische Bedeutung für europäische Perissodactylen.
2. Unterordnung. Litopterna. Ameghino.[141]
Ausgestorbene, digitigrade Huftiere mit serial angeordneten Carpalien und Tarsalien, Hand und Fuß fünf- (?), drei- oder einzehig. Astragalus mit ausgefurchter Trochlea und konvexer distaler Gelenkfläche. Calcaneum mit Fibula artikulierend. Gebiß vollständig oder J reduziert. Zähne häufig in geschlossener Reihe. Backenzähne bunolophodont, selenolophodont, meist brachyodont. Humerus ohne Foramen entepicondyloideum. Endphalangen breit abgeplattet.
Die Litopterna sind eine auf Südamerika beschränkte Unterordnung der Huftiere, welche sich aus eingewanderten bunodonten nordamerikanischen Condylarthren entwickelt und dabei eine ähnliche Zahnform und Reduktion der Seitenzehen erlangt haben wie manche Perissodactylen.
Die Reduktion erstreckt sich teils nur auf die erste und fünfte Zehe, teils auch auf die zweite und vierte, welche hierbei entweder bloß dünner oder kürzer werden, oder auch bis auf kurze Stummel verschwinden können. Die Zähne werden nur ausnahmsweise hypselodont, bei den brachyodont bleibenden äußert sich der Fortschritt in der Teilung der Wurzeln, so daß jeder Zahn im Unterkiefer mit vier Wurzeln versehen ist. Mit den Notoungulaten haben sie zwar die Kürze des Metalophs der oberen M gemein, sie unterscheiden sich aber von ihnen, abgesehen von der Brachyodontie, schon dadurch, daß Trigonid und Talonid der unteren M gleiche Größe besitzen. Die oberen M bestehen aus zwei Außenhöckern, welche ein mit Para- und Mesostyl versehenes Ectoloph bilden, einem großen Protocon und zwei Zwischenhöckern und einem kleinen Hypocon. Der Protocon verbindet sich mit dem Protoconulus zu einem schrägen Protoloph, dagegen entsteht das kurze Metaloph aus dem Hypocon und aus dem erhabenen Hinterrand des Zahnes. Der Metaconulus vereinigt sich eher mit dem Protocon als mit dem Hypocon. Die unteren M bestehen aus zwei gleichgroßen Halbmonden, der für die Notoungulata so charakteristische Innenhöcker seitlich vom zweiten Halbmond tritt nur bei den Macraucheniidae auf. Die P sind einfacher als die M und werden nach vorne zu dem C ähnlich. Von den J kann der letzte verschwinden, und der zweite größer werden als J1. Alle Zähne sind meist brachyodont und schließen ziemlich dicht aneinander. Die einzelnen Knochen haben vielfache Ähnlichkeit mit jenen von Perissodactylen.
1. Familie. Bunolitopternidae.
Obere M aus je zwei mehr oder weniger isolierten Außenhöckern, zwei Zwischenhöckern und zwei ungleich großen Innenhöckern bestehend, öfters auch mit einer Anzahl von Nebenhöckern versehen. Untere M mit je zwei konischen Innen- und zwei ⋁förmigen Außenhöckern. P viel einfacher als die M.
Von den Condylarthren — Phenacodontiden — unterscheidet sich diese Familie hauptsächlich durch die Kleinheit der C und das Fehlen von Zahnlücken. Die Extremitäten waren möglicherweise noch fünfzehig.
Von den zahlreichen Gattungen, welche Ameghino vorwiegend auf isolierte M begründet hat, führen Lambdaconus, Oroacrodon etc. zu den Macraucheniiden, Notoprogonia, Lonchoconus, Proectocion etc. zu den Proterotheriiden, während andere Ricardolydekkeria, Josepholeidya, Argyrolambda etc. gänzlich erloschen sind. Nur von Didolodus (Fig. 606) ist die Zahnreihe ziemlich vollständig bekannt.
Alle Gattungen stammen aus dem Eocän — Notostylops-Schichten — und Oligocän — Astraponotus-Schichten — von Patagonien.
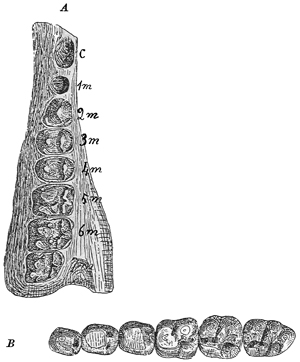
Fig. 606.
Didolodus crassicuspis Ameghino. Obereocän. Notostylops-Schichten. Patagonien. A obere, B untere Backenzähne nat. Gr. (Nach Ameghino.)
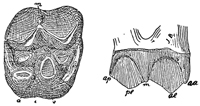
Fig. 607.
Protheosodon coniferus Ameghino. Untermiocän. Pyrotherium-Schichten. Oberer Molar. Nat. Größe. (Nach Ameghino.)
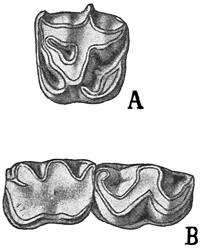
Fig. 608.
Cramauchenia insolita Ameghino. Miocän. Colpodon-Schichten. A linker oberer M, B rechter unterer P4 und M1. Nat. Gr.
2. Familie. Macraucheniidae. Gervais.
Schädel langgestreckt, schmal, mit kleinem Cranium und weit zurückliegender aufwärts gerichteter Nasenöffnung. Nasenbeine klein oder verkümmert. 3.1.4.3.3.1.4.3. Alle Zähne in geschlossener Reihe und allmählich ineinander übergehend. M lophodont. Untere M aus zwei Halbmonden und einem Innenhöcker bestehend, obere mit W-förmigem Ectoloph, großem Protocon, der mit Protoloph und Metaloph verbunden ist, und einem kleinen Hypocon. Vorder- und Hinterfuß dreizehig. Femur mit drittem Trochanter. Fibula am Calcaneum articulierend. Leitkiele nur auf der Hinterseite der Metapodien gut entwickelt.
Die Macraucheniiden beginnen im Eocän von Patagonien mit bunodonten-brachyodonten und erlöschen im Pleistocän von Argentinien mit selenolophodonten-hypselodonten Formen. Sie erreichen sehr ansehnliche Größe und zeichnen sich durch hohe, digitigrade Extremitäten, langen Hals und langgestreckten Schädel mit weit zurückliegenden Nasenlöchern aus. Die Zähne erinnern etwas an Anoplotherium. Vorder- und Hinterrand bilden einen hohen Kragen an der Innenseite der oberen M und P. Die Lebensweise scheint aquatil gewesen zu sein.
Coniopternium, Protheosodon Ameghino. (Fig. 607). Untermiocän. Pyrotherium-Schichten. Cramauchenia Amegh. (Fig. 608) und Theosodon Amegh. Miocän von Santa Cruz. Alle brachyodont. Orbita hinten offen, Nasenbeine kurz, frei vorragend. Vorder- und Hinterfuß dreizehig.
Oxyodontherium, Scalabinitherium Amegh. Pliocän. Argentinien. Zähne mäßig hypselodont.
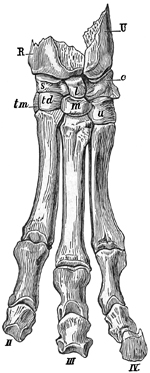
Fig. 609.
Macrauchenia patachonica Owen. A Vorderfuß (nach Gervais.)
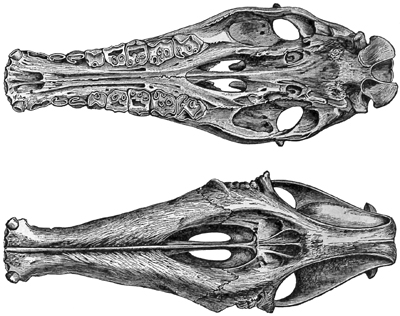
Fig. 610.
Macrauchenia patachonica Owen. Pleistocän (Pampas-Stufe) von Buenos Aires. Argentinien. Schädel von unten und oben, 1/6 nat. Gr. (nach Bravard.)
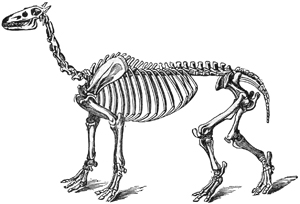
Fig. 611.
Macrauchenia patachonica Owen. Restauriertes Skelett. (Nach Burmeister.)
Macrauchenia Owen (Opisthorhinus Brav.) (Figuren 609, 610, 611.) Nasenbein rudimentär, großes Nasenloch inmitten des Schädels gelegen. Orbita hinten geschlossen. Pleistocän.
3. Familie. Proterotheriidae. Ameghino.
Schädel mäßig lang mit verschmälerter Schnauze. Nasenbeine lang, Orbita hinten geschlossen. 1.0.4.3.2.1.4.3. Alle Zähne brachyodont. Im Oberkiefer kurze Zahnlücke. Obere M mit W-förmigem Ectoloph, zwei ungleich großen Innen- und ein oder zwei Zwischenhöckern. Die beiden letzten P öfters M ähnlich. Untere M und P2-4 aus zwei Halbmonden bestehend und vierwurzelig. J2 vergrößert, C klein. Extremitäten drei- oder einzehig, nur die dritte kräftig entwickelt. Leitkiel über die ganze distale Fläche der Metapodien verlaufend.
Epitherium Ameghino. Zweite und vierte Zehe kurz und dünn. Älteres Pleistocän. Monte Hermoso. Argentinien. Eoauchenia Amegh. Ebenda. Zahnkronen hoch.
Diadiaphorus (Fig. 612) und Proterotherium Ameghino. Miocän und Pliocän. Dreizehig. An dem Innenende der Halbmonde der unteren M bei letzterer Gattung isolierte Pfeiler.
Brachytherium Ameghino. Pliocän von Argentinien.
Licaphrium Ameghino. Tetramerorhinus Ameghino. Miocän von Patagonien.
Thoatherium Ameghino. (Fig. 613.) Ebenda. Mit nur einer Zehe.
Eoproterotherium, Deuterotherium Ameghino. Untermiocän. Pyrotherium-Schichten von Patagonien.
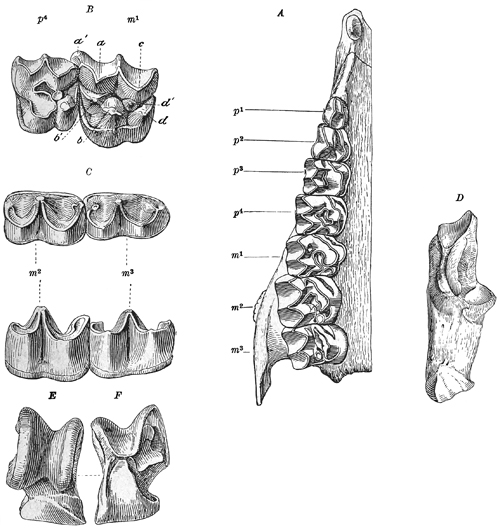
Fig. 612.
Diadiaphorus majusculus Ameghino. Obermiocän. Santa Cruz Patagonien. A linker Oberkiefer. 3/4 nat. Gr. (Nach Ameghino.) B oberer M1-2. C unterer M2 und M3 nat. Gr. D Calcaneum, E F Astragalus 2/3 nat. Gr.
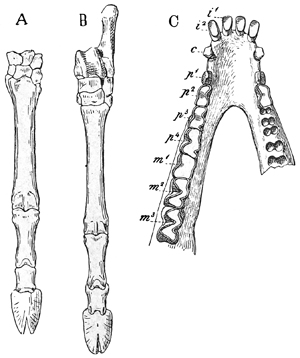
Fig. 613.
Thoatherium crepidatum Ameghino. Obermiocän. Santa Cruz. Patagonien. A Vorderfuß, B Hinterfuß. 1/2 nat. Gr. C Th. minusculum Ameghino. Unterkiefer. 2/3 nat. Gr. (Nach Ameghino.)
4. Familie. Adiantidae. Ameghino.
Adiantus, Proadiantus Ameghino. Miocän von Patagonien. Nur Unterkiefer bekannt mit geschlossener Zahnreihe, 3.1.4.3., J und C meißelförmig, M ziemlich hoch aus zwei Monden und Innenpfeilern bestehend. Systematische Stellung unsicher.
3. Unterordnung. Perissodactyla.[142] Owen. Unpaarzeher (Mesaxonia Marsh).
Unguligrad, mit vorwiegend entwickelter Mittelzehe, Hinterfuß meist dreizehig, Vorderfuß drei- oder vierzehig, zuweilen an beiden Füßen nur eine Zehe. Astragalus mit tief ausgefurchter Gelenkrolle, distal abgestutzt. Hand- und Fußwurzelknochen alternierend, Gebiß meist vollständig. Backenzähne lophodont, selten bunodont. Femur mit drittem Trochanter. Fibula nicht am Calcaneum articulierend.
Die Perissodactylen sind heutzutage nur mehr durch die drei Gattungen Tapirus, Rhinoceros und Equus vertreten, während sie im Tertiär einen großen Formenreichtum aufzuweisen haben. Sie sind ausgezeichnet durch die kräftige Entwicklung der dritten oder Mittelzehe an Vorder- und Hinterfuß, welche bei den spezialisiertesten Formen, den Equiden, ganz allein die Körperlast trägt und auch bei den übrigen stets die Hauptachse der Extremitäten enthält.
Der Schädel gewinnt durch das Überwiegen der Gesichtsknochen über die Gehirnkapsel verlängerte Form. Das Hinterhaupt fällt steil ab, die Condyli sind quer konvex, die großen Schläfengruben von einer Crista temporalis überdacht. Die Nasenbeine ragen frei über die seitlich offenen, weit zurückreichenden Nasenlöcher vor, welche unten von den Zwischenkiefern und öfters auch vom Oberkiefer begrenzt werden. Zuweilen (Rhinoceros) tragen die Nasenbeine auf rauhen, polsterartigen Flächen Hörner, oder es können sich auf ihnen knöcherne Protuberanzen erheben (Titanotheriidae). Die Augenhöhlen sind in der Regel weit offen und nur bei den jüngeren Equiden ringsum knöchern begrenzt.
Das definitive Gebiß der Perissodactylen besteht in seiner typischen Entwicklung aus je 3.1.4.3.3.1.4.3. Diese Zahnformel gilt fast für alle eocänen Gattungen. Die Modernisierung des Gebisses veranlaßt bei jüngeren und vorgeschritteneren Formen eine Reduktion, zuweilen sogar vollständige Verkümmerung der J, der oberen und selbst der unteren C und der vordersten P. Die Backenzähne sind bei den primitiveren Formen brachyodont, bei einzelnen vorgeschritteneren prismatisch. Die älteren Perissodactylen haben vorwiegend heterodonte, die jüngeren homöodonte Backenzähne. Die ursprünglich praktisch vierhöckerige, aber doch mit Nebenhöckern versehene Krone bleibt selten rein bunodont, meist sind die Höcker durch Joche verbunden (lophodont). Durch Vorsprünge an der Außenseite — Parastyl, Mesostyl, Metastyl —, an der Innenseite der Außenwand — Crista — und an den Querjochen — Crochet und Antecrochet — der oberen Backenzähne wird die Zahnkrone häufig verstärkt und bei vorgeschritteneren Formen bekommt der Schmelz öfters auch eine Zementhülle.
Im Milchgebiß stimmen die JD und CD mit denen des definitiven Gebisses überein, die D gleichen nur bei den homoeodonten Formen ihren Ersatzzähnen, bei den heterodonten besitzen nur die zwei hinteren Milchzähne die Gestalt von Molaren und der vorderste zeichnet sich in der Regel durch einfachere, P-ähnliche Form aus.
Die Wirbelsäule besteht aus 7 Hals-, 22 Rücken- und Lendenwirbeln, 5-6 Sacral- und mindestens 13 Schwanzwirbeln. Ein Schlüsselbein fehlt. Humerus kurz, gedrungen, ohne Foramen entepicondyloideum. Fossa olecrani niemals durchbohrt. Radius und Ulna bald gleichmäßig entwickelt, getrennt, bald distal verschmolzen.
Verwachsungen von Carpalia finden nicht statt, wohl aber werden die Carpalia durch seitliche Verschiebung der distalen Reihe und durch Streckung nach rückwärts fester ineinander verkeilt. Das Scaphoideum ruht nicht bloß auf dem Trapezoid wie bei den Condylarthra, sondern auch teilweise auf dem Magnum, das Lunare stützt sich auf Magnum und Unciforme, und nur das Cuneiforme wird bloß von einem Carpale, dem Unciforme getragen. Das Centrale ist nicht mehr vorhanden. Bei den Formen mit drei annähernd gleich langen Zehen ist der Carpus hoch, bei den jüngeren Equiden mit ungemein starker Mittelzehe verbreitert sich das Magnum und schiebt Trapezoid und Unciforme nach der Seite, wobei das Trapezium ganz aus dem Carpus verdrängt wird und zuletzt vollständig verschwindet. Die Zahl der Metacarpalia ist im Maximum vier, meist drei, beim Pferd nur eins. Ein Daumen fehlt stets, der fünfte Finger ist, wenn überhaupt vorhanden, kürzer als die übrigen.
Die Metacarpalia greifen mit ihren schwach konkaven proximalen Gelenken etwas zwischen die Carpalia herein und alternieren mit ihnen. Die Länge der Metapodien ist sehr verschieden. Verlängerung von Metapodien bedeutet in der Regel einen Fortschritt und ist meist mit Reduktion der Seitenzehen verbunden. Wird die ganze Körperlast auf die Mittelzehe verlagert, so bildet sich am distalen konvexen Gelenk von Metacarpale III (und Metatarsale III) ein zugeschärfter Leitkiel aus, welcher eine seitliche Verschiebung der Zehe verhindert. Bei den älteren drei- oder vierzehigen Perissodactylen sind die Leitkiele auf die Hinterseite der distalen Gelenkfläche beschränkt. Die dreieckigen, unten abgeplatteten Endphalangen sind von Hufen umgeben.
Der Oberschenkel zeichnet sich durch einen vorspringenden, öfters sehr stark entwickelten dritten Trochanter aus. Tibia und Fibula sind bei den Formen mit wenig überwiegender Mittelzehe vollständig entwickelt und getrennt, bei den jüngeren Equiden verkümmert die Fibula zu einem kurzen proximalen Griffelbein.
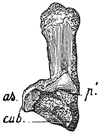
Fig. 614.
Palaeotherium. Calcaneum. as, p' Fasetten für den Astragalus, cub Fasette für das Cuboideum.
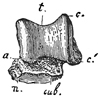
Fig. 615.
Palaeotherium. Astragalus. t Trochlea, n, cub Fasetten für das Naviculare und Cuboideum, c, c' Berührungsfläche mit dem Calcaneum, a Grube zur Aufnahme des unteren Endes der Tibia.
Von den Tarsalknochen hat das Calcaneum (Fig. 614 A) einen verlängerten, am Ende rauhen Stiel (tuber calcis) und ein nach innen vorspringendes Sustentaculum mit drei Fasetten für den Astragalus (Fig. 615 B). Dieser letztere hat oben und vorne eine tiefausgefurchte Rolle für die Tibia, innen und hinten drei Gelenkflächen für das Calcaneum und an dem abgestutzten oder höchstens schwach gewölbten distalen Ende eine große Fasette für das Naviculare (n) und eine kleine für das Cuboideum (cub). Zwischen der proximalen und der distalen Tarsusreihe liegt, ausschließlich vom Astragalus bedeckt, das von den drei Cuneiformia getragene Naviculare. Das Cuboideum ist hoch, trägt das Calcaneum, artikuliert aber auch stets mit dem Astragalus. Alle Tarsalia bleiben getrennt, nur bei den vorgeschritteneren Equiden kommen Verwachsungen von Cuneiformia vor. Die Reduktion der Seitenzehen ist am Hinterfuß vollständiger und konstanter als am Vorderfuß. Der Hinterfuß ist somit entweder dreizehig oder, bei den jüngeren Equiden, einzehig. Die meist ebenen proximalen Gelenkflächen der Metatarsalia greifen nicht in die untere Tarsusreihe ein.
Die Perissodactylen lassen sich in fünf Familien, Tapiridae, Rhinoceridae, Equidae, Titanotheriidae und Chalicotheriidae einteilen, von denen die vier ersten auf eine gemeinsame Stammform zurückgehen, welche der Condylarthrengattung Tetraclaenodon vermutlich sehr ähnlich war, während die Chalicotheriidae ungezwungen von der Condylarthrengattung Meniscotherium abgeleitet werden können.
1. Familie. Tapiridae.[143]
Nasenbeine kurz, frei vorragend. 3.1.4-3.3.3-2.1.4-3.3. J meißelförmig, C konisch. Backenzähne brachyodont. P anfangs einfacher als M, bei den späteren Formen gleich M. Obere M mit zwei untereinander verbundenen Außenhöckern und zwei geraden Querjochen, welche die Außenhügel mit den beiden Innenhügeln verbinden. Parastyl kräftig. Untere M mit zwei rechtwinklig oder schief zur Längsachse gerichteten Querjochen. Vorderfuß meist mit vier, Hinterfuß mit drei Zehen.
Die Tapiriden enthalten kleine, mittelgroße und ausnahmsweise auch große Formen. Die einzige noch existierende Gattung lebt in Südasien und im tropischen Amerika. Fossile Tapiriden beginnen im Untereocän von Europa und Nordamerika und reichen in Europa bis in das Pliocän. Im Pleistocän haben sie sich in ihre jetzigen Wohnsitze zurückgezogen, sind aber auch noch fossil in China und Nordamerika vertreten. Ihre nächsten Beziehungen haben sie zu den Rhinoceriden.
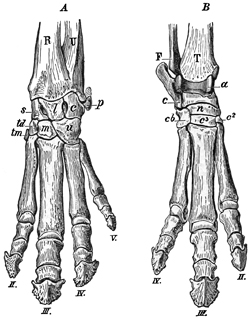
Fig. 616.
Tapirus americanus Lin. A linker Vorderfuß, B rechter Hinterfuß. 1/5 nat. Gr.
Fast alle Tapiriden besitzen ein vollständiges Gebiß. Die C sind meist durch ein Diastema von den stets brachyodonten Backenzähnen getrennt. Das in der Regel gut entwickelte Cingulum bildet an der Vorderaußenecke der oberen M und oft auch der P einen Pfeiler (Parastyl). Die Querjoche, welche die Außenhöcker mit den Innenhöckern verbinden, verlaufen fast geradlinig (ortholophodont). Im Unterkiefer sind die vorderen Schenkel der ursprünglich ⋁förmigen Joche fast ganz verwischt, so daß in der Regel nur die hinteren Schenkel einfache Querjoche bilden. Bei allen alttertiären Gattungen unterscheiden sich die P durch einfacheren, im Oberkiefer häufig noch trituberkulären Bau von den M, beim lebenden Tapir haben die P, mit Ausnahme des vordersten, das Aussehen von echten M erhalten. Im Oberkiefer sind meistens 4, im Unterkiefer 3 bis 4 P vorhanden, welchen die M ähnlichen D vorausgehen. Im Unterkiefer tritt häufig Verlust des vordersten P ein, während der Oberkiefer meist die volle Zahl (4) behält. Nur die Gattung Lophiodon besitzt trotz ihres hohen geologischen Alters oben und unten nur 3 P. Der Schädel der Tapiriden ist in der Regel gestreckt, die Schnauze verschmälert, die Gehirnhöhle mäßig groß, die Orbita sind hinten nicht knöchern umgrenzt, die Nasenbeine frei vorragend, bei den älteren Formen sehr lang und groß, bei Tapir kurz und dreieckig, Raum für einen kurzen Rüssel lassend. Nasenöffnung groß und weit zurückreichend. Postglenoid und Paroccipitalfortsätze wohl entwickelt. Die Extremitäten (Fig. 616) haben mäßige Länge, sie sind schlanker als bei den meisten Rhinoceriden aber plumper als bei den meisten Equiden. Ulna und Radius sind getrennt und nahezu gleich stark. Im Carpus ruht das Scaphoid auf Trapezoid und Magnum, und das Lunatum zum größten Teil auf dem Unciforme. Das Magnum trägt die Hauptlast und wird von Metacarpale II und III gestützt. Der Vorderfuß ist vier-, der Hinterfuß dreizehig. Das Femur hat einen mäßig entwickelten dritten Trochanter, die Fibula ist stets vollständig. Der Astragalus besitzt eine tief ausgefurchte Trochlea und distal eine große abgestutzte Gelenkfläche für das Naviculare und eine kleine für das Cuboid. Der Bau von Carpus und Tarsus hat bei den Tapiriden während des ganzen Tertiärs keine nennenswerten Veränderungen erfahren.
1. Unterfamilie. Lophiodontinae.
Obere und untere M mit zwei schiefen Querjochen. Sämtliche P oder doch die vordersten einfacher als die M. Metacon der oberen M konkav. Nur fossil im Eocän von Europa und Nordamerika.
Heptodon Cope. 3.1.4.3.3.1.4-3.3. Alle P einfacher als die M. Unterer M3 dreijochig. Untereocän. (Wasatch- und Wind Riverbed). Wyoming.
H. ventorum. calciculus Cope.
Helaletes Marsh (Dilophodon, Desmatotherium Scott). 43 P, P3 und P4 mit Nachjoch. Mitteleocän, Bridgerbed und Obereocän, Uintabed.
Chasmotherium Rütimeyer. 44 P, davon die beiden letzten M ähnlich. Unterer M3 nur mit zwei Jochen. Mitteleocän von Frankreich und Schweizer Bohnerze.
Lophiodon Cuv. (Tapirotherium Blv.) (Fig. 617). 33 P, sämtlich einfacher als die M. Unterer M3 dreijochig. Schädel niedrig, lang, mit hohem Scheitelkamm. Hinterhaupt überhängend. Nasenbeine bis oberhalb J1 reichend. Hand vierzehig. McV kurz. Zahlreiche Arten im europäischen Eocän, in der Größe zwischen Schwein — L. occitanicum Gerv. — und Rhinoceros — L. rhinocerodes Rüt. — schwankend.
Lophiodochoerus Lemoine. Untereocän von Reims.
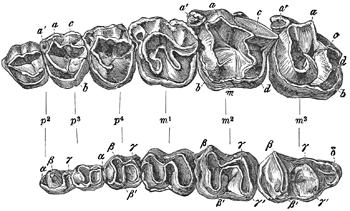
Fig. 617.
Lophiodon isselense Cuv. Mitteleocän. Issel bei Castelnaudary. Aude. Zahnreihe des linken Oberkiefers und Unterkiefers, 1/2 nat. Gr. (Nach Filhol.)
2. Unterfamilie. Tapirinae.
Untere M mit zwei rechtwinklig zur Längsachse stehenden Querjochen. Zweiter Außenhöcker der oberen M in der Regel konisch. P bei den älteren Formen einfacher, bei den jüngeren M ähnlich.
Fossil im Eocän bis Pleistocän von Nordamerika, in Europa von Oligocän bis Pliocän, in Asien und Südamerika erst im Pleistocän.
Systemodon Cope. P4 in beiden Kiefern nahe an C. Außenhöcker der oberen M fast gleich stark. Querjoche mit deutlichen Zwischenhöckern. P1 klein, einspitzig, die übrigen P dreihöckerig. Unterer M3 dreijochig. Im unteren Eocän (Wasatchbed) von Wyoming und Neu-Mexiko. S. semihians Cope.
Isectolophus Scott und Osborn. Obereocän. Bridger und Uintabed.
Protapirus Filhol (Fig. 618). Oberer P4 mit zwei äußeren Höckern und einem zweispitzigen Innenhöcker und zwei konvergierenden Jochen. Unterer M3 zweijochig. Oligocän. Phosphorite von Quercy und Bohnerz von Ulm. P. priscus Filhol. Die amerikanischen Arten P. robustus Sinclair (Untermiocän von Oregon), obliquidens und simplex Wortman (Oligocän White Riverbed) sind wohl generisch verschieden — Nachjoch der unteren M aus zwei fast isolierten Höckern bestehend.
Colodon Marsh. Ohne unteren J1 und unteren P1. Obere P2 bis P4 mit Nachjoch. Paracon der oberen M konkav. Unterer M3 zweijochig. Metapodium III viel kräftiger als die übrigen. Oligocän. White Riverbed.
Tapiravus Marsh. Miocän von New Jersey und Pliocän der Rocky Mountains, sehr unvollständig bekannt.
Palaeotapirus Gaudry (Paratapirus Depéret) (Fig. 619). P1 dreieckig und undeutlich dreihöckerig, P2 mit kurzem Vor- und langem Nachjoch. P3 und P4 oblong, mit gleichlangen Querjochen. M trapezoidal im Umriß. Parastyl an den oberen P schwach, an den M kräftig entwickelt. Untermiocän Ulm, Mainz, Brüx und Schweiz, Dep. Allier und Savoyen. P. helveticus Meyer sp.
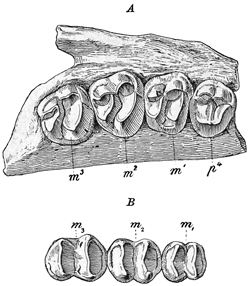
Fig. 618.
Protapirus priscus Filhol. Quercy. A letzter oberer P und drei M. B die drei hinteren M des Unterkiefers in nat. Gr. (Nach Filhol.)
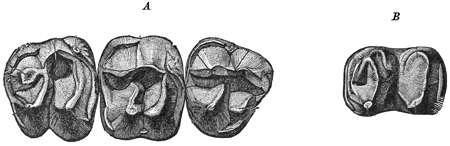
Fig. 619.
Palaeotapirus helveticus Meyer. Unt. Miocän. Eselsberg bei Ulm. A P2, P4 und M1 des Oberkiefers. B Ein Unterkiefer-Molar (nat. Gr.).
Tapirus Linné (Elasmognathus Gill). Obere P mit Ausnahme von P1 M ähnlich aber oblong und mit schwächerem Parastyl. Unterer P2 verlängert, Schädel mit sehr kurzen, vorne zugespitzten und zuweilen durch eine Wand gestützten Nasenbeinen. Lebend in Süd- und Zentralamerika und in Südindien. Fossil in Europa im Obermiocän T. Telleri Hofmann in Steiermark, im Unterpliocän T. priscus Kaup Eppelsheim, Mittelpliocän, T. hungaricus Meyer Steiermark und Ungarn, Oberpliocän, T. arvernensis Croiz. und Job. Auvergne. Im Pleistocän von Südchina lebte der riesige T. sinensis Owen. Im Pleistocän von Nordamerika T. Haysii Leidy, in dem von Südamerika (Tarija) T. tarijensis Ameghino.
2. Familie. Rhinoceridae.[144]
Nasenbeine frei vorragend, häufig mit einem rauhen Polster für ein oder zwei Hörner. Nasenlöcher weit zurückreichend. 3-0.1-0.4-2.3.3-0.1-0.4-2.3. J und C öfters fehlend. P den M mehr oder weniger ähnlich, bei den älteren Formen einfacher. Obere M mit dicker Außenwand, Ectoloph, und zwei schiefen, schwach gebogenen und mit dem Ectoloph innig verbundenen Querjochen. Untere M mit zwei fast rechtwinklig geknickten Jochen, wovon sich das Nachjoch — Metalophid — mit seinem vorderen Schenkel an das Vorjoch anschließt. M3 ohne drittes Joch. Vorderfuß mit drei oder vier, Hinterfuß mit drei Zehen.
Zu den Rhinoceridae gehören vorwiegend große, kurzhalsige, plumpe, kurzbeinige und kurzgeschwänzte Grasfresser, welche noch jetzt in sumpfigen Niederungen des tropischen Indien, der Sundainseln und in Zentralafrika leben, fossil im oberen Eocän von Europa und Nordamerika beginnen und im Oligocän, Miocän und Pliocän einen großen Formenreichtum entfalten. Im Miocän erscheinen sie auch in Nordafrika und bald darauf auch in Asien. In Europa haben sie ihre letzten Vertreter im Pleistocän. Sie zeichnen sich teilweise durch den Besitz starker Hörner aus, die als echte Hautgebilde aus innig verwachsenen Haarbüscheln entstehen und auf rauhen Protuberanzen dem Nasenbein, zuweilen auch dem Stirnbein aufsitzen. Sind zwei Hörner vorhanden, so stehen sie meistens hintereinander.
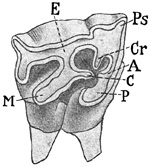
Fig. 620.
Oberer Molar von Rhinoceros. 1/2 nat. Gr. E Ectoloph. P Protoloph. M Metaloph. Ps Parastyl. Cr Crista, A Antecrochet. C Crochet.
Das Gebiß ist nur bei den älteren Formen vollständig, bei den jüngeren verkümmern zuerst die C und dann allmählich auch die J. Bei den älteren Formen sind alle oder doch die zwei vorderen P einfacher gebaut als die M; bei allen jüngeren Rhinoceriden zeigen die P und M mit Ausnahme des vordersten P im wesentlichen gleiche Zusammensetzung. In das von den Querjochen der oberen M (Fig. 620) begrenzte Quertal ragen häufig Vorsprünge, Sporne, vom Vorjoch, Protoloph, Antecrochet A, von der Außenwand, Ectoloph Crista Cr, und vom Nachjoch, Metaloph Crochet C nach Osborns Bezeichnungsweise herein, die sich auch berühren und dann inselartige Räume umschließen können. An der Vorderaußenecke der oberen P und M befindet sich der Parastyl. Der letzte untere M besitzt nie ein drittes Joch.
Der Schädel ist niedrig, langgestreckt, das Hinterhaupt durch einen scharfen Occipitalkamm begrenzt, die Orbiten sind hinten offen und die Schläfengruben sehr groß. Die frei vorragenden Nasenbeine sind bei den hornlosen Formen schmal, bei den behornten stark und breit und werden zuweilen durch ein verknöchertes Mesethmoid gestützt. Die Nasenlöcher können bis zum ersten M reichen. Postglenoid und Mastoidfortsatz stehen zuweilen dicht beisammen.
Die Extremitäten sind meist kurz und plump, Radius und Ulna kräftig, ähnlich wie bei den Tapiriden und wie bei ihnen vollständig getrennt. Auch der Carpus ist, wenigstens bei den älteren Formen, dem der Tapiriden ähnlich. Von den Metacarpalien ist Mc III kräftiger als Mc II und IV. Mc V ist, wenn überhaupt vorhanden, kurz. Der Oberschenkel zeichnet sich durch den Besitz eines großen, in Mitte der Diaphyse gelegenen dritten Trochanters aus. Tarsus und Metatarsus sind bei den primitiveren Formen etwas verlängert und schmal, bei den jüngeren kurz und breit.
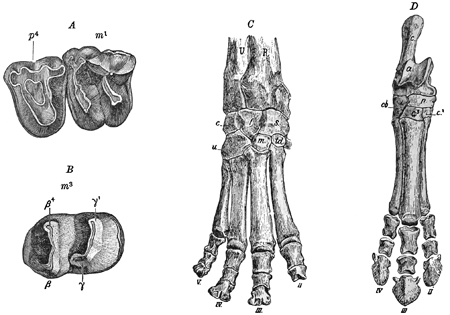
Fig. 621.
Hyrachyus eximius Leidy. Eocän (Bridger-Stufe). Wyoming. A Letzter oberer Prämolar und erster oberer Molar. B letzter unterer Backzahn (nat. Gr.). C Vorderfuß (nach einem Gipsabguß). D Hinterfuß (ca. 1/5 nat. Gr.). (Nach Cope.)
1. Unterfamilie. Hyracodontidae. Cope.
Schädel kurz mit Sagittalcrista und seitlich sichtbarem Perioticum. Nasenbeine vorragend, hornlos. 3.1.4.3.3.1.4.3. C schwach und dicht an die meißelartigen J stoßend, von den Backenzähnen durch ein Diastema getrennt. P und M entweder heterodont oder nahezu homoeodont. Die oberen M aus Außenwand und zwei schiefen Querjochen, die unteren aus zwei geknickten Halbmonden bestehend. Hals lang, Extremitäten lang und schlank. Vorderfuß vier- bis dreizehig, Hinterfuß dreizehig.
Diese zierlichen, hochbeinigen, schlanken, langhalsigen Tiere erinnern eher an ältere Equiden als an Rhinoceriden, obwohl Schädel und Backenzähne im ganzen mit den letzteren übereinstimmen. Im Skelett stehen sie den Tapiriden nahe. Sie bilden einen gänzlich erloschenen Seitenzweig der Rhinoceriden, der auf Obereocän und Oligocän von Nordamerika beschränkt ist.
Hyrachyus Leidy (Fig. 621) (Colonoceras Marsh?) P einfacher als M, die oberen P dreihöckerig. Vorderfuß vierzehig, Hinterfuß dreizehig. Obereocän (Bridgerbed). Wyoming.
Triplopus Cope. Vorderfuß dreizehig. Obereocän (Bridger- und Uintabed).
Hyracodon Leidy (Fig. 622). Die drei hinteren P M-artig. Vorderfuß dreizehig. Oligocän White Riverbed.
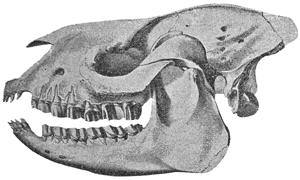
Fig. 622.
Hyracodon nebrascensis Leidy. Oligocän. White Riverbed. Nebraska Schädel. 1/6 nat. Gr. (Nach Scott.)
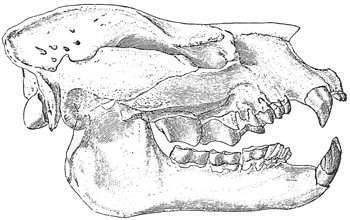
Fig. 623.
Metamynodon planifrons Osborn. Oligocän. White Riverbed. 1/10 nat. Gr. (Nach Osborn.)
2. Unterfamilie. Amynodontinae. Scott and Osb.
Schädel vor der Orbita tief ausgehöhlt, Vorderrand der Schnauze breit. Nasenbeine sehr kurz, hornlos. C oben und unten viel stärker als die J, hauerartig. M ähnlich wie bei Rhinoceros. Obere M ohne Sporne. P viel kleiner und einfacher als die M. Vorderfuß vier- und Hinterfuß dreizehig.
Von einer Gattung dieser plumpen Tiere (Metamynodon) ist das Skelett vollständig bekannt. Der Schädel gleicht eher dem eines Bären als eines Rhinoceriden. In Nordamerika im Obereocän und Oligocän, in Europa im Oligocän.
Amynodon Marsh (Orthocynodon Scott et Osb.) 3-2.1.4.3.2-1.1.4.3. M nicht komprimiert. Obereocän. Uintabed.
Metamynodon Scott u. Osb. (Fig. 623). 2.1.3.3.1.1.2.3. Zahnkronen sehr hoch, stark komprimiert. Oligocän. White Riverbed. Dakota.
Cadurcotherium Gervais 2.1.3.3.1.1.2.3. M seitlich stark komprimiert. Oligocän Phosphorite von Quercy und Gips von Isle-sur-Sorgues.
3. Unterfamilie. Rhinocerinae.
Schädel langgestreckt, hinten ansteigend, ohne Sagittalcrista, aber mit Supraoccipitalkamm. Perioticum nicht an der Außenseite des Schädels hervortretend. Nasenbeine lang, vorspringend, nicht selten mit Hornpolster. 3-0.1-0.4-3.3.3-0.0.4-3.3. Obere C fast immer, untere stets fehlend, J frühzeitig teilweise und später zuweilen ganz reduziert oder oberer J1 und unterer J2 stark spezialisiert. Obere Backenzähne mit Außenwand und zwei schiefen Querjochen, häufig mit Antecrochet, Crista und Crochet oder nur mit einem oder zwei dieser Sporne versehen. Obere und untere P häufig den M gleich. Hals kurz, Extremitäten plump. Vorderfuß vier- bis dreizehig, Hinterfuß dreizehig.
Sämtliche Angehörige dieser Unterfamilie wurden von Cuvier in der einzigen Gattung Rhinoceros vereinigt, die jetzt in eine Anzahl von Subgenera zerlegt wird. Die fossilen Formen bilden zum Teil sehr vollständig geschlossene Formenreihen.
Prohyracodon Koch. Extremitäten schlank. Obere M ohne Sporne. Mitteleocän. Siebenbürgen.
Trigonias Lucas. 3.1.4.3.3.0.4.3. Oberer J1 und unterer J2 viel größer als die übrigen. P viel einfacher als M. Nasenbeine und Zwischenkiefer lang. Vorderfuß vierzehig. Oligocän White Riverbed. T. Osborni Lucas.
Leptaceratherium Osborn 2.1.4.3.2.0.3.3. Vorderfuß dreizehig. Ebenda L. trigonodum Osborn.
Meniatherium Abel. Oligocän. Krain. P und M einfach, klein.
Epiaceratherium Abel. Oligocän. Monte Bolca. P4 dreieckig.
Ronzotherium Aymard. P einfach. Nur Unterkiefer bekannt. Oligocän Ronzon. R. velaunum Aymard.
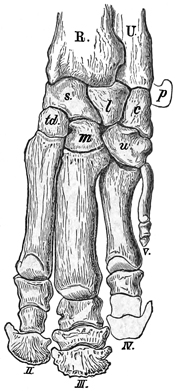
Fig. 624.
Aceratherium tetradactylum Lartet. Obermiocän. Sansan (Gers.) Vorderfuß 1/5 nat. Gr. (Nach Blainville.)
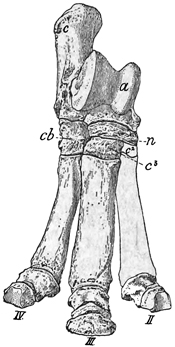
Fig. 625.
Aceratherium sp. Miocän. Nordamerika. Hinterfuß 1/5 nat. Gr. (nach Osborn.)
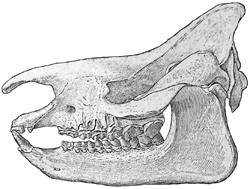
Fig. 626.
Aceratherium tridactylum Osborn. Oligocän. Oberes White Riverbed. Nebraska. Schädel 1/9 nat. Gr. (Nach Osborn.)
Praeaceratherium Abel. (Eggysodon Roman?) Obere M ohne Crochet und Antecrochet. P mit parallelen, ungleich langen Jochen und gerundeter Innenseite. Oligocän Phosphorite, schwäbische Bohnerze, Meeresmolasse von Alzey, P. minus Filh. sp. E. Osborni Schl. mit oberem C.
Protaceratherium Abel. Obere M mit Crochet und Antecrochet, P vierseitig mit konvergierenden Jochen. Oligocän. Phosphorite von Quercy, Stampien und Braunkohlen von Böhmen und Piemont. P. cadibonense Roger sp., minutum Cuv. sp.
Aceratherium Kaup (Caenopus Cope) (Fig. 624-627). 2-1.0.4.3.2-1.0.4.3.3. Dolichocephal, Nasenbeine schmal, hornlos. Oberer J1 komprimiert, J1 hinfällig, J2 lang, eckzahnähnlich mit dreikantiger Schneide. P stets einfacher als die M. Obere P und M anfangs nur mit Antecrochet. Vorderfuß dreizehig, zuweilen mit kurzem, dünnen, vierten Finger (Fig. 624). Oligocän. White Riverbed von Nordamerika. A. occidentale Leidy, tridactylum, platycephalum, Osborn, mite Cope, Miocän, Colorado persistens Osborn. Untermiocän Europa A. lemanense Pomel, Mittelmiocän platyodon Mermier, Obermiocän tetradactylum Lartet, Unterpliocän, incisivum Kaup. Im Unterpliocän von Samos A. samium, Schlosseri Weber, im Pliocän der indischen Siwalik und in China A. Blanfordi Lydekker, von Maragha A. Persiae Pohlig.
Diceratherium Marsh. 1.0.4 .3.2.0.4-3.3. Kleine Tiere, dolichocephal. Nasenbeine mit zwei kleinen, seitlichen Hornpolstern. P fast stets M ähnlich. In Europa im Oligocän D. Zitteli Schlosser, im Mittelmiocän D. Douvillei Osborn, im Obermiocän D. steinheimensis Jaeger. In Nordamerika im Oligocän D. proavitum Hatcher, im Untermiocän (John Daybed) D. armatum, nanum Marsh, D. Cooki, niobrarense Peterson.
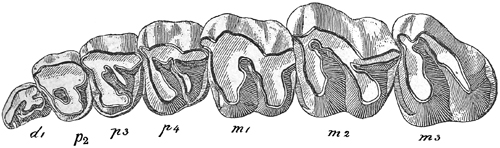
Fig. 627.
Aceratherium platycephalum Osborn. Oligocän. White Riverbed. Obere Backenzähne. 1/2 nat. Gr. (Nach Osborn.)
Brachypotherium Roger. 1.0.4.3.1.0.3.3. Brachycephal, brachyodont. J1 und J2 sehr kräftig. Obere P und M nur mit Antecrochet. P einfacher als M. Schädel hornlos, Extremitäten kurz und plump. In Europa im Mittelmiocän B. aurelianense Nouel, im Obermiocän B. brachypus Lart., im Unterpliocän B. Goldfussi Kaup. In Ostindien B. perimense Lydekker.
Teleoceras Hatcher (Fig. 629) 1.0.4.3.3.1.0.3-2.3. Brachycephal mit kleinem Horn an der Nasenspitze und Aphelops, Peraceras (Cope) ebenso, jedoch ohne Horn. Backenzähne bei beiden mehr oder weniger hypselodont. Extremitäten überaus kurz und plump, so daß der Habitus des Tieres eher einem Hippopotamus als einem Rhinoceros gleicht. Im Miocän A. megalodus Cope, im Unterpliocän Teleoceras fossiger Cope. Stammvater dieser nordamerikanischen Gattungen ist wohl Brachypotherium.
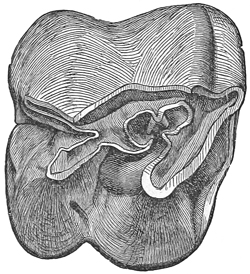
Fig. 628.
Rhinoceros (Ceratorhinus) Schleiermacheri Kaup. Unterpliocän Eppelsheim. Oberer Molar. 2/3 nat. Gr.
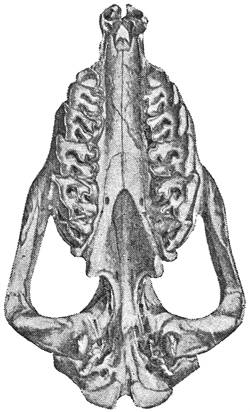
Fig. 629.
Teleoceras fossiger Cope. Obermiocän. Kansas. Schädel von unten. 1/10 nat. Gr. (Nach Marsh.)
Ceratorhinus Gray, Dihoplus Brandt (Fig. 628), mäßig dolichocephal. 2-0.0.4.3.1-0.0.3.3. Oberer J1 und unterer J2 ähnlich wie bei Aceratherium, zuweilen noch ein oberer J2 vorhanden. P häufig M ähnlich und wie diese mit Crochet, Crista und Antecrochet. Alle P und M brachyodont. Nasenbeine lang, mit Hornpolster, ein zweites zuweilen auf den Stirnbeinen. Die jüngeren Arten verlieren die J, dagegen entwickelt sich ein knöchernes Nasenseptum. Im Untermiocän C. tagicus Roman. Im Obermiocän C. sansaniensis und simorrensis Lartet, im Unterpliocän C. Schleiermacheri Kaup. Im Pleistocän von Niederösterreich C. hundsheimensis Toula. Lebend C. sumatrensis.
Rhinoceros s. str. Gray (Zalabis Cope) 1.0.4.3.1.0.3.3. Backenzähne häufig hochkronig. Schädel mit nur einem Horn. Occiput vorwärts geneigt. Processus postglenoideus und posttympanicus unten verwachsen. Lebend in Südindien (R. sondaicus Horsf.) Fossil in den Siwalikschichten, Rh. palaeindicus und sivalensis Falc., und im Pleistocän von Ostindien und Borneo.
Diceros Gray (Atelodus Pomel) (Fig. 630). 0.0.4.3.0.0.3.3. Occiput nach hinten geneigt. Processus postglenoideus und posttympanicus unten frei. Schädel mit zwei Hörnern. Lebend in Afrika (Rh. bicornis Lin.). Fossil in Europa und auf Samos im Unterpliocän Rh. pachygnathus Wagn., in Persien (Maragha) Rh. Morgani Mecquenem, im Mittelpliocän Rh. leptorhinus Cuv., (Rh. megarhinus Christol), im Pleistocän von Ostindien Rh. deccanensis Lyd. und von China Rh. sinensis Owen. Zweifelhaft ist die Stellung von Rh. platyrhinus Lyd. aus den Siwalikschichten und von Rh. Habereri Schlosser von China.
Coelodonta Bronn. 0.0.4.3.0.0.3.3. Nasenbeine groß, durch eine knöcherne Scheidewand gestützt. Occiput nach hinten geneigt. Je ein Horn auf Nase und Stirne. Im Oberpliocän und im ältesten Pleistocän von Europa Rh. etruscus Falconer, im Pleistocän von Europa und Nordasien Rh. Mercki Jäger (in China durch Rh. simplicidens Koken ersetzt) und Rh. antiquitatis Blumb. (Rh. tichorhinus Fisch). In Sibirien hat man zwischen dem Jenisei und der Lena Leichen von Rh. Mercki und antiquitatis im gefrorenen Boden gefunden, die noch mit Wollhaar bekleidet waren. Die Vertiefungen der Backenzähne enthielten noch Futterreste (Coniferennadeln und Weidenblätter). Rh. Mercki, der Nachkomme von etruscus, erlosch bereits vor Ende des Pleistocäns, und erst nach ihm wird Rh. antiquitatis häufig, der wahrscheinlich von Rh. platyrhinus abstammt. Rh. etruscus geht vermutlich auf Schleiermacheri zurück.
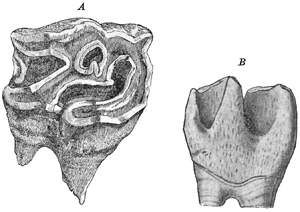
Fig. 630.
Rhinoceros (Coelodonta) antiquitatis Blumb. A Oberer Molar. Pleistocän. Kent's Höhle bei Torquay. 2/3 nat. Gr. (Nach Owen.) B unterer Molar von innen. 1/2 nat. Gr.
4. Unterfamilie. Elasmotheriinae.
Schädel langgestreckt, mit zugespitzter Schnauze und großer halbkugeliger Protuberanz auf dem Stirnbein. Nasenbeine schmal, nur an der Spitze mit einer kleinen Rauhigkeit versehen. 0.0.2.3.0.0.2.3. Ohne J und C. Backenzähne prismatisch, wurzellos. Obere M aus Außenwand und zwei schiefen Jochen, untere M aus zwei eckigen Halbmonden bestehend. Schmelz stark gekräuselt. P einfacher und kleiner als M. Skelett plump. Vorder- und Hinterfuß dreizehig.
Elasmotherium Fischer. Die einzige Art (E. sibiricum Fischer) im älteren Pleistocän von Südrußland und Sibirien, sehr selten auch im Rheintal.
3. Familie. Equidae.[145]
Nasenbeine frei vorragend, vorne zugespitzt, hornlos. Gebiß 3.1.4-3.3.3.1.4-3.3. J meißelförmig, C stets kräftiger als die J; P bei den geologisch älteren Formen einfacher, bei den jüngeren gleich M. Obere M aus zwei in der Regel zu einer Außenwand verbundenen Außenhöckern, zwei Innenhöckern und meist zwei konischen oder leistenartig verlängerten oder halbmondförmig gebogenen Innenhöckern bestehend. Zwischen- und Innenhöcker meist jochartig verbunden. Untere M bei den primitivsten Formen praktisch vierhöckerig, in der Regel aber aus zwei ⋁ oder halbmondförmigen, nach innen geöffneten Jochen zusammengesetzt. Vorderfuß vier- oder drei- oder einzehig, Hinterfuß drei- oder einzehig.
Die Equiden bilden die formenreichste, in ihren Endgliedern am meisten spezialisierte Familie der Perissodactylen. Sie beginnen im älteren Eocän und gipfeln in der jetzt noch lebenden Gattung Equus. Wie groß nun auch der Unterschied zwischen einem Pferd und den kleinen vierzehigen eocänen Anfangsformen sein mag, so sind doch die einzelnen Gattungen der Equidenreihe morphologisch aufs engste miteinander verbunden. Die Unterfamilien der Hyracotheriinae, Anchitheriinae und Equinae weichen bloß durch graduelle Unterschiede voneinander ab und stellen lediglich zeitlich getrennte Entwicklungsstufen dar. Nur die bald erlöschende Unterfamilie der Palaeotheriinae nimmt eine gesonderte Stellung ein.
Der Schädel ist langgestreckt, niedrig, die Stirne breit, das Gehirn groß und stark gefaltet. Die hornlosen zugespitzten Nasenbeine ragen frei über die zuweilen weit zurückreichende Nasenöffnung vor, welche unten vom Ober- und Zwischenkiefer begrenzt wird. Die Orbiten sind bei den älteren Gattungen groß, hinten offen, bei den jüngeren kleiner und ringsum knöchern begrenzt. Lacrimalia ausgedehnt. Processus postglenoidalis und paroccipitalis wohl entwickelt.
Sämtliche Equiden besitzen oben und unten jederseits drei J, einen C und sieben oder sechs Backenzähne. Das Diastema zwischen den C und P vergrößert sich bei den jüngeren Formen infolge von Verlängerung der Gesichtsknochen. Die anfänglich kurzen, brachyodonten Zähne werden prismatisch, hypselodont, und die anfangs einfacheren P bekommen den Bau der M. Die oberen M besitzen vier Haupthügel, zwei äußere und zwei innere von ⋁förmiger Gestalt und in der Regel kleine Zwischenhöcker. Bei den älteren Formen sind die Außenhügel von den Innenhügeln getrennt und nur die letzteren mit den Zwischenhügeln durch schwache Leisten verbunden. Bei weiterer Entwicklung vereinigen sich nicht nur die Außenhöcker zu einer W-förmigen Außenwand, sondern auch die Innen- und Zwischenhügel zu schrägen Jochen. Die Außenwand besitzt drei Vorsprünge, am Vorderaußeneck, Parastyl, in der Mitte, Mesostyl, und am Hinteraußeneck Metastyl. Von den oberen P ist der vorderste klein und einfach. Er fehlt niemals bei den eocänen Formen, bei den jüngsten verschwindet er in der Regel vollständig. Die hinteren P sind bei den älteren Formen trituberkulär, bei den späteren werden sie nacheinander, vom hintersten beginnend, den M gleich. Die P des Unterkiefers eilen in der Molarisierung denen des Oberkiefers etwas voraus. Bei Hyracotherium stehen die vier konischen Höcker einander paarweise oder alternierend gegenüber und bleiben entweder isoliert oder sind nur durch undeutliche Querjoche verbunden. Bei allen jüngeren Equiden sind die Backenzähne lophodont und zwar die unteren selenolophodont. Den P gehen drei oder vier D voraus, von denen schon bei den ältesten Formen der hinterste stets und der vorletzte nahezu die Zusammensetzung eines Molaren besitzt. Der Komplikation der P eilt die Molarisierung der D immer um einen Zahn voraus, jedoch werden sie niemals hypselodont wie die P und M.
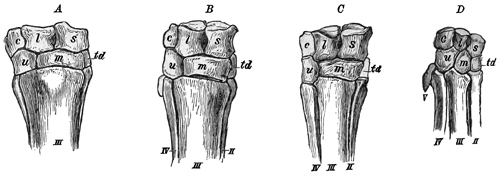
Fig. 631.
Carpus und Metacarpus von A Equus, B Hipparion, C Anchitherium, D Palaeotherium, c Cuneiforme, l Lunare, s Scaphoideum, u Unciforme, m Magnum, td Trapezoid, II-V Metacarpalia II, III, IV und V.
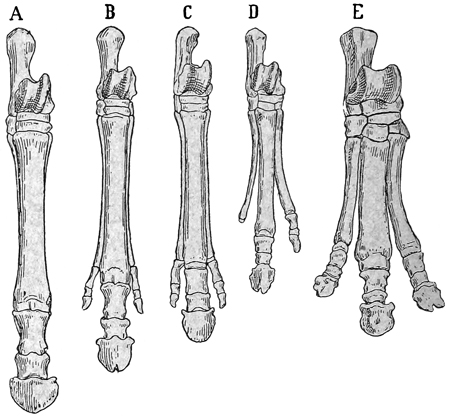
Fig. 632.
Rechter Hinterfuß. A Equus, B Hipparion, C Anchitherium, D Paloplotherium, E Palaeotherium.
Die Extremitäten sind bei den ältesten Formen gedrungen, bei den jüngeren schlank und lang. Die Knöchelchen der beiden Carpalreihen alternieren miteinander. Das ursprünglich kleine Os magnum verbreitert sich bei den jüngeren Formen, drängt das Trapezoid nach innen und stützt gleichmäßig das Lunare und Scaphoideum. Die primitivsten Gattungen haben vier Metacarpalia. Bei Anchitherium gewinnt das Mc III infolge der Ausdehnung des Magnum ein starkes Übergewicht über die seitlichen Metapodien, deren Zehen jedoch den Boden noch berühren. Bei Hipparion (Fig. 631) und Protohippus nimmt der Metacarpus an Länge zu, die seitlichen Metacarpalia II und IV sind dünn, aber fast ebenso lang wie Mc III, jedoch berühren ihre Zehen nicht mehr den Boden. Mc V ist nur als winziger Stummel angedeutet. Bei Equus, Hippidium und Pliohippus endlich wandeln sich die seitlichen Metacarpalia in dünne, nach unten zugespitzte Griffelbeine um, die kaum halb so lang sind wie Mc III. Metacarpale III allein besitzt drei kräftige Zehenglieder, von welchen das letzte von einem großen Huf umgeben ist. Mc V verschwindet vollständig.
Eine ähnliche Umbildung erleiden Tarsus und Hinterfuß (Fig. 632), so daß auch hier als Schlußresultat ein einzehiger Fuß mit zwei schwachen seitlichen Griffelbeinen entsteht. Die Leitkiele am distalen Ende der Metapodien sind anfangs auf die Hinterseite beschränkt, werden dann immer stärker und teilen bei den jüngsten Gattungen das ganze Gelenk in zwei gleiche Teile.
Die Equiden zerfallen in die vier Unterfamilien der Hyracotheriinae, der Palaeotheriinae, der Anchitheriinae und der Equinae, welche jedoch zum Teil nur Entwicklungsstadien verschiedener Formenreihen darstellen.
1. Unterfamilie. Hyracotheriinae.
Orbita hinten offen. 3.1.4.(-3)3.3.1.4.(-3)3. Backenzähne sehr niedrig, mit starkem Basalband. P meist einfacher als M. Obere M mit vier Haupt- und zwei kleineren Zwischenhöckern, untere M mit vier Höckern. Höcker entweder konisch, oder im Oberkiefer jochartig verbunden und die äußeren im Unterkiefer ⋁förmig. Radius und Ulna getrennt, gleich stark. Vorderfuß fast stets mit vier, Hinterfuß mit drei Zehen. Eocän von Nordamerika und Europa.
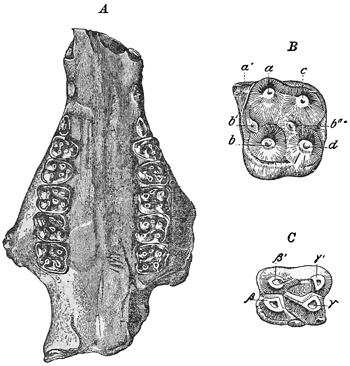
Fig. 633.
Hyracotherium leporinum Owen. Unt. Eocän (Londonclay). Herne Bay. Insel Wight. A Schädelfragment von unten. B zweiter oberer, C erster unterer Molar. 2/1 nat. Gr. (Nach Owen.)
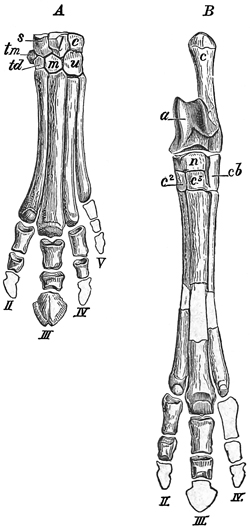
Fig. 634.
Eohippus venticolus Cope sp. Untereocän. Wasatchbed. Wyoming. A Vorderfuß, B Hinterfuß. 1/3 nat. Gr. (nach Cope.)
Die Hyracotheriinen haben zum Teil noch bunodontes Gebiß. Die konischen Außenhöcker bleiben anfangs noch isoliert, verbinden sich aber bald zu einer mit Parastyl und Mesostyl versehenen Außenwand und bilden dann mit den Zwischen- und Innenhöckern schräge Joche. Die Joche der Unterkieferzähne werden ⋁förmig. Die P sind fast stets einfacher als die M. Die Hyracotheriinen lassen sich von der fünfzehigen Condylarthrengattung Tetraclaenodon (Euprotogonia) ableiten, welche somit den Ausgangspunkt der Equiden darstellt. Sie hat jedoch nur für die nordamerikanischen Formen phylogenetische Bedeutung, weil nur sie mit einem für jene charakteristischen Hypostyl, dem Höcker inmitte des Hinterrandes der oberen M, versehen sind. Auch sind nur von ihnen die Extremitäten bekannt, weshalb auch die Zugehörigkeit der europäischen Gattungen wenigstens von Pachynolophus, Lophiotherium, Anchilophus und Propalaeotherium zu den Hyracotheriinen nur provisorisch sein kann. Die letzte der vier Gattungen gehört wohl schon zu den Palaeotheriinen, Anchilophus vielleicht zu den Anchitheriinen. Paloplotherium hingegen wird wegen der Einfachheit der P zu den Hyracotheriinen gestellt, obwohl der Vorderfuß nur dreizehig ist.
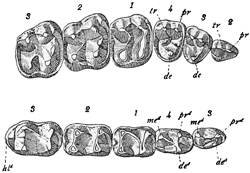
Fig. 635.
Eohippus tapirinus Cope. Untereocän. Wasatchbed. Wyoming. A obere, B untere Backenzähne. Nat. Gr. (nach Wortman.)
Hyracotherium Owen (Pliolophus Owen). (Fig. 633.) Alle P einfacher als die M. Höcker der M und P höchstens zu undeutlichen Jochen verbunden. Unterer M3 mit unpaarem Hinterhöcker. Untereocän. England. H. leporinum Owen.
Propachynolophus Depéret. M weniger bunodont als bei Hyracotherium. Untereocän Reims. Erquellines (Belgien). P. Maldani, Gaudryi Lemoine sp.
Eohippus Marsh (Orotherium, Hyracotherium Cope, Protorohippus Wortman). (Fig. 634, 635.) M deutlich lophodont. Obere P einfacher als M. Extremitäten schlank, ziemlich lang, digitigrad. Metacarpale V viel kürzer als Mc II. Untereocän Wasatch und Wind Riverbed. Nordamerika. Eohippus venticolus, index etc. Cope.
Pachynolophus Pomel. Obere M mit zwei pyramidalen Außenhöckern, mit schwachem Parastyl und Mesostyl und zwei nahezu konischen Innenhöckern nebst zwei Zwischenhöckern. P4 in beiden Kiefern fast M-artig. Untere M mit zwei eckigen Außenmonden, deren Enden hohe Spitzen bilden. Im Mitteleocän von Frankreich, Belgien und in Schweizer Bohnerzen. P. Prevosti Gervais.
Orohippus Marsh (Oligotomus, Helotherium, Hyracotherium Cope) wie Pachynolophus, jedoch obere M mit Hypostyl. P4 mehr oder weniger M-artig. Mitteleocän. Bridgerbed. O. pumilus Marsh, osbornianus Cope.
Epihippus Marsh, ähnlich Orohippus, P aneinanderschließend, P3 und P4 M-artig. Vorderfuß vierzehig. Obereocän. Uintabed. E. gracilis Marsh.
Lophiotherium Gerv. (Pachynolophus Pictet, Tapinodon v. Meyer (Fig. 636), die beiden hinteren P M-artig. Höcker und Halbmonde dick. Obereocän. Frankreich, Schweiz. L. cervulum Gervais.
Propalaeotherium Gervais. Obere M ähnlich wie bei Pachynolophus, aber meist größer. P4 trituberkulär, auch unterer P4 etwas einfacher als M. Am vorderen Halbmond der unteren M ist der vordere Schenkel etwas verkümmert. Innenhügel plump, vorderer zweispitzig. Mitteleocän von Frankreich. P. argentonicum und isselanum Gervais, die letztere Art auch in den Schweizer Bohnerzen, hier auch das kleine P. parvulum Laurillard.
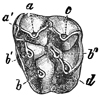
Fig. 636.
Lophiotherium cervulum Gervais. Obereocän. Phosphorite von Quercy. Oberer Molar. 3/2 nat. Gr.
Anchilophus Gervais. Die beiden letzten P M-artig. Obere M viel breiter als lang. Erster Innenhöcker der unteren P und M dick, zweispitzig. Obereocän Frankreich, Schweizer Bohnerze und Phosphorite von Quercy.
Paloplotherium Owen (Plagiolophus Pomel). (Fig. 637.) Schädel pferdeähnlich. 38 P, alle einfacher als die M, die oberen P dreihöckerig. Obere M etwas länger als breit. Innenenden der Halbmonde an den unteren P und M als hohe Spitzen entwickelt. Backenzähne häufig mit Zement versehen und relativ hochkronig. Carpalia schmal und hoch. Extremitäten dreizehig, schlank, seitliche Metapodien sehr dünn. Häufig im europäischen Obereocän. P. annectens Owen, minus Cuv. etc. Selten im Oligocän. Ronzon P. ovinum Aymard und in schwäbischen Bohnerzen.
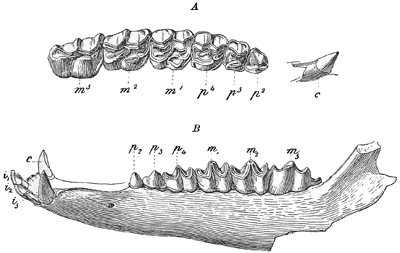
Fig. 637.
Paloplotherium minus Cuv. Ob. Eocän (Lignit). Débruge bei Apt. A Oberkieferzähne, B Unterkieferzähne. 2/3 nat. Gr.
2. Unterfamilie. Palaeotheriinae.
Orbita hinten weit offen. P meistens M-artig. Obere M mit W-förmiger Außenwand und zwei schrägen Querjochen. Parastyl und Mesostyl schwach entwickelt. Die zusammenstoßenden Innenenden der beiden Halbmonde der unteren M bilden eine einfache Spitze. M3 mit drittem Halbmond. Extremitäten relativ kurz und dick. Vorder- und Hinterfuß dreizehig. Seitenzehen nur wenig schwächer als die Mittelzehe. Nur im Eocän und Unteroligocän von Europa.
Palaeotherium Cuvier. (Fig. 638, 639.) Zahl der P oben stets vier, unten meist drei. Extremitäten und Schädel tapirähnlich.
Fig. 638.
Palaeotherium crassum Cuv. Erster unterer Molar. 1/1.
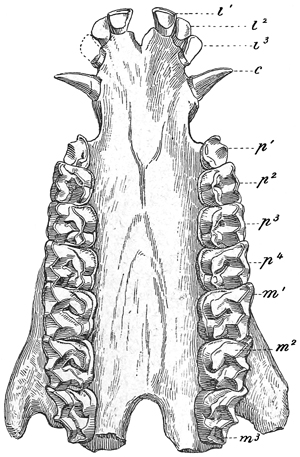
Fig. 639.
Palaeotherium crassum Cuv. Lignit. Débruge bei Apt. Vaucluse. Unterseite des Schädels mit sämtlichen Zähnen. 1/2 nat. Gr.
Die Körpergröße dieser artenreichen Gattung wechselt zwischen der von Schwein (P. curtum Cuv.) und der von Rhinoceros (P. magnum Cuv.), die meisten Arten haben die Dimensionen eines Tapirs (P. medium Cuv., Mühlbergi Stehlin), an welchen auch der Schädel und die einzelnen Knochen am ehesten erinnern. Die Molarisierung der P erfolgt hier sehr rasch, jedoch hat eine der ältesten Arten (P. Rütimeyeri Stehlin) sogar noch einen sehr einfachen P4. Im Pariser Gips finden sich ganze Skelette, in den Ligniten von Débruge (Vaucluse) verdrückte Knochen und Schädel.
3. Unterfamilie. Anchitheriinae.
Orbita hinten offen, zuweilen vollständig knöchern begrenzt. Backenzähne brachyodont. Obere M mit W-förmiger Außenwand und zwei schrägen Querjochen. Parastyl, Mesostyl und Hypostyl wohl entwickelt. Innenenden der Halbmonde deutliche Kegel bildend. Dritter Halbmond des unteren M3 stets rudimentär. Radius und Ulna anfangs getrennt. Extremitäten hoch und schlank, dreizehig. Seitenzehen den Boden berührend, aber dünner als die Mittelzehe.
Im Oligocän und Untermiocän von Nordamerika, im Mittel- und Obermiocän von Europa und im Unterpliocän von China.
Mesohippus Marsh (Fig. 640, 641). J meißelförmig, ohne Marke. P mit Ausnahme von P1 M-artig. Zwischenhöcker der oberen M und Hypostyl kräftig entwickelt. Mittlerer Innenhöcker der unteren M undeutlich zweispitzig. Vorderfuß mit griffelartigem Metacarpale V. Oligocän (White Riverbed) von Dakota M. Bairdii Leidy von Schafgröße. Im Untermiocän von Oregon M. equiceps Cope.
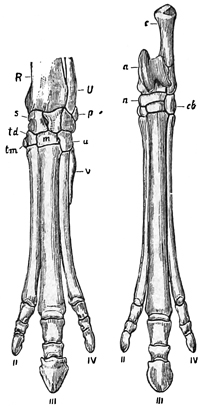
Fig. 640.
Mesohippus celer Marsh. Unt. Miocän. Dakota. A Vorderfuß, B Hinterfuß, 1/3 nat. Gr., restauriert (nach Marsh.)
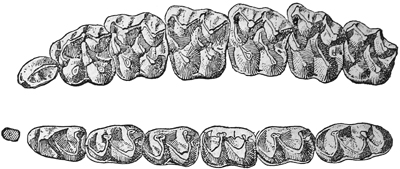
Fig. 641.
Mesohippus Bairdi Leidy sp. Unt. Miocän. Dakota. Obere und untere Backenzahnreihe, nat. Gr. (Nach Osborn.)
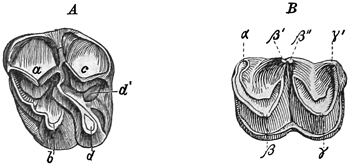
Fig. 642.
Anchitherium aurelianense Cuv. sp. Miocän. Georgensgmünd. Bayern. A oberer, B unterer Molar 1/1.
Anchitherium v. Meyer (Miohippus Marsh?). (Fig. 642.) P mit Ausnahme der kleinen P1 M-artig. Zwischenhöcker der oberen M schmal, jochartig mit den Innenhöckern verbunden. Innenhöcker der unteren M zweispitzig. J mit undeutlicher Marke. Ulna nach unten dünner werdend und distal am Radius angewachsen. Scaphoid und Lunatum unten abgestutzt, beide auf dem breiten niedrigen Magnum ruhend. Unciforme schmal. Metacarpale II und IV viel dünner als Mc III, aber fast ebenso lang und mit drei Zehengliedern. Fibula schwach, griffelartig, mit der Tibia verwachsen. Hinterfuß dreizehig, seitliche Metatarsalia schwach. Die einzige europäische Art, A. aurelianense Cuv. sp. (Palaeotherium hippoides Blv.) charakterisiert das Obermiocän von Frankreich, Deutschland und Österreich. In China noch im Unterpliocän A. Zitteli Schlosser. In Nordamerika schon im Untermiocän A. praestans Cope sp., A. Condoni Leidy.
Archaeohippus Cope. Miocän.
Altippus Douglass. P und M schon etwas erhöht. P2 gestreckt. Metapodien sehr lang. Mittelmiocän. A. taxus Douglass.
Hypohippus Leidy. Zähne ähnlich Anchitherium, jedoch etwas höher. Seitenzehen lang. Mittelmiocän. H. equinus Scott sp., affinis Leidy.
Parahippus (Anchippus) Leidy. (Fig. 643.) Obere J mit Marken. Zähne mäßig erhöht. Orbita hinten geschlossen. Seitenzehen verkürzt. Mittelmiocän. P. (Desmatippus) crenidens Scott sp., nebrascensis Peterson.
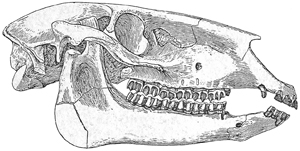
Fig. 643.
Parahippus nebrascensis Peterson. Miocän. Nebraska. Schädel 1/4 nat. Gr. (nach Peterson.)
4. Unterfamilie. Equinae.
Orbita hinten vollständig geschlossen. Backenzähne hypselodont, meist mit reichlichem Zement. P1 sehr klein, öfters fehlend, die übrigen P M-artig. Obere M mit verlängerten Zwischenhöckern, welche zu je zweien eine Marke bilden. Erster Innenhöcker groß, einem Basalpfeiler ähnlich, zweiter klein. Untere M mit großem als Doppelschleife entwickelten Innenpfeiler an der Vereinigung der beiden Halbmonde. J meißelförmig mit einer durch Einstülpung des Schmelzes entstandenen Marke. Radius und Ulna verwachsen, letztere in der distalen Hälfte sehr dünn. Vorder- und Hinterfuß drei- oder einzehig, die seitlichen Metapodien dünn, entweder mit drei kurzen Phalangen versehen oder zu distal zugespitzten Griffelbeinen verkümmert. Leitkiel des dritten Metapodiums über die ganze distale Gelenkfläche reichend.
Fossil in Nordamerika vom Obermiocän bis in das Pleistocän, in Europa, Asien und Nordafrika vom Unterpliocän bis in die Gegenwart, in Südamerika nur im Pleistocän.
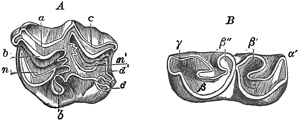
Fig. 644.
Merychippus mirabilis Leidy. A ob. Milchmolar, B unt. Molar. 1/1. (Nach Leidy.)
Merychippus Leidy. (Fig. 644.) P und M mäßig hypselodont, mit viel Zement, Schmelzfältelung der oberen M gering. D brachyodont. Seitenzehen stark verkürzt. Mittelmiocän von Nordamerika. M. sejunctus Cope. Obermiocän. M. insignis Leidy.
Protohippus Leidy. (Fig. 645 D.) Vorderer Innenhöcker. Protocon der oberen M mit dem ersten Zwischenhöcker verbunden. Fältelung des Schmelzes der oberen M gering. M mäßig hypselodont. Vorder- und Hinterfuß dreizehig. Seitenzehen kurz. Obermiocän von Nordamerika. P. perditus, placidus, mirabilis Leidy. Pliocän. P. Cumminsi Cope.
Pliohippus Marsh. Wie vorige Gattung. Seitenzehen zuweilen ohne Phalangen. Pliocän Texas. P. simplicidens Cope.
Hipparion Christol (Hippotherium Hensel). (Fig. 645 B). J mit Marke, C bei beiden Geschlechtern vorhanden. Backenzähne hypselodont, aber niedriger als beim Pferd. P1 klein, hinfällig, P2 dreieckig, länger als die im Querschnitt quadratischen P und M. Protocon der oberen P und M einen isolierten, im Querschnitt ovalen oder kreisrunden Pfeiler bildend. Schmelz an den Marken stark gefältelt. Innenenden der Halbmonde der unteren P und M als aneinanderstoßende langgestreckte Schleifen entwickelt. Zement der P und M sehr dick, an den D dünn. Untere D mit Außenpfeiler. Schädel etwas niedriger als beim Pferd. Vor dem Tränenbein eine lange, unten von der Crista maxillaris begrenzte Grube. Extremitäten dreizehig. Seitenzehen dünn, die Endphalange weit vom Boden abstehend. Körpergröße etwa zwischen der von Esel und Zebra. Hipparion lebte in Rudeln und die im Unterpliocän von Europa allenthalben verbreiteten und überaus häufigen Überreste von H. gracile Kaup (mediterraneum Hensel) gehören zu den wertvollsten Leitfossilien. Außer Europa kommt diese Art auch auf Samos, bei Troja und bei Maragha sowie in Ägypten und in Algier vor. In China ist sie vertreten durch H. Richthofeni Koken, in den indischen Siwalikhügeln durch H. antilopinum Falc. und Theobaldi Lyd. In Südrußland und auf Samos existiert neben ihr auch das kleine H. minus Pavlow. Im Mittelpliocän von Roussillon H. crassum Gervais.
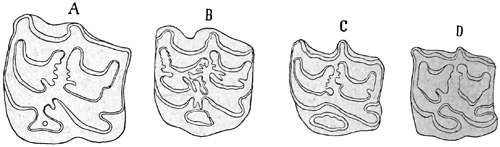
Fig. 645.
Oberer Molar von A Equus Stenonis Cocchi, B Hipparion gracile Kaup, C Neohipparion dolichops Matthew, D Protohippus sp.
Neohipparion Gidley. (Fig. 645 C). Gebiß ähnlich Hipparion, jedoch Schmelzfältelung schwächer, und Protocon der oberen P und M elliptisch wie bei Equus. Seitenzehen etwas stärker reduziert. Nur in Nordamerika. Obermiocän. Pliocän. N. occidentale, gratum Leidy, niobrarense Gidley.
Hippidium Owen (Rhinippus Burmeister). Backenzähne ohne Fältelung, sehr ähnlich denen von Protohippus, sehr niedrig und die oberen stark gekrümmt. Beide Innenhöcker der oberen P und M fast gleichgroß. Nasenbeine ungemein lang, Nasenausschnitt erst oberhalb M3 endend. Metapodien kürzer und gedrungener als bei Equus. Seitenzehen nur als Griffelbeine entwickelt. Unteres Pleistocän. Südamerika.
Onohippidium Moreno wie Hippidium, jedoch mit langer tiefer Grube vor dem Tränenbein. Pleistocän. Südamerika.
Equus Lin. (Fig. 645 A). J mit Marke. Backenzähne stark hypselodont. P1 klein, stiftförmig. Schmelzfältelung viel schwächer als bei Hipparion. Erster Innenhöcker viel größer als der zweite und langelliptisch, jedoch ebenfalls mit dem entsprechenden Zwischenhöcker verbunden. Zementbelag dick. Vorderfuß ohne Trapezium und ohne Rudiment von Mc V. Die seitlichen Metapodien als kurze, unten zugespitzte Griffelbeine endend. Zuweilen finden sich jedoch Individuen, bei welchen, wie bei Hipparion, sie zu vollständigen Seitenzehen ausgebildet sind. Solche Fälle dürfen nicht verwechselt werden mit Mißbildungen, wie das Marsh getan hat, denn es handelt sich bei den letzteren nur um Verdoppelungen der Mittelzehe, was aus der Anwesenheit eines zweiten Os magnum hervorgeht.
Die Gattung Equus tritt zuerst in Ostindien im Pliocän auf, in China anscheinend sogar zusammen mit Hipparion. In Europa ist die älteste Art E. Stenonis Cocchi im Oberpliocän und Altpleistocän, hierauf folgt E. süssenbornensis Wüst und zuletzt E. caballus Lin. im Pleistocän von Europa, Nordasien und Nordafrika. Im indischen Pleistocän E. namadicus Falc. Fossile Reste von Dschiggetai (E. hemionus) und Esel (E. asinus) sind selten, solche von Zebra kennt man aus Diamantseifen von Südafrika. In Nordamerika ist die Gattung Equus im älteren Pleistocän durch E. intermedius Gidley, complicatus und crenidens Cope, im jüngeren durch E. Scotti Gidley, fraternus Leidy etc. vertreten. Die südamerikanische Pampasformation enthält ebenfalls Reste von Equus, E. curvidens Owen, Andium Wagner. Noch vor der historischen Zeit erlosch die Gattung Equus in ganz Amerika. Alle heutigen Pferderassen sind Zähmungsprodukte von altweltlichen Wildpferden.
Über die Abstammung des Pferdes und der übrigen Equiden-Gattungen sind verschiedene Hypothesen aufgestellt worden. Schon Cuvier hatte auf die Verwandtschaft von Palaeotherium und Equus hingewiesen. Huxley bezeichnete Equus, Hipparion, Anchitherium und Paloplotherium (Plagiolophus) als Entwicklungsstufen einer genealogischen Reihe. Durch Kowalewsky wurde eingehend die allmähliche Umformung des Equidenfußes und -Gebisses geschildert, so daß der Stammbaum des Pferdes mit den genannten Etappen gesichert erschien. Die Entdeckung zahlreicher Gattungen in Nordamerika ermöglichte es jedoch, daß Marsh eine weit vollständigere Reihe von Entwickelungsstufen aus nordamerikanischen Formen zusammenstellen und Nordamerika als wirkliche Heimat der Pferde bezeichnen konnte.
Nach dem jetzigen Stand unserer Kenntnis ist der Stammbaum der Equiden etwa:
Europa. (Asien) Nordamerika. Südamerika.
Equus —— Equus —— Equus
? ?
Hipparion Pliohippus —— Hippidium (Onohippidium)
\ Neohipparion
Protohippus
Anchitherium Meryhippus
\
Parahippus Hypohippus
/
Anchitherium
Mesohippus
Epihippus
Orohippus
Eohippus
Tetraclaenodon
Die europäischen Gattungen Palaeotherium, Paloplotherium, Propalaeotherium, Anchilophus, Lophiotherium und Pachynolophus sind für die Stammesgeschichte der Pferde ohne Bedeutung. Sie treten fast gleichzeitig miteinander auf und haben auch zum Teil die gleiche Lebensdauer. Ihr gemeinsamer Ahne ist etwa in einem Hyracotherium der Fauna von Reims zu suchen.
4. Familie. Titanotheriidae.[146]
Nasenbeine frei vorragend, glatt oder mit zwei Knochenfortsätzen versehen. Orbita hinten offen. 3-0.1.4.3.3-0.1.4-3.3. J bei den jüngeren Formen klein, hinfällig, bei den älteren sehr kräftig. Zwischen C und P ein sehr kurzes Diastema. Bei den älteren Formen alle P einfacher als die M, bei den jüngeren P3 und P4 M ähnlich. Obere M mit W-förmiger Außenwand und zwei niedrigen konischen Innenhöckern, untere M aus je zwei ⋁förmigen Halbmonden bestehend. M3 mit drittem Halbmond. Vorderfuß vier-, Hinterfuß dreizehig. Hufe mäßig breit.
Diese völlig erloschene und fast ganz auf das Eocän und Oligocän von Nordamerika beschränkte Familie besteht aus meist sehr großen, plumpen Huftieren, welche in ihrer äußeren Erscheinung teils an Tapir, teils an Rhinoceros erinnern und zuletzt Elefantengröße erreichten. Sie lebten, wie ihr Gebiß vermuten läßt, von saftigen Pflanzen. Die Kronen der Backenzähne sind sehr niedrig. Die oberen M haben zwei Außenhöcker, welche zusammen eine W-förmige Außenwand mit Para-, Meso- und Metastyl bilden. Die beiden konischen Innenhöcker stehen meist ganz isoliert; der vordere ist immer größer als der hintere. Die C sind klein, konisch und etwas gebogen und von den P nur durch eine kurze Lücke getrennt. Die kleinen J sind bei den eocänen Formen vollzählig, bei den oligocänen hinfällig. Die hinteren P unterscheiden sich von den M nur durch ihre geringere Größe, die oberen auch durch das Fehlen des zweiten Innenhöckers, die vorderen P sind etwas einfacher. Im Unterkiefer bestehen alle M und P mit Ausnahme des vordersten aus je zwei V-förmigen Halbmonden. Der Schädel ist lang und niedrig, das Gehirn klein. Bei den jüngeren Formen erheben sich am hinteren Rand der Nasenbeine zwei stumpfkonische Knochenzapfen, die beim Männchen viel größer werden als bei den Weibchen. Die Extremitäten sind denen von Tapir ähnlich, der Carpus breit. Die Carpalia der beiden Reihen stehen alternierend und sind wenig seitlich verschoben. Der Vorderfuß besitzt vier funktionierende, der Hinterfuß nur drei Zehen. Das Calcaneum artikuliert mit der Fibula. Die Endphalangen sind distal abgestumpft und etwas verbreitert.
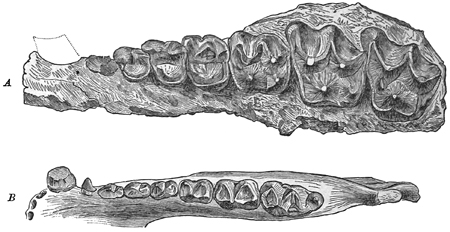
Fig. 646.
Palaeosyops major Leidy. Mittel Eocän (Bridgerbed). Green River. Wyoming. A Backenzähne des Oberkiefers, B Unterkiefer.
In dieser Familie lassen sich verschiedene sehr vollständig geschlossene Formenreihen feststellen.
1. Unterfamilie. Palaeosyopinae.
Sämtliche P einfacher als die M. Drei, selten zwei konische J in jedem Kiefer. C relativ groß. Obere M mit deutlichem Zwischenhöcker. Im Eocän von Nordamerika und von Europa.
Lambdotherium Cope schlankbeinig. Verbindet die Titanotheriiden mit den übrigen Perissodactylen. Untereocän Wyoming.
Palaeosyops Leidy (Limnohyus Marsh). (Fig. 646.) 3.1.4.3.3.1.4.3. C groß, zugespitzt. Obere P dreihöckerig. Vorderfuß vier-, Hinterfuß dreizehig. Häufig im Eocän von Nordamerika.
Limnohyops Marsh. Schädel breit.
Manteoceras Osborn.
Mesatirhinus und Mesorhinus Osborn mit schmalem Schädel. Mittel- und Obereocän.
Dolichorhinus Osborn mit gestrecktem Schädel und langer Schnauze. Obereocän.
Telmatherium Marsh (Fig. 647) lange Nasenbeine mit knöchernen Protuberanzen. Obereocän. Uintabed.
Diplacodon Marsh Nasenbeine kurz, öfters mit zwei knöchernen Auswüchsen. Extremitäten plump. Obereocän. Uintabed.
Brachydiastematherium Boeckh und Maty. Mitteleocän Siebenbürgen. Nur Unterkiefer bekannt.
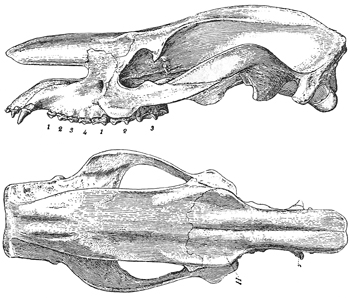
Fig. 647.
Telmatherium cornutum Osborn. Obereocän. Uintabed. Schädel von der Seite und von oben. 1/8 nat. Gr. (nach Osborn.)
2. Unterfamilie. Titanotheriinae.
Ein oder mehrere P den M ähnlich. J mehr oder weniger reduziert. C relativ klein. Im Oligocän von Nordamerika. Einige Zähne auch in Europa gefunden.
2-0.1.4.3.2-0.1.(4)3.3. in geschlossener Reihe, im Milchgebiß 2.1.4.2.1.4. J klein, in verschiedener Zahl vorhanden, zuweilen ganz fehlend. C konisch, im allgemeinen klein. P kleiner als M, aber ähnlich. An der Grenze der Stirn- und Nasenbeine ein paar stumpfe Knochenzapfen, welche bei den jüngsten Gliedern der einzelnen Stammesreihe riesige Dimensionen erreichen.
Von diesen gewaltigen Tieren, welche dem Elefanten nur wenig an Größe nachstanden, hat man zahlreiche Schädel und viele vollständige Skelette im unteren Oligocän, in der unteren Abteilung des White Riverbed von Dakota, Nebraska und Colorado gefunden, welche sich angeblich auf eine große Anzahl von Arten und Gattungen verteilen, deren genauere Abgrenzung jedoch schon durch sexuelle und Altersdifferenzen erschwert wird. Die Extremitätenknochen sind lang und kräftiger, aber doch etwas schlanker als bei Rhinoceros.
Protitanotherium Osborn, riesige Form. Nur Unterkiefer bekannt. Obereocän. Uintabed.
Titanotherium Leidy (Palaeotherium, Menodus Pomel, Brontotherium, Menops Marsh). (Fig. 649.) Oligocän von Diplacodon stammend.
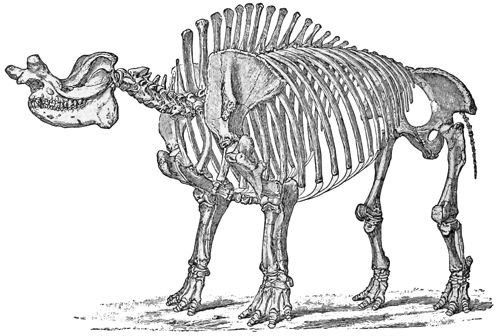
Fig. 648.
Restauriertes Skelett von Titanotherium (Brontops) robustum Marsh. Oligocän. Dakota. ca. 1/40 nat. Gr. (Nach Marsh.)
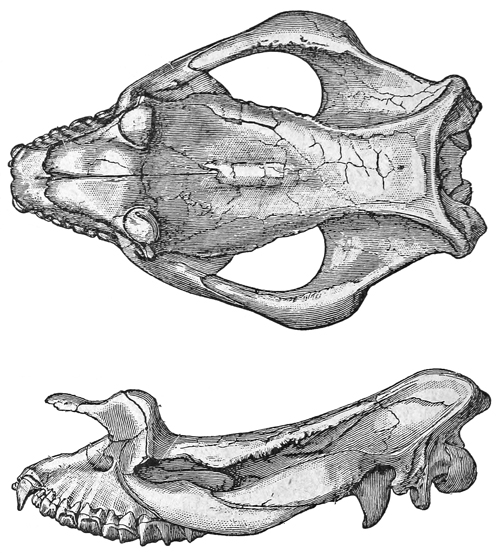
Fig. 649.
Titanotherium (Brontops) dispar Marsh. Oligocän. Dakota. Schädel von der Seite und von oben, 1/8 nat. Gr. (Nach Marsh.)
Megacerops Leidy (Brontops Marsh) (Fig. 648), von Palaeosyops ausgehend.
Allops (Diploclonus) Marsh. Symborodon Cope. Brontotherium (Titanops) Marsh. Mit riesigen Hörnern auf den Nasenbeinen. Ohne J.
Als Menodus rumelicus hat Toula einige Zähne aus Rumänien beschrieben.
5. Familie. Chalicotheriidae.[147]
Vorder- und Hinterfuß dreizehig, semidigitigrad. Endphalangen gespalten, krallenförmig. Astragalus niedrig, Femur mit schwachem dritten Trochanter. Nasenbeine lang, frei vorragend. Orbita hinten nicht umgrenzt. 3-0.0.3.3.3-0.1-0.3.3. J und C schwach oder fehlend. P einfacher als die M; obere P mit nur einem Außen- und einem Innenhöcker. Obere M mit W-förmiger Außenwand und zwei ungleich großen Innenhöckern. Untere M, auch M3, nur aus zwei ⋁förmigen Halbmonden gebildet, deren Enden sich als Spitzen erheben. Im Tertiär von Europa, Nordamerika, im Pliocän von Ostindien und im Pleistocän von China.
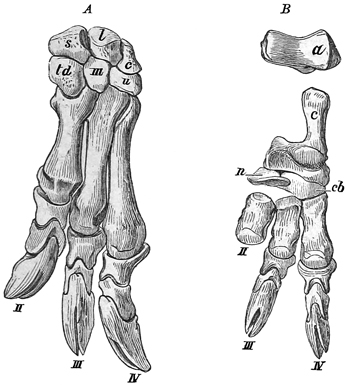
Fig. 650.
Macrotherium giganteum Gervais. Miocän. Sansan. Gers. A Vorderfuß, B Hinterfuß. 1/8 nat. Gr. a Astragalus, c Calcaneum, n Naviculare, cb Cuboideum. (Nach Gervais.)
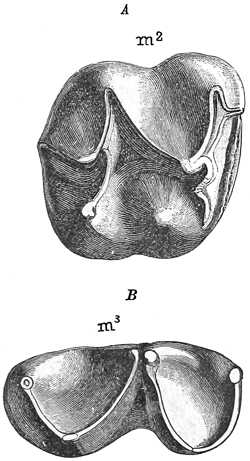
Fig. 651.
Chalicotherium Goldfussi Kaup. Unt. Pliocän. Eppelsheim bei Worms. A zweiter oberer Molar. B letzter unterer Molar. 2/3 nat. Gr.
Die Chalicotheriiden wurden früher in die Ordnung der Ancylopoda eingereiht, welche außerdem auch die Homalodontotheriidae umfaßte, welche jedoch ganz auf Südamerika beschränkt sind, mit jenen bloß die krallenartige Beschaffenheit der Endphalangen gemein haben und im folgenden als Subordnung der Entelonychia besprochen werden. Die Chalicotheriiden hingegen sind, wie das schon aus der Gestalt des Astragalus hervorgeht, unzweifelhaft Perissodactylen, unter welchen ihnen die Titanotheriiden im Zahnbau ungemein nahe stehen. Der Carpus stimmt in der alternierenden Anordnung der einzelnen Knöchelchen mit dem der Perissodactylen überein. Der Tarsus weist Merkmale von Perissodactylen und Condylarthren auf. Die Körperlast ruht niemals auf der Mittelzehe, sondern auf den äußeren Zehen. Die spitzen Endphalangen können, wie bei den Edentaten, weit zurückgebogen werden. In Europa erscheinen die Chalicotheriiden im Oligocän und dauern bis ins Unterpliocän, in Asien sogar bis in das Pleistocän. In Nordamerika sind sie auf Untermiocän und Mittelmiocän beschränkt. Sie sind die Nachkommen der Meniscotheriidae.
Schizotherium (Limognitherium) Gervais, basiert auf Fußknochen, zu welchen die von Gaudry als Chalicotherium modicum beschriebenen Zähne gehören. Oligocän. Phosphorite von Quercy.
Macrotherium Lartet (Anisodon Lartet) (Fig. 650). ?.?.3.3.3.1.3.3. Zwischen C und P eine Lücke. Vorderbeine länger als Hinterbeine. Endphalangen mäßig gekrümmt. Untermiocän von Ulm (Chalicotherium Wetzleri Kowalewsky) und Obermiocän von Frankreich und Deutschland. Bei Sansan (Gers) fand sich ein vollständiges Skelett, bei La Grive St. Alban (Isère) ein Schädel von M. grande Lartet.
Chalicotherium Kaup (Ancylotherium Gaudry). (Fig. 651.) Wie Macrotherium, aber weder obere noch untere J vorhanden. Untere C sehr klein. Unterpliocän. Pikermi, Samos, Eppelsheim, Baltavar, Maragha, Ostindien. Pleistocän von China.
Moropus Marsh. Vorderfuß mit rudimentärem Metacarpale V. Obere M gestreckter als bei Chalicotherium. Untermiocän, Chalicotherium bilobatum Cope — Moropus elatus Marsh —, bis Mittelmiocän von Nordamerika.
4. Unterordnung. Artiodactyla. Owen. Paarhufer.[148] (Paraxonia Marsh.)
Unguligrade oder digitigrade Huftiere mit paarigen Zehen, wovon die beiden mittleren gleichmäßig entwickelt und stärker sind als die öfters stark reduzierten oder verkümmerten seitlichen. Astragalus mit ausgefurchter Trochlea und distaler Gelenkrolle. Hand- und Fußwurzelknochen alternierend. Gebiß vollständig, oder J und C namentlich im Oberkiefer fehlend. Backenzähne bunodont, bunoselenodont oder selenodont. Femur ohne dritten Trochanter. Fibula mit Calcaneum artikulierend.
Im Gegensatz zu den im Niedergang begriffenen Perissodactylen bilden die Artiodactylen gegenwärtig die formenreichste, lebenskräftigste und verbreitetste Gruppe unter den Huftieren. Sie kulminieren in den bunodonten Schweinen und den selenodonten Wiederkäuern, die zwar in auffallender Weise voneinander abweichen, aber gleichwohl gemeinsamen Ursprung besitzen. Das entscheidende Merkmal der Artiodactylen beruht in der paarigen Anzahl der Zehen und der Metapodien. Die beiden mittleren (III u. IV), sind stets gleichmäßig entwickelt, die seitlichen schwächer oder ganz verkümmert und die erste Zehe oder der Daumen nur bei einigen wenigen ausgestorbenen Formen (Oreodontidae, Anthracotheriidae) überhaupt vorhanden. Die Körperlast wird von den beiden Mittelzehen getragen, zwischen denen auch die Extremitätenachse verläuft.
Die Artiodactylen sind teils schlank und hochbeinig, teils plump und kurzbeinig.
Der Schädel erinnert bei den primitiveren Formen an Raubtiere und Unpaarhufer, bei den vorgeschritteneren Typen gewinnt er durch Verlängerung der Gesichtsknochen, durch die Entwickelung von Luftzellen in der Stirnregion, von Stirnzapfen oder Geweihen ein sehr mannigfaltiges Aussehen. Die Tränenbeine nehmen einen relativ großen Raum auf der Schädeloberfläche ein und weisen bei den Wiederkäuern oft ziemlich tiefe Gruben (Tränengruben) zur Aufnahme von Talgdrüsen auf. Die Stirnbeine nehmen stets an der Bedeckung des Gehirns teil und gewinnen zuweilen sehr große Ausdehnung. Bei den Wiederkäuern tragen sie paarige Geweihe oder knöcherne von Hornscheiden umgebene Stirnzapfen. Der Unterkiefer ist bei ihnen lang, schlank und niedrig mit gerade aufsteigendem Kronfortsatz.
Das Gebiß besteht ursprünglich aus 44 Zähnen, die bei den primitivsten Formen eine geschlossene Reihe bilden. Durch Verlängerung der Kiefer oder durch Verkümmerung der vordersten P, zuweilen auch der oberen C, entstehen Lücken zwischen den Vorderzähnen und den Backenzähnen, die bei den Wiederkäuern am größten sind, weil hier der untere C dicht an die J heranrückt und auch die Gestalt und Funktion eines J erlangt. Reduktion und Verlust der J und C beginnt im Oberkiefer, jedoch sind Spuren der oberen J selbst noch beim Embryo vom Schaf erhalten.
Die Backenzähne sind bei den primitiveren und älteren Formen brachyodont, bei den Wiederkäuern nicht selten prismatisch und häufig mit Zement versehen. Die Krone der unteren M war wohl ursprünglich sechshöckerig, aber von diesen sechs Höckern ist der unpaare Vorderhöcker, Paraconid, und der unpaare Hinterhöcker, Mesoconid, schon sehr frühzeitig verschwunden oder zu einer Basalwarze zusammengeschrumpft und an den oberen M verschmilzt der vordere Zwischenhöcker, Protoconulus, schon sehr bald mit dem benachbarten Innenhöcker, Protocon. Von Mitte des Tertiärs an bestehen die M nur mehr aus je zwei paar opponierten Höckern. Der zweite Zwischenhöcker, Metaconulus, der oberen M ist in den meisten Fällen zu dem zweiten Innenhöcker geworden, ein wirklicher Hypocon ist nur ausnahmsweise vorhanden und dann immer aus dem Basalband hervorgegangen. Sind die Höcker konisch, so ist das Gebiß bunodont, nehmen sie ⋁förmige oder halbmondförmige Gestalt an, so wird das Gebiß bunoselenodont oder selenodont. Bei selenodonten oberen M stoßen die Außenhöcker mit ihrer Basis aneinander und entwickeln an der Vereinigungsstelle eine mit vorspringender Vertikalfalte, Mesostyl, versehene Außenwand. Die Innenhöcker sind entweder konisch oder ⋁förmig oder sie umschließen, wenn sie als Halbmonde ausgebildet sind, gebogene Marken. Die unteren M unterscheiden sich von den oberen durch ihre geringere Breite. Ihre vier Höcker sind bei den bunodonten Formen konisch und meist deutlich getrennt, jedoch waren auch bei ihnen, wie das bei den selenodonten Formen stets der Fall ist, die Außenhöcker ursprünglich ⋁förmig. Die Innenhöcker sind bei dieser letzteren Gruppe mehr oder weniger komprimiert und bilden zusammen eine Innenwand. Der letzte untere M hat fast stets einen fünften Höcker oder Halbmond. Völlige Übereinstimmung zwischen P und M kommt bei Artiodactylen fast niemals vor, jedoch können bei Endgliedern mancher Formenreihen die P4 in beiden Kiefern den D oder den M ähnlich und die vorderen P ziemlich kompliziert werden. Im ganzen ist das Gebiß der Artiodactylen typisch heterodont und der Bau der P viel einfacher als der der M. Auch werden die P im Gegensatz zu den M niemals prismatisch.
Im Milchgebiß weichen die JD und CD nur wenig von ihren Nachfolgern, den J und C ab, dagegen bieten die D größere Mannigfaltigkeit als bei den Unpaarhufern. Der letzte obere D hat die Zusammensetzung eines echten M, der letzte untere D trägt im Gegensatz zu den unteren M drei Paare Höcker oder Halbmonde, ist aber vorne viel schmäler als die M. Der obere D3 gleicht in seiner hinteren Partie einem halben M, vorne setzen sich noch drei Höcker oder Halbmonde an. Die übrigen D sind etwas komplizierter als die P, aber ihnen doch sehr viel ähnlicher als den M.
Das Schulterblatt hat schmale dreieckige Form. Schlüsselbeine fehlen. Der Humerus ist bei den primitiveren Formen länger, bei den spezialisierteren aber kürzer als der Radius. Ulna und Radius bleiben entweder getrennt, oder die mittlere Partie der Ulna wird sehr dünn und der distale Teil verschmilzt mit dem Radius. Der Carpus enthält dieselben Elemente wie bei den Perissodactylen und zeigt die nämliche seitliche Verschiebung der distalen Reihe, so daß Magnum und Unciforme stets je zwei Carpalia der proximalen Reihe stützen. Bei vorgeschritteneren selenodonten Formen erfolgt Verschmelzung von Magnum und Trapezoid und öfters Verlust des Trapeziums.