1. Klasse. Pisces.[2] Fische. (Bearbeitet von E. Koken.)
Reading edition
1. Klasse. Pisces.[2] Fische. (Bearbeitet von E. Koken.)
Kaltblütige, meist ausschließlich durch Kiemen atmende Wasserbewohner. Gliedmaßen als Flossen ausgebildet. Haut mit Schuppen, Hautzähnen oder Knochenplatten, selten nackt. Wirbelsäule meist in einer vertikalen Schwanzflosse endigend. Herz mit einfacher Kammer und Vorkammer. Entwickelung ohne Amnion und Allantois.
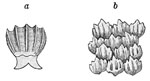
Fig. 1.
a Schuppe von Scyllium canicula. Rezent. 50/1.
b Schuppen von Carcharias (Prionodon) gangeticus. Rezent. Vergr.
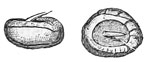
Fig. 2.
Raja antiqua. Große Placoidschuppe mit Stachel. Nat. Gr.
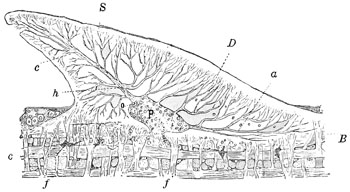
Fig. 3.
Sagittalschnitt durch eine Schuppe von Scymnus Lichia in 60facher Vergr. (Nach O. Hertwig.) S Schmelz, D Dentin, B Basalplatte, p Pulpa, c Lederhaut, h starker, nach oben verlaufender Hauptzahnkanal, d horizontale Dentinkanäle, o Odontoblasten, f Bindegewebfasern.
Zu den Hautgebilden gehören die Schuppen, Hautknochen, Stacheln, Flossenstrahlen und Zähne.
1. Schuppen. L. Agassiz unterschied 4 Arten von Schuppen, denen in seinem System ebenso viele Ordnungen von Fischen entsprechen.
a) Die Placoidschuppen der Selachier und Holocephalen. Es sind meist kleine rhombische Plättchen, stern-, blatt-, pfeilspitzen-, schaufelförmige oder auch konische Gebilde, die dicht nebeneinander liegen und ein rauhes Mosaikpflaster (Chagrin) bilden. Häufig haben sie auf verschiedenen Körperteilen verschiedene Form und zuweilen zeichnen sich (so bei Rochen) einzelne durch beträchtliche Größe aus und erscheinen als dicke, außen rauhe oder mit Stacheln bewehrte Platten. Die Placoidschuppen entstehen aus Papillen des Corium, über welche sich die basale Schicht der Epidermis hinwegzieht. Die letztere lagert Schmelz ab, während die Zellen im Innern der Papille Zahnbein (Dentin) entstehen lassen. Dazu tritt die in der Lederhaut selbst gebildete Basalplatte. Die Placoidschuppen (Fig. 1-3) haben demnach die Struktur der Zähne. Die in die Haut eingesenkte Basalplatte besteht aus dichtem phosphorsaurem Kalk, der von senkrechten Bündeln von Bindegewebsfasern durchzogen ist; der sich frei erhebende Oberteil ist aus Dentin zusammengesetzt und von gröberen und feineren Kanälen durchzogen. Die dünne glänzende Rinde, welche den Dentinkern überzieht, entspricht histologisch und chemisch dem Schmelz, ist sehr hart und strukturlos.
Die Kanäle des Dentins entspringen aus einer mit Bindegewebe (des Coriums) und Zahnzellen (Odontoblasten) erfüllten Höhle (Pulpa p) und vergabeln sich nach außen in immer feinere Äste. Die einfache Pulpa kann auch durch ein Bündel größerer Kanäle ersetzt werden. Die Substanz des Dentins ist phosphorsaurer Kalk mit kleinen Mengen von Fluorcalcium und kohlensaurem Kalk.
Die Placoidschuppen fallen öfters aus und werden wie die Zähne durch Ersatzplättchen verdrängt.
b) Ganoidschuppen (Fig. 4, 5) haben durchschnittlich ansehnlichere Größe als die Placoidschuppen und bedecken meist den ganzen Rumpf. Wo sie gedrängt vorkommen, stehen sie in diagonalen Reihen, welche den sich kreuzenden Faserrichtungen des Corium entsprechen. Rhombische Ganoidschuppen sind meist durch vorspringende Zapfen am Vorderrand, welche in eine Rinne auf der Innenseite der benachbarten Schuppe eingreifen, beweglich verbunden; rundliche Schuppen liegen dachziegelartig, mit imbrizierenden Rändern, übereinander. Die knöcherne, von zahlreichen Kanälen durchzogene Basalplatte ist meist dick mit einer glänzenden, schmelzartigen Schicht (Ganoin) überzogen, welche verschiedenartig verziert sein kann.
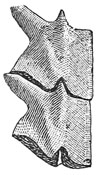
Fig. 4.
Schuppen von Polypterus Bichir Bonap. Rezent. (Nat. Gr.)
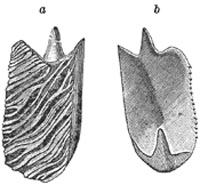
Fig. 5.
chuppe von Cosmoptychius striatus Ag. sp. Steinkohlenformation. a von außen, b von innen. 3/1.
Nach Gegenbaur und Klaatsch ist der Ganoinbelag nicht eigentlicher Schmelz, sondern entstanden durch Konkreszenz von kleinen Hautzähnchen über der vorher angelegten Basalplatte. Er entspricht also auch dem Dentin der Placoidschüppchen. Indessen grenzt sich der Schmelzbelag häufig deutlich und charakteristisch ab (Scupin, l. c.) und kann auch wiederum ganz fehlen (Pycnodonten, Rhynchodontiden zum Teil).
Die Basalplatte zeigt namentlich bei paläozoischen Gattungen große Mannigfaltigkeit (Fig. 6, 7). Die tieferen Lagen enthalten zahlreiche Knochenkörperchen und Haversische Kanäle, die oberen sind häufig nur von feinen Dentinröhrchen durchzogen (Ostein, Osteinkanäle Scupins).
c) Die Cycloid- und Ctenoidschuppen (Fig. 8, 9) stimmen in ihrer Zusammensetzung miteinander überein. Beide sind dünn, elastisch, von rundlicher, elliptischer, vier-, fünf- oder sechsseitiger Gestalt. Sie bestehen aus einer homogenen glasigen Deckschicht aus phosphorsaurem Kalk und aus einer in Alkalien löslichen, lamellar geschichteten Basis von Bindegewebesubstanz. Die Deckschicht (Hyalodentin Hofers) ist ein modifiziertes Dentin.
Die Schuppen entwickeln sich in besonderen Taschen des Corium und greifen meist dachziegelartig übereinander. Die Cycloidschuppen haben rundliche Form und einfachen Hinterrand. Bei den Ctenoidschuppen ragen am Hinterrand kleine Zacken und Zähnchen hervor, welche zuweilen in mehreren Reihen hintereinander stehen und einen ansehnlichen Teil des hinteren Feldes bedecken können. Sie haben die Zusammensetzung der Oberflächenschicht. Von dem sog. Primitivfeld strahlen meist nach vorn und nach hinten divergierende, zuweilen auch anastomosierende Linien aus, die nichts anderes als rißartige Unterbrechungen der Deckschicht sind. Durch Verstärkung und Zerteilung des Leistenreliefs der Schuppen können kleine und größere Stacheln entstehen. Zuweilen ist nur ein einziger Stachel auf kleiner Basalplatte vorhanden, so daß die Form des Placoidzahns resultiert, indessen sind diese anderer Entstehung und nicht direkt homolog.
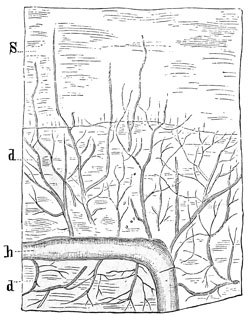
Fig. 6.
Vertikalschnitt durch die Schuppe von Lepidosteus. 300/1. (Nach O. Hertwig.) S Schmelz, h Haversischer Kanal, d Dentinröhrchen.
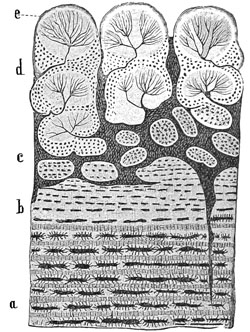
Fig. 7.
Vertikalschnitt durch eine Schuppe von Glyptolepis, stark vergr. (Nach Pander.) a, b Isopedinschicht mit spindelförmigen Knochenzellen, c Knochenschicht mit Haversischen Kanälen, d Schicht mit fein verästelten Dentinröhrchen (Kosmin), e Schmelz.
Zwischen den oberen Lamellen der Basis sind oft Knochenkörperchen nachweisbar; die tieferen sind von fibrillärer Beschaffenheit (sklerosiertes Bindegewebe) und enthalten Knochenkörperchen nur selten und nur in den untersten Lagen. Derartige Schuppen unterscheiden sich nicht wesentlich von dünnen Ganoidschuppen.
Große Knochenplatten bei Cataphracten, Plectognathen, Lopthobranchiern beruhen wahrscheinlich auf Konkreszenz schuppenartiger Anlagen.
Die Schuppen der Seitenlinie sind bei Ganoiden und Teleostiern durchbohrt und oft von etwas abweichender Form.
Die größeren Platten, Schilder, Stacheln etc., welche teils den Rumpf, teils den Kopf vieler Fische (Placodermi, Siluridae, Accipenseridae) bedecken, bestehen entweder aus gleichmäßiger Knochensubstanz oder aus Lagen von Ostein, Dentin und Schmelz. Bei den Accipenseriden lassen sie sich von normalen Ganoidschuppen ableiten, in die sie am Schwanz oft direkt übergehen. Bei den Panzerwelsen sind Zähnchen, welche den Placoidschüppchen vergleichbar sind, mit einer solchen Knochenplatte verbunden aber nicht verwachsen.
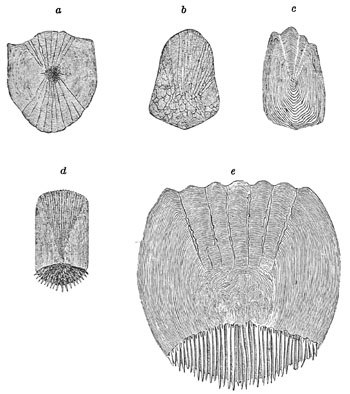
Fig. 8.
Cycloidschuppe von
a Leuciscus,
b Mormyrus,
c Naucrates,
Ctenoidschuppe von
d Solea,
e Holacanthus (stark vergrößert.)
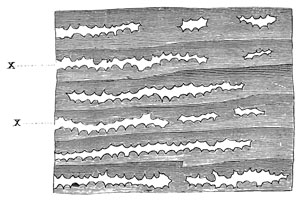
Fig. 9.
Oberfläche einer Pleuronectes-Schuppe, um die Lücken (x) zwischen den erhabenen konzentrischen Leistchen zu zeigen. Sehr stark vergr. (Nach Baudelot.)
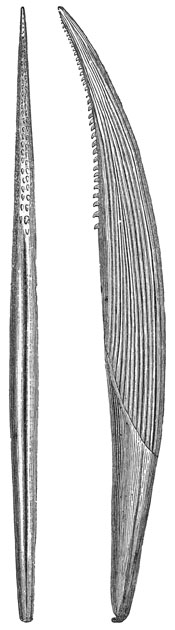
Fig. 10.
Rückenflossenstachel von Hybodus reticulatus Ag. aus dem oberen Lias von Boll.
Größere Stacheln (Ichthyodorylithen) (Fig. 10) kommen am Vorderrande der Flossen oder am Kopf bei Fischen mit knorpligem Innenskelett vor (Selachier, Holocephalen). Sie stecken meist mit einer verlängerten Basis im Fleisch und treten gern mit einer knorpligen Platte oder Unterlage in Verbindung. Sie bestehen, wie die Zahngebilde der Placoidfische, aus Dentin mit Pulpa oder aus Vasodentin. Sie zeichnen sich oft durch reiche Verzierung (Längsrippen, Höcker, Randzähnchen etc.) aus.
Hautgebilde mesodermalen Ursprungs sind auch die äußeren Teile der Flossen (Hornfäden, Strahlen). Die Hornfäden (Ceratotrichia) sind bei den Haien elastische Fasern, bei den Dipnoern zellenhaltig. Bei den Ganoiden und Teleostiern werden die embryonalen Hornfäden später von knöchernen Flossenstrahlen verdrängt, die sich von Knochenschuppen ableiten. Sie sind aus zwei dicht aneinanderliegenden Hälften zusammengesetzt, die bei den Weichflossen durch Querteilung in zahlreiche Stückchen gegliedert werden, nach außen häufig fächerförmig zerteilt sind. Kommen harte und weiche Strahlen in einer Flosse vor, so stehen die ungegliederten voran.
Die Flossenstrahlen der unpaaren Flossen werden in der Regel von flachen, knorpligen oder knöchernen Trägern gestützt, mit denen sie gelenkig verbunden sind. Die Träger (Axonoste) (Fig. 11) gehören dem Innenskelett an. Sie schieben sich zwischen die Dornfortsätze der Wirbel und werden je nach ihrer Lage (dorsal oder ventral) als Interneuralia oder Interhämalia bezeichnet.
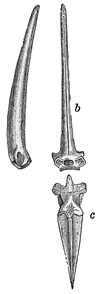
Fig. 11.
a, b Flossenstrahlen aus der Rückenflosse eines Hartflossers, c Flossenträger.
Bei manchen Selachiern (Pristiophorus, Raja) findet zwischen den Placoidschuppen der äußeren Haut und den Zähnen ein allmählicher Übergang statt, und da beide im wesentlichen dieselbe histiologische Zusammensetzung aufweisen und die Zähne nur bei den höheren Fischen in feste Verbindung mit den Kopfknochen treten, so müssen die Zähne ebenfalls den Hautgebilden zugezählt werden.
Bei den Fischen können sämtliche Knorpel oder Deckknochen, welche an der Mund- und Kiemenhöhle teilnehmen, Zähne tragen. Sie gehen aus der Verkalkung von Hautpapillen hervor und bestehen aus einer frei vorragenden Krone und einer von Bindegewebe umgebenen oder mit dem Kopfskelett verbundenen Wurzel. Form und Größe sind je nach ihrer Funktion außerordentlich verschieden. Von den winzigen »Sammtzähnchen« des Barsches zu den langen Bürstenzähnen des Wallers, zu den kräftigen Hechelzähnen des Hechtes und den gewaltigen Kegel- oder Dolchzähnen von Dendrodus oder Portheus existieren alle Übergänge. Bei den Haien kommen Zähne von der Form einer einseitig abgeplatteten Dolchklinge mit oder ohne Nebenzacken häufig vor. Zum Zermalmen der Nahrung dienen teils stumpfkonische, teils bohnenförmige, kugelige oder pflastersteinartige Zähne, und bei gewissen Selachiern fügen sich die Zähne zu einem geschlossenen Mosaik aneinander. Eigentümliche schneidende Zahnplatten von ansehnlicher Größe finden sich bei Diodon und Chimaera.
Ebenso mannigfaltig wie die Form ist auch die Zahl der Zähne bei den Fischen. Während die Dipnoer, Chimaeriden und Gymnodonten im ganzen nur 4 bis 6 Zähne besitzen, zählen dieselben bei vielen Haien und Knochenfischen nach Hunderten.
Die Befestigung auf der knorpeligen oder knöchernen Unterlage wird in der Jugend bei fast allen Fischen durch faseriges Bindegewebe bewerkstelligt, und bei Haien und vielen Knochenfischen bleibt diese Art der Befestigung zeitlebens, so daß die Zähne nach längerem Kochen leicht von der Basis abgestreift werden können. Bei Knochenfischen und vielen Ganoiden tritt eine Verwachsung der Zahnwurzel mit dem Knochen ein, wobei auf letzterem meist eine sockelartige Erhöhung dem Zahne entgegenwächst. Ausnahmsweise findet man auch in Höhlungen (Alveolen) eingefügte Zähne. In der Regel entwickeln sich die Ersatzzähne neben den fungierenden Zähnen und schieben dieselben nach und nach aus.
Mit wenigen Ausnahmen besteht die Zahnkrone aus Dentin, Vasodentin und Schmelz, die Wurzel aus Vasodentin oder Osteodentin. Der Schmelz (Placoinschmelz) bildet eine sehr dünne, glasharte, glänzende, homogene Deckschicht, welche unter polarisiertem Licht Doppelbrechung erkennen läßt. Die Schmelzschicht schließt zuweilen noch die äußersten Ausläufer der Dentinröhrchen ein. Sie ist aus phosphorsaurem Kalk mit etwas Fluorcalcium, wenig kohlensaurem Kalk, phosphorsaurer Magnesia und sehr geringen Mengen organischer Substanz zusammengesetzt. Das Dentin (Elfenbeinsubstanz) enthält kein Fluorcalcium, viel mehr organische Beimengung als der Schmelz, ist weniger hart und löst sich in Säure langsamer auf. Das eigentliche Dentin (Fig. 12) wird lediglich von sehr feinen, nach außen verästelten Röhrchen durchzogen, die von der Pulpa oder deren Verzweigungen ausgehen und fadenförmige Verlängerungen der Zahnzellen (Odontoblasten) enthalten. Sehr häufig wird die Dentinsubstanz auch von groben, anastomosierenden Kanälen (Haversische Kanäle) durchzogen, in welchen Blutgefäße verlaufen und deren Wände mit Odontoblasten ausgekleidet sind. Von diesen groben Kanälen gehen alsdann in peripherischer Richtung feine Dentinröhrchen aus. Diese gefäßreiche Modifikation der Zahnsubstanz heißt Vasodentin (Fig. 13, 14).
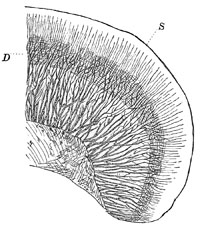
Fig. 12
Vertikalschnitt durch den Zahn von Lepidotus (Sphaerodus) gigas Ag. aus Dentin und Schmelz bestehend (stark vergrößert.)
Die Wurzel der Fischzähne unterscheidet sich von der Krone durch Mangel eines Schmelzüberzuges. Sie besteht entweder gänzlich aus Vasodentin, oder es kommen noch Knochenzellen mit ausstrahlenden Primitivröhrchen hinzu (Osteodentin).
Das innere Skelett der Fische (Fig. 15) zeigt, daß in den verschiedenen Ordnungen dieser Klasse fast alle Entwickelungsstadien, welche bei den höheren Wirbeltieren nur vorübergehend durchlaufen werden, als dauernde Einrichtungen im ausgewachsenen Zustand fortbestehen. Der ganze Prozeß der allmählichen Gliederung, Verknorplung und Verknöcherung der Wirbelsäule und des übrigen Skeletts ist in den verschiedenen Abteilungen der Fische veranschaulicht, und namentlich die fossilen Formen aus paläozoischen und mesozoischen Ablagerungen gewähren in dieser Hinsicht die bemerkenswertesten Aufschlüsse.
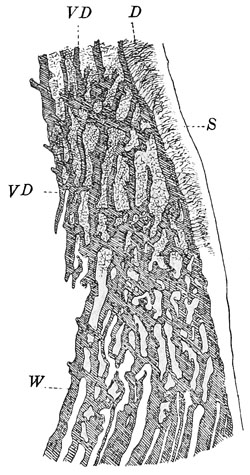
Fig. 13.
Vertikalschnitt durch einen Teil eines Hechtzahnes. (Nach Sternberg.) Stark vergr. S Schmelz, D Dentin, VD Vasodentin, W Zahnwurzel.
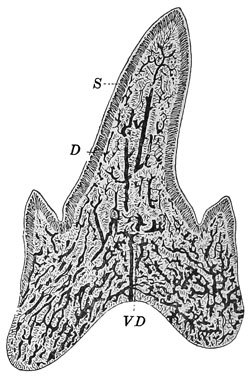
Fig. 14.
Vertikalschnitt durch einen Otodus-Zahn. Vergr. VD Vasodentin, D Dentin, S Schmelz.
Wirbelsäule.
Die erste Anlage des inneren Skeletts beschränkt sich auf die Chorda dorsalis. Schon bei Amphioxus tritt hierzu ein membranöses Skelettsystem, in dem sich die in der Längsrichtung noch zusammenhängenden oberen und unteren Bogen und die myocommatischen Querlamellen unterscheiden lassen, bzw. die an den Bogenlamellen durch ihren Ansatz hervorgerufenen Gewebsverstärkungen.
Bei den Cyclostomen entwickeln sich dorsal im Anschluß an die austretenden Spinalnerven kleine Knorpelstücke (je zwei jederseits in jedem Metamer), die im Schwanz zu einer Längsleiste verschmelzen. Entsprechende ventrale Bildungen sind nur im Schwanz beobachtet.
Diese schon bei den Cyclostomen nachweisbaren oberen und unteren Bögen lassen bei den typischen Fischen die metamere Gliederung der Wirbelsäule entstehen, wobei die Chorda selbst noch häufig ungegliedert verharrt. Die Chordascheide ist verstärkt, die ursprüngliche Elastica nach außen gedrängt. Von den Knorpelstücken der Bogen geht eine Zerstörung der Elastica aus und Knorpelzellen wandern in die Scheide ein. Damit ist die metamere Sonderung auch der Wirbelkörper angebahnt, deren Ausarbeitung im einzelnen sehr verschiedene Wege geht.
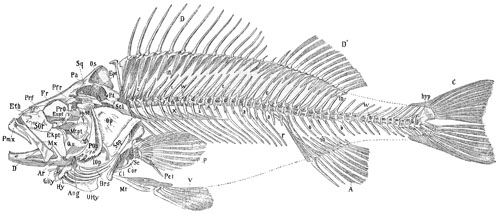
Fig. 15.
Skelett vom Barsch (Perca fluviatilis).
I. Kopf: Fr Frontale (Stirnbein), Eth Ethmoideum, Prf Präfrontale, Pfr Postfrontale, Pa Parietale, Sq Squamosum, OS Occipitale superius, EpO Epioticum, PrO Prooticum, SOr Suborbitalia, HyM Hyomandibulare, Sy Symplecticum, Qu Quadratum, Mtpt Metapterygoid, Enpt Entopterygoid (Mesopterygoid), Ekpt Ektopterygoid, Mx Maxilla, Pmx Prämaxilla, Ar Articulare, Ang Angulare, D Dentale, POp Präoperculum, Op Operculum, Sop Suboperculum, IOp Interoperculum, Hy Hyoideum, (Ceratohyale), GHy Glossohyale (Zungenbein), UHy Urohyale, Brs Kiemenhautstrahlen.
II. Extremitäten: Pt Posttemporale, Scl Supraclavicula, Cl Clavicula, Cor Coracoid, Sc Scapula, Pcl Postclavicula, P Brustflosse (Pectoralis), Mt Metapterygium, V Bauchflosse (Ventralis), D u. D' erste und zweite Rückenflosse (Dorsalis), C Schwanzflosse (Caudalis), A Afterflosse (Analis), in Interneuralia, ih Interhämalia, hyp Hypurale.
III. Wirbelsäule: w Wirbelkörper, a Parapophysen, b Hämapophysen, c Neurapophysen, r Rippen, x Gräten.
Ein vollständiger Wirbel besteht aus einem Wirbelkörper (Zentrum), zwei oberen, den Rückenmarkkanal umgebenden Bogenhälften (obere Bögen, Neurapophysen) und zwei unteren Bogenstücken (Hämapophysen). Die oberen Bogen vereinigen sich zu einem dorsalen Dornfortsatz (processus spinosus oder spina dorsalis), die unteren können entweder in der Schwanzregion durch Vereinigung einen ventralen Dornfortsatz (spina ventralis) bilden (Fig. 18) oder sie bleiben als untere Querfortsätze (Parapophysen) getrennt.
Bei vielen mit knorpeliger Wirbelsäule versehenen Fischen (Selachier, Accipenseriden) schieben sich zwischen die oberen und unteren Bögen knorpelige Schaltstücke (Intercalaria) ein, welche die Bögen zuweilen an Größe übertreffen (Fig. 16). Es entspricht dies vielleicht dem Auftreten doppelter oberer und unterer Bogen in jedem Segment bei Petromyzon.
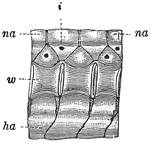
Fig. 16.
Drei Schwanzwirbel von Centrophorus von der Seite. (Nach Hasse.)
w Wirbelkörper, na oberer Bogen, i Intercalarstück, ha unterer Bogen.
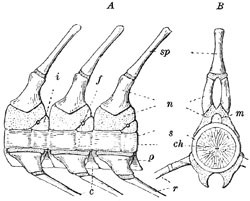
Fig. 17.
Wirbel aus der Rumpfregion des Stör. A von der Seite, B in vertikalem Querschnitt.
sp. d. oberer Dornfortsatz, n oberer Bogen (Neurapophyse), p Parapophyse, ha unterer Bogen (Hämapophyse), m Rückenmarks- (Medullar-) Kanal, ch Chorda dorsalis, s Chordascheide, i Intercalaria, r Rippen, f Durchtrittsöffnungen der Nerven. (Der Knorpel ist punktiert, der Knochen weiß.) (Nach R. Hertwig.)
Die Wirbelcentra oder Wirbelkörper enthalten bei den Knorpelfischen meist noch einen Teil der Chorda, welche als weicher zentraler Strang die ganze Wirbelsäule durchsetzt und die Zwischenräume zwischen den einzelnen Wirbeln teilweise ausfüllt. Die knorpeligen, verkalkten oder verknöcherten Vorder- und Hinterwände der Wirbelkörper sind wie Doppelkegel tief ausgehöhlt (amphicöl) und verleihen dem Wirbelzentrum dadurch sanduhrähnliche Gestalt. Bei den Selachiern tritt meist eine teilweise Verkalkung, bei den Ganoiden und Knochenfischen eine Verknöcherung des ursprünglichen Knorpelzentrums ein. Während aber die Knochenfische meist eine vollständige Umwandlung des ganzen Wirbels mit all seinen Fortsätzen in kompakte, dentinartige Knochensubstanz aufweisen, lassen die Ganoiden, namentlich der paläozoischen und mesozoischen Ablagerungen, die verschiedensten Stadien des Verknöcherungsprozesses erkennen. Bei vollkommen verknöcherten Wirbeln legen sich die vorderen und hinteren Ränder der amphicölen Wirbelzentren dicht aneinander und sind überdies durch Ligamente verbunden, die Chorda füllt nur noch die intervertebralen Zwischenräume aus und bildet keinen kontinuierlichen Strang. Die Bögen verwachsen fest mit dem Zentrum, und am Vorderrand der oberen Bögen ragt häufig ein kurzer Fortsatz (Zygapophyse) vor, welcher sich jederseits über einen ähnlichen hinteren Fortsatz des Zentrums legt und so die Verbindung benachbarter Wirbel verstärkt (Fig. 18). In der hinteren oder Schwanzregion vereinigen sich die unteren Bogen zu einem ventralen Dornfortsatz (Fig. 18); in der vorderen Rumpfregion ragen die unteren Bogen als kurze Parapophysen vor und dienen beweglichen Rippen als Träger. Eigentliche Querfortsätze (Diapophysen, processus transversi), an welche sich bei den höheren Wirbeltieren die Rippen anlegen, und welche von den oberen Bogen ausgehen, kommen nur ganz ausnahmsweise (Polypterus, Pleuronectes) neben den Parapophysen vor. Bei den Cyclostomen und Chimären fehlen Rippen vollständig, bei den Selachiern und Knorpelganoiden sind sie meist schwach entwickelt oder rudimentär. In keinem Fall vereinigen sich die Rippen auf der Ventralseite miteinander, weder direkt, noch durch das Zwischentreten eines Sternums. Nicht zu verwechseln mit Rippen sind die aus verknöcherten Sehnen entstehenden Gräten; dünne, an einem Ende häufig vergabelte Knochenfäden, welche zwischen den Muskeln liegen und sich an die Wirbelzentren, Bogen oder Rippen anheften.
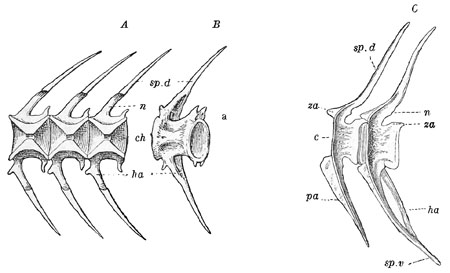
Fig. 18.
Schwanzwirbel vom Karpfen. A der Länge nach in sagittaler Richtung durchschnitten, B ein einzelner Wirbel in halb seitlicher Ansicht. C letzter Rumpf- und erster Schwanzwirbel. sp. d oberer Dornfortsatz, n oberer Bogen, ch Chorda dorsalis, c Zentrum, za Zygapophysen, ha Hämapophyse. (Nach R. Hertwig.)
Die Zahl der Fischwirbel schwankt je nach den verschiedenen Gruppen ganz außerordentlich. Bei gewissen Knochenfischen (Ostracion) zählt man nur 15, bei anderen 70 bis 80, beim Aal etwa 200, bei manchen Haien 350 bis 400.
Das hintere Ende der Wirbelsäule ist bei allen Fischen im Embryonalzustand diphycerk oder heterocerk. Im ersteren Fall verlängert sich die Wirbelsäule geradlinig bis zum Körperende und ist oben und unten symmetrisch von der Schwanzflosse umgeben. In diesem embryonalen Stadium verharren zeitlebens die Cyclostomen, Dipnoer und viele Crossopterygier (Fig. 19). Bei den heterocerken Fischen (Haien, Rochen, vielen Ganoiden) krümmt sich die Wirbelsäule hinten aufwärts und tritt vollständig in den oberen Lappen der Schwanzflosse ein, welcher sich meist verlängert und den unteren an Größe übertrifft (Fig. 20). Zwischen diphycerker und heterocerker Schwanzbildung gibt es vielfache Übergänge. So verlängert sich beim hetero-diphycerken Schwanz die Wirbelsäule mit schwacher Aufbiegung bis zum Körperende und ist oben und unten von Strahlen umgeben; aber die Strahlen des oberen Lappen bleiben erheblich an Stärke hinter denen des unteren zurück. Zuweilen ist auch die äußere Schwanzflosse aus zwei gleichen Lappen zusammengesetzt, während sich die Wirbelsäule aufwärts biegt und eine Strecke weit in den oberen Lappen eindringt (Fig. 21). Derartige Flossen sind äußerlich homocerk, innerlich heterocerk. Beim hemi-heterocerken Schwanz ist der obere Lappen der äußerlich gleichlappigen Schwanzflosse noch eine Strecke weit oder auch bis zur Spitze beschuppt.
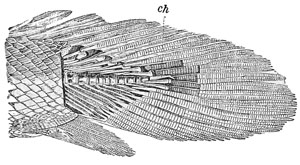
Fig. 19.
Diphycerke Schwanzflosse von Polypterus Bichir. (Nach Kölliker.)
ch hinteres Ende der Wirbelsäule.
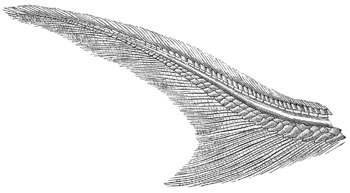
Fig. 20.
Äußerlich und innerlich heterocerke Schwanzflosse vom Stör.
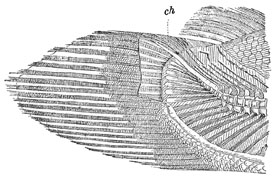
Fig. 21.
Innerlich heterocerke Schwanzflosse von Amia. (Nach Kölliker.) ch verknorpeltes Hinterende der Wirbelsäule mit dem Chordastrang.
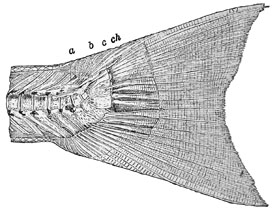
Fig. 22.
Äußerlich homocerke (stegure) Schwanzflosse vom Lachs (Salmo Salar). (Nach Kölliker.)
ch Ende der Chorda (Schwanzfaden), a, b, c obere Deckknochen des Schwanzfadens.
Bei sämtlichen Cycloid- und Ctenoidfischen ist die Schwanzflosse äußerlich homocerk (Fig. 22). Die Wirbelsäule endigt meist vor der Flosse mit einem Wirbel, an welchen sich eine breite, vertikale, fächerförmige Schlußplatte (Hypurale) anschließt, die aus der Verschmelzung mehrerer Flossenträger und Hämapophysen entsteht. Über dieser Schlußplatte liegt meist ein kurzer, knorpeliger, aufwärts gerichteter Fortsatz der Chorda oder ein schräg aufwärts gerichtetes, griffelartiges Knochenstück (Urostyl). Den homocerken Schwanzflossen liegt somit eine innerliche Heterocerkie zugrunde.
Sämtliche paläozoischen Fische haben diphycerke oder heterocerke Schwänze, hemiheterocerke Formen beginnen im Jura. Die cretaceischen, tertiären und lebenden Knochenfische haben im ausgewachsenen Zustand homocerke Schwanzflossen, durchlaufen aber in der Jugend ein diphycerkes oder heterocerkes Stadium.
Schädel.
Das embryonale Primordialcranium der Fische ist knorpelig und entwickelt sich aus der Chorda dorsalis, die eine Strecke weit in die Schädelbasis eindringt.
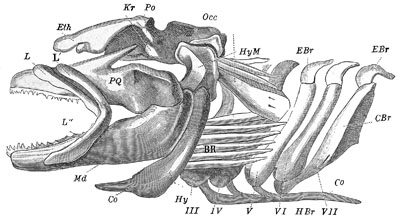
Fig. 23.
Schädel und Kiemenkorb von Squatina vulgaris. (Nach Gegenbaur.) Eth Ethmoidalregion (Rostrum), Po Postorbitalfortsatz, Occ Occipitalregion, PQ Palatoquadratum, L vorderer, L' hinterer, L'' unterer Labialknorpel, Md Unterkiefer (Mandibula), HyM Hyomandibulare, Hy Hyoideum, Co Copula des Zungenbeinbogens, III-VII Kiemenbögen (Branchialia), EBr Epibranchiale, CBr Ceratobranchiale, HBr Hypobranchiale, Co' hinterste Copula der Kiemenbögen, BR Kiemenstrahlen des Hyoideum.
Bei den Selachiern (Fig. 23) besteht das Kopfskelett dauernd aus einheitlichem Knorpel, der oberflächlich mit Plättchen aus phosphorsaurem Kalk inkrustiert, seltener eine auch in die Tiefe greifende Verkalkung aufweist. Die Schädelkapsel enthält das Zentralnervensystem und zwar hinten die Hemisphären des großen und kleinen Gehirns, in der Mitte die Sehhügel (lobi optici), im vorderen Teil die Riechnerven; mit der Schädelkapsel vereinigen sich sehr früh die in der Anlage selbständigen Gehörorgane, Augen und Nasengruben. Das Visceralskelett besteht aus einer Anzahl verschiedenartig ausgebildeter knorpeliger Bögen, von denen der vorderste, der sog. Mandibularbogen, die Mundhöhle umrandet und sich durch Größe und Bezahnung auszeichnet. Der obere Teil, das Palatoquadratum, ist mit dem unteren, dem Unterkiefer, gelenkig verbunden; bei den meisten Haifischen ist er durch Bänder, die von seinem niedrigen, vorderen Fortsatze ausgehen, an den Schädel geheftet. Bei den primitiven Haien (Notidanus, Hybodus) erhebt sich das Palatoquadratum hinten zu einem viel breiteren Fortsatz, der mit dem postorbitalen Vorsprung des Schädels in gelenkartiger Fläche zusammenstößt. Der zweite Visceralbogen oder Hyoidbogen berührt ebenfalls mit seinem oberen Abschnitt, Hyomandibulare, die Gehörregion des Schädels, während sein unterer als Zungenbein, Hyoid, ausgebildet ist. Das Hyomandibulare ist bei Notidanus, Hybodus etc. ein langer, schmaler Knorpel, der sich ganz dem Hinterrand des Palatoquadratum anschmiegt; bei den meisten Haien ist es aber verkürzt und verbreitert und weiter nach hinten geschoben.
Die sog. Lippenknorpel (Fig. 23) werden häufig als präorale Kiemenbögen bezeichnet, oder als die knorpeligen Äquivalente des Maxillare bzw. Prämaxillare (unter Bezug auf Beobachtungen bei Polyodon) oder auch als neue Erwerbungen bezw. Abgliederungen. Ihr Auftreten bei älteren fossilen Formen läßt sich zu Beweisen einstweilen nicht verwerten, es ist immerhin beachtenswert, daß sie zuweilen selbst alten Formen fehlen oder sehr klein sind. Ontogenetisch treten sie später auf als die eigentlichen Visceralbogen.
Hinter den Zungenbeinbogen folgen noch fünf (selten sechs oder sieben) Visceralbögen, welche als Stützen der Respirationsorgane dienen, aus mehreren Stücken zusammengesetzt sind und ventral durch mediane Zwischenknorpel (Copulae) verbunden werden. Sowohl die Kiemenbögen als auch das Hyoideum, bei alten Formen auch das Hyomandibulare, tragen knorpelige Kiemenstrahlen. Bei den Holocephalen verschmelzen Palatoquadratum und Hyomandibulare miteinander und mit der Schädelkapsel. Der Unterkiefer wird dadurch autostyl, d. h. direkt an den Schädel eingelenkt.
Bei den Knorpelganoiden (Accipenser, Spatularia) nehmen bereits knöcherne Elemente an der Zusammensetzung des Kopfes teil. Die Schädelkapsel bleibt zwar der Hauptsache nach knorpelig, aber außen entstehen eine Anzahl Knochenplatten, welche das Cranium oben und auf den Seiten bedecken, und ebenso entwickelt sich an der Schädelbasis ein langer schmaler Hautknochen (Parasphenoid), welcher vorne bis zur Ethmoidalregion, hinten bis zum Hinterhaupt reicht. Auch am Palatoquadratum, Hyomandibulare und Unterkiefer stellen sich Knochenbelege ein, und ebenso ossifiert eine die Kiemenspalten deckende Hautfalte zu einem einfachen Kiemendeckel (Operculum). Palatoquadratum und Hyomandibulare bilden den frei beweglichen (hyostylen) Träger des Unterkiefers.
Ähnlich wie die Knorpelganoiden verhalten sich auch die Dipnoer, bei denen jedoch Palatoquadratum und Hyomandibulare mit dem Cranium verschmolzen sind (Autostylie).
Bei den Schuppenganoiden und Knochenfischen findet eine mehr oder weniger vollständige Ossifikation der Schädelkapsel und des Visceralskelettes statt. Die Verknöcherung beginnt, wie bei den Knorpelganoiden, zuerst mit Hautknochen, welche anfänglich (durch eine Bindegewebsschicht) vom Knorpelcranium getrennt bleiben. Die Bildung der Ersatzknochen erfolgt phylogenetisch später und geht vom Perichondrium des Primordialschädels aus. Der Knorpel wird durch Knochen ersetzt (Ersatzknochen, zu diesen gehören z. B. immer die unteren und seitlichen Hinterhauptsbeine). Eine klare Scheidung beider Knochenarten ist aber dadurch erschwert, daß die Bildung von Hautknochen oft in größerer Tiefe vor sich geht und selbst den unten liegenden Knorpel ergreifen kann. Es kann auch ein Knochen gemischter Entstehung sein, indem ein Deckknochen mit der gleichfalls verknöchernden Knorpelunterlage verschmilzt. Das gilt z. B. öfters für das Supraoccipitale, auch für das Opisthoticum.
Am eigentlichen Cranium (Fig. 24) unterscheidet man drei Regionen (Occipital- und Gehör-Abschnitt, Orbital- und Ethmoidal-Region). Die Hinterhaupts- oder Occipital-Region besteht aus vier Knorpelknochen: dem unteren Hinterhauptsbein (Occipitale basilare, Basioccipitale), welches meist noch Reste der Chorda dorsalis enthält und mit seinem tief ausgehöhlten Hinterende die Verbindung mit der Wirbelsäule herstellt, einem rechten und linken seitlichen Hinterhauptsbein (Occipitalia lateralia, Exoccipitalia), welche den größeren Teil des Hinterhauptsloches umgrenzen, oft oben mit dem Supraoccipitale sich vereinigen, und einem oberen Hinterhauptsbein (Occipitale superius, Supraoccipitale), das zum Schädeldach gehört, sich zwischen die davor liegenden Scheitelbeine einschiebt und häufig mit einer vertikalen Medianleiste oder einem hohen Kamm versehen ist.
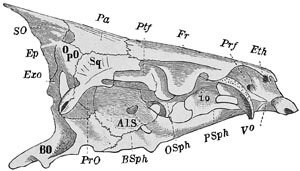
Fig. 24.
Schädelkapsel von Cyprinus carpio Lin. (Karpfen). (Nach R. Owen.) BO Occipitale basilare, Exo Exoccipitale, SO Occipitale superius, OpO Opisthoticum, Ep Epioticum, PrO Prooticum, Sq Squamosum, AlS Alisphenoid, BSph Basisphenoid, OSph Orbitosphenoid, Pa Parietale, Ptf Postfrontale, Fr Frontale, Prf Präfrontale, Eth Ethmoideum, Vo Vomer, io Interorbitale.
Die Gehörkapseln werden seitlich von mehreren, unter den Gesichtsknochen vollkommen versteckten Knochenpaaren umschlossen. Man unterscheidet hier das unmittelbar vor den Occipitalia lateralia gelegene Opisthoticum (OpO)[3], das im hinteren oberen Teil an das Opisthoticum angrenzende Epioticum EpO, und das Prooticum PrO, welches gewöhnlich die Öffnung des Nervus trigeminus umschließt. Mit diesen die eigentliche Gehörkapsel bildenden Knochen verbindet sich jederseits eine über und vor dem Opisthoticum gelegene, teils aus Hautknochen, teils aus Knorpel hervorgegangene Knochenplatte, das Squamosum Sq (Pteroticum Park., Schläfenbein), unter der sich der Kieferstiel (Hyomandibulare) einlenkt.
Die seitliche Umgebung der mittleren orbitalen Schädelregion, welche bald knorpelig oder häutig bleibt, bald mehr oder weniger vollständig verknöchert, ist äußerlich vollkommen von den Gesichtsknochen bedeckt. Man unterscheidet hier zwei Knochenpaare: das hintere unmittelbar vor dem Prooticum gelegene Alisphenoid und das vordere Orbitosphenoid; in der Mitte wachsen beide Knochenpaare, namentlich aber die beiden Orbitosphenoide, häufig zusammen und verschmelzen vollständig miteinander. Die Orbitosphenoide können auch ganz in einem häutigen Interorbitalseptum aufgehen. Die Grundfläche des Schädels wird durch einen Hautknochen, das lange, spanförmige Parasphenoid gebildet, welches hinten an das Basioccipitale, vorne an den Vomer anstößt.
Das Dach der beiden hinteren Schädelabschnitte wird wesentlich von Deckknochen gebildet. So schalten sich zwischen das obere Hinterhauptsbein und die beiden Squamosa zwei Parietalia (Scheitelbeine) ein, auf welche nach vorn die zwei Frontalia (Stirnbeine) folgen, die öfters zu einem einfachen großen Hauptstirnbein verschmelzen. Seitlich davon liegt vor dem Squamosum das Postfrontale (Hinterstirnbein, Sphenoticum Parker), das beiden Ganoiden zu den Haut-, bei den Teleostiern zu den Knorpelknochen gehört. Über den Augenhöhlen kommt zuweilen ein kleines Supraorbitale vor.
Die vordere Ethmoidalregion besitzt als Basis das Pflugscharbein Vo (Vomer), das gleichzeitig die vordere Decke des harten Gaumens bildet. Von Vomer steigt schräg nach hinten und oben jederseits ein z. T. knorpelig präformiertes, oben dermal angelegtes Vorderstirnbein (Präfrontale, Ethmoidale laterale Parker) auf, das sich mit dem Stirnbein und mit dem die Nasenkapsel oben, vorn und teilweise seitlich umschließenden Ethmoidale Eth verbindet. Eine oder mehrere kleine Deckknochen über jedem Nasenloch, welche sich zuweilen außen an das Ethmoidale anheften, werden Nasenbeine Na (Nasalia) genannt; das Ethmoid ist ein Ersatzknochen.
Zum Visceralskelett gehören der Kieferapparat, die Gesichtsknochen und das Kiemengerüst. Das Hyomandibulare tritt in enge Verbindung mit dem hinteren Teil des Palatoquadratum, d. h. dem Quadratum. Daraus geht der sog. Kieferstiel (Hyomandibulare und Symplecticum und Quadratum) hervor, welcher als Träger des Unterkiefers am Schädel durch Bänder beweglich befestigt ist. Das Quadratum articuliert unten mit dem Unterkiefer und ist nach oben innig mit dem aus dem unteren Ende des Hyomandibulare hervorgegangenen Symplecticum verbunden. An das Quadratbein fügen sich nach vorn das winklig gebogene Ectopterygoid (ein Deckknochen), nach oben das Metapterygoid, nach vorne das Mesopterygoid an, dessen vorderes Ende sich mit dem Palatinum (Gaumenbein) verbindet. Letzteres ist mit seinem Vorderrand durch Knorpelbänder am Vomer und der Ethmoidalregion angeheftet, es ist ein Mischknochen, in dem ein Deckknochen und ein Ersatzknochen vereinigt sind.
Vor dem Gaumenbein liegen jederseits zwei ziemlich große, meist mit Zähnen besetzte Deckknochenpaare; das vordere derselben, die Prämaxilla (Zwischenkiefer), stößt vor der Ethmoidalregion durch eine Symphyse mit dem korrespondierenden Knochen der anderen Seite zusammen; das hintere, die Maxilla (Oberkiefer), tritt zuweilen durch ein schmales, eingeschaltetes Jugale (Jochbein) mit dem Quadratum in Verbindung.
Der Unterkiefer (Mandibula) besteht aus dem Gelenkstück (Articulare, einem Ersatzknochen), einem hinteren unteren Eckstück Angulare, das öfters knorpelig bleibt und dem großen, mit Zähnen besetzten Hauptstück Dentale, welches als Deckknochen den Meckelschen Knochen umhüllt. Auf der Innenseite kommt hierzu noch ein Belegknochen, das Operculare oder Spleniale, das nicht selten Zähne trägt und zuweilen (namentlich bei den Crossopterygiern) durch zwei oder mehr Knochenstücke ersetzt ist.
Eine ungewöhnlich starke Entwicklung erlangen sowohl bei Ganoiden als Teleostiern mehrere aus einer Hautfalte hervorgehende Opercularknochen. Der vorderste, das Präoperculum, ist meist eine ziemlich lange, schmale, etwas gebogene Knochenplatte, welche sich oben an das Hyomandibulare, unten an das Quadratum anheftet; dahinter liegt oben ein Operculum von meist ansehnlicher Größe, ferner ein Suboperculum und als unterstes Stück ein öfters mit dem Unterkiefer zusammenhängendes Interoperculum.
Eine wechselnde Anzahl kleiner Hautknochen begrenzen als Suborbitalia bogenförmig den hinteren und unteren Rand der Augenhöhle. Das über derselben gelegene Supraorbitale (S Or), sowie das Lacrimale L (Tränenbein) sind kleine Hautknochen, welche in enger Verbindung mit dem Cranium stehen, aber nur selten entwickelt sind. Das schon erwähnte Präfrontale ist ein Mischknochen.
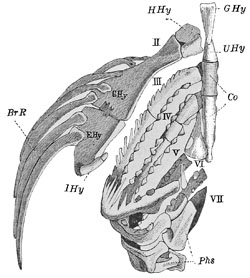
Fig. 25.
Rechte Hälfte des Zungenbeins und der Kiemenbögen vom Barsch (Perca fluviatilis). (Nach Cuvier.) II Zungenbeinbogen, III-VI Kiemenbögen, IHy Interhyale, EHy Epihyale, HHy Hypohyale, GHy Glossohyale (Zungenbein), UHy Urohyale. Co Copulae d. Kiemenbögen, Phs obere Schlundknochen, BrR Kiemenhautstrahlen.
Das Kiemengerüst (Fig. 25) der Ganoiden und Teleostier unterscheidet sich nicht unerheblich von jenem der Selachier. Abgesehen davon, daß die bei letzteren dem Hyomandibulare anhaftenden Kiemenhautstrahlen hier zu Opercularplatten umgewandelt sind, und daß hinter dem Hyoideum nie mehr als fünf (selten vier) knöcherne Bögen auftreten, sind die Kiemenhautstrahlen des Zungenbogens als kräftige Knochenstücke oder Blätter ausgebildet. Das Hyoideum zerfällt in ein oberes Epihyale, ein mittleres Ceratohyale und ein kleines aus zwei Stücken bestehendes Hypohyale (Basihyale); das mediane Verbindungsstück (Copula) verlängert sich mehr oder weniger weit nach vorn als Glossohyale (Zungenbein) in die Zunge und ist bald mit Zähnen bedeckt, bald zahnlos; ein zweites nach hinten gerichtetes, zur Copula gehöriges Knochenstück heißt Urohyale. Die Kiemenbögen (Branchialia) sind gleichfalls aus je drei Stücken (Epi-, Cerato- und Hypo-Branchiale) zusammengesetzt, durch Copulae in der Mitte verbunden und ihrer ganzen Länge nach mit feinen knorpeligen Strahlen, auf der Innenseite zuweilen mit zahnähnlichen Höckern oder Stacheln besetzt. An die Epibranchialia schließen sich noch kurze, häufig Zähne tragende obere Schlundknochen an. Von dem Epibranchiale des 1. Bogens aus bildet sich bei den Labyrinthfischen die knöcherne Unterlage des akzessorischen Respirationsorgans. Der letzte (5.) Kiemenbogen ist meist mehr oder weniger modifiziert und bildet die unteren Schlundknochen.
Die paarigen Flossen entsprechen den Extremitäten der höheren Wirbeltiere und zwar die Brustflossen den vorderen, die Bauchflossen den hinteren.
Sowohl die Brust- als auch die Bauchflossen heften sich an ursprünglich knorpelige Bogen (Schulter- und Beckengürtel) an, die durch Ossifikation in eine verschiedene Anzahl einzelner Knochenstücke zerfallen können. Mit Ausnahme der Selachier befestigt sich der Schultergürtel am oberen Hinterhauptsbein oder am Squamosum. Er bildet bei den Selachiern (Fig. 28 A) einen ventral geschlossenen einfachen, selten, bei paläozoischen Formen, mehrteiligen, hinter den Kiemen gelegenen Knorpelbogen, dessen dorsale Enden entweder frei endigen oder sich an die Wirbelsäule anheften (Rochen); an der Insertionsstelle der Flosse ist er aufgetrieben und von Nervenlöchern durchbohrt. Bei manchen Ganoiden (Chondrostei, Crossopterygii, Heterocerci) lagern sich dem primären knorpeligen, aus zwei auch ventral gesonderten Hälften bestehenden Schultergürtel jederseits drei Deckknochen an, wovon der mittlere größte von Gegenbaur als Cleithrum, der untere als Claviculare, der obere als Supraclavicula bezeichnet werden. Letztere zerfällt zuweilen in zwei Stücke, wovon das obere Posttemporale genannt wird. Bei den übrigen Ganoiden und den Knochenfischen wird der primäre Schultergürtel sehr verkleinert. Zwei, durch Zackennähte an der inneren und hinteren Seite der sehr großen Clavicula befestigte Knochen, wovon der hintere der Scapula (Schulterblatt), der vordere mehr nach innen gelagerte dem Coracoid entspricht, bilden hier den Brustgürtel. Bei mehreren Familien (Physostomen) kommt hierzu noch ein drittes, schmales, brückenförmig gegen die Clavicula sich wölbendes Spangenstück.
Der Hauptknochen des Schultergürtels der Teleostier ist immer die Clavicula, deren Größe und Form außerordentlich variiert.
Er ist nach Bütschli aus der Vereinigung von Clavicula und Cleithrum hervorgegangen, nach Gegenbaur entspricht er nur dem Cleithrum, während die Clavicula zurückgebildet ist.
Nach oben schließen sich als Belegknochen eine Supraclavicula und ein Posttemporale (Pt) an, hinten lagert sich ein meist schmaler akzessorischer Hautknochen, die Postclavicula an.
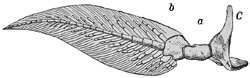
Fig. 26.
Brustflosse von Ceratodus Forsteri. Queensland.
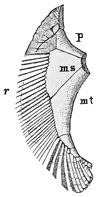
Fig. 27.
Brustflosse von Squatina (ohne die äußeren Hornfäden). p Propterygium, ms Mesopterygium, mt Metapterygium, r Radien.
Die Brustflossen selbst lassen sich im einzelnen schwer mit dem Bau der vorderen Extremitäten der höheren Vertebraten vergleichen. Nimmt man mit Gegenbaur die biseriale Flosse des Ceratodus als die der Urflosse (Archipterygium) am nächsten stehende Grundform an, so sieht man auf den größtenteils knorpeligen Brustgürtel zwei größere Knorpelstücke folgen, an welche sich dann eine lange Kette kleinerer zylindrischer oder quadratischer Glieder anreiht, von denen nach beiden Seiten Knorpelstrahlen ausgehen. Eine zentrale Achse der Brustflosse besaß auch die erloschene Selachier-Gattung Pleuracanthus, dagegen sind die Knorpelstrahlen bei allen übrigen Selachiern vorwiegend einreihig angeordnet. Hier verbinden sich drei größere, nebeneinander gelegene Knorpel, das Pro-, Meso- und Metapterygium, mit dem Brustgürtel und an jedes derselben fügen sich mehrere aus Knorpelstücken zusammengesetzte Radien an (Fig. 27). Am stärksten ist immer das Metapterygium ausgebildet, die beiden anderen sind häufig stark reduziert oder können sogar vollständig fehlen. Die häutige Flosse selbst ist von zahlreichen, stets paarig auftretenden Hornfäden durchzogen.
Bei den Ganoiden und noch mehr bei den Teleostiern findet eine ziemlich weitgehende Rückbildung der von den Basalstücken ausstrahlenden Radienglieder statt. Polypterus besitzt noch drei Basalstücke (Figur 28 B), bei den meisten übrigen Ganoiden dagegen bildet das Metapterygium fast allein die Stütze für die Flosse; Meso- und Propterygium verkümmern. Dafür treten aber zwei bis drei Radien in gleiche Reihe mit den Basalstücken und verbinden sich mit dem Brustgürtel.
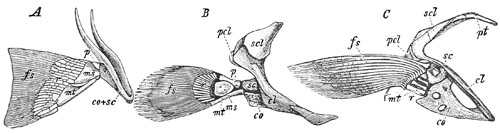
Fig. 28.
Schultergürtel und Brustflosse von A Heptanchus (Selachier), B Polypterus (Ganoid), C Salmo (Teleostier). cl Clavicula, co Coracoid, sc Scapula, pcl Postclavicula, scl Supraclavicula, pt Posttemporale, p Propterygium, ms Mesopterygium, mt Metapterygium, r Radien der Flossenstrahlen, fs äußere Flossenstrahlen.
In gleicher Weise besteht die Basis der Brustflosse bei den Teleostiern stets aus vier bis fünf gleichartigen, abgeplatteten Knochenstücken, denen eine wechselnde Anzahl kurzer Knorpelstückchen angefügt ist. In gleichem Maße als die peripheren Teile des primären Flossenskeletts zurückgehen, entwickeln sich auf beiden Flächen der häutigen Flosse ossifizierte Flossenstrahlen als sekundäre Bildungen.
Wesentlich einfacher als der Brustgürtel ist der sog. Beckengürtel der hinteren Extremität zusammengesetzt. Er erscheint bei den Selachiern als eine paarige oder unpaare, von Nervenlöchern durchbohrte Spange, die entweder quer zur Längsachse des Körpers liegt oder einen nach vorn konvexen oder konkaven Bogen bildet. An diesen Gürtel lenken sich die zwei Basalstücke (Pro- und Metapterygium) der Bauchflosse ein, die ihrerseits wieder eine Reihe uniserialer knorpeliger Radien aussenden. Unter den Ganoiden haben sich nur noch bei Polypterus zwei kleine Knorpelstücke als Überreste eines Beckengürtels erhalten; bei allen übrigen, sowie bei den Teleostiern fehlt der Beckengürtel vollständig, dagegen erlangt das Metapterygium jederseits eine ansehnliche Größe und bildet bald als einfacher, länglicher Knochen, bald als eine in zwei Stücke vergabelte Platte den ganzen Flossenträger. Bei den Ganoiden sind die zum Flossenskelett gehörigen Radien zuweilen knöchern, bei den Teleostiern dagegen meist knorpelig, stark verkümmert, zuweilen sogar gänzlich geschwunden. Die Hautflosse selbst enthält zahlreiche gegliederte Knochenstrahlen. Eine eigentümliche Entwicklung zeigt der Beckengürtel bei den Dipnoern. Er stellt eine unpaare, vierseitige, vorn in einen langen Fortsatz auslaufende Knorpelplatte dar, an welche sich die knorpelige Achse der biserialen Flosse anheftet.
Während die Bauchflossen bei Selachiern, Ganoiden und Dipnoern stets am Bauchende stehen, rücken sie bei den Teleostiern häufig weit nach vorn und treten sogar mit dem Schultergürtel in Verbindung. Durch diese Vorwärtswanderung der Bauchflossen ergeben sich auffällige Modifikationen in der Gesamterscheinung der Knochenfische, die in der Systematik weitgehende Verwertung finden.
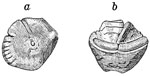
Fig. 29.
Gehörknöchelchen (Otolith) eines Knochenfisches. Oligocän. Lattdorf. Nat. Gr.
a von außen, b von innen.
Neben den festen Hautgebilden und Skelettresten finden sich in gewissen Ablagerungen oft reichlich fossile Otolithen[4]) (Gehörsteine) (Fig. 29); es sind Ausscheidungen von kohlensaurem Kalk innerhalb des Labyrinths, die bei höheren Fischen, besonders im sog. Sacculus, im Utriculus und in der Lagena des Labyrinths fest umschriebene, charakteristische Gestalt annehmen. Der Otolith des Sacculus heißt Sagitta, der in der Lagena Asteriscus, nach der Form, die sie bei Cypriniden haben. Bei diesen ist die Lagena auffallend verlängert und nebst dem Sacculus in die Schädelbasis eingesenkt; bei Panzerwelsen enthält der Utriculus den weitaus größten Otolithen, der besonders bei Arius massig ist und sich häufig findet. Bei allen anderen Teleostiern sind diese Otolithen klein, und der umfangreiche Sacculus enthält den größten Otolithen. Die der Labyrinthwand zugekehrte, dieser anliegende Seite weist einen sehr verschieden geformten Eindruck auf, den Sulcus acusticus; er ist nach den Umrissen der Macula acustica geformt, jener Stelle der Labyrinthwand, in der die letzten Ausstrahlungen des Gehörnervenastes sich vollziehen, und das wichtigste und beständigste Merkmal am Otolithen. Durch die Arbeiten von Koken, Schubert, Priem u. a. ist aus dem Studium der Otolithen besonders für die Statistik der Teleostier wertvolles Material gewonnen. Die weite Verbreitung und das hohe Alter der fossilen Gadiden, Sciaeniden u. a. ließ sich erst aus der Bestimmung der tertiären Otolithen erweisen. Auch über die Fische großer Meerestiefen (Macruriden etc.), von denen sich die Otolithen oft allein erhalten, sind Anhaltspunkte gewonnen.
Die Systematik der Fische hat sich seit Aristoteles vorzüglich auf Merkmale des inneren und äußeren Skelettes, auf die Beschaffenheit und Stellung der Flossen und auf die Respirationsorgane gestützt. Schon Artedi, Bonaparte, Lacépède, Cuvier und Valenciennes stellten die Knorpelfische den mit knöchernem Skelett versehenen Formen gegenüber und zerlegten beide Abteilungen wieder in verschiedener Weise in mehrere Gruppen. Auf die fossilen Fische wurde hierbei keine Rücksicht genommen, obwohl namentlich Haifischzähne, Zähne von verschiedenen Knochenfischen (Bufoniten, Cheloniten, Krötensteine, Schlangenaugen), sowie ganze Skelette aus verschiedenen Lokalitäten (Kupferschiefer von Eisleben, Solnhofen, Oeningen, Monte Bolca, Glarus) schon im 18. Jahrhundert bekannt und mehrfach beschrieben waren. Das epochemachende Werk von L. Agassiz lieferte (1833-1834) eine vollständige Übersicht aller bis dahin bekannten fossilen Fische und suchte zugleich eine neue auf das Hautskelett begründete Einteilung der Fische in 4 Hauptgruppen: Placoidei, Ganoidei, Cycloidei und Ctenoidei einzuführen. Joh. Müller vereinigte die zwei letzten Gruppen unter der Bezeichnung Teleostei (Knochenfische), begrenzte die Ganoiden schärfer und zerlegte die Knorpelfische in 4 Unterklassen: Leptocardii, Cyclostomi, Selachii und Dipnoi. Die neueren, wichtigeren Veränderungen in der Systematik knüpfen besonders an die Arbeiten von Cope, Jordan, Gill, Traquair, A. Smith Woodward u. a. an.
Die bisher unter der Bezeichnung Fische zusammengefaßten Formen wurden auf 3 Klassen verteilt, die weit geschieden sind: Leptocardii, Marsipobranchii, Pisces.[5]
Eine kurze, nur auf die allgemeinen Eigenschaften beschränkte Diagnose führt zu der Gruppierung:
I. Kein Schädel. Chorda bis zum Beginn des Kopfes reichend. Gehirn nicht deutlich differenziert. Ohne zentrales, muskulöses Herz; mehrere kontraktile Strecken der Gefäßwände ersetzen das Herz.
Leptocardii.
II. Schädel mehr oder weniger entwickelt. Chorda nicht über die Hypophysenregion hinausreichend. Herz musculös entwickelt (mindestens eine Kammer und eine Vorkammer), Gehirn deutlich entwickelt.
A. Schädel unvollkommen, kein Unterkiefer. Kein Becken, kein Schultergürtel, keine paarigen Extremitäten. Kiemen beutelförmig.
Marsipobranchii.
B. Schädel gut entwickelt, mit Unterkiefer. Schulter- und Beckengürtel vorhanden. Paarige Extremitäten vorhanden (bzw. wieder atrophiert). Schultergürtel beider Seiten ventral vereinigt. Kiemen nicht beutelförmig.
Pisces.
Man muß aber über die hier vorgenommene Trennung noch hinausgreifen und die Leptocardier nicht nur als eine den Fischen gleichwerte Klasse hinstellen, sondern als eine Klasse, welche allen anderen Wirbeltieren isoliert gegenübersteht und zu der weder ontogenetisch noch paläontologisch eine Brücke hinüberführt.
Prinzipielle Fragen knüpfen sich auch an die Stellung der Marsipobranchier. Es ist nicht allein der Mangel des Unterkiefers und der Extremitäten, der sie so weit von anderen Vertebraten scheidet, sondern die fundamental abweichende Bildung des Knorpelschädels und des Kiemenskeletts. Sie stehen jedenfalls den eigentlichen Fischen als Klasse selbständig gegenüber und eine Zusammenordnung mit paläozoischen Fischen ist damit, daß diese keine paarigen Extremitäten haben und den Unterkiefer vermissen lassen, noch nicht gerechtfertigt.
Nach Ausscheidung auch der Marsipobranchier (Cycliae), die fossil nicht sicher[6] bekannt sind, lassen sich dann die Fische in folgender Weise teilen:
I. Unterklasse: Placodermi (Agnatha). Ohne paarige Extremitäten. Ohne Unterkiefer. Mit Hautzähnchen, welche durch Verbindung mit einer sklerosierten Unterlage oft zu Platten vereinigt sind. 1. Ordnung: Anaspida. Spindelförmig, heterocerk. Hautzähnchen am Kopf isoliert, am Rumpf zu Schuppen vereinigt. 2. Ordnung: Heterostraci. Flach, mit breiter Kopfregion und schlankem Schwanz; ohne Knochenzellen. Heterocerk. Unterordnungen oder Familien: Coelolepidae, Pteraspidae, Psammosteidae. 3. Ordnung: Osteostraci. Kopfregion mit großen Platten. Die untere Lage der Platten mit Knochenzellen. Augen genähert. 4. Ordnung: Antiarchi. Kopf und vorderer Rumpf mit Platten bedeckt, welche Knochenzellen enthalten.
II. Unterklasse: Elasmobranchii.
III. Unterklasse: Holocephali.
IV. Unterklasse: Dipnoi.
V. Unterklasse: Arthrodira.
VI. Unterklasse: Teleostomi.
Diesen letztgenannten 5 Abteilungen kommt sämtlich der Besitz von paarigen Extremitäten und Unterkiefer zu. Man könnte sie also als Gnathostomata oder Eupterygia zusammenfassen. Die Elasmobranchier und Holocephalen sind durch knorpliges Innenskelett, Entwicklung von Placoidschuppen, Mangel dermaler Knochen, Besitz von Pterygopodien miteinander verwandt, Holocephalen und Dipnoer durch die autostyle Angliederung des Kieferbogens, das Gebiß und einige andere Eigenschaften. Die Dipnoer treten aber auch in Beziehung zu den Teleostomen, wie durch einen Vergleich der älteren Dipnoer und Crossopterygier erhellt, und sind anderseits auch den Arthrodira (Coccosteus u. a.) näher verwandt. Dagegen ist die Verwandtschaft der Arthrodira mit den Placodermen (Antiarchi) nicht so nah, wie früher angenommen.
Die Anaspida, Heterostraci, Osteostraci, Antiarchi haben weder paarige Extremitäten noch Extremitätengürtel (die vorderen Anhänge der Antiarchi sind den Extremitäten anderer Wirbeltiere nicht homolog). Über den Schädel (d. h. dessen knorpelige Grundlage) der Anaspida und der Coelolepiden ist nichts bekannt; bei den Heterostraci sehen wir die in der Haut durch Konkreszenz der Hautkörner entwickelten Platten, aber nichts vom Schädel. Die Bezeichnung Agnatha für Placodermi kann nur aussagen, daß in normaler Form entwickelte, am Schädel articulierende Unterkiefer nicht beobachtet sind; morphologische Äquivalente der Unterkiefer können trotzdem vorhanden gewesen sein. Bei Pterichthys sind die zwei vor den Semilunarplatten des Ventralschildes gelegenen Stücke schon auf den knöchernen Belag eines Unterkieferknorpels beziehbar. Bei Tremataspis ist die entsprechende Region von zahlreichen Platten bedeckt, bei Drepanaspis ist weitgehende Konkreszenz in der mittleren Lage eingetreten. Auf die Ausdehnung und Einschränkung dieser Hautgebilde hat die Beweglichkeit der Region unmittelbaren und formativen Einfluß. Wir sind noch nicht in der Lage, hier die progressiven Reihen von den regressiven zu sondern. Bringt man Coccosteus (und Verwandte) in enge Beziehung zu den Antiarchi, wie dies wieder versucht wird (Jaekel), so ist, da Coccosteus isolierte, gelenkig dem Schädel angehängte, bezahnte Unterkiefer hat, die Stellung der Agnatha abseits des Weges und ihre Kieferlosigkeit ein regressives Merkmal. Ist der Vergleich des Palatoquadratum-Mandibular-Bogens mit Kiemenbogen berechtigt, so ist schon hieraus gegeben, daß Agnathie (Mangel eines Unterkiefers) entweder nur auf den Mangel von erkennbaren Deckknochen bezogen werden kann, was einen Rückschluß auf die nicht fossilisierbare knorplige Unterlage nicht zuläßt, oder ein unbedingt regressives Merkmal ist.
Unterklasse. Placodermi.
Die Haut ist mit kleinen Schuppen versehen, welche bei den meisten Gruppen sich mit großen basalen, oft blättrig gebauten Platten zu umfangreichen Hautgebilden vereinigen. Ohne paarige Extremitäten. Ohne Unterkiefer.
Die Placodermen umfassen auffallend gestaltete Fische des Silurs und Devons, die zum ersten Male von Agassiz zusammengefaßt und in der Nähe der Ganoiden eingereiht wurden. Der Umfang der Abteilung ist dadurch verringert, daß die an Coccosteus sich anschließenden Formen abgetrennt und als Arthrodira neben die Dipnoer gestellt sind, nach anderer Richtung hin aber durch die Einfügung der besonders von Traquair untersuchten Anaspida und Coelolepidae erweitert. Die ursprünglich auf die starr gepanzerten Formen angewendete Bezeichnung Placodermen trägt zwar dem Aussehen eines Thelodus etc. nicht Rechnung, aber dasselbe läßt sich auch gegen die Benennung Ostracodermi anführen, die sich auch nur auf eigentliche Panzerfische bezog. Sie wurde von Cope und A. Sm. Woodward eingeführt, als die Coccosteiden zu den Dipnoern gestellt und damit den Placodermen eine ihrer bekanntesten Abteilungen genommen wurde. Es empfiehlt sich, die eingebürgerte Bezeichnung Placodermen auch nach den notwendigen Veränderungen am Umfang der Gruppe nicht fallen zu lassen, denn nach wie vor umschließen sie den Kern der alten Agassizschen Abteilung: die Heterostraci (Pteraspis und Verw.), Osteostraci (Cephalaspis und Verw.) und Antiarchi (Pterichthys und Verw.), zu denen noch Traquairs Anaspida kommen.
Die Stellung der Placodermen[7] bei den Fischen scheint trotz der neueren Arbeiten Pattens, der sie als Peltocephalata mit Arthropoden in Beziehung bringt, gesichert. Die Frage, ob die Coccosteiden (Arthrodira) scharf von den Antiarchi getrennt werden dürfen, ist wieder zur Diskussion gestellt, besonders durch Hinweise von Jaekel, dessen ausführliche Untersuchungen noch nicht veröffentlicht sind. Die Placodermen umfassen die merkwürdigsten und zugleich ältesten Formen unter den Fischen. Sie treten schon im Silur auf. Der Mangel an paarigen Flossen ist noch wichtiger als die Agnathie, denn das Fehlen harter Unterkiefer beweist nicht den Mangel knorpelig angelegter Mandibularbögen. Wenn aus dem Alter dieser Formen gefolgert wird, daß die ältesten Fische noch keine paarigen Flossen besaßen, der Erwerb solcher sich demnach erst in der Weiterentwickelung der Fische vollzog, so muß beachtet werden, daß auch die Selachier bis zum Silur zurückreichen (Onchus) und demnach die Ausbildung der Extremitäten bei Fischen älter sein muß als die bisher gefundenen Placodermen.
Ordnung. Anaspida. Traquair.[8]
Spindelförmige Fische ohne Kiefer, Zähne, Extremitäten und Extremitätengürtel. Innenskelett ohne Ossifikationen. Schuppen der Haut homogen oder etwas faserig (ohne Dentin oder Knochenzellen), jedoch läßt der Erhaltungszustand keine sichere Entscheidung zu.
Familie: Birkeniidae. Traquair.
Klein, spindelförmig, mit tief ausgeschnittenem, heterocerkem Schwanz. Dorsalis weit hinten. Ohne Augen.
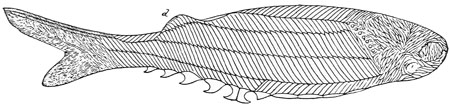
Fig. 31.
Birkenia elegans Traq. Nat. Gr. Rekonstruktion von Traquair.
Birkenia Traqu. Schuppen des Rumpfes schmal und hoch, in mehreren Längsreihen und so angeordnet, daß die Vertikalreihen schräg von oben nach unten vorn ziehen. Der vorn breit gerundete Kopf mit kleineren Schuppen, die sich in mehrere Komplexe ordnen. Am Hinterrande des Kopfes 8 kleine, runde Löcher (? Kiemenlöcher). Bauch mit größeren Stachelschuppen. B. elegans Tr. Obersilur (Ludlow, häufig im Downtonian von Lanarkshire).
Lasanius Traqu. Lang spindelförmig. Bauch mit einer medianen Reihe großer Stachelschuppen besetzt, sonst keine Schuppen. Hinter dem Kopf 8 längliche, nach vorn und unten gerichtete Knochenstäbe, die oben scharf geknickt sind (? Kiemenkorb). L. armatus Traqu. Obersilur (Downtonian) von Lanarkshire.
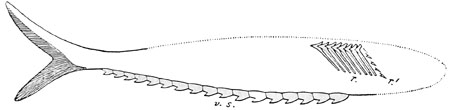
Fig. 32.
Lasanius problematicus Traquair. Rekonstruierter Umriß nach Traquair. Eingetragen sind auch die hinter dem Kopf liegenden Knochenstäbe.
Ordnung. Heterostraci.
Fische mit breitem, deprimiertem Vorderkörper und schlankem, verschmälerten Schwanz, der in eine heterocerke, öfter tief ausgeschnittene Flosse ausläuft. Augen weit voneinander getrennt an den Seiten des Kopfes. Mundspalte meist auf der Unterseite. Kiemenöffnungen unbekannt. Haut mit harten, dentinösen Schüppchen oder mit größeren Schuppen und Platten, die aus der Vereinigung der kleinen Hautschüppchen auf basalen Platten entstehen. Keine Knochenkörperchen in den Platten.
Die schärfer umschriebene, auf die Pteraspiden allein gegründete Diagnose der Heterostraci mußte nach der Entdeckung von Thelodus und Drepanaspis beträchtlich erweitert werden. Es ist aber ersichtlich, daß die drei Familien: Coelolepidae, Drepanaspidae und Pteraspidae in engerem Zusammenhange stehen. Obersilur, Devon.
Familie: Coelolepidae. Pander.[9]
Gestalt rochenartig, mit breitem, rundem Vorderteil und schmalem Körper. Der vordere Teil von flossenartigen Lappen begleitet, die nach hinten weiter heraustreten. Schwanz tief ausgeschnitten, heterocerk. Augen (?) klein, weit voneinander getrennt. Haut mit zahlreichen kleinen Chagrinschuppen, aus Dentin mit Ganoinbelag.
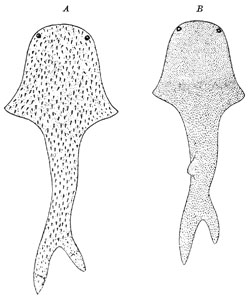
Fig. 33.
A Lanarkia spinosa Traquair. B Thelodus scoticus Traquair. Beide rekonstruiert von Traquair.
Thelodus Ag., (Turinia Traquair, Coelolepis, Thelolepis, Pachylepis, Nostolepis Pander). Schuppen mit Basis und einer durch eine Einschnürung abgetrennten Krone, rund, oval oder vierseitig, zuweilen nach hinten spitzig. Unterseite meist mit einer Höhlung, die in die Pulpa führt. Kleine Dorsalis. Bei Thelodus Pagei zeichnen sich auf der dorsalen Fläche des Stückes jederseits einer medianen Einsenkung 8 flache, rippenartige Schwellen ab, welche dem Kiemengerüst entsprechen werden. Thelodus scoticus und planus Traqu., Obersilur, Schottland. Th. Pagei Powrie sp. Unteres Oldred. Die Schuppen häufig im obersilurischen Beyrichienkalk und der oberen Oeselschen Stufe.
Lanarkia Traqu. Die Schuppen bestehen aus hohlen Kegeln ohne Basis. Keine Dorsalflosse. L. horrida Traqu., spinosa Traqu., spinulosa Traqu., Obersilur, Schottland.
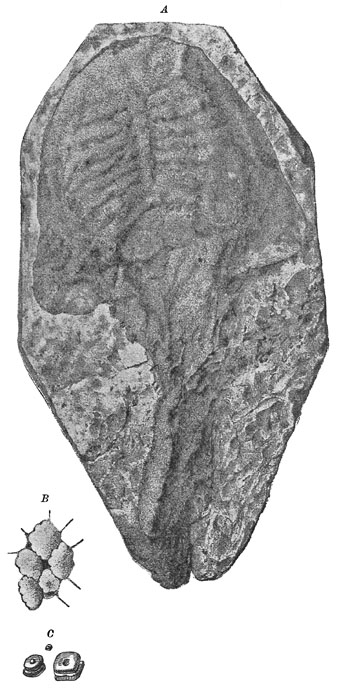
Fig. 34.
A Thelodus Pagei Powrie. c. 1:5.
B Schuppen des Vorderrandes.
C Schuppen (Coelolepis-Typus) aus dem Ludlow. (Nach Traquair.)
Familie: Gemündenidae.
Form rochenartig, mit schmalem Schwanz und breiter vorderer Scheibe. Haut mit zahlreichen Höckerchen (? Chagrin). Ein inneres Skelett der Kopfregion undeutlich unter der Haut erkennbar; segmentierte Achse.
Die Stellung dieser Familie ist unsicher; wenn das Vorhandensein eines inneren segmentierten Skeletts sich bestätigt, dürfte es sich um einen Selachier handeln.
Gemündenia Traqu. Unterdevon.
Familie: Drepanaspidae. Traquair[10].
Kopf äußerlich nicht vom Rumpf geschieden, beide in einen Panzer geschlossen, dessen Oberfläche zierliche Tuberkel trägt. Mund terminal, ohne Zähne, ohne erkennbare Kiefer. Schwanz beschuppt, dorsal und ventral mit gekielten, imbrizierenden Fulcren. Schwanzflosse heterocerk, aber nicht stark ausgerandet, mit kleinen Schuppen bedeckt, ohne sichtbare Strahlen. Keine Dorsalis. Seitenlinien nicht beobachtet. Dorsal und ventral je eine große Platte, vor der ventralen eine kleinere, welche die Mundspalte nach hinten begrenzt. An eine lange, seitliche, nach vorn zugespitzte und relativ schmale Platte legen sich vorn und hinten (ventral) noch je einige größere. Die Zwischenräume zwischen den großen unpaaren Platten der Dorsal- und Ventralseite und dem Zuge der Seitenplatten sind durch kleine, unregelmäßige Plättchen gefüllt. Die kleinen Augenlöcher (?) etwas ventral gerückt. Anus am Ende der großen Ventralplatte. (Durch die Lage von Mund und After ist diese Seite als ventrale deutlich gekennzeichnet.) Die breite flache Form wird sich etwas ändern, wenn man die Entstellung durch Zusammenpressung korrigiert. Dann rücken auch die »Augen« auf die Seiten selbst.
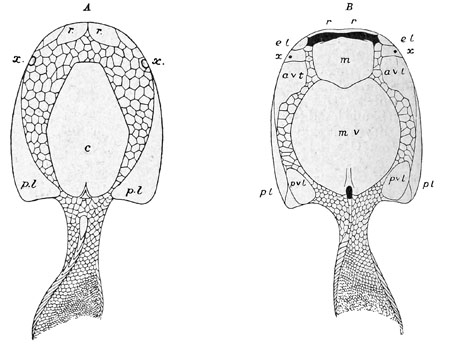
Fig. 35.
Drepanaspis gemündenensis Schlüter. Rekonstruktion von Traquair. Etwa 1:3. Die Ornamente der Platten sind fortgelassen; der Schwanz ist etwas gedreht, um die Schwanzflosse im Profil zu zeigen. A. r Rostralplatten, c mittlere Dorsalplatte, p. l hintere Lateralplatten, x wahrscheinlich Augenöffnungen. B. m, m v die großen mittleren Platten. a v l, p v l vordere und hintere Ventrolateralplatten. pl Seitenplatten (Cornua), r Rostralplatten, e l äußere Labialplatten, x Stelle der Augen.
Drepanaspis Schlüter.
Dr. gemündenensis Schlüter. Unterdevon, Hunsrück.
Psammosteus Ag. Devon. Livland, Schottland, Spitzbergen.
Familie: Pteraspidae.[11]
Hautschüppchen zu größeren Platten und Schuppen zusammengezogen. Kopf und vorderer Teil des Rumpfes mit einem aus mehreren Stücken zusammengesetzten, selten einfachen Rückenschild und einer einfachen Ventralplatte bedeckt. Jede Platte aus 3 Schichten ohne Knochenzellen bestehend. Die Mittelschicht mit maschigen Hohlräumen und Kanälen, die außen in einer Doppelreihe von Poren münden. Die Platten sind mit zarten, emaillierten Leisten verziert, die sich den Rändern parallel ziehen. Augen klein, am Außenrand des Rückenschildes. Hinterer Teil des Rumpfes mit rhombischen Schuppen bedeckt. Schwanz unbekannt. Oberes Silur, Devon.
Von diesen sonderbaren Formen finden sich meist nur isolierte Kopfplatten, die sich durch den Mangel an Knochenzellen[12] von den übrigen Placodermen unterscheiden. Die äußere Schalenlage besteht aus Dentin, die innere aus parallelen Lagen phosphorsauren Kalkes.
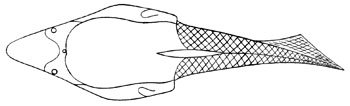
Fig. 36.
Pteraspis rostrata Ag., von oben, Schwanz etwas gedreht. Nach A. Sm. Woodward, Traquair und Andreae. c. 1:3.
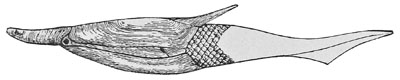
Fig. 37.
Pteraspis rostrata Ag., von der Seite, c. 1:3. Unt. Oldred (Passagebeds) von Herefordshire. Nach A. Sm. Woodward. Aus dem »Guide to the fossil Reptilia etc.«, mit Genehmigung der Trustees des British Museum of Nat. Hist.
Pteraspis Kner (Palaeoteuthis, Archaeoteuthis Roemer, Scaphaspis R. Lank.) Rückenschild vorn in eine schmale Schnauze verlängert, hinten mit einem (gelenkig befestigten) Medianstachel, aus 7 fest verbundenen Stücken bestehend. Bauchschild einfach (Scaphaspis). Die Zusammensetzung des Rückenschildes ist: ein großes Mittelschild, mit einem dreiseitigen Rostralschild vorn und dem Dorsalstachel hinten; zwei Orbitalschilder, welche die Augen ganz einschließen und sich zum Teil zwischen Mittelschild und Rostralschild einschieben, zwei sog. Cornua, welche die hinteren Seitenecken bilden und von einem großen Loch (? Kiemenloch) durchbohrt sind. Die kleinen Augen sind von einem Augenring umgeben. Auf der Unterseite des Dorsalschildes liegt zwischen den Augen eine Grube, welche auf die Epiphyse bezogen wird. Die durch Poren nach außen mündenden maschigen Kanäle der Mittelschicht sollen dermale Sinnesorgane (den Seitenlinien entsprechend) enthalten haben. Obersilur; England, Podolien, Galizien, Schweden, Petschoraland, Spitzbergen, Nordamerika. Unteres Oldred bzw. Gédinnien von Schottland, England, Nordfrankreich, Belgien, Galizien, Eifel.
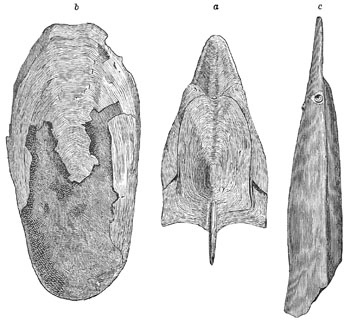
Fig. 38.
a, b Pteraspis rostrata Ag. Unt. Devon, (Cornstones). Herefordshire. a Rückenschild, 1/2 nat. Gr., restauriert. b Bauchschild (Scaphaspis Lloydii Ag.) 2/3 nat. Gr. (Nach R. Lankaster.) c Pteraspis Rücken- und Bauchschild, restauriert nach einem in Galizien gefundenen Exemplar. (Nach Alth.)
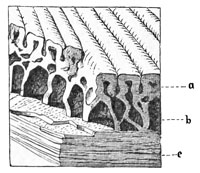
Fig. 39.
Pteraspis Lloydii Ag. sp. Ein Stück der Schale, stark vergr. a obere. b mittlere, c untere Schicht. (Nach Ray Lankaster.)
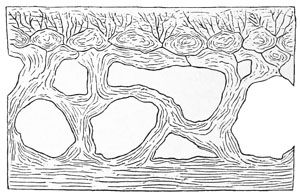
Fig. 40.
Pteraspis rostrata Ag. Vertikalschnitt durch das Kopfschild parallel einer Längsleiste. Stark vergr. (Nach Ray Lankaster.)
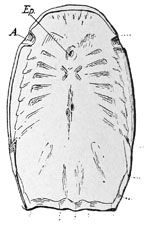
Fig. 41.
Cyathaspis integer Kunth. 1/2 nat. Gr. Nach Jaekel. Die Innenfläche des Rückenpanzers eines Cyathaspis integer Kunth (Orig.-Mus. Berlin) aus obersilurischem Wenlockkalk (sog. Graptolithengestein) von Erkner bei Berlin. Vorn seitlich die Ausschnitte der Augen, median die Grube für die Epiphyse, dahinter seitlich die paarigen Eindrücke von Kiemenbögen und medianen Narben, die der rautenförmigen Grube von Cephalaspiden und Tremataspis entsprechen könnten.
Palaeaspis Claypole (Holaspis R. Lank.). Rückenschild einfach, ohne Dorsalstachel. Orbita nicht ganz von der Orbitalplatte umschlossen. Unteres Oldred, Schottland. Devon, Nordamerika.
Cyathaspis Lank. (Diplaspis Matthew). Rückenschild vierteilig, aus einem großen Mittelstück, zwei schmalen Seitenstücken und einem unpaaren, vorn abgerundeten Rostralstück bestehend. Ob. Silur; England, Gotland. Unteres Oldred, Schottland.
Ordnung. Osteostraci.[13]
Kopf durch ein großes, am Rande umgeschlagenes Knochenschild und meist auch durch ventrale Knochenbildungen oder Platten geschützt. Augen einander sehr genähert. Eine Dorsalflosse, Schwanz heterocerk. Rumpf mit Schuppen, von denen die auf den Flanken stehenden meist sehr hoch, die des Rückens häufig gekielt, die der Bauchseite ⋁förmig geknickt (oder durch ebenso verlaufende Reihen kleiner Schuppen ersetzt) sind.
Die Kopfplatten bestehen aus einer dünnen Schmelzschicht, einer darunter liegenden Osteodentinschicht (mit Knochenkörperchen oder mit Dentinröhrchen), einer mit groben Kanälen und maschigen Hohlräumen erfüllten mittleren Lage, und der basalen, an langgestreckten, spindelförmigen Knochenkörperchen reichen Isopedinschicht. Obersilur bis Oberdevon.
Familie: Cephalaspidae Ag.
Kopfschild vorn gerundet oder leicht verschmälert, hinten abgestutzt, an den Ecken in lange Stacheln (Hörner, Cornua) ausgezogen, mit sternförmigen Höckern oder Körnchen. Die knöcherne Brücke zwischen den Augen fest mit dem Kopfschild verschmolzen. Die dorsolateralen Schuppen sehr hoch, imbrizierend, in 3 Reihen. Obersilur bis Devon.
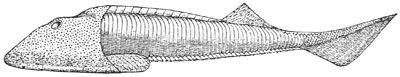
Fig. 42.
Cephalaspis Murchisoni, etwa 1:2. Unt. Oldred (Passagebeds), Herefordshire.
Nach A. Sm. Woodward. Aus dem »Guide to the fossil Reptilia etc.«, mit Genehmigung der Trustees des British Museum of Nat. Hist.
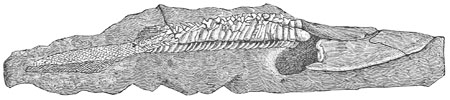
Fig. 43.
Cephalaspis Lyelli Ag. Old red. Arbroath, Forfarshire. 1/2 nat. Gr. (Nach Lankaster.)
Cephalaspis Ag. (Eucephalaspis, Hemicyclaspis, Zenaspis R. Lank.). Hinterecken des Kopfschildes mit mäßig langen Hörnern. Im Ausschnitt des Kopfrandes über ihnen tritt ein lappenartiges Gebilde auf. Es hängt mit der Mittellage des Kopfschildes zusammen[14] und ist von gleicher zelliger Struktur, aber lockerer gebaut, daher wohl biegsam. Die äußeren Lagen (Osteodentin, Isopedin) fehlen ihm.
Nach dieser Darstellung handelt es sich nicht um eine Flosse; die Deutung als eine Art Kiemendeckel kann wohl nur auf die Funktion abstellen, nicht auf die morphologische Äquivalenz. Dorsalflosse ohne eigentliche Strahlen, aber mit zahlreichen aneinandergefügten und in Reihen stehenden Plättchen.
C. Lyelli Ag., C. Murchisoni Egerton. Unteres Oldred.
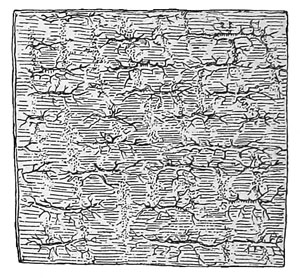
Fig. 44.
Horizontalschnitt durch die innere Schalenschicht des Kopfschildes von Cephalaspis Lyelli mit Knochenkörperchen. (Nach Huxley.)
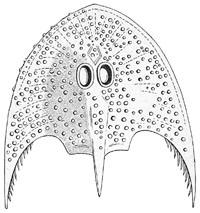
Fig. 45.
Kopfschild von Cephalaspis Agassizi Lank. Devon. Herefordshire. (Nach Lankaster.)
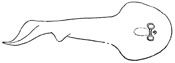
Fig. 46.
Ateleaspis tessellate Traquair. Umriß nach R. H. Traquair. ca. 1/5 der nat. Gr.
Ateleaspis Traquair. Mit flachem runden Kopf, der mit sehr vielen kleinen polygonalen Plättchen bedeckt ist. Die hinteren gerundeten Ecken des Kopfes erinnern an Thelodus, die Augenhöhlen aber liegen wie bei Cephalaspiden. Seiten mit hohen rhombischen Schuppen. A. tesselata Traqu. Downtonian, Schottland.
Eukeraspis Lankaster. Hörner des Kopfschildes länger als dieses, am Außenrand gezähnt. Zwischen den beiden Lagen des Seitenrandes befinden sich jederseits sechs längliche Höhlungen (? zum Kiemenapparat gehörig). Obersilur.
Thyestes Eichw. (Auchenaspis Egerton.) Hörner des Kopfschildes mäßig lang. Hinter dem Kopfschild sind 3-4 Reihen dorsolateraler Schuppen fest verschmolzen zu einer dem vorderen Schild angelagerten oder mit ihm vereinigten Platte. Orbitae sehr genähert; vor ihnen liegt eine kleine frontale, hinter ihnen eine größere, flach eingesenkte Parietalgrube, mit spongiösem Boden. Die Randregion des Kopfschilds ist ähnlich gegliedert wie bei Eukeraspis; die Hohlräume waren gegen die Mittellinie offen, wie von Rohon beschriebene Steinkerne zeigen. Th. verrucosus Eichw. Obersilur, Oesel. Th. Egertoni Lank. sp. Tiefstes Oldred bzw. Passagebeds, Schottland.
Didymaspis Egerton. Hörner des Kopfschilds sehr schwach, die hintere Platte ebenso groß wie das Kopfschild, mit diesem zu einem ovalen Schild vereinigt. Unteres Oldred.
Familie: Tremataspidae.
Der vordere Teil des Körpers mit einem großen Dorsalschild, das den beiden von Didymaspis entspricht. Mit ihm verbindet sich ein ventrales Schild und bedeckt etwa zwei Drittel der ventralen Fläche; davor liegt ein Mosaik kleiner Platten, Oralplatten, bis zur Mundspalte hin. Auf der Grenze der beiden Regionen sind eine Anzahl Löcher angeordnet, die man als Kiemenöffnungen auffaßt. Die Augen sehr genähert; zwischen ihnen ein kleines loses Mittelstück, nach Jaekel durchbohrt (Epiphyse). Davor eine »Frontalgrube« (mit geschlitztem Boden) und dahinter eine größere, flache »Parietalgrube« mit spongiösem Boden, deren Bedeutung ebenso strittig ist, wie die der beiden Gruben, die jederseits am Rande auftreten (mit spongiösem Boden).
Jaekel denkt an Tentakeldurchbrüche; von diesen würde aber das eine Paar hinter dem vermutlichen Kiemenapparat stehen, was diese Annahme sehr erschwert. Vermutlich handelt es sich um Haut-Sinnesorgane, die vielleicht mit dem reichverzweigten Kanalsystem innerhalb der Knochenplatten in Verbindung stehen; dies dürfte dann auch für das sog. Parietalorgan gelten. (Vgl. die Bemerkung über die internen Kanäle bei Pteraspis, die durch Poren nach außen münden.) Patten hat Tremataspis nach dem Material von Oesel (Obersilur) vorzüglich rekonstruiert, aber mit seiner Interpretation Widerspruch gefunden. Die Kiemenöffnungen der Ventralseite sind von ihm als Ansatzstellen von Beinen gedeutet, die denen des Molukkenkrebses, Limulus, entsprechen sollen.[15] Die Reste vermutlicher, innerer Kiemenbögen sind von Jaekel bei Cephalaspis Murchisoni beobachtet, die Eindrücke solcher auch bei Cyathaspis (vgl. Fig. 41), auf der Innenfläche des Dorsalpanzers. Hier reihen sich die älteren Beobachtungen über die inneren Hohlräume bei Eukeraspis (A. Sm. Woodward) und die angebliche Segmentierung des Primordialcranium bei Thyestes (Rohon) an.
Tremataspis Schmidt, Obersilur, Rotziküll auf der Insel Oesel. Tr. Schrencki Pander sp.
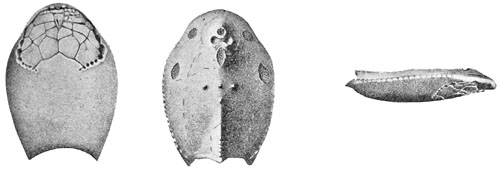
Fig. 47.
Tremataspis Schmidti Schrenck. Rekonstruktion des Kopfschildes nach Patten. Obersilur, Oesel.
Ordnung. Antiarchi.[16]
Kopf und Rumpf durch einen geschlossenen Panzer von symmetrisch angeordneten, mit schrägen Rändern übereinander greifenden und sternförmig oder höckerig verzierten Knochenplatten bedeckt. Kopfabschnitt als Ganzes am Rumpf beweglich. Augenhöhlen auf der Oberseite sehr genähert. Kopf- und Seitenplatten des Rumpfes mit dermalen Sinneskanälen. Hohle, mit Knochenplatten gepanzerte und durch ein Quergelenk geteilte Anhänge sind mit dem vorderen Teil des Bauchpanzers durch ein Sperrgelenk verbunden. Bauchflossen fehlen. Der hinter dem Panzer liegende Teil des Körpers beschuppt oder nackt. Eine Dorsalflosse, mit Fulcren. Schwanz heterocerk.
Die Knochenplatten bestehen aus drei mit Knochenzellen erfüllten Schichten, von denen die mittlere von groben Kanälen und Hohlräumen durchzogen ist, während die innere und äußere dichtere Struktur besitzen.
Zwei kleine, am Vorderrand des Ventralschildes gelegenen Plättchen (Mentalia) werden als dermale Bedeckung des Unterkiefers gedeutet (nicht ohne Widerspruch).
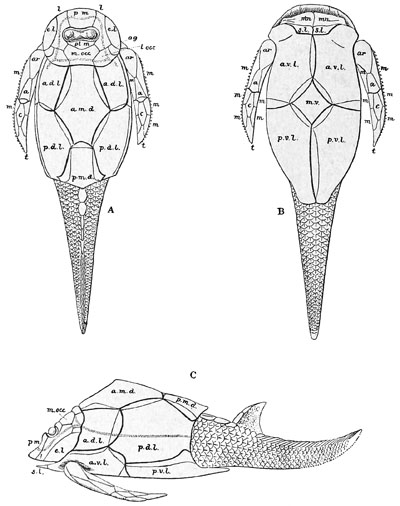
Fig. 48.
Pterichthys Milleri, Mittleres Oldred. Schottland, etwa 1:2. Nach Traquair. Aus dem »Guide to the fossil Reptilia etc.« mit Genehmigung der Trustees des British Museum of Nat. Hist.
m.occ mittl. Occipitalplatte, ptm postmediane Platte, pm prämediane Platte, e.l Extralateralplatte, l.occ seitl. Hinterhauptsplatte, l Lateralplatte, ag Angularplatte, s.l Semilunarplatte, mn Mentalplatte, amd, pmd vordere und hintere dorsale Mittelplatte, adl, pdl vordere und hintere dorsale Seitenplatte, avl, pvl vordere und hintere ventrale Seitenplatte, mv mittlere Ventralplatte, a, c, ar, m Platten des »Ruderorgans«. Seitenlinien punktiert.
Die systematische Stellung der Antiarchi, deren wichtigste Gattungen, Pterichthys und Bothriolepis, gut bekannt sind, wird sehr verschieden aufgefaßt. Noch Cope verglich sie mit Tunicaten wie Chelyosoma. Für ihre Stellung bei den Fischen ist maßgebend die histologische Struktur der Knochenplatten und Schuppen. Für die Stellung innerhalb der Klasse der Fische ist sie es weniger, und man kann sie nicht zum Beweis der Ansicht heranziehen, daß die Asterolepiden etc. Ganoiden seien. Die »flügelartigen« Anhänge sind nur von Wenigen mit echten Extremitäten verglichen, die sie nach der morphologischen Anlage auch gar nicht sein können. Jaekel, der eine nähere Verwandtschaft der Antiarchi mit Coccosteus annimmt, vergleicht sie mit den »Ruderorganen« bei diesen, und läßt sie aus den Hinterecken bezw. Stacheln des Kopfschildes von Cephalaspiden hervorgehen. Indem er aber zugleich mit den Pectoralstacheln der Störe vergleicht, die aus Strahlen der Brustflosse entstehen, sind sehr verschiedene Organe in die Diskussion hineingezogen.
Die Bildung der Anhänge und die Art des Gelenkes machen sie als Ruderorgane untauglich. Ihre Funktion mag die einer Schreckwaffe gewesen sein.[17] Es scheint aber auch nicht ausgeschlossen, daß sie zur Anklammerung an größeren Kadavern, oder zum Festklemmen kleinerer Nahrungsobjekte gebraucht wurden.
Familie: Asterolepidae.
Pterichthys Ag. (Physichthys Meyer.) 3-20 cm lange Fische. Der vorn gerundete Kopfpanzer ist vom Rumpfpanzer durch zusammenhängende Fugen getrennt und gegen letzteren beweglich. In der Mitte des Kopfes eine brillenförmige Öffnung für die Augen, welche durch eine kleine, aber dicke, isolierte Platte (os dubium Panders) getrennt werden. Auf der Unterseite dieser Platte wird eine tiefe Grube beobachtet, in welcher die Epiphyse lagerte (pineal plate A. Sm. Woodward). Die Platten des Kopfes können nicht genau mit denen anderer Fische homologisiert werden.[18] Man unterscheidet eine mittlere Reihe mit der mittleren Occipitalplatte und der postmedianen Platte hinter, und der prämedianen Platte vor den Augen. Letztere Platte begrenzt dorsal die Mundspalte. Seitlich liegen die Lateral- und Occipitolateralplatten und, den äußeren Winkel zwischen beiden füllend, die kleine Angularplatte. Die Seitenwand wird aber hauptsächlich gebildet von der Extralateralplatte, die A. Sm. Woodward als Operculum deutet.
Der Rumpfpanzer besteht aus viel größeren Platten. Dorsal können ein vorderes und ein hinteres Rückenschild unterschieden werden, denen sich seitlich je eine vordere und hintere Seitenplatte anschließen. Ventral decken vier Platten, die sich um eine kleine mittlere symmetrisch gruppieren, den Körper. Vor den großen vorderen Ventralschildern liegen, einen breiten Ausschnitt füllend, die kleinen Semilunarplatten und vor diesen die nur locker verbundenen kleinen Mentalplatten.
An den vorderen Ventralplatten articulieren die Ruderorgane in einer ausgeprägten Gelenkgrube, welche sich in der Mitte zapfenförmig erhebt und durchbohrt ist. Der Schwanz ist mit rundlichen, imbrizierenden Schuppen bedeckt; vor der kurzen, steilen Rückenflosse decken einige größere gekielte Schuppen den Rücken. Hinter dieser liegen die Schuppen der Rückenlinie wie dicht gepackte Fulcra aufeinander.
Eine besondere Erwähnung verdienen die Kanäle der Haut-Sinnesorgane. Eine deutliche Seitenlinie läuft als offener Kanal über die Mitte der beiden Seitenplatten, die sich in dieser Linie öfters teilen (Jaekel), tritt in die seitliche Hinterhauptsplatte ein, gabelt sich hier und umkreist die Augenhöhle.
Kiemen sind bisher nicht nachgewiesen; A. Sm. Woodward deutet die äußere Seitenplatte des Kopfpanzers als Operculum und nimmt damit auch eine bestimmte Lage der Kiemen an.
Hinter dem Kopf liegende Platten des Rumpfes sind mit den Deckknochen des Schultergürtels in Verbindung gebracht. So bezeichnet Jaekel die vordere Ventralplatte, an der die Anhänge gelenken, als Clavicula, die hintere als Postclavicula, die hintere Seitenplatte (nach ihm zweiteilig) als Cleithrum und Supracleithrum. Demnach wäre auch erst hinter diesen letzteren die Brustflosse zu suchen, wenn sie überhaupt entwickelt war.
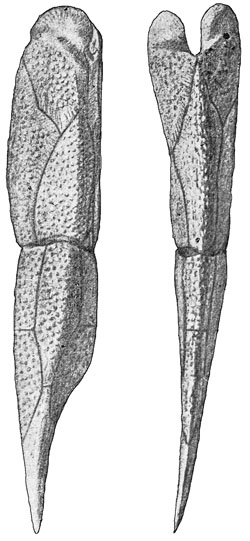
Fig. 49.
Ruderorgan von Asterolepis. Nach Hoffmann. 1/2.
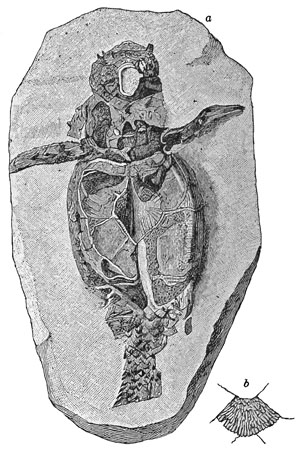
Fig. 50.
Pterichthys quadratus Egert. Old red Sandstone (Devon), Gamrie. Schottland. a Exemplar in 1/2 nat. Gr., b eine Schuppe vergr. (Nach Egerton.)
Die vorderen Seitenplatten, zwischen Nackenschild und Clavicula gelegen, gelten als Operculum und Suboperculum. Von einer Kiemenspalte, die sie decken sollten, ist allerdings nichts zu sehen. Man wird diese wohl besser innerhalb der Fuge zu suchen haben, die den eigentlichen Kopf vom Rumpfpanzer scheidet. Unteres Oldred. Pt. Milleri Ag. Mitteldevon der Eifel, Pt. rhenanus Beyr.
Asterolepis Eichw. (Chelonichthys Ag., Odontacanthus Ag.) Größer als Pterichthys. Die vordere mediane Rückenplatte bedeckt mit ihren schrägen Rändern die seitlichen Platten, während sie bei Pterichthys von den dorsolateralen Platten bedeckt wird. A. ornata Eichw. Devon, Rußland. A. maxima Ag. Oberes Oldred.
Bothriolepis Eichw. Die Anhänge sind länger als der Panzer oder mindestens ebensolang und der distale, durch das Quergelenk abgegrenzte Teil viel kürzer als der proximale. Schwanz wahrscheinlich ohne Schuppen. Devon, Rußland. Oberes Oldred, Schottland. Oberdevon, Kanada. (B. canadensis Whiteaves, in ausgezeichneter Erhaltung.)
Microbrachium Traquair. Unteres Oldred, Schottland.
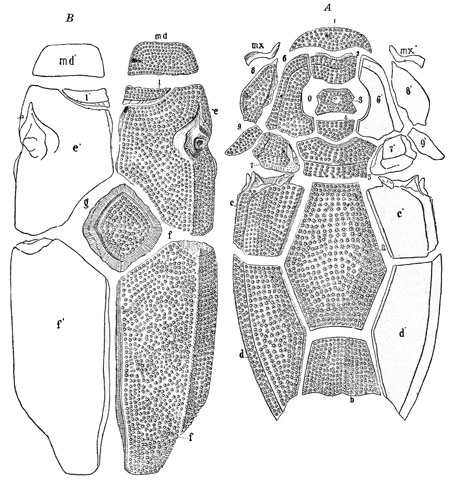
Fig. 51.
Asterolepis ornatus Eichw. aus dem alten roten Sandstein von Livland. A von der Rückenseite. B von der Bauchseite. 1 os terminale. 2 os medium anticum. 3 os dubium. 4 os medium posterius. 5 os occipitale medium. 6 os posterius laterale. 7 os occipitale laterale. 8 os operculare. 9 os angulare. mx Oberkiefer. a vordere, b hintere Rückenplatte, c vordere, d hintere Seitenplatte. md Unterkiefer. i Thoracalplatte (os semilunare). e vordere, f hintere, g mittlere Bauchplatte. 1/2 nat. Gr. (Nach Pander.)
Unterklasse. Elasmobranchii.[19]
Fische mit knorpeligem Innenskelett, Schädel ohne dermale Belagplatten. Haut mit Placoidschuppen. Oberkieferbogen (Pterygopalatinum) nicht mit dem Schädel verschmolzen, Hyomandibulare frei. Die Kiementaschen münden frei nach außen, ohne Kiemendeckel. Zähne in mehreren Reihen hintereinander auf den Kieferrändern. Sehnervenfasern nicht gekreuzt, der Conus arteriosus des Herzens mit drei Reihen Klappen, Darm mit Spiralfalte, Ovarien mit nur wenigen großen Eiern. Männchen mit Pterygopodien.
Das knorpelige Skelett der Haifische zeigt häufig eine corticale, seltener in größere Tiefe dringende Verkalkung, indem die colloide Intercellularsubstanz Kalk aufnimmt und sich Kalkplatten bilden, deren jede ein strahliges Gefüge zeigt. Die Wirbel verkalken in sehr mannigfaltiger Weise und gewähren nach Hasse gute Anhaltspunkte für die Systematik. Ihre Zahl ist bei Haien sehr hoch (bis 365).
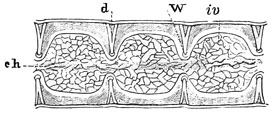
Fig. 52.
Längsschnitt durch den vorderen Teil der Wirbelsäule von Heptanchus. w Einschnürung der Chordascheide, d Anlage eines verkalkten Doppelkegels, iv Intervertebraler mit Chorda erfüllter Raum, ch Chorda. (Nach Kölliker.)
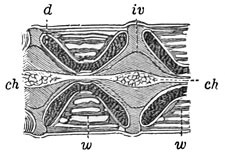
Fig. 53.
Längsschnitt durch die tectispondyle Wirbelsäule von Squatina. w Wirbelkörper mit konzentrischen Verkalkungsringen, d verkalkter Doppelkegel, iv Intervertebralraum, ch Chorda. (Nach Hasse.)
Fig. 54.
Schematischer Querschnitt durch die Mitte eines a Cyclospondylen-, b Tectispondylen- und c Asterospondylen-Wirbels. C Chordahöhle, D zentrale Kalkringe, E Elastica externa, N Neurapophyse, H Hämapophyse. (Nach Hasse.)
Unter den lebenden Haien haben die Notidaniden die primitivste Wirbelsäule. In regelmäßigen Abständen dringen Verdickungen der Chordascheide gegen das Zellgewebe der Chorda vor und bilden in der Mitte durchbohrte Scheidewände (Diplospondylie).
Die Chorda erscheint vertebral eingeschnürt, intervertebral erweitert. Durch das Auftreten der Bogenteile und ihr Eingreifen in die Chordascheide (s. o.) wurde an diesen Stellen ein weiteres Dickewachstum der Chorda verhindert. Indem die Wirbel sich auch in longitudinalem Sinn ausdehnen, greift auch die Hemmung des Chordawachstums weiter aus. Auf diese Weise müssen amphicöle Wirbelanlagen und intervertebrale Chordaverdickungen entstehen.
Als Cyclospondyli bezeichnete Hasse diejenigen Wirbel, bei denen rings um die Chorda im Zentrum des Wirbelkörpers, in einer faserigen Zone innerhalb des Knorpels, ein verkalkter Ring entsteht, der sich mit der verkalkten konkaven Vorder- und Hinterwand des Wirbels verbindet.
Entwickeln sich innerhalb des Wirbels noch weitere Kalkhülsen, die sich konzentrisch um die ersteren legen, so entstehen tectispondylische Wirbel, gehen von dem inneren Ringe radiale Kalkblätter oder keilförmige Verkalkungen gegen die Peripherie, so heißen die Wirbel asterospondylisch.
Neben den Wirbeln kommen am häufigsten die Hautgebilde (Placoidschuppen), Flossenstachel und Zähne vor (s. S. 4, Fig. 1 bis 3). Haifischzähne gehören zu den am längsten bekannten Versteinerungen und sind als Glossopetrae, Vogelzungen, Schlangenzungen etc. in der älteren Literatur vielfach erwähnt.
Die Form der Zähne ist sehr verschieden, häufig scharf zugespitzt mit schneidenden Seitenrändern, ein- oder mehrspitzig, öfters aber auch pflasterartig mit ebener, stumpfkonischer Krone. Sie bestehen im wesentlichen aus Vasodentin oder Dentin und Schmelz (Placoidschmelz) (s. Fig. 14) und sind stets nur durch Ligament befestigt, niemals festgewachsen.
Die Elasmobranchier zerfallen in drei Ordnungen: Ichthyotomi, Acanthodi, Selachii. Die Holocephali stehen ihnen unter allen Fischen am nächsten, sind aber doch so scharf geschieden, daß wir sie nicht als den Genannten gleichwertige Ordnung einreihen können.
Ordnung. Ichthyotomi Cope (Proselachii Döderlein, Koken).
Paarige Flossen mit langer, segmentierter Achse. Wirbelsäule ungegliedert oder nur kleine Ausscheidungen in der Chordascheide. Bogenteile wohl entwickelt, lang, flatterig. Keine Intercalarstücke. Außer der prismatischen äußeren auch noch in die Tiefe des Innenskelettes dringende Verkalkungen. Zähne mehrspitzig. Fünf Kiemenbögen.
In dem hier gegebenen Umfang umfaßt die Ordnung zwei Familien: die Pleuracanthiden und die Cladodontiden. Eine Sonderstellung der Cladodonten als Ordnung der Pleuropterygier erwies sich als unhaltbar. Manche Züge näherer Verwandtschaft scheinen die Cladodontiden auch mit den Hybodontiden zu verbinden, aber die Cladodontiden sind stark spezialisiert, wenn auch weniger als die Pleuracanthiden, deren anscheinend primitive Eigenschaften (archipterygiale paarige Flossen, diphycerke Schwanzflosse) sich als sekundäre Anpassungen auffassen lassen.
Familie: Pleuracanthidae.[20]
Skelettknorpel kalkig inkrustiert, wie bei anderen Haifischen; auch wohl mit tiefer dringenden Verkalkungen. Haut ohne Placoidzähnchen. Obere und untere Bögen lang, flattrig, verkalkt. Chorda persistent, ohne Wirbelanlagen[21], gradlinig in die diphycerke Schwanzflosse auslaufend. Brustflossen mit langer, gegliederter Achse (Metapterygium), mit zahlreichen, knorpeligen Strahlen, die am distalen Ende der Achse auch auf die mediale Seite übertreten (biseriales Archipterygium), während einige direkt an dem Schultergürtel inserieren (Propterygium). Der Schultergürtel besteht aus 2 getrennten Spangen, von denen ein Infrascapulare sich meist deutlich, ein Suprascapulare seltener absondert. Es liegt wohl zum Teil daran, daß an diesen Stellen stärkster Biegung die Kalkinkrustation aussetzt. Zwei weit getrennte, dreiseitige Beckenknorpel, mit denen distal die basalen Stücke der Knorpelstrahlen articulieren; medial ist, ähnlich der Brustflosse, eine lange, gegliederte Achse ausgebildet (Metapterygium), welche bei Männchen zu den Pterygopodien hinführt. Schädel flach, deprimiert, Mundspalte fast terminal, das Palatoquadratum in den Ausschnitt zwischen den Postorbitalfortsätzen und den epiotischen Vorsprüngen (opistharthrisch) eingefügt, aber isoliert. Hyomandibulare lang, am Processus pteroticus gelenkig inseriert, mit langen Kiemenstrahlen besetzt. 5 Kiemenbögen, von vorn nach hinten an Größe stark abnehmend. Am Schädel articuliert hinten ein kräftiger, abgeflachter, beiderseits mit Zähnen besetzter Nackenstachel. Zähne in zahlreichen Bändern, mit zwei langen, außen zugeschärften Spitzen, zwischen denen eine kleine mittlere steht. Die Spitzen erheben sich am Vorderrande einer dickplattigen, rundlichen Wurzel. Hybodusähnliche Streifung tritt öfter auf. Der Rücken ist ganz von der langen Dorsalflosse eingenommen, die allmählich in die zugespitzte Schwanzflosse übergeht, von der sie nur durch eine kleine Einkerbung geschieden ist; knorpelige Flossenträger stützen in 2 Reihen die dorsalen Flossenstrahlen. Im allgemeinen kommen 2 Flossenträger auf 1 Bogenpaar der Wirbelsäule. Zwei vor der Caudalflosse sich heraushebende Gruppen knorpeliger Strahlen dienten zur Stütze etwas stärker heraustretender Flossenlappen, die man als vordere und hintere Analflosse oder als Analflosse und vordere Caudalflosse bezeichnen kann. Es liegt kein Grund vor, ihnen eine Bedeutung für die Genese der Extremitäten zuzuschreiben.
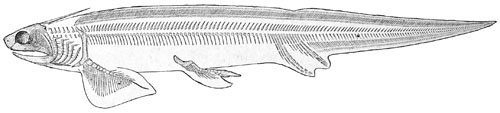
Fig. 55.
Pleuracanthus sessilis Jordan sp. Abgeänderte Rekonstruktion von Jaekel. Rotliegendes, Lebach. Etwa 1/6 nat. Gr.
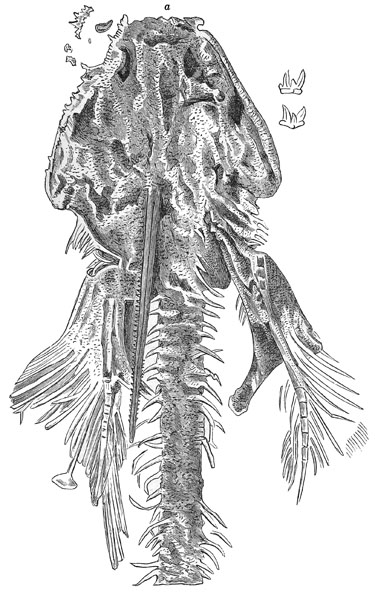
Fig. 56.
Pleuracanthus (Xenacanthus) Decheni Goldf. Braunau, Böhmen. a Vorderer Teil des Körpers, 1/2 nat. Gr. b Einzelne Zähnchen vergr. (Nach F. Roemer.)
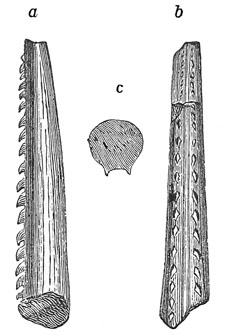
Fig. 57.
Pleuracanthus (Orthacanthus) Bohemicus Fritsch. Gaskohle. Krotschow, Böhmen. Nat. Gr. a von der Seite, b von hinten, c Querschnitt.
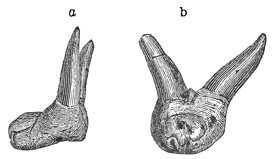
Fig. 58.
Zähne von Pleuracanthus (Diplodus) Bohemicus Quenst. Gaskohle. Nyrschan bei Pilsen, Böhmen.
Die wichtigste Gattung, auf die sich die Diagnose der Gruppe gründet, ist Pleuracanthus Ag., Triodus Jord., Xenacanthus Beyr., Didymodus Cope, Triacranodus Garm. Gute Skelettreste aus dem Rotliegenden von Lebach (bei Saarbrücken), Braunau und Ruppersdorf in Schlesien; Pl. sessilis Jordan sp., Decheni Gf. Gaskohle von Nyrschan (Böhmen); oberes Karbon von Commentry (Frankreich), Northumberland. Perm von Texas (Didymodus).
Diplodus Ag. Provisorisch beibehaltene Bezeichnung für isolierte Zähne. Ziemlich große Zähne mit reduzierter Mittelspitze. D. bohemicus Qu. Gaskohle, Böhmen etc.
Anodontacanthus Davis. Nackenstachel ohne gezähnelte Ränder. Karbon, England.
Die Namen Dittodus, Ochlodus, Aganodus, Pternodus R. Owen, Thrinacodus St. John beziehen sich auf isolierte Zähne, Compsacanthus Newberry, Orthacanthus Ag., Lophacanthus Stock, Anodontacanthus Davis auf Stacheln, die zu Pleuracanthiden bzw. zu Pleuracanthus selbst gehören.
Chondrenchelys Traqu.[22] Kein Dorsalstachel. Flossenträger unter der Dorsalis in nur einer Reihe. Paarige Flossen nicht bekannt (? fehlend; Scapula vorhanden). Unterkarbon (Calciferous sandstone), Schottland.
Familie: Cladodontidae.
Haut mit Placoidschüppchen, Innenskelett reich an Verkalkungen, Gliederung der Wirbelsäule aber nicht nachweisbar. Schwanzflosse heterocerk. Paarige Flossen mit langer, gegliederter Achse (Metapterygium) vor der mehrere kräftige Strahlen direkt dem Schultergürtel (bzw. dem Beckengürtel) inseriert sind. Ihre basalen Teile sind abgegliedert, aber nicht seitlich verschmolzen. Das erste große Segment der Achse läßt (in der Brustflosse) die Konkreszenz aus Strahlenteilen noch erkennen. Nur spärliche Strahlen gehen noch vom 2. und 3. Segment aus, alle anderen sind frei von Strahlen. Männchen mit Pterygopodien. Zähne in zahlreichen Reihen mit schlanker Hauptspitze, oft mit Nebenspitzen, längs gestreift oder gerippt, an der Basis abgestutzt. Fünf Kiemenspalten. Augen mit einem oder mehreren Kreisen dünner, unregelmäßig vierseitiger Plättchen. Devon bis Perm, wahrscheinlich Süß- und Brackwasserbewohner, aber auch in echt marinen Schichten. Sie schließen sich näher an die Pleuracanthiden an, als nach den verbreiteten Rekonstruktionsbildern angenommen werden konnte.[23]
Fig. 59.
Cladodus Neilsoni Traquair. Unterkarbon. Brustflossen nach Traquair. e.Sc linke, r.Sc rechte Scapula, mt Metapterygium, 1-10 dessen knorpelige Segmente.
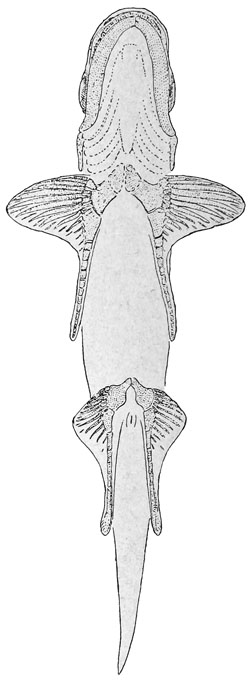
Fig. 60.
Cladoselache Fyleri, Rekonstruktion von O. Jaekel.
Fig. 61.
Cladoselache Fyleri. Cleveland shales. Ohio. Beckenflossen nach Jaekel. Ppt Propterygium, Mpt Metapterygium, Ptp Pterygopodien, P Becken.
Cladodus Ag. (Cladoselache Dean). Spindelförmig, mit fast terminaler Mundspalte. Zwei Rückenflossen. Brustflossen groß, dreiseitig, nur die Radien außerhalb des Körpers, die lange, gegliederte Achse im Körper gelegen. Die vorderen Strahlen sehr kräftig. Oberdevon (Rußland), Kohlenkalk und produktives Karbon; England, Irland, Belgien, Rußland, Nordamerika.
Die Gattungen Dicentrodus Traquair, Phoebodus, Lambdodus, Hybocladodus St. John & Worthen, Dicrenodus Romanowsky (Carchariopsis Ag., Pristicladodus M. Coy) aus dem Kohlenkalk sind auf isolierte Zähne dieser Gruppe errichtet.
Ordnung. Acanthodi. Ag.[24]
Körper spindelförmig, Chorda persistent; die Skelettknorpel des Kopfes auch innerlich stark verkalkt, zuweilen mit körneliger Oberfläche. Augen mit einem einfachen Ring dünner dentinöser Sklerotikalplatten. Zähne fehlen. Brust- und Bauchflossen mit sehr schwachen, selten verkalkten äußeren Strahlen. Vor sämtlichen Flossen mit Ausnahme der heterocerken Schwanzflosse stehen kräftige Dentinstacheln. 5 Kiemenbögen. Körper und ein Teil der Flossen mit einem mosaikartigen Pflaster kleiner, dicker, quadratischer Dentinschuppen bedeckt; die deutliche Seitenlinie zwischen 2 Schuppenreihen auf der Mitte der Flanken. Schädeldach mit unregelmäßigen Hautplättchen. Beckenflosse ohne sexuale Klammerorgane (Pterygopodien).
Die Acanthodi wurden von Agassiz zu den Ganoiden gestellt, Huxley betrachtet sie als Mittelformen zwischen Ganoiden und Selachiern, Lütken und Fritsch reihten sie bei den Selachiern ein. Die Untersuchungen von Traquair, A. Smith Woodward, Reis und Jaekel haben die Richtigkeit dieser Stellung bestätigt, aber in manchen Einzelheiten sind wir leider noch immer nicht genügend unterrichtet.
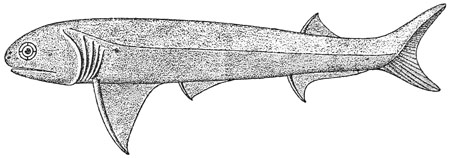
Fig. 62.
Acanthodes Wardi, Oberkarbon von Staffordshire, ca. 1:3. Nach A. Sm. Woodward. Aus dem »Guide to the fossil Reptilia etc.« Mit Genehmigung des Trustees des British Mus. of Nat. Hist.
Nach A. Smith Woodward kann man die Ordnung in 3 Familien (Acanthodidae, Ischnacanthidae, Diplacanthidae) zerlegen.
Die aus dem Obersilur und Devon als Onchus (Fig. 63) beschriebenen Stacheln stimmen so sehr mit Climatiusstacheln, daß man sie zum Teil auf Acanthodier zurückführen darf. Dasselbe gilt für andere paläozoische Gattungen, die auf fossile Flossenstacheln errichtet wurden, wie Haplacanthus, Byssacanthus, Homacanthus, Machairacanthus, Gyracanthus, Ptychacanthus.
Familie: Acanthodidae.
Nur eine weit nach hinten gerückte Dorsalflosse. Brustflosse mit mächtigem Stachel.
Acanthodes Ag. (Acanthoessus Ag., Holacanthodes Beyr., Traquairia Frtsch). Körper spindelförmig, Kopf kurz, Maul groß, terminal. Augenring mit 4 bis 5 dünnen, außen rauhen Platten. Das Palatoquadratum besteht aus drei Teilen; der Unterkiefer ist in eine Mandibula und einen prämandibularen Teil zerlegt, an die sich auf der Unterseite ein schmaler dermaler Knochen (Spleniale nach Jaekel, bei Reis als extramandibularer Stachel bezeichnet, Ceratohyale nach A. Sm. Woodward) anlegt. Seine Struktur ist dentinartig; eine Anzahl Kiemenstrahlen reihen sich ihm an. Die Hyoide (jederseits ein Hyoid und ein Prähyoid, durch ein Copula vorn verbunden) sind frei von Kiemenstrahlen, dagegen trägt das Hyomandibulare solche. Die Basis der Brustflosse besteht aus einigen (3) kurzen Knorpeln, die auch verschmelzen können (Reis). Vom Schultergürtel fällt ein großes, rechtwinklig gegen den säbelförmigen Stachel gerichtetes Stück auf, das Reis wegen seiner äußerlich sehr dichten, dentinartigen Struktur als Claviculoid bezeichnet. Nach O. Jaekel ist es ein Hautknochen, dem Cleithrum vergleichbar, der die knorpelige Scapula einhüllt. Außer diesem nimmt er noch eine Suprascapula, ein Coracoid und ein Präcoracoid an. Rückenflosse gegenüber der Afterflosse. Bauchflossen bei den devonischen Arten fast so groß wie die Brustflossen, später mehr und mehr verkleinert und nach vorne gerückt. Häufig im Devon (Old red sandstone) von Schottland und Rußland, im Karbon von Schottland und Böhmen, im Rotliegenden des Saargebiets (Lebach), von Schlesien (Klein-Neundorf), Sachsen (Oschatz), Böhmen (Braunau). Typus: Ac. Bronni Ag. (gracilis). Rotliegendes.
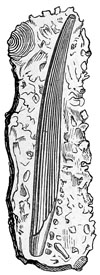
Fig. 63.
Flossenstachel von Onchus tenuistriatus Ag. Aus dem obersten Silur von Ludlow, England.
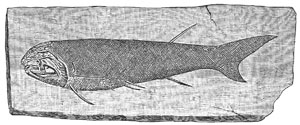
Fig. 64.
Acanthodes Mitchelli Egerton. Old red Sandstone. Farnell, Schottland. Nat. Gr. (Nach Egerton.)
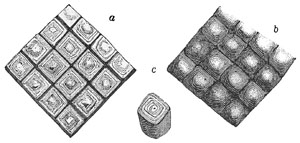
Fig. 65.
Schuppen von Acanthodes gracilis Beyr. a von außen, b von innen, c eine isolierte Schuppe vergr.
Cheiracanthus Ag. Die Rückenflosse steht vor der Analflosse. Ch. Murchisoni Ag. Unteres Oldred.
Acanthodopsis Hancock u. Atthey. Mit 6 bis 8 kräftigen Zähnen im Ober- und Unterkiefer. A. Wardi Hanc. u. Att. Steinkohlenformation, Northumberland.
Familie: Ischnacanthidae.
Zwei Rückenflossen. Die Brustflosse mit großem äußerem aber ohne medianen Stachel.
Ischnacanthus Powrie (Traquair) (Ictinocephalus Page). Mit wenigen großen konischen Zähnen, zwischen denen kleinere stehen. Stacheln längsgerippt. I. gracilis Egerton. Unteres Old red.
Familie: Diplacanthidae.
Zwei Rückenflossen. Die Brustflosse mit großem äußerem und kürzerem medianem Stachel. Zwischen Brust- und Bauchflosse überzählige Stachelpaare.
Diplacanthus Ag. (Rhadinacanthus) Traqu. Bauchflossen kaum halb so lang wie die Brustflossen. Nur ein Paar überzähliger, kurzer Stacheln. D. striatus Ag. Unteres Oldred, England; Devon, Canada.
Climatius Ag. (Brachyacanthus Egerton, Euthacanthus Egerton). Mehrere Paare kurzer, überzähliger Stacheln. Die Stacheln der Rückenflossen gleich lang, alle sehr kräftig, längsgerippt. Cl. reticulatus Ag. Unteres Oldred.
Parexus Ag. Mehrere überzählige Stachelpaare. Stachel der vorderen Rückenflosse weit höher als die zweite; Stacheln längsgerippt, hinten gezähnelt. P. incurvus Ag. Unteres Oldred.
Fig. 66.
Climatius scutiger Egerton. Old red Sandstone. Forfarshire, Schottland. Nat. Gr. (Nach Powrie.)
Fig. 67.
Schultergürtel von Diplacanthus crassispinus Ag. Old red. Caithness, Schottland. Nat. Gr. (Nach Agassiz.)
Ordnung. Selachii.
Brust- und Bauchflossen mit kurzen Basalknorpeln (nicht archipterygial). Wirbelsäule meist deutlich gegliedert, die oberen Bogen mit Intercalarien wechselnd, kurz und gedrungen (exkl. Hybodontidae).
Die Selachier wurden von Hasse nach der Beschaffenheit ihrer Wirbel in vier Unterordnungen (Diplospondyli, Cyclospondyli, Asterospondyli, Tectispondyli) eingeteilt. Diese Gruppierung trägt den natürlichen Verwandtschaftsverhältnissen nicht immer genügend Rechnung und ist hier aufgegeben. Bei älteren fossilen Formen ist auch die Beschaffenheit der Wirbel schwer zu prüfen. Es ist aber immerhin für die Systematik und die Beurteilung der Verwandtschaften von Bedeutung, daß alle Rochen tectispondylische, die großen Familien der Lamniden, Carchariiden und Scylliiden astrospondylische Wirbel haben. Die Cestracioniden weichen von diesem Bau schon beträchtlich ab.
Familie: Notidanidae.
Wirbelsäule unvollkommen gegliedert, Chorda größtenteils persistent. Gelegentlich treten im Schwanz schwach astrospondylische Wirbel auf. Sechs bis sieben ungedeckte Kiemenspalten. Zähne mit mehreren schief gestellten, parallelen Spitzen. Nur eine Rückenflosse und Analflosse, keine Flossenstacheln. Seit dem Jura.
Notidanus Cuv., (Hexanchus, Heptanchus Müller und Henle). Maul auf der Unterseite. Bezahnung oben und unten verschieden. Oberkieferzähne schmäler als die des Unterkiefers, in der Nähe der Symphyse hakenförmig, Symphysenzahn einspitzig. Seitliche Zähne des Unterkiefers kammförmig gezackt, mit mehreren von vorne nach hinten an Höhe abnehmenden Spitzen. In der Symphyse symmetrisch gebildete Zähne, mit mehreren Spitzen jederseits. Im lithographischen Schiefer von Solnhofen ein vollständiges Skelett von Notidanus Münsteri Ag. Häufig im Tertiär.
Fig. 68.
Rachen vom indischen Grauhai Notidanus (Heptanchus) indicus. Rezent.
Fig. 69.
Notidanus primigenius Ag. Oligocän. Weinheim bei Alzey.
Familie: Chlamydoselachidae.
Wirbelsäule unvollkommen gegliedert, Chorda größtenteils persistent. Im Schwanz sind einige Wirbelkörper abgegliedert, mit schwach cyclospondylischer Anlage. Zähne von cladodontem Typus. Sechs Kiemenspalten, von einem vorderen Hautlappen zum Teil gedeckt. Mund terminal. Eine Rückenflosse ohne Stachel.
Chlamydoselache Garm. Zähne mit breitem Sockel, an dessen Vorderrand sich drei schlanke, zurückgebogene Spitzen erheben, zwischen denen schwache Zwischenspitzchen stehen. Unterkiefer nur mit symphysialen Zähnen. Lebend Pliocän, Toscana.
Familie: Spinacidae. Dornhaie.
Körper spindelförmig bis dreikantig, etwas niedergedrückt. Schnauze stumpf. Die zwei Rückenflossen häufig mit Stacheln. Kiemenspalten 5, klein, seitlich in eine Höhe mit der Brustflosse gelegen. Wirbel cyclospondylisch (bzw. tectospondylisch). Brustflosse ohne Ausschnitt an der Basis.
Centrophorus M. u. H. Dorsalstacheln vorhanden. Obere Zähne aufrecht, dreieckig oder lanzettförmig, einspitzig; unten zusammengedrückt, mit seitwärts gerichteter Spitze. Obere Kreide, Libanon (Spinax primaevus Pictet). Tertiär. Rezent.
Acanthias Bonap. (Centrophoroides Davis.) Wie vorige, aber Zähne oben und unten gleich, mit seitwärts gewendeter Spitze. Obere Kreide, Libanon. Tertiär. Rezent.
Centrina Cuv. (Oxynotus Rafin.) Sehr starke Dorsalstacheln. Neogen. Rezent.
Spinax Cuv. (Acanthidium Lowe). Mit Dorsalstacheln. Pliocän. Rezent.
Scymnus Cuv. (Fig. 72.) Ohne Dorsalstacheln. Ob. Zähne klein, zugespitzt; unt. groß, breit, dreieckig, komprimiert, aufrecht oder nur schwach seitwärts geneigt. Neogen, lebend.
Echinorhinus Blv. (Goniodus Ag.) Pliocän, lebend.
Fig. 70.
Wirbel (zentraler Doppelkegel) von Centrophorus. Ob. Kreide. Maestricht. (Nach Hasse.)

Fig. 71.
Acanthias radicans Probst. Miocän. Molasse. Baltringen. 2/1. (Nach Probst.)

Fig. 72.
Scymnus triangulus Probst. Miocän. Molasse. Baltringen. 3/1. (Nach Probst.)
Familie: Pristiophoridae.[25]
Körper spindelförmig, die Brustflossen nicht bis zur Schnauze ausgedehnt. Rostrum stark verlängert, abgeplattet, jederseits mit starken Zähnen (Hautzähnen) besetzt. Die zwei Rückenflossen ohne Stachel. Kiemenspalten seitlich. Wirbel cyclospondylisch. Kreide bis jetzt.
Sclerorhynchus A. Sm. Woodw. Obere Kreide, Libanon. (Nach A. Sm. Woodward vielleicht besser zu den Pristiden zu stellen.)
Pristiophorus M. u. H. Miocän, lebend.
Familie: Scylliidae.
Zwei Rückenflossen ohne Stacheln, die vordere über oder hinter den Bauchflossen. Wirbel astrospondylisch, mit acht starken Radialstrahlen. Zähne klein, zahlreich, zugespitzt, meist mit Mittelspitze und einem Paar Nebenspitzen. Jura bis jetzt, aber fossil wenig verbreitet.
Palaeoscyllium Wagn. Erste Dorsalis über der Bauchflosse, zweite vor der Afterflosse. Brustflosse sehr breit. Zähne unbekannt, aber wohl sehr klein. Wirbel verkalkt, aber ohne Längsleisten. P. minus A. Sm. Woodw. Ob. weißer Jura, Solnhofen.
Scyllium Cuv. (Thyellina, Scylliodus Ag.) (Fig. 73.) Erste Dorsalis etwas hinter der Bauchflosse. Zähne klein, mit hoher Mittelspitze und zwei kleinen Nebenspitzen. Kreide, tertiär, lebend.
Pristiurus Bonap. Wie Scyllium, aber Schwanzflosse jederseits am Oberrand mit einer Reihe kleiner Stacheln. Zähne klein, dreispitzig. Pr. Hassei A. Sm. Woodw. Oberer weißer Jura, Solnhofen.
Mesiteia Kramberger. Schwanz außerordentlich verlängert, Schwanzflosse ohne dermale Stacheln. Obere Kreide, Libanon. Eocän, Monte Bolca.
Chiloscyllium M. u. H., Ginglymostoma M. u. H. (Plicodus Winkl., Acrodobatis Leidy). Tertiär u. lebend.
Cantioscyllium A. Sm. Woodw. (Scylliodus Ag. z. T.). Obere Kreide.
Fig. 73.
Scyllium distans Probst. Miocäne Molasse. Baltringen. 2/1. (Nach Probst.)
Fig. 74.
Hemipristis serra Ag. Miocän. Neudörfl, Ungarn.
Familie: Carchariidae.
Zwei Rückenflossen ohne Stacheln, die vordere vor der Bauchflosse. Zähne hohl, dreieckig, zugespitzt, Seitenränder scharf oder gezähnelt. Wirbel astrospondylisch mit vier nach außen verbreiterten, verkalkten Radialkeilen. Kreide bis jetzt.
Hemipristis Ag. (Dirhizodon Klunzinger). (Fig. 74.) Zähne dreieckig, mit grobgezackten Seitenrändern. Tertiär, lebend.
Galeocerdo M. u. H. Vorderrand der Zähne fein gezackt, Hinterrand ausgebuchtet und unten gezähnelt. Miocän bis jetzt.
Alopiopsis Lioy, Pseudogaleus Jaekel. Eocän, Monte Bolca.
Galeus Ag. (Protogaleus Molin). Zähne klein, schief dreieckig, die Ränder nur über der Basis gezackt. Eocän bis jetzt.
Carcharias Cuv. Zähne meist schief dreieckig, ohne Nebenspitzen, oben und unten verschieden. Seitenränder bis zur Spitze (Prionodon M. u. H.), oder nur über der Basis gezackt (Hypoprion M. u. H.), oder scharfrandig (Scoliodon, Physodon M. u. H.), zuweilen auch aufrecht und scharfrandig (Aprionodon Günther). Tertiär, lebend. C. (Scoliodon) Cuvieri Ag. sp. Eocän, Monte Bolca.
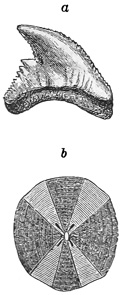
Fig. 75.
a Zahn von Galeocerdo aduncus Ag. Miocäne Molasse. Pfullendorf. b Wirbel von Galeocerdo. Miocäne Molasse. Baltringen. (Nach Hasse.)
Fig. 76.
Galeus affinis Probst. Miocän. Baltringen, Württemberg. (Nach Probst.)
Fig. 77.
a Aprionodon frequens Dames. Eocän. Birket-el-Qurun, Ägypten. (Nach Dames.)
b Hypoprion singularis Probst. c Scoliodon Kraussi Probst. d Prionodon similis Probst. b-d aus der miocänen Molasse von Baltringen, Württemberg. (Nach Probst.)
Sphyrna Rafin. (Zygaena Cuv.). Tertiär, lebend.
Mustelus Cuv. Pliocän, lebend. Wirbel nach Hasse im Danien von Ciply. Triaenodon, Triacis M. u. H. Rezent.
Familie: Lamnidae.
Zwei Rückenflossen ohne Stacheln, die vordere vor der Beckenflosse. Zähne groß, zugespitzt, mit oder ohne Nebenzacken, mit Vasodentin fest ausgefüllt. Wirbel astrospondylisch, mit nach außen gegabelten Radialstrahlen bzw. 4 Gruppen von Strahlen.
Fig. 78.
Orthacodus longidens Ag. Weißer Jura γ. Böllert, Württemberg.
Fig. 79.
Lamna cuspidata Ag. Oligocän. Weinheim bei Alzey.
Fig. 80.
Lamna (Otodus) appendiculata Ag. Pläner. Quedlinburg.
Fig. 81.
Lamna (Otodus) obliqua Ag. (Außenseite) Eocän. Sheppy.
Orthacodus A. Sm. Woodw. (Sphenodus Ag.) Sehr schlanke, aufrechte Zähne ohne Nebenspitzen. Wurzel abgestutzt, einfach. Jura, untere Kreide.
Odontaspis Ag. (Triglochis M. u. H., Rhinognathus Davis). Zähne mit schlanker, seitlich zugeschärfter, vorne abgeplatteter, hinten gewölbter Hauptspitze und 1-2 kleinen Nebenspitzen. Wurzel groß, zweilappig. Kreide bis jetzt. O. Hopei Ag., Monte Bolca. Eocän.
Fig. 82.
a-b Lamna-Wirbel aus dem Oligocän von Flonheim, von vorne und von der Seite, c vertikaler Medianschnitt aus dem Londonthon von Sheppey. Nat. Gr. (Nach Hasse.)
Scapanorhynchus A. Sm. Woodw. (Miksurina Jord.) Rostrum sehr verlängert, Kiefer mehr oder weniger vorstreckbar, unter dem Rostrum. Obere Kreide, Libanon. Lebend (japan. Meer).
Lamna Ag. (Otodus Ag.) Zweite Dorsalis und Analis sehr klein. Schwanz seitlich mit Kiel, Zähne wie bei Odontaspis, aber Mittelspitze meist etwas breiter und Nebenspitzen größer. Kreide, Tertiär, lebend, sehr verbreitet.
Oxyrhina Ag. Zähne wie Lamna, aber ohne Nebenzacken. Kreide bis jetzt. O. Mantelli Ag. Kreide.
Alopecias M. H. Tertiär, lebend.
Fig. 83.
Oxyrhina plicatilis Ag. Miocän. Neudörfl, Ungarn.
Fig. 84.
Corax pristodontus Ag. Ob. Kreide. Oase Dachel. Libysche Wüste.
Fig. 85.
Carcharodon megalodon Ag. Pliocän, Malta.
Corax Ag. Nur kurz dreieckige, an den scharfen Seitenrändern gezackte Zähne mit großer Wurzel bekannt. Mittlere und obere Kreide, häufig.
Carcharodon M. H. Zweite Dorsalis und Analis sehr klein, Schwanz ohne seitlichen Kiel. Zähne sehr groß, dreieckig, vorne flach, hinten gewölbt, die Seitenränder gezähnelt. C. Rondeletii M. H. Lebend (auch Neogen). Andere Arten von der oberen Kreide an. C. megalodon Ag. Eocän bis Pliocän. Zähne bis 15 cm hoch.
Cetorhinus Blv. (Selache Cuv.) Zähne sehr klein, konisch, ohne Seitenzacken. Pliocän, lebend.
Familie: Hybodontidae.
Chordascheide ohne Verkalkung etwa vorhandener Knorpelbildungen. Neuralbögen lang, flattrig, im Schwanz reduziert. Thoracalregion mit langen Rippen, von der ersten Dorsalflosse an viel kürzere, den Rippen homologe Hämalspangen. Schwanzflosse ausgeprägt heterocerk, mit starken, breiten Hämapophysen, reduzierten oberen Bögen. Analflosse niedrig, nahe der Schwanzflosse, mit Knorpelplatten. Zwei Dorsalflossen, jede mit starkem Stachel, der bis zur Spitze der Flosse reicht, mit ihr in Verbindung bleibt und von einer breiten Knorpelplatte gestützt wird. Mehrere akzessorische Flossenstützen. Stachel mit Längsrippen und Marginaldornen. Brustflosse mit kleinem Propterygium und stark entwickeltem Mesopterygium. Beckenflosse mit dreiseitigem Basalstück. Hyomandibulare derb, vertikal verlängert, unten verschmälert und verdickt, in einer deutlichen Gelenkgrube dem Processus postorbitalis anliegend. In die unmittelbar davor liegenden Grube faßt der aufsteigende Teil des Palatoquadratum, das aber auch vorn einen Fortsatz gegen den Processus präorbitalis entsendet. Lippenknorpel vorhanden. 5 Kiemenbögen. Männchen mit Pterygopodien und hakenförmigen Kopfstacheln (Sphenonchus). Diese Charakteristik der Familie gründet sich im wesentlichen auf die gut gekannte Gattung Hybodus Ag. Unterkarbon bis Kreide.
Fig. 86.
Orodus ramosus Ag. Kohlenkalk. Armagh, Irland. (Nach Davis.)
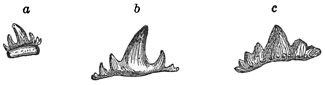
Fig. 87.
Zähne von a Hybodus plicatilis Ag. Muschelkalk. Laineck bei Bayreuth. b Hybodus reticulatus Ag. Unt. Lias. Lyme Regis, England. c Hybodus polyprion Ag. Dogger. Stonesfield, England.
Orodus Ag. (Fig. 86). Nur quer verlängerte, gekielte Zähne bekannt; der Kiel bildet eine stumpfe niedrige Mittelspitze und mehrere Nebenspitzen, von denen derbe Runzeln nach der Basis laufen. Wurzel sehr stark. O. cinctus Ag. (Typus). O. ramosus Ag. Kohlenkalk.
Ctenacanthus Ag. (Sphenacanthus Ag.) Zwei Dorsalflossen, jede mit starkem Stachel, dessen Längsrippen Knötchen tragen. Schnauze stumpf, Schwanz heterocerk. Bauchflossen der zweiten Dorsalis gegenüber. Neuralbögen lang, flattrig; im unteren Schwanzlappen lange Hämalia als Stützen. Zähne mit schlanker mittlerer Spitze und einigen Nebenspitzen. Placoidschüppchen mit strahligen Rippen.
Ct. costellatus Traquair. Unterkarbon, Schottland (ganzer Fisch).
Hybodus Ag.[26] (Meristodon Ag., Orthybodus Jaek., Polyacrodus Jaek. pr. p.) Zähne quer verlängert, mit hervortretender Mittelspitze und mehreren Nebenspitzen (Fig. 87), der Schmelz mit vertikalen Fältchen. Zähne der Symphysengegend verhältnismäßig groß. Vasodentin bildet den Hauptbestandteil des Zahns und zieht sich hoch in die Mittelspitze hinauf. Placoidschüppchen konisch, mit radialen Rippen. Kopfstachel des Männchens (Sphenonchus) hakenförmig, jederseits hinter den Augenhöhlen. Rückenflossenstachel am ganzen Hinterrand mit Marginaldornen. Untere Trias bis Kreide, zahlreiche Arten, besonders in Muschelkalk, Keuper, oberen Karrooschichten, Lias, Jura, Wealden und Kreide. H. reticulatus Ag. Typus der Gattung. Unterer Lias. H. Hauffianus E. Fraas. Oberer Lias, Schwaben, in mehreren Skeletten bekannt. H. Fraasi Brown. Oberer weißer Jura, Solnhofen. H. basanus A. Sm. Woodw. Wealden.
Tristychius Ag. (Ptychacanthus Ag.) Stacheln distal mit drei Rippen, davon eine am Vorderrand; hinten zwei Reihen Marginalzähnchen. Karbon.
Acrodus Ag. (Thectodus Plieninger, Leiacanthus Ag.) Zähne der Symphysenregion mit Mittel- und Nebenhöckern, sonst nur einfach gekielt. Schmelz fein gefältelt; Zahnkörper wesentlich aus Vasodentin bestehend. Dorsalstacheln und Kopfstacheln wie bei Hybodus. Trias, Jura, Kreide Acr. lateralis Ag. (vgl. Jaekel). Muschelkalk etc. A. Anningiae Ag. Unterer Lias (Fig. 94).
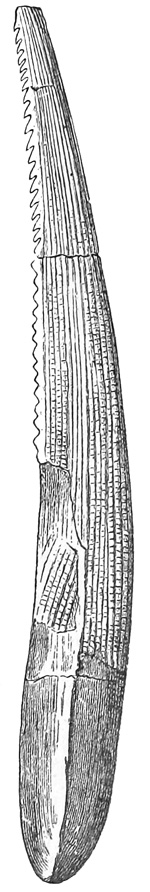
Fig. 88.
Ctenacanthus denticulatus M'Coy. Kohlenkalk. Monaduff, Irland. 1/2 nat. Größe.
Fig. 89.
Hybodus Hauffianus E. Fraas. Ganzes, mit Haut erhaltenes Exemplar. Ob. Lias, Holzmaden. Geolog. Museum, Tübingen. (Nach E. Koken.) Etwa 1/10 nat. Gr.
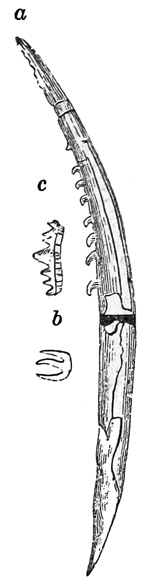
Fig. 90.
Tristychius arcuatus Ag. Steinkohlenformation. Gilmerton b. Edinburgh. a Flossenstachel, b Chagrinschuppen. c Zahn. (Nach Stock.)
Fig. 91.
Acrodus Anningiae Ag. Unt. Lias. Lyme Regis, England. a Unterkiefer 1/3 nat. Gr., b ein einzelner Zahn nat. Gr. von der Seite und von oben.
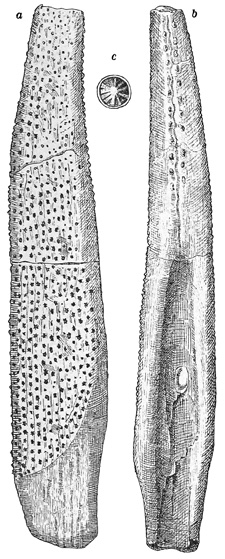
Fig. 92.
Asteracanthus ornatissimus Ag. Portlandkalk. Solothurn. a von der Seite, b von hinten, c ein Oberflächenkorn vergr.
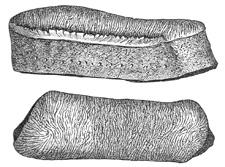
Fig. 93.
Strophodus reticulatus Ag. Coralrag. Tonnerre. Yonne.
Fig. 94.
Strophodus medius Owen. Unterkiefer. Großoolith. Caen-Calvados. 1/2 nat. Gr. (Nach Owen.)
Polyacrodus Jaek. Nach Abtrennung der liassischen Formen (Hybodus) lassen sich Zähne, welche eine bedeutend stärkere Dentinbildung zeigen als Acrodus und Hybodus, mit diesem Gattungsnamen zusammenfassen. P. polycyphus Ag. Untere und mittlere Trias.
Asteracanthus Ag. (Strophodus Ag., Curtodus Sauvage). Zähne sehr verlängert vierseitig bis quadratisch, mit leicht gewölbter, fein netzförmig gerunzelter Krone und starker Basis. Symphysenzähne wenig, kleiner als die seitlichen Zähne, stark gewölbt, gekielt, aber ohne Nebenspitzen oder seitliche Höcker. Flossenstacheln mit relativ großen sternförmigen Höckern, von ungleicher Größe, am Hinterrand mit medianer Leiste und mit zwei seitlichen Zähnchenreihen. Männchen mit großen, hakenförmigen Kopfstacheln (Sphenonchus). Mittlerer und oberer Jura. Wealden. Ast. ornatissimus Ag. Brauner und weißer Jura.
Wodnika Mstr. Große, leicht gerundete Pflasterzähne in mehreren Reihen. Nur wenige Symphysialzähne. Rückenstachel mit breiten Längsleisten. W. Althausi Mstr. Kupferschiefer.
Familie: Cestracionidae.
Wirbelkörper verkalkt (meist deutlich astrospondylisch), Neuralbögen niedrig, gedrängt. Flossenstachel kürzer als die dorsalen Flossen, mit freien Spitzen, glatt oder mit Höckern. Schwanzflosse weniger heterocerk als bei Hybodonten. Männchen ohne Kopfstacheln.
Cestracion Cuv. (Heterodontus Bl., Drepanephorus Egerton). Symphysenzähne zahlreich, klein, mit Nebenspitzen. Seitliche Zähne länger, schwach gekielt, fein gerunzelt. Flossenstachel glatt, ohne Zähnchen am Hinterrand. Kreide. Lebend, westl. Pazifik.
Paracestracion Koken. Flossenstachel auf den Seiten fein gekörnt. Zähne mit Mittelkante, auch in der Symphyse ohne Nebenspitzen. Oberer weißer Jura, Solnhofen, Nusplingen.
Palaeospinax Egerton. Vordere Zähne höher als die hinteren, mit mehreren, Symphysenzähne mit jederseits einem Nebenhöcker. Keine Kopfstacheln. Pterygopodien mit großen hakenförmigen oder gegabelten Stacheln. Flossenstachel glatt mit dickem Ganoin, über der Insertionsmarke zuweilen mit kleinen Höckerchen, kürzer als die Dorsalflosse, oben frei. Feines, dichtes Chagrin. P. priscus Egerton. Unterer Lias. P. Egertoni A. Sm. Woodw. Oberer Lias, Württemberg.
Fig. 95.
Unterkiefer von Cestracion Philippii Cuv. (Rezent.)
Synechodus A. Sm. Woodw. Ähnlich Palaeospinax; alle Zähne mit zahlreichen Nebenspitzen, fein gestreift. Wirbel astrospondylisch. Untere und obere Kreide. S. dubrisiensis Macki sp.
Bdellodus Quenst. Zähne vierseitig; leicht gebogen, flach, die vorderen aufgetrieben, aber nicht gekielt, die der vierten (hinteren) Querreihe sehr lang und groß. Bd. bollensis Qu. Lias E., Württemberg.
Palaeobates H. v. Meyer. Zähne flach, gerundet, nicht gekielt; Krone fast ausschließlich aus Dentin gebildet; Wurzel mit Vasodentin, Placoinschmelz dünn. P. angustissimus Ag. sp. Muschelkalk.
Fig. 96.
Paracestracion falcifer A. Wagner. sp. Lithographischer Schiefer. Solnhofen, Bayern. Ganzes Skelett 1/3 nat. Gr. a vorderer, b hinterer Flossenstachel, p Brustflosse, d Zähne, y Schuppen, x Zähne nat. Gr.
Campodus Kon.[27] Zähne schmal, mit gleichmäßig gegen die Mitte ansteigenden Höckern, die durch tiefe Einschnitte getrennt sind. Diese Zähne stehen in zahlreichen Binden auf dem Kiefer. In der Symphysenregion eine spiral entwickelte Reihe winklig gebogener Zähne, mit höherer Mittelspitze. Missourian, Kansas.
Fig. 97.
1. Campodus variabilis Newb. u. Worth. Oberkarbon, Nebraska. Symphysialzähne zwischen die Äste des Unterkiefers eingefügt. 1:2.
2. Cestracion Francisci Girard. Zum Vergleich mit Campodus. (Nach Eastman.)
Fig. 98.
Campodus variabilis Newb. u. Worthen. Oberkarbon, Nebraska. 2:5. Symphysenbezahnung, wahrscheinlich des Unterkiefers. (Nach C. R. Eastman.)
Familie: Edestidae.
Bekannt sind nur die zahn- oder stachelartigen Organe, die durch partielle oder totale Verschmelzung einzelner Segmente zustandekommen. Jedes Segment ist zahnartig, mit schmelzbedeckter Krone und einer langen Wurzel, aus Vasodentin aufgebaut. Die scharfen Seitenkanten der etwa an Carcharias erinnernden Zähne liegen aber in der Sagittalebene, sind also nach vorn und hinten, nicht seitlich gerichtet.
Fig. 99.
Edestus crenulatus Hay. Oberkarbon, Illinois. 2:5. (Nach Hay.)
Edestus Leidy. Die großen Stachel bestehen aus verwachsenen bzw. ineinander gefalzten Zähnen, deren Kronen sich vom Ober- oder Vorderrand des Organs frei erheben. Die Grenzen der einzelnen Zähne sind durch tiefe Furchen auf der Seite des Organs markiert.
Fig. 100.
Helicoprion Bessonowi Karpinsky. Unteres Perm (Artinskische Stufe). Spiralorgan, 1:2. (Nach Karpinsky.)
Toxoprion Hay (Campyloprion Eastm.). Gekrümmte, aber nicht spiral gewundene Stachelorgane. T. Lecontei Dean. Oberkarbon, Nordamerika.
Helicoprion Karpinsky. Das Organ bildet eine enggezogene Spirale, die aus einzelnen Segmenten zusammengewachsen ist. Die Zahnkronen scharf crenuliert. Der Schaft ist, wie andere Selachierknorpel, mit Kalkplättchen überzogen (nicht mit Placoidschüppchen, wie Karpinsky angibt). Nach Karpinsky am wahrscheinlichsten als verwachsene Symphysenzähne des Oberkiefers zu deuten, nach Eastman als solche des Unterkiefers. Nach Hay eine verschmolzene Folge von Stacheln, die sich vor oder an der Stelle einer Dorsalflosse entwickelten; die frei herausgedrängte Spirale mochte sich auf die eine Seite der Flosse geschoben haben.
Lissoprion Hay. Gekrümmt wie Helicoprion. Zähne am Rande glatt oder nur schwach crenuliert, die Wurzeln ohne Trennungsmarke verwachsen.
Fig. 101.
Helicoprion Bessonowi Karpinsky. Restaurierter Teil des Spiralorgans. (Nach Karpinsky.)
Fig. 102.
Cochliodus contortus Ag. Kohlenkalk. Armagh, Irland. 3/4 nat. Gr. a Großer Hinterzahn, b Mittelzahn. (Die Vorderzähne fehlen.)
Familie: Cochliodontidae.
Paläozoische Fische mit wenigen gewölbten, an der Basis ausgehöhlten, mehr oder weniger gebogenen Zähnen, die nicht gewechselt werden. Die Kronen sind fein punktiert und häufig mit stumpfen, schrägen Querfalten oder Furchen versehen. Jederseits (oben und unten) ein großer Hauptzahn, und vor diesem meist zwei oder mehr kleinere Vorderzähne.
Die Kenntnis dieser eigentümlichen, auf Karbon und Perm beschränkten Familie ist noch sehr ungenügend; meist liegen nur Zähne oder Flossenstacheln vor. A. Smith Woodward (und früher schon R. Owen) vergleicht die Cochliodonten mit den Cestracioniden und faßt die gekrümmten Zahnplatten als Verschmelzungsprodukte von Einzelzähnen einer Querbinde auf. Jaekel gibt ihnen eine besondere Stellung als Trachyacanthidae (unter Bezugnahme auf den Befund bei Menaspis) und rechnet hieher unsymmetrische, wurzellose, rauh skulptierte Stacheln, die als Oracanthus, Pnigeacanthus, Cladacanthus, Platyacanthus, Gampsacanthus, Physonemus, Stichacanthus etc. beschrieben wurden.
Cochliodus Ag. Auf jedem Unterkieferast drei stark gebogene (eingerollte), gewölbte Zähne; der hintere sehr groß, mit breitem, vorn und hinten durch eine schiefe Querfurche begrenztem Mittelfeld; der zweite von rhomboidischer, der vordere von dreieckiger Gestalt. Wahrscheinlich mit kleinen Symphysenzähnen. C. contortus A. u. a. Kohlenkalk.
Streblodus Ag. Wie Cochliodus, aber Hauptzahn mit 2-3 breiten, schrägen Querfalten. Kohlenkalk.
Tomodus Davis. Unterkarbon. Diplacodus Davis. Oberkarbon.
Xystrodus Ag. Cyrtonodus Davis. Oberkarbon.
Sandalodus Newb. u. W. (Trigonodus, Vaticinodus Newb. W., Orthopleurodus St. John u. W.) Obere Zähne dick, dreieckig, schwach eingerollt. Im Unterkiefer 2 Zähne, davon der hintere subtriangulär oder keulenförmig, vorne zugespitzt, etwas eingerollt, mit 1-2 Diagonalwülsten; der vordere kurz, vorn abgestutzt, stark eingerollt. Kohlenkalk, Europa, Nordamerika. S. Morrisi Dav. Unterkarbon.
Fig. 103.
Psephodus magnus Ag. A Drei zusammenhängende Zähne in nat. Gr. aus dem Kohlenkalk von Armagh, Irland. (Nach Davis.)
B Psephodus magnus Ag. Zusammenhängende obere Zähne aus einem Schädelfragment von Kilbridge, Lankashire. b Großer Zahn etwas gebrochen, c kleiner Zahn, identisch mit Helodus rudis M'Coy, d schmale Zähne, identisch mit Helodus planus Ag., e Helodontenzähne, f, g Zähne, identisch mit Lophodus didymus und laevissimus. (Nach Traquair.)
Deltophychius Ag., Chitinodus St. John u. W., Poecilodus Ag., Deltodus Ag., Xystrodus Ag., Kohlenkalk.
Psephodus Ag. Große rhombische oder rhomboidische, schwach gebogene, konvexe Zähne mit gekerbten Rändern. Mit diesen großen Zähnen sind zuweilen eine größere Anzahl kleiner, quer verlängerter Zähne verbunden, die isoliert als Helodus, Lophodus, Aspidodus und Taeniodus beschrieben wurden. Kohlenkalk, Europa, Nordamerika. Ps. magnus Mc Coy sp.
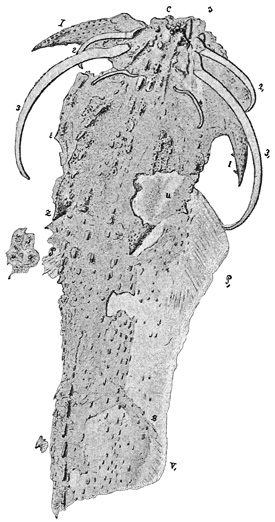
Fig. 104.
Menaspis armata Ewald. 2:3. Kupferschiefer. 2-4 und I Kopfstacheln, E, Z zapfenartige Stachelschuppen, P Brustflossenteile, V Beckenflossenteile. (Nach Jaekel.)
Pleuroplax A. Sm. Woodw. (Pleurodus Hanc. Atthey). Kieferäste in spitzem Winkel vereinigt. Zahnplatten gekielt, mit Furchen und seitlichen Kerben, welche die Zahl der Komponenten andeuten. Dorsaler Flossenstachel komprimiert, breit, glatt oder fein gestreift. Körper flach. Karbon, England.
Menaspis Ewald[28] (Fig. 104.) (Dichelodus Gieb., Chalcodus Zitt.). Kopf und Rücken mit Längsreihen von knochigen oder dornigen, teilweise gekielten Placoidschuppen und kleinen Chagrinkörnchen bedeckt. Zwei Längsreihen der größeren Schuppen enden nach hinten mit zwei scharf zugespitzten Zapfen. Am vorderen Teil des Kopfes jederseits ein dreieckiger, mit breiter hohler Basis versehener, gekörnelter Stachel, hinter ihm jederseits drei glatte, dünne, nach innen gebogene Stacheln, die mit einem vorspringenden Basalfortsatz auf der Kopfhaut befestigt sind. Nach Jaekel bestehen sie aus Vasodentin. Das mittlere Paar ist mehr als doppelt so lang als die beiden anderen. Gebiß cochliodont, an Deltoptychius erinnernd. M. armata Ewald. Kupferschiefer.
Familie: Psammodontidae. De Koninck.
Zähne in 1, 2 oder mehr Längsreihen, pflasterartig angeordnet, groß, eben oder schwach gebogen, aus Vasodentin, mit punktierter oder fein runzliger Oberfläche. Umriß quadratisch oder oblong. Kohlenkalk Europa, Nordamerika.
Copodus Davis (Mesogomphus, Rhymodus, Characodus, Pinacodus Ag.). Zähne vorn verschmälert, durch eine Quernaht in zwei ungleiche Teile zerlegt.
Psammodus Ag. (Homalodus, Astrabodus Davis) (Fig. 106.) Zähne groß, flach, viereckig, mit dicker platter Wurzel.
Lagarodus Jaekel. Zähne schmal rectangulär, scharf geknickt. Kohlenkalk. L. (Psammodus) angustus Tr.
Archaeobatis Newb. Kohlenkalk, Nordamerika.
Familie: Petalodontidae. Newberry und Worthen.[29]
Zähne zusammengedrückt, quer verlängert, pflasterartig in Längs- und Querreihen geordnet. Krone aus Vasodentin, mit Schmelz bedeckt, häufig durch eine Querschneide in eine vordere konvexe und eine hintere konkave Hälfte geteilt, und meist mehr oder weniger stark rückwärts gebogen. Wurzel durch Schmelzfalten oder durch eine Kante von der Krone scharf abgesetzt, vertikal verlängert. Zähne persistent, beim Wachstum schuppenartig aufeinandergeschoben. Karbon. Perm.
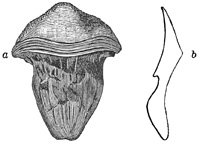
Fig. 105.
Petalodus destructor Newberry und Worthen. Steinkohlenformation. Springfield. Illinois. a Zahn von vorn, 1/2 nat. Gr., b Querschnitt. (Nach Newberry.)
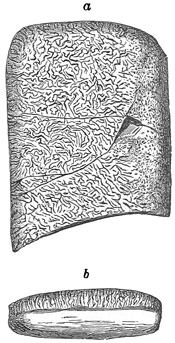
Fig. 106.
Psammodus rugosus Ag. Kohlenkalk. Armagh, Irland. Nat. Gr.
Der Körper nur von Janassa (zum Teil) bekannt. Er ist rochenartig; die großen Brustflossen sind am Kopf angewachsen, von den Bauchflossen aber durch einen Zwischenraum getrennt. Der hintere Abschnitt mit zwei Dorsalflossen, der Schwanz schmal. Glatte, rundliche Chagrinkörperchen.
Petalodus Owen (Sicarius Leidy, Antliodus Newb., Chomatodus Ag., Lisgodus St. John u. W.) Zähne stark zusammengedrückt, quer verlängert; Krone blattförmig, mit Querschneide und scharfem Basalrand, vorn konvex, hinten konkav. Wurzel lang, dünn, stumpf abgestutzt. Kohlenkalk. Europa, Nordamerika.
Petalorhynchus Newb. u. W. Gebiß aus sechs Querreihen von je drei zugeschärften schneidenden Zähnen mit ungeteilter Wurzel bestehend. Nach Jaekel wäre Petalorhynchus auf obere Symphysenzähne von Petalodus gegründet, während Eastman an der Selbständigkeit der Gattung festhält.