5. Klasse. Mammalia. Säugetiere.[116] (Bearbeitet von M. Schlosser.) (continued 5)
Reading edition
Das Skelett der Toxodontia ist im wesentlichen dem der Typotheria ähnlich und vereinigt viele primitive Merkmale mit hochgradigen Spezialisierungen. Die große Scapula ist ähnlich der von Rhinoceros, nur mit einem rudimentären Acromion versehen, was auch die Abwesenheit einer Clavicula bedingt. Der kurze kräftige Oberarm hat eine niedrige einfache Trochlea, aber kein Foramen entepicondyloideum. Die stämmige Ulna mit langem, starkem Olecranon und der kurze, etwas schwächere Radius stehen gekreuzt; sie sind aber sonst denen von Rhinoceros nicht unähnlich, was auch für die Beckenknochen gilt. Die Carpalia sind alternierend angeordnet, die Metacarpalia kurz und gedrungen. Das kurze Femur besitzt einen schwachen dritten Trochanter, sein erster Trochanter ragt weit nach außen vor. Die kräftige Fibula kann mit der Tibia verwachsen. Die erstere artikuliert innig mit dem plumpen Calcaneum (Fig. 714 B). Der Astragalus (Fig. 714 B) hat eine schwach gewölbte und mäßig vertiefte Trochlea und an dem kurzen einwärts gedrehten Hals eine schwach konvexe Gelenkfläche für das Naviculare. Die kurzen, plumpen Metatarsalia sind wie die Metacarpalia nur auf ihrer Rückseite mit schwachen, stumpfen Leitkielen versehen, die Zehenglieder bilden abgeplattete Hufe. Hand und Fuß haben nur je drei Metapodien.
1. Familie. Notohippidae. Ameghino.
3.1.4.3.3.1.4.3. Alle Zähne in geschlossener Reihe, hypselodont, im Alter bewurzelt und von J1 bis M3 fast unmerklich ineinander übergehend, oder die unteren J und C meißel- und die oberen schaufelförmig gestaltet, niemals vergrößert. Schädeldach eben, Nasenöffnung endständig. Astragalus mit ziemlich langem Hals.
Die Spezialisierung der J und C ist hier noch nicht so weit vorgeschritten wie bei den Nesodontiden. Die P und M sind noch auf allen Seiten mit Schmelz versehen. Der Hinterrand der oberen M bildet ein drittes Joch. Die Auftreibung des Mastoid ist hier noch sehr gering.
Notohippus Amegh. Miocän von Patagonien.
Rhynchippus Amegh. (Fig. 707 D.) J und C meißelförmig.
Morphippus Amegh. (Fig. 707 C.) J und C schaufelförmig, den J von Equus ähnlich.
Coresodon Amegh. Alle im Untermiocän, Pyrotheriumsschichten.
Argyrohippus Amegh. Zähne mit dickem Zement, Stylhippus, Perhippidium Amegh. Miocän. Colpodonschichten.
Eomorphippus und Interhippus Ameghino Oligocän. Astraponotus-Schichten.
2. Familie. Nesodontidae.
3.1.4.3.3.1.4.3. Zähne meist in geschlossener Reihe. J1 und J2 vergrößert, J1 meißelförmig, nur vorne mit Schmelz bedeckt, J2 dreikantig, hinten schmelzlos, J3, C und P1 klein, allmählich den übrigen P ähnlich werdend und durch kurze Lücken voneinander getrennt. Untere J meißelförmig, J3 vergrößert. Obere P und M nach hinten an Größe zunehmend, prismatisch, nur an der Außen- und Vorderseite mit Schmelz bedeckt, stark nach innen gekrümmt, Innenenden der beiden Querjoche bei der Abkauung miteinander verschmelzend und eine inselartige Marke umschließend. Untere M nur außen und innen mit Schmelz versehen und stark komprimiert. Zähne nur teilweise und erst im Alter Wurzeln ansetzend.
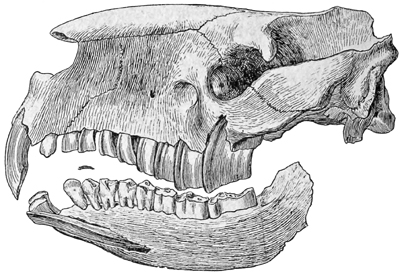
Fig. 713.
Nesodon imbricatus Owen. Obermiocän. Santa Cruz. Patagonien. Schädel mit Unterkiefer von der Seite (1/6 nat. Gr.)
Nesodon Owen (Fig. 713, 714) (Gronotherium, Phobereotherium Ameghino) von mehr als Tapirgröße, ist eines der häufigsten Säugetiere im Miocän von Santa Cruz. Patagonien. N. imbricatus Ow.
Stenostephanus Amegh. Unvollständig bekannt. Miocän und Pliocän.
Trigodon Ameghino. Pleistocän von Monte Hermoso.
Adinotherium Ameghino. (Fig. 715). Oberer J3, C und P1 sehr klein. Miocän, Colpodonschichten und Santacruzeno. A. (Nesodon) ovinum Owen.
Pronesodon, Proadinotherium Amegh. Miocän, Pyrotherium- und Colpodonschichten von Patagonien.
Acrotherium Ameghino. ähnlich Adinotherium, Miocän Santa Cruz.
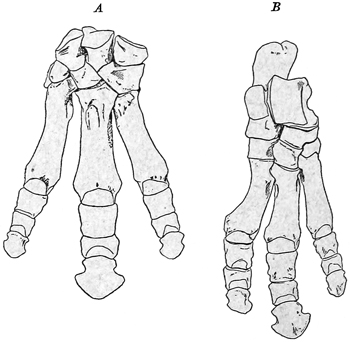
Fig. 714.
Nesodon imbricatus Owen. Obermiocän. Santa Cruz. Patagonien. A Vorderfuß 1/5 nat. Gr. B Hinterfuß (1/5 nat. Gr. nach Sinclair.)
3. Familie. Toxodontidae. Ameghino.
Backenzähne stark komprimiert, schmäler und durch Verschmelzung von Vorsprüngen an der Innenseite auch einfacher als bei den Nesodontiden. Obere M scheinbar nur aus Ectoloph und Protoloph bestehend. Zahnreihe durch Verkümmerung von C und P öfters mit Diastema. Alle Zähne prismatisch, wurzellos; allseitig mit Schmelz bedeckt, der jedoch durch schmelzlose Streifen unterbrochen ist. Astragalus mit flacher Trochlea.
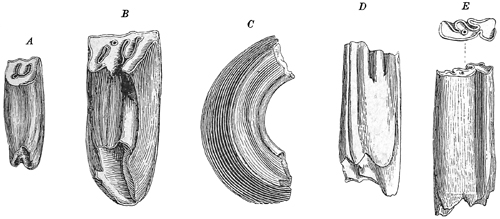
Fig. 715.
Adinotherium sp. Obermiocän von Santa Cruz. Patagonien. A Ob. Prämolar von innen. B Ob. Molar von innen, C von hinten. D Unt. Backenzahn von innen, E von außen und oben. 2/3 nat. Gr.
Toxodontherium Amegh. (Haplodontherium, Trigodon Amegh.) 3.1.3.3.3.1.3.3. Obere P und M noch ziemlich breit.
Xotodon Amegh. 2.1.4.3.3.1.4.3. Beide im Pliocän und Pleistocän von Argentinien.
Toxodon Owen. 2.0.3.3.3.1.4.3. Größter aller Toxodontier, übertrifft in seinen Dimensionen die gewaltigsten Rhinoceroten. Nasenbeine kurz, Nasenlöcher ziemlich weit zurückgerückt. Pliocän und Pleistocän (Pampasformation) von Argentinien. T. platensis Owen.
3. Unterordnung. Entelonychia. Ameghino[165] (Ancylopoda, Tillodontia Amegh.).
Ausgestorbene, plantigrade oder semidigitigrade Pflanzenfresser mit vollständigem, selten reduziertem Gebiß. J, C und P entweder ineinander übergehend, oder oben und unten je ein J kräftiger entwickelt. C manchmal eckzahnartig. P und M lophodont, brachyodont bis hypselodont, stets mit Wurzeln versehen. P einfacher als die M. Obere M fast immer breiter als lang, aus Ectoloph und zwei ungleichen Querjochen bestehend, und stets mit Crochet, oft auch mit Crista versehen. Untere M mit einem sehr kurzen vorderen und einem langgestreckten hinteren Halbmond und zwei Innenhöckern, von denen der erste stark in die Quere gezogen ist. Carpalia alternierend. Calcaneum lang, mit kleiner, meist schrägstehender Gelenkfläche für die Fibula. Astragalus mit Foramen oberhalb der flachen, am Oberrand tief ausgeschnittenen tibialen Gelenkfläche. Endphalangen öfters als plumpe, gebogene Krallen oder als breite Hufe entwickelt, stets an der Spitze gespalten. Hand und Fuß fünfzehig.
Die Entelonychia sind mittelgroße bis große Pflanzenfresser und auf das Tertiär von Patagonien beschränkt. Mit den Copeschen »Ancylopoden«, jetzt Chalicotheriidae, haben sie zum Teil Form und Zurückziehbarkeit der Endphalangen gemein — Homalodontotherium, Asmodeus —, dagegen spricht die Bezahnung mit aller Entschiedenheit für eine nahe Verwandtschaft mit den Toxodontia, von welchen sie sich durch den Besitz von bewurzelten, allseitig von Schmelz umgebenen, niemals prismatisch werdenden Zähnen unterscheiden. Auch sind die oberen immer fast mindestens ebenso breit als lang und mit Crochet versehen, das allerdings durch die Verschmelzung mit den Spornen an der Innenseite des Ectolophs sehr bald undeutlich wird. Die unteren M sind ebenfalls massiver als bei den Toxodontia. Auch besitzen die M meist ein Basalband, das an den oberen auf der Vorder-, Hinter- und oft auch an der Außen- und Innenseite, an den unteren an der Außenseite entwickelt ist, bei den Toxodontia hingegen stets fehlt.
Der Schädel ist nur von Notostylops, Leontinia und Homalodontotherium bekannt und im wesentlichen wie bei Nesodon gebaut, jedoch ist meist die Nase viel tiefer ausgeschnitten und bei Homalodontotherium die Mastoidregion viel weniger aufgetrieben, und Notostylops hat eine viel kürzere und spitzere Schnauze. Vom Skelett kennt man, abgesehen von Calcaneum und Astragalus, nur Humerus, Ulna und Tibia, sowie Hand und Fuß von Homalodontotherium. Der Humerus hat eine kräftige Deltoidcrista und eine Andeutung des Foramen entepicondyloideum und seine distale Partie ist stark verbreitert. Ulna und Tibia sind sehr plump, die letztere auch sehr kurz. Hand und Fuß haben je fünf Metapodien, die Metacarpalia sind auffallend schlank, die Metatarsalia kurz und dick.
1. Familie. Notostylopidae. Ameghino.
3.1-0.4.3.1.1-0.4-3.3. J1 in beiden Kiefern vergrößert. J2 bis J3 und C reduziert, untere J2, J3 und C meist fehlend. P den M ähnlich, jedoch die oberen mit nur einem Innenhöcker. Obere M viel breiter als lang, ohne Crista, mit Crochet. Hinterer Innenhöcker der unteren M sehr schwach. Alle Zähne brachyodont. Schnauze kurz und zugespitzt. Hinterhaupt breit mit aufgetriebenem Mastoid.
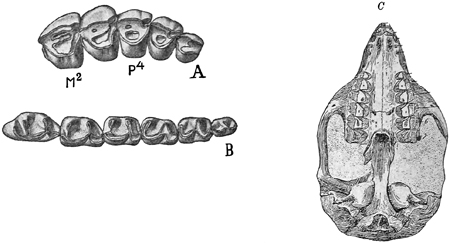
Fig. 716.
A Entelostylops triplicatus Ameghino. Obereocän. Patagonien. Obere Backenzähne, nat. Gr.
B Untere Backenzähne, nat. Gr.
C Notostylops murinus Ameghino. Schädel von unten, 1/3 nat. Gr. (nach Ameghino.)
Diese frühzeitig spezialisierte Familie hat keine Nachkommen hinterlassen. Sie erlischt schon am Ende des Eocän.
Notostylops Amegh. (Fig. 716) mit 3.1.3.4.3.0.3.4., Catastylops Amegh. mit 4 oberen, Pliostylops mit 4 unteren P, Homalostylops Amegh. mit vollständigem Gebiß, Eostylops, Entelostylops etc. Amegh. Eocän. Notostylopsschichten von Patagonien.
2. Familie. Isotemnidae. Amegh.
3.1.4.3.3.1.4.3. Zähne in geschlossener Reihe und ineinander übergehend, nur oberer C manchmal vergrößert. Backenzähne mäßig hypselodont; obere P und M mit mehreren Spornen, Cristae, an der Innenseite des Ectoloph und mit Crochet am Metaloph. Untere P und M mit sehr kräftigem, komprimiertem Höcker am Innenende des vorderen Halbmondes.
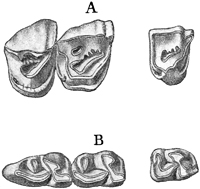
Fig. 717.
Pleurostylodon biconus Ameghino. Obereocän. Notostylopsschichten. Patagonien. A Oberer P4, M2 und M3. B unterer P4, M2 und M3, nat. Gr.
Isotemnus Ameghino. C klein, obere P dreieckig, M oblong. Eocän. Notostylopsschichten von Patagonien.
Pleurostylodon Amegh. (Fig. 717), Tychostylops, Plexotemnus, Dialophus Amegh. etc. Eocän etc.
Eochalicotherium Amegh. Dicke untere M. Ebenda.
Timerostephanus Amegh. Oligocän, Astraponotus- und Untermiocän, Pyrotheriumschichten.
Pleurocoelodon, Lophocoelus Ameghino. Untermiocän. Pyrotherium-Schichten.
3. Familie. Leontiniidae. Ameghino.
3.1-0.4.3.3.1-3.4.3. Oberer J2 und unterer J3 vergrößert, C klein, manchmal fehlend, die P und M ineinander übergehend, die oberen M etwas länger als breit, ohne Parastyl. Joche an der Innenseite innig verschmolzen. Schädel plump, mit breitem Hinterhaupt, mit massiven, weitabstehenden Jochbogen und tief ausgeschnittener Nasenöffnung zwischen den verdickten Zwischenkiefern und den etwas aufwärts gerichteten Nasenbeinen. Endphalangen als breite Hufe entwickelt, Astragalus und Calcaneum plump, Nesodon ähnlich (nach Gaudry).
Leontinia Amegh. mit C, Ancylocoelus Amegh. ohne C, Henricofilholia Amegh. Untermiocän. Pyrotheriumschichten.
Colpodon Burm. Miocän. Colpodonschichten.
Carolodarwinia, Stenogenium Amegh. Oligocän, Astraponotusschichten und Untermiocän.
4. Familie. Homalodontotheriidae. Lydekker. (Ancylopoda Zittel, partim).
3.1.4.3.3.1.4.3. C in beiden Kiefern vergrößert, alle übrigen Zähne ineinander übergehend und dicht aneinandergeschlossen, brachyodont. Obere M breiter als lang, ohne Sporne an der Innenseite des Ectoloph, aber mit äußerem und innerem, untere M mit äußerem Basalband. Schädel mit kleinem, am Mastoid schwach aufgetriebenem Cranium, kurzen, weit zurückstehenden Nasenbeinen und kräftigen Jochbogen. Hand mit fünf schlanken Metacarpalien und zurückziehbaren, an der Spitze gespaltenen Krallen. Hinterfuß mit fünf kurzen Metatarsalien, langem Calcaneum und distal gerundetem Astragalus.
Homalodontotherium Huxley. (Fig. 718, 719.) Obere M gerundet trapezoidal. Humerus massiv, mit breitem Unterende und langer Deltoidcrista. Tibia kurz und dick. Miocän. Santa Cruz, Patagonien.
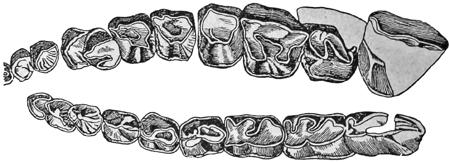
Fig. 718.
Homalodontotherium Cunninghami Flower. Miocän. Rio Gallegos. Patagonien. Obere und untere Backenzähne. 2/5 nat. Gr. (Nach Flower.)
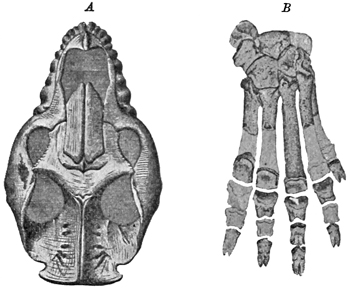
Fig. 719.
Homalodontotherium Segoviae Ameghino. Obermiocän. Santa Cruz. A Schädel von oben, 1/9 nat. Gr. B Vorderfuß, 1/3 nat. Gr. (nach Ameghino.)
Thomashuxleya Ameghino. Obere M gerundet, sehr breit. Eocän. Notostylopsschichten von Patagonien.
Proasmodeus Amegh. Oligocän. Astraponotusschichten. Asmodeus Ameghino. Obere M quadratisch. Untermiocän Pyrotheriumschichten.
Diorotherium, Prochalicotherium Amegh. Untermiocän. Pyrotheriumschichten.
4. Unterordnung. Astrapotherioidea. Amegh.[166] (Amblypoda Amegh.)
Mittelgroße bis große Pflanzenfresser mit brachyodontem Gebiß, mit meißelförmigen J und hauerartig entwickelten C. P, zuweilen auch J teilweise atrophiert, P kleiner als die M. Obere M in der Regel länger als breit, mit Parastyl und oft auch mit Crista am Ectoloph, mit gebogenem Protoloph und kurzem Metaloph. Untere M mit zwei ungleich langen Halbmonden und zwei Innenhöckern, von denen der erstere mit dem Hinterende des ersten Halbmondes innig verbunden ist und der zweite später mit dem Vorderende des zweiten Halbmondes verschmilzt. Astragalus mit flachem Tibialgelenk.
Die Astrapotherioidea schließen sich eng an die Entelonychia an. Sie unterscheiden sich von ihnen hauptsächlich durch die hauerartige Ausbildung der C und meist auch durch die mehr an Rhinoceroten erinnernde Form der M. Auch findet keine Auftreibung der Squamosomastoidregion statt, wenigstens nicht bei Astrapotherium. Die Trigonostylopiden stehen den Entelonychia am nächsten und weichen von ihnen nur ab in der Form der J und C, in der hochgradigen Brachyodontie und dem einfachen Bau ihrer M. Der anfangs noch gewölbte Astragalus wird mit der Zunahme der Körpergröße ganz flach und büßt seine Beweglichkeit fast vollkommen ein.
1. Familie. Trigonostylopidae. Ameghino.
?.1.4.3.2.1.4.3. J klein, C kräftig entwickelt. Vor und hinter dem kegelförmigen P1 eine lange Zahnlücke. Obere P und M im Umriß gerundet vier- oder dreieckig, sehr einfach, nur mit Parastyl, Ectoloph, Protoloph und Andeutung eines Metalophs. Untere P und M aus kurzem, schrägem Querjoch und einem Halbmond bestehend, mit dessen Hinterende sich der kleine Innenhöcker verbindet. Astragalus mit ziemlich langem Hals.
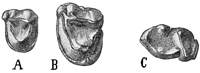
Fig. 720.
Trigonostylops Wortmani Ameghino. Obereocän. Patagonien. A Oberer P4, B oberer M, C unterer M3, nat. Gr.
Die Trigonostylopidae haben unter allen Säugetieren des südamerikanischen Tertiärs die einfachsten und niedrigsten Jochzähne. Nachkommen dieser Familie sind nicht bekannt. Sie erlischt bereits im Oligocän.
Trigonostylops (Fig. 720), Pleurystylops Ameghino. Obere M dreieckig. Eocän. Notostylopsschichten.
Pseudostylops, Edvardocopeia Ameghino. Obere M viereckig. Oligocän. Astraponotusschichten.
2. Familie. Albertogaudryidae. Ameghino.
3.?1.4.3.3. 1.4.3. Obere M breiter als lang, rundlich viereckig, mit kurzem Protoloph und einem isolierten Innenhöcker. Untere P und M aus zwei Halbmonden und einem isolierten Innenhöcker bestehend. J schwach, oberer C dreikantig. P einfacher als M. Astragalus mit kurzem Hals.
Diese Vorläufer der folgenden Familie hatten etwa Tapirgröße und gehörten zu den größten von allen Säugetieren des südamerikanischen Eocän.
Albertogaudrya, Rütimeyeria Ameghino. Obere M von gerundetem Umriß. Eocän. Notostylopsschichten.
Scabellia Ameghino. Obere M vierseitig. Eocän. Notostylopsschichten.
3. Familie. Astrapotheriidae. Ameghino.
3.1.3-2.3.3.1.2-1.3. J klein, besonders die oberen, spatelförmig, zweilappig. C als kräftige, dreikantige Hauer ausgebildet, die mit ihren Spitzen aneinander schleifen. P einfacher und kleiner als die M und wenig zahlreich. Obere M länger als breit, aus geradem Ectoloph, schrägem Protoloph und kurzem, geradem Metaloph bestehend und mit Parastyl und Crista versehen. M3 ohne Metaloph. Untere M aus zwei gestreckten Halbmonden und einem bald mit dem Vorderende des zweiten Mondes verschmelzenden Innenhöcker bestehend. Hand fünfzehig. Astragalus flach mit sehr kurzem Hals.
Diese großen, im Zahnbau an Rhinoceroten, namentlich an Metamynodon, erinnernden Huftiere besitzen einen verhältnismäßig kurzen Schädel mit breiter Stirn, breitem Gaumen und schmalem Cranium, ohne die für die Notoungulaten charakteristische Auftreibung der Squamosomastoidregion. Der Humerus hat eine weit herabreichende Deltoidcrista und eine niedrige einfache Trochlea, aber kein Foramen entepicondyloideum. Die Ulna ist kräftig, das Femur von vorne nach hinten komprimiert und mit einem lamellenartigen dritten Trochanter versehen und nicht viel länger als die ziemlich schlanke, nicht mit der Fibula verwachsene Tibia. Das Calcaneum ist kurz und dick. Der abgeplattete breite Astragalus artikuliert sehr innig mit Fibula und mit Cuboid und sieht dem der Amblypoden sehr ähnlich. Hand und Fuß sind fünfzehig, die Metapodien kurz und dick. Die Endphalangen waren vermutlich kurze breite Hufe. Im Milchgebiß sind noch 43 D vorhanden.
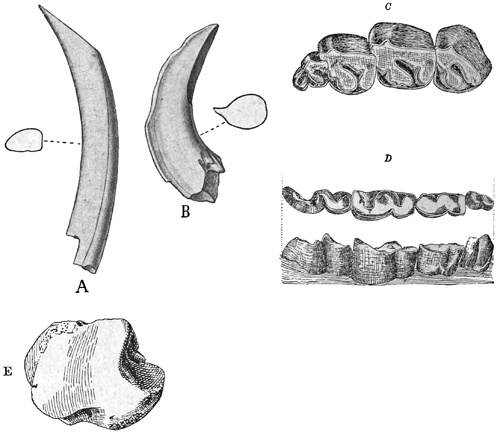
Fig. 721.
Astrapotherium magnum Ameghino. Obermiocän. Santa Cruz. A oberer, B unterer Eckzahn, 1/4 nat. Gr., C obere P3 bis M3, D untere P4 bis M3, 1/3 nat. Gr. (nach Ameghino), E Astragalus, 1/3 nat. Gr.
Astrapotherium Burm. (Fig. 721 A bis E), (Mesembriotherium Moreno, Listriotherium, Xylotherium Mercerat). 21 P. Nur von dieser Gattung sind auch Schädel und Extremitäten bekannt. Miocän. Patagonien.
Astrapothericulus Ameghino. Miocän.
Parastrapotherium Ameghino. 32 P. Liarthrus Ameghino. Untermiocän. Pyrotheriumschichten.
Astraponotus Amegh. Angeblich mit noch vollständigem Gebiß. Oligocän.
Proplanodus Ameghino. Eocän. Notostylopsschichten.
5. Unterordnung. Pyrotheria.[167]
Schädel kurz und nach vorne gezogen. Gebiß reduziert. 1.?0.3.3.1. 0.2.3. Untere J lang und dick, vorwärts gerichtet. Backenzähne mit je zwei parallelen Jochen. Extremitätenknochen plump. Zehenzahl vermutlich fünf an Hand und Fuß.
Die Pyrotheria sind auf das ältere Tertiär von Patagonien beschränkt und gehören zu den größten aller südamerikanischen Huftiere. Sie treten zuerst in den Notostylopsschichten auf und erlöschen, nachdem sie in den Pyrotherium-Schichten den Höhepunkt ihrer Entwicklung erreicht haben.
Der Schädel kann nur kurz gewesen sein, weil die Backenzähne schon in der Nähe der stoßzahnartigen J beginnen. Die Orbita liegt beim erwachsenen Tier oberhalb P4. Im definitiven Gebiß fehlen obere J. P2 ist dreieckig und besteht aus zwei Außen- und zwei kleinen Innenhöckern, P3 hat einen Vorderhöcker und ein Querjoch. Alle übrigen P den M gleich und wie diese mit zwei parallelen Querjochen und Basalband, das an den oberen M außen und vorne, an den unteren innen und hinten verdickt ist. Unterkiefer mit breitem aufsteigenden Ast und schwachem Coronoidfortsatz.
Scapula mit kräftigem Coracoidfortsatz. Oberarm und Oberschenkel viel länger als Unterarm und Unterschenkel. Humerus von vorne nach hinten stark komprimiert, ohne Foramen entepicondyloideum, aber beiderseits mit weit hinaufragenden Epicondylarcristae und mit starker, außen gelegener Deltoidcrista. Nach Gaudry spricht diese Organisation für grabende Tätigkeit verbunden mit großer Beweglichkeit der Finger. Radius kurz, mit der Ulna verwachsen. Olecranon hoch. Ileum auf lange Strecken am Sacrum befestigt. Femur nur mit erstem Trochanter, aber mit hochstehendem Caput. Tibia und Femur stehen senkrecht übereinander. Fibula oben und unten mit der Tibia verwachsen. Astragalus abgeplattet, mit ebenem Tibialgelenk dicht neben den Gelenkflächen für Naviculare und Calcaneum. Naviculare ganz unter dem Astragalus gelegen, daher wahrscheinlich vertikale Zehenstellung.
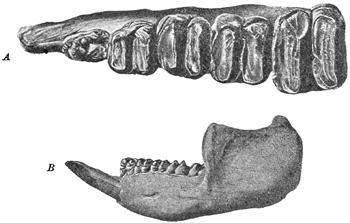
Fig. 722.
Pyrotherium Romeroi Ameghino. Untermiocän. Patagonien. A obere Backenzähne von unten, 1/4 nat. Gr., B Unterkiefer, 1/12 nat. Gr. (Nach Gaudry.)
Sowohl die Zähne als auch die Extremitätenknochen sind denen der Proboscidier, namentlich Dinotherium ähnlich, weshalb auch Ameghino die Proboscidier von Pyrotherium ableitet. Im Zahnbau besteht auch große Ähnlichkeit mit Diprotodon. Es kann jedoch weder von einer Verwandtschaft mit diesem Marsupialier noch mit den Proboscidiern die Rede sein. Die Herkunft der Pyrotheria ist vorläufig vollständig unbekannt.
Pyrotherium Ameghino. 1.?0.3.3.1. 0.2.3. (Fig. 722) Joche der gerundet vierseitigen Backenzähne senkrecht zur Zahnreihe, an den unteren M nach rückwärts, an den oberen nach vorwärts konvex. Untermiocän von Chubut. Patagonien. P. Romeroi Ameghino.
Propyrotherium Ameghino. Kleiner. Oligocän. Astraponotusschichten. P. saxaeum Ameghino.
Carolozittelia Ameghino. Unterer J mit langer Wurzel. Obere M kreisrund mit zwei schräg nach rückwärts verlaufenden Jochen. Untere M oval, mit zwei zur Zahnreihe fast senkrechten Querjochen. M3 mit drittem Joch. Tapirgröße. Obereocän von Patagonien. Notostylopsschichten.
Ricardowenia und Archaeolophus Ameghino. Ganz problematisch.
9. Ordnung. Subungulata.
Meist große plantigrade oder digitigrade oder dem Wasserleben angepaßte Pflanzenfresser mit ursprünglich vollständigem, brachyodont-bunodontem Gebiß. Ein Incisivenpaar frühzeitig vergrößert, häufig zu Stoßzähnen umgewandelt, die übrigen J und C reduziert oder ganz fehlend oder in einander übergehend. M anfangs praktisch quadrituberkulär, die oberen mindestens ebensolang wie breit. P bald den M ähnlich. Carpus und Tarsus schwach alternierend oder serial, Centrale Carpi öfters vorhanden. Extremitäten mannigfach spezialisiert, bei Wasserbewohnern die hintere vollkommen reduziert. Schädel anfangs lang gestreckt und niedrig, mit breitem Hinterhaupt. Uterus bicornis, Placenta zonal, meist deziduat.
Wegen der hochgradigen Spezialisierungen, welche alle Skelettelemente der hierher gestellten Unterordnungen erfahren haben, ist eine präzisere Diagnose nicht möglich. Sie treten sämtlich fast gleichzeitig in Ägypten auf und zwar mit Formen, welche einen niedrigen Schädel mit breitem Hinterhaupt, wohl entwickeltem Scheitelkamm und schmalem Cranium besitzen, und meist Vergrößerung eines Incisivenpaares, verbunden mit Reduktion der übrigen J und C aufweisen. Die M sind bunodont, brachyodont und praktisch quadrituberkulär. Ihre Höcker verbinden sich paarweise zu Jochen, die im Unterkiefer öfters halbmondförmig werden. Die P werden ziemlich bald M-ähnlich und die J, C und P gehen, wenn keine Vergrößerung eines vorderen Incisivenpaares erfolgt, allmählich ineinander über. Auch die Beschaffenheit der Schädelbasis scheint bei allen ziemlich ähnlich gewesen zu sein.
Die Extremitäten zeigen allerdings schon bei den ältesten Vertretern der Subungulata sehr verschiedene Spezialisierung. Die ältesten Hyracoidea haben, abgesehen von dem bunodonten Gebiß, bereits alle wesentlichen Merkmale der lebenden Formen, dagegen nähert sich Moeritherium, der primitivste Proboscidier, den Sirenen nicht bloß im Zahnbau, sondern auch in der Gestalt gewisser Knochen wie Humerus, Scapula und Pelvis, so daß die gemeinsame Stammform beider nicht mehr allzuweit zurückliegen dürfte, und die Embrithopoda zeigen trotz ihrer stark abweichenden Bezahnung im Extremitätenbau so viele Anklänge an die Proboscidier, daß an einer, wenn auch entfernten Verwandtschaft kaum zu zweifeln ist.
Daß die Abzweigung der vier Unterordnungen aus einer gemeinsamen bunodonten Stammform schon lange vor dem Obereocän erfolgt sein muß, sehen wir unter anderem auch daraus, daß bei keiner mehr das primitive Merkmal der Anwesenheit eines Entepicondylarforamen am Humerus vorhanden ist. Verwandtschaftliche Beziehungen zu den Notoungulata dürften vollkommen ausgeschlossen sein, denn das Gebiß dieser südamerikanischen Typen ist anscheinend direkt aus einem sekodonten hervorgegangen, während dem der Subungulata unzweifelhaft ein bunodontes zugrunde liegt, weshalb wir vielleicht doch eine Anknüpfung an ein Condylarthrenstadium erwarten dürfen.
1. Unterordnung. Embrithopoda. Andrews.
Riesige Pflanzenfresser mit lophodonten M. Vorderextremität ähnlich der der Proboscidier, Hinterextremität Amblypoden-ähnlich. Obereocän und Oligocän von Ägypten.
Familie. Arsinoitheriidae. Andrews.
Riesige Huftiere mit einem Paar großer knöcherner Hornzapfen auf den Nasen- und zwei schwachen Hörnern auf den Stirnbeinen. Kurze, hohe Schnauze mit vorne abgeschlossener Nasenöffnung. Hinterhaupt nach vorne geneigt, mit dickem Supraoccipitalwulst. Orbita hinten offen. Gebiß vollständig. 3.1.4.3.3.1.4.3. J, C und P allmählich ineinander übergehend und dicht aneinanderschließend. P einfacher als die M. Obere und untere M aus je zwei ⋁artigen Kämmen gebildet, deren vorderer Schenkel verkümmert ist. Humerus und Femur lang und massiv. Tibia und Fibula kurz, Ulna viel dicker als Radius. Astragalus flach mit schwach gewölbter Trochlea und mit Gelenkfläche für das Cuboid. Vorder- und Hinterfuß sehr kurz, fünfzehig.
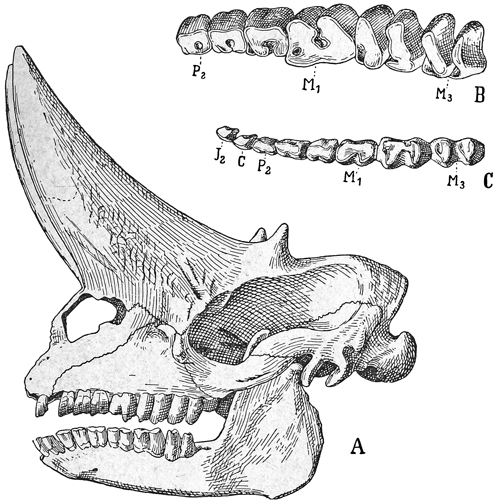
Fig. 723.
Arsinoitherium Zitteli Beadnell. Oligocän. Fayum. Ägypten. A Schädel 1/9 nat. Gr. B obere, C untere Zahnreihe 2/9 nat. Gr. (nach Andrews.)
Die Arsinoitheria sind auf das Oligocän von Ägypten beschränkt. Der Schädel hat ungefähr die Größe und auch in seiner Form eine gewisse Ähnlichkeit mit dem von Rhinoceros, allein die Nasenöffnung wird hier im Alter vorne durch eine Knochenspange abgeschlossen. Die hohen, auf den Nasenbeinen sitzenden vorderen Hornzapfen erinnern etwas an jene der Titanotheriiden. Der aufsteigende Ast des Unterkiefers ist sehr hoch und schmal. Die Zähne stehen dicht aneinander und gehen vom vordersten meißelförmigen J bis zum P4 ganz allmählich ineinander über. Die oberen P haben eine gerade Außenwand und ein schräges Querjoch, die unteren bestehen aus zwei stark zusammengedrückten Halbmonden. Sie sind insgesamt sehr kurz und weichen hierin stark von den M ab. Die M bestehen aus je zwei ⋁förmigen Halbmonden, deren vorderer Schenkel bis auf eine scharfe Kante verkümmert, während der hintere ein breites hohes, etwas schräg nach rückwärts gerichtetes Joch bildet. Bei vorgeschrittener Abkauung kommt es scheinbar zur Bildung einer Innenwand. Die unteren M erinnern etwas an jene von Coryphodon, die oberen an die von Uintatherium. Von den Milchzähnen gleichen die beiden letzten vollkommen den M.
Die Extremitätenknochen sind ungemein plump, die Scapula ist breiter als hoch, der Humerus besitzt eine mächtige Deltoidcrista, aber kein Entepicondylarforamen. Die Ulna ist viel dicker als der Radius und mit einem riesigen Olecranon versehen. Sie ruht halb auf dem Lunatum. Das Becken zeichnet sich durch die ganz ungewöhnliche Vergrößerung des Ilium aus. Das von vorne nach hinten komprimierte Femur hat nur einen, den großen Trochanter. Die Knochen der Vorderextremität lassen sich am ehesten mit jenen von Uintatherium, die der Hinterextremität mit jenen von Elephas vergleichen. Mit Elephas stimmt auch die Form und Anordnung der Carpalia, Tarsalia und Metapodien fast vollkommen überein, nur der Astragalus unterscheidet sich durch die Anwesenheit einer Gelenkfläche für das Cuboid. Mit den Proboscidiern besteht jedenfalls eine Verwandtschaft.
Die einzige bekannte Gattung ist Arsinoitherium Andrews (Fig. 723). Oligocän von Ägypten. A. Zitteli Beadnell.
2. Unterordnung. Hyracoidea. Klippschliefer.[168]
3-1.1-0.4.3.3-2.1-0.4.3.. J1 lang, vertikal gestellt, nagezahnähnlich, untere J1 und J2 meißelförmig. P mehr oder weniger M-ähnlich. M bunodont bis lophodont, vierwurzelig. Jochbogenunterrand mit besonderer Gelenkfläche für den Unterkiefer. Aufsteigender Unterkieferast stark verbreitert, mit schwachem Coronoidfortsatz und einem Foramen hinter M3. Humerus ohne Entepicondylarforamen. Extremitäten plantigrad oder semidigitigrad. Vorderfuß vierzehig, Hinterfuß dreizehig. Carpus serial mit freiem Centrale. Astragalus distal abgestutzt, mit ausgefurchter Trochlea und tiefer, grubiger Gelenkfläche für den Malleolus tibiae.
Die Hyracoidea waren bis vor kurzem nur durch die kleine Formen enthaltende Gattung Hyrax repräsentiert, welche ursprünglich wegen der Beschaffenheit ihrer J und der äußeren Schädelform zu den Nagern gerechnet wurde. Cuvier wies auf die Ähnlichkeit der Zähne und der Extremitäten mit jenen von Rhinozeros hin und Cope errichtete für Hyrax wegen der serialen Anordnung der Carpalia die Ordnung der Taxeopoda.
Die Hyracoidea zerfallen in die Familien der Hyracidae und der Saghatheriidae.
1. Familie. Hyracidae.
1.0.4.3.2.0.4.3. P den M gleich, wie diese brachyodont und lophodont. Obere M mit W-förmiger Außenwand und zwei schrägen Querjochen. Untere M aus zwei Halbmonden bestehend. Schädeldach eben, Schnauze kurz.
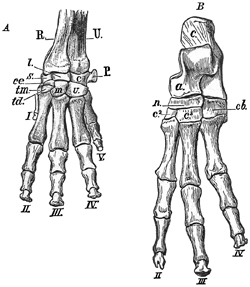
Fig. 724.
Procavia (Dendrohyrax) arborea Smith sp. Cap der guten Hoffnung. A Vorderfuß, B Hinterfuß (nat. Gr.).
Die Hyraciden bewohnen das südliche und östliche Afrika, Arabien und Syrien. Fossile Arten sind nicht bekannt. Von den Saghatheriiden unterscheiden sie sich, abgesehen von ihrer Kleinheit, durch das ebene Schädeldach, die weit vorne liegenden, hinten meist geschlossenen Orbita, durch die Anwesenheit von zwei Temporalcristae an Stelle einer Sagittalcrista und durch die Verkürzung der Schnauze, womit Verlust der C, von J2 und J3 und von J3 verbunden war. Das Milchgebiß enthält noch 2.1.4.3.1.4., wodurch die frühere Anwesenheit von J3, J2 und der C angedeutet wird. Die Extremitäten sind plantigrad, die Endphalangen distal abgeplattet und mit Nägeln versehen.
Die Backenzähne der Gattung Procavia Storr (Hyrax Herm., Heterohyrax und Dendrohyrax Gray) (Fig. 724) erinnern teils an Rhinoceros, teils an Paloplotherium oder Anchilophus.
2. Familie. Saghatheriidae. Andrews.
3.1.4.3.3.1.4.3. J1 groß, dreikantig, untere J1 und J2 meißelartig, mit zwei Einkerbungen am Oberrand. Oberer C P-artig, unterer C und J3, sowie J2 und J3 knopfförmig oder P-artig und meist durch Lücken voneinander und von den vordersten J und den C getrennt. P in der Regel einfacher als die M, jedoch die oberen meist vierhöckerig oder mit einem vollständigen vorderen und einem kurzen hinteren Querjoch. Obere M mit W-förmiger, Parastyl und Mesostyl tragender Außenwand und zwei schrägen, aus je einem kleinen Zwischenhöcker und einem niedrigen Innenhöcker gebildeten Querjochen. Untere M mit zwei mehr oder weniger deutlichen äußeren Halbmonden und zwei Innenhöckern. M3 stets mit drittem Halbmond. Schnauze meist lang und schmal, Cranium gewölbt, mit Sagittalcrista versehen. Orbita weit hinten gelegen, unvollständig geschlossen. Unterkiefer hoch, mit weitem Kanal unterhalb der Zahnreihe, der unter M3 ausmündet. Seitenzehen kürzer und dünner als die Mittelzehe. Carpus serial, hoch und schmal. Distales Astragalusgelenk schwach konvex.
Die Saghatheriiden erscheinen zuerst im Oligocän von Ägypten und entfalten sofort einen ungewöhnlichen Formenreichtum. Ihre Körpergröße schwankt zwischen der von Fuchs und der von Tapir. Im Zahnbau bestehen alle möglichen Übergänge zwischen bunodonten, schweinsartigen — Geniohyus — und lophodonten, Paloplotherium-artigen M — Saghatherium. Die oberen M von Geniohyus und Bunohyrax haben Ähnlichkeit mit jenen von Anthracotheriiden, die von Megalohyrax mit jenen von Palaeotherium. In Ägypten erlöschen die Saghatheriiden sehr bald, nur die Gattung Saghatherium hat in der unterpliocänen Gattung Pliohyrax einen Nachkommen.
Geniohyus Andrews. P einfach, untere M Sus-artig, obere Brachyodus-ähnlich. G. mirus Andr.
Bunohyrax Schlosser. P kompliziert, obere gerundet dreieckig. Untere M mit echten Halbmonden.
Mixohyrax Schlosser (Fig. 725). Obere P viereckig. M lophodont. M. niloticus Schl.
Pachyhyrax Schlosser. Sporne an den Jochen der oberen M.
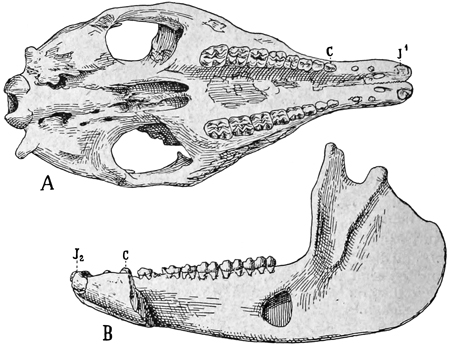
Fig. 725.
Mixohyrax niloticus Schlosser. Oligocän. Fayum. Ägypten. A Schädel von unten, B Unterkiefer von innen, 1/4 nat. Gr.
Saghatherium Andrews, höchstens Schafgröße. Obere P viel einfacher als M, obere M lophodont, untere lophoselenodont. Zahnlücke sehr kurz. S. antiquum Andr.
Megalohyrax Andrews. Größter aller Saghatheriiden. P fast sämtlich gleich M. M. eocaenus Andr.
Pliohyrax Osborn (Leptodon Gaudry). Unterkiefer ohne Zahnlücke. J3, beide C sowie J2 und J3 P-ähnlich. Unterpliocän von Pikermi und Samos. P. graecus Gaudry sp.
3. Unterordnung. Proboscidea.[169] Rüsseltiere.
Große fünfzehige, meist hochbeinige, semidigitigrade Pflanzenfresser mit Rüssel. Schädel groß, meist mit grobzelligen Luftkammern in der Diploë. Anfangs ein paar obere und untere J vergrößert, später nur 11-0 J vorhanden, C nur bei der primitivsten Gattung anwesend. Backenzähne erst bunolophodont, dann lophodont und zuletzt aus vielen schmalen Querlamellen bestehend. Femur fast immer ohne dritten Trochanter. Carpalia serial angeordnet. Astragalus breit mit schwach gewölbter Trochlea. Calcaneum mit Fibula artikulierend.
Die Herkunft der Proboscidier war bisher in völliges Dunkel gehüllt, doch vermutete schon Blainville verwandtschaftliche Beziehungen zu den Sirenia, was jetzt durch die Funde im Oligocän von Ägypten bestätigt wurde, denn die ältesten Formen haben unter anderem auch die hohe Zahnzahl und den Bau des Schädels und der Backenzähne mit den Sirenen gemein.
Das Gebiß der Proboscidier enthält außer bei Moeritherium nur Incisiven und Backenzähne und selbst hier ist schon ein Paar J vergrößert. Bald verschwinden die übrigen J vollständig, die bleibenden werden zu riesigen gekrümmten Stoßzähnen, auch das bei den älteren Mastodon-Arten noch vorhandene untere Incisivenpaar geht verloren. Die Stoßzähne bestehen aus dichtem elastischem Elfenbein, welches im Querschnitt bogenförmige, vom Zentrum nach der Peripherie gerichtete Linien zeigt, die in zweierlei Richtung verlaufen und sich W-förmig, wie die Guillochierung eines Uhrgehäuses schneiden. Namentlich der hintere Teil der Stoßzähne wird häufig mit einer dünnen Schmelzschicht überzogen. Die Zähne liegen in tiefen Alveolen der Zwischenkiefer und haben eine große offene Pulpa.
Die Backenzähne der lebenden Elefanten unterscheiden sich durch ihre gewaltige Größe, durch die hohe Zahl der stark komprimierten Querjoche und durch die starke Entwicklung von Zement in den Quertälern von allen Huftierzähnen, stehen jedoch durch Übergänge mit den bunolophodonten Zähnen von Moeritherium in Verbindung, welche aus je zwei Paar jochartig verbundener Höcker und einem kleinen Talon gebildet sind. Bei Palaeomastodon nimmt die Zahl der Joche zu, die Zahl der Unterkieferzähne hingegen um einen ab. Bei Mastodon erfolgt immer weitergehende Reduktion der gleichzeitig fungierenden Zähne, wofür jedoch die Zahl der Joche allmählich größer wird. Noch bedeutender ist die Zahl der Querjoche bei Stegodon — 6 bis 12 —, dessen Quertäler auch schon mit Zement ausgefüllt sind. Bei Elephas steigt die Jochzahl bei jedem neuauftretenden Zahn und beträgt zuletzt bis zu 27. Die von Moeritherium bis Stegodon noch brachyodonten Zähne werden bei Elephas hypselodont. Die Joche werden zu Platten, die mittels Zement aneinander gekittet sind, das auch anfangs die Oberseite der Krone überzieht. Durch die Abkauung entsteht aus diesen »elasmodonten« Zähnen eine ebene Fläche, in welcher breitere Querstreifen von Zement mit dünnen Lamellen von Schmelz und Dentin miteinander wechseln und so eine zur Zerkleinerung der pflanzlichen Nahrung trefflich geeignete Reibfläche erzeugen. Bei Dinotherium haben sich je zwei benachbarte Höcker in schmale, scharfe Joche umgewandelt, ähnlich wie bei Tapir. Auch unter den Mastodon-Arten gibt es solche »tapiroide« Formen.
Die Zahl der M beträgt je drei in einem Kiefer. Vor ihnen stehen ursprünglich drei P. Dann geht die Zahl der P auf zwei zurück. Sie sind viel einfacher gebaut als die M und ersetzen die drei D. Bei Elephas, Stegodon und den meisten Mastodon fehlen P. Alle Backenzähne stehen anfangs in horizontalen Reihen und die P treten von unten an die Stelle der D. Von Mastodon an sind nie mehr als drei Zähne gleichzeitig in Funktion, später nur zwei und zuletzt nur einer. Sie entwickeln sich dann in großen Zeitintervallen und rücken, indem sie einen Bogen beschreiben, nach vorne, wobei sie den vorhergehenden Zahn allmählich ausschieben. Dieser Zahnwechsel dauert so lange das Tier lebt, und die Backenzähne werden bis auf unscheinbare Kronenreste abgerieben. Die Abkauung beginnt am vordersten Teil des Zahnes.
Der Schädel (Fig. 726) erfährt von Moeritherium bis Elephas folgende Veränderungen. Die allmähliche Entwicklung des Rüssels und der Stoßzähne verursacht Verkürzung der Zwischenkiefer und Aufwärtsrücken der Nasenlöcher und diese Vorgänge wieder Wölbung des Schädels, die Bildung von Luftzellen und Verbreiterung des Hinterhauptes. Die Oberkiefer werden höher und die Jochbogen schwächer. Dagegen verlängert sich zuerst der Symphysenteil der Unterkiefer, um sich dann später nach Verlust der unteren Stoßzähne wieder zu verkürzen. Der aufsteigende Ast wird höher, aber dafür schwächer und das Kiefergelenk rückt immer höher hinauf.
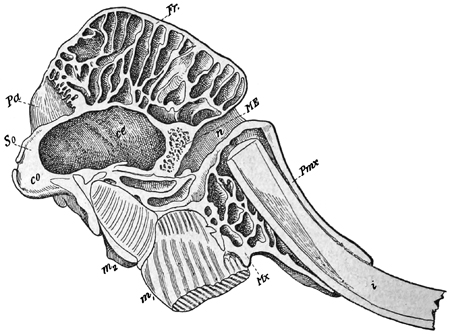
Fig. 726.
Schädel von Elephas indicus (vertikaler Längsschnitt). So Supraoccipitale, co Hinterhauptscondylus, Pa Scheitelbein, Fr Stirnbein, Mx Oberkiefer, Pmx Zwischenkiefer, ME Mesethmoideum, ce Hirnhöhle, n Nasenhöhle, i Schneidezahn, m1 m2 erster und zweiter Backenzahn.
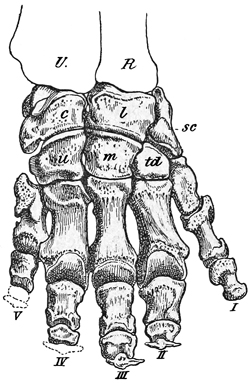
Fig. 727 A.
Vorderfuß von Elephas indicus Lin. (U Ulna, R Radius, sc Scaphoideum, l Lunare, c Cuneiforme [Triquetrum], u Unciforme, m Magnum, td Trapezoid).
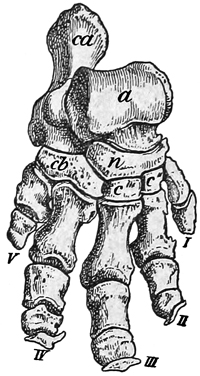
Fig. 727 B.
Rechter Hinterfuß von Elephas indicus. (ca Calcaneum, a Astragalus, n Naviculare cb Cuboideum, c III, c II Cuneiforme tertium und secundum, I-V erste bis fünfte Zehe.
Die Extremitäten der Proboscidier (Fig. 727) sind hoch und stämmig, die langen Knochen ohne Markhöhlen. Ein Schlüsselbein fehlt. Die Ulna ist namentlich distal viel dicker als der Radius. Die Carpalia sind mehr oder weniger serial angeordnet. Der Elefant besitzt in der Jugend ein Centrale. Die seitlichen Metacarpalia (I und V) sind kürzer und schwächer als die mittleren. Der ganze Fuß steckt in einer gemeinsamen Hülle, aus welcher die einzelnen, von hufartigen Nägeln bedeckten Zehen nur wenig vorragen. Am Femur fehlt meist ein dritter Trochanter. Tibia und Fibula sind getrennt, die letztere distal verdickt. Sie ruht auf Astragalus und Calcaneum. Der Astragalus hat eine mäßig gewölbte Trochlea und artikuliert distal nur mit dem Naviculare.
Die Proboscidier sind heutzutage auf die tropischen Teile von Afrika und Asien beschränkt. Sie beginnen im Eocän von Ägypten, verbreiten sich im Miocän über die nördliche Halbkugel und erreichen erst im Pleistocän auch Südamerika. Als Leitfossilien sind ihre Backenzähne wegen der vielfachen Übergänge zwischen den zeitlich aufeinander folgenden Arten und wegen der bedeutenden Größenschwankungen bei ein und derselben Art nur mit Vorsicht verwendbar.
1. Familie. Moeritheriidae.
3.1.3.3.2.0.3.3. J2 oben und unten vergrößert und der obere als gekrümmter Hauer entwickelt. J11 und J3 sowie C klein. P einfacher als die M, wie diese brachyodont. Obere P trituberkulär, untere P aus zwei vorderen und einem hinteren Höcker bestehend. M mit je zwei Höckerpaaren und einem Talon. Vorderpartie der unteren P und M höher als die hintere. Schädel niedrig, fast eben, mit langem schmalem Cranium und massiven, vorspringenden Jochbogen.
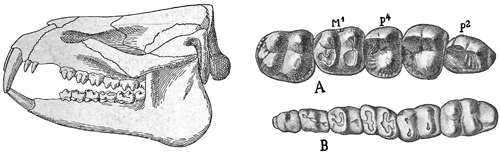
Fig. 728.
Moeritherium Lyonsi Andrews. Obereocän. Fayum. Ägypten. Schädel. 1/9 nat. Gr. B untere Backenzähne, 1/3 nat. Gr. (nach Andrews.). A Moeritherium. Oligocän. Fayum. Obere Backenzähne. (1/2 nat. Gr.)
Die Moeritheriiden treten zuerst im Obereocän von Ägypten auf und erlöschen daselbst im Oligocän. Sie vermitteln im Schädelbau und in der Zahl und Beschaffenheit der Zähne den Übergang von den Sirenen zu den Proboscidiern und zeigen aufs deutlichste, daß beide einen gemeinsamen Ursprung besitzen.
Moeritherium Andrews (Fig. 728). Untere J meißelförmig, nach vorne gerichtet, obere J und C fast vertikal gestellt. J2 in beiden Kiefern vergrößert, der obere als gekrümmter, massiver Hauer entwickelt. Die übrigen J und C relativ klein. J und C allseitig mit Schmelz bedeckt. Obere P mit zwei Außen- und einem Innenhöcker. P2 dreieckig. M in beiden Kiefern aus je zwei Außen- und Innenhöckern bestehend, die sich paarweise zu Querjochen verbinden. Die unteren M mit kräftigem, die oberen mit schwachem Talon. Untere P mit unpaarem Vorderhöcker, vordere Hälfte höher als die hintere. Nasenöffnung weit vorne stehend, mit kurzem Rüssel versehen, Schädeldach fast vollkommen eben, Orbita weit vorne gelegen. Nasenbeine kurz. Stirn- und Scheitelbeine lang, Cranium schmal und niedrig, mit Sagittalcrista versehen. Hinterhaupt vertikal, Jochbogen vorne und hinten massiv, weit vorspringend und hinten nahe am Occiput endend. Obereocän M. Lyonsi Andr. Oligocän M. Andrewsi Schlosser.
Die Extremitätenknochen sind schlank. Das Femur hat einen dritten Trochanter und der Astragalus einen relativ langen Hals. Das Sacrum verjüngt sich unmerklich nach hinten, was auf einen langen Schwanz schließen läßt, und das Ilium zeichnet sich durch seine Länge und Schmalheit aus. Es gleicht fast dem von Creodontiern.
Moeritherium hatte etwa die Größe von Tapir.
2. Familie. Barytheriidae. Andrews.
?.?.3.3.1.0.3.3. Unterer J groß, vorwärts geneigt, durch eine lange Lücke von P2 getrennt. P2 dreieckig, P3 und P4 mit einem dicken Querjoch, die unteren P gleich den M aus zwei fast geraden Querjochen bestehend. M3 mit einem dritten Joch. Untere M vierwurzelig. Joche der oberen M nach hinten etwas konkav. Unterkiefer massiv, mit breitem aufsteigendem Ast.
Barytherium Andrews. Die systematische Stellung dieser nur unvollständig bekannten Gattung ist ziemlich unsicher. Ihr Zahn- und Kieferbau — massiv, mit breitem aufsteigendem Ast — und die gewaltige Körpergröße erinnert an Dinotherium. Der distal stark verbreiterte Humerus ist mit einer außerordentlich starken Deltoidcrista versehen, und der stämmige Radius artikuliert gleichmäßig mit Lunatum und Scaphoid. Obereocän von Ägypten. B. grave, Andrews.
3. Familie. Dinotheriidae.
0.0.2.3.1.0.2.3. Unterkiefersymphyse nach unten gebogen, mit einem Paar rückwärts gekrümmter Stoßzähne. M1 in beiden Kiefern mit drei, die übrigen mit zwei einfachen, zugeschärften, durch breite Täler getrennten Querjochen. Ohne Zement. Alle Zähne in einer Ebene, Zahnwechsel normal.
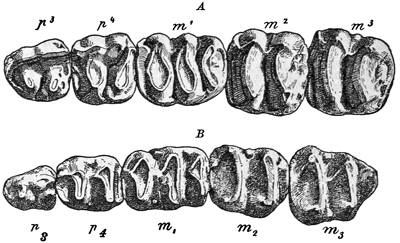
Fig. 729.
Dinotherium bavaricum Meyer. Ob. Miocän. Breitenbronn b. Augsburg. A Backenzähne des Oberkiefers, B Backenzähne des Unterkiefers. ca. 1/4 nat. Gr.
Dinotherium Kaup (Fig. 729) hat einen nur mäßig hohen Schädel mit langen Zwischenkiefern und breiten Stirnbeinen. Unterkiefersymphyse vorn mit breiter Furche, stark abwärts gekrümmt. Die gewaltigen, nach unten gerichteten und nach hinten gebogenen J sind in tiefe Alveolen eingefügt. M1 in beiden Kiefern mit drei, die übrigen mit zwei Querjochen, die an den oberen nach vorne konvex, an den unteren nach vorne etwas konkav verlaufen. Obere M fast quadratisch, dreiwurzelig, untere länger als breit. M3 mit starkem Talon. Skelett ähnlich dem von Mastodon. Dinotherium übertrifft an Größe die meisten Elefantenarten.
Im Obermiocän von Europa D. bavaricum Meyer (levius Jourdan). Im Unterpliocän von Europa und auf Samos (?) D. giganteum Kaup. In Ostindien D. sindiense Lydekker.
4. Familie. Elephantidae.
Obere J als große gerade oder gekrümmte Stoßzähne ausgebildet. Untere J schwächer und gerade, meist fehlend. M groß, aus mehr als zwei Querjochen zusammengesetzt. Quertäler öfters mit Zement ausgefüllt. P einfacher als M, häufig fehlend. Zahnwechsel anfangs normal, später durch Ausschieben der vorderen Zähne von hinten erfolgend. Oligocän bis Gegenwart.
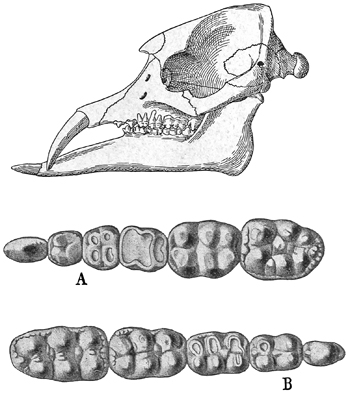
Fig. 730.
Palaeomastodon. Oligocän. Fayum. Ägypten. Schädel ca. 1/10 nat. Gr. (nach Andrews.) A Obere, B untere Backenzähne, 1/3 nat. Gr.
Palaeomastodon (Phiomia) Andrews (Fig. 730) 3.3.0.1.1.0.2.3. Backenzähne in gerader Reihe, gleichzeitig funktionierend. Obere J relativ kurz, seitlich komprimiert, säbelförmig. Untere J als lange Schaufeln entwickelt. Alle J auf der Außenseite mit Schmelz versehen und mit persistierender Pulpa. P2 und P3 einhöckerig mit Talon, P3 mit großem Außen- und kleinem Innenhöcker. P4 oben und unten mit vier paarig angeordneten Höckern. M wie bei Mastodon, mit je drei aus zwei Höckern bestehenden Querjochen. M3 meist mit Talon. Unterkiefersymphyse verlängert. Nasenöffnung hoch und weit zurückgeschoben. Schädel ziemlich hoch und kurz, Scheitelbeine gewölbt, mit Sagittalcrista versehen. Oligocän von Ägypten. P. Beadnelli Andr. besaß einen mäßig langen Rüssel.
Mastodon Cuvier. (Fig. 731-733.) Schädel ähnlich dem von Elephas, jedoch Stirne bei den älteren Arten weniger hoch ansteigend, Oberkiefer niedriger, Unterkiefersymphyse anfangs verlängert. Skelett plumper. 1. 0.3-0.3.1-0.0.2-0.3. Obere J meist gerade, seltener gebogen, bei den älteren Arten außen mit breitem Schmelzband. Untere J kürzer, bei den späteren Arten fehlend. Backenzähne oblong, mit drei, vier, seltener fünf bis sechs hohen, entweder einfachen (Zygolophodon, tapiroid) oder in zitzenförmige Höcker aufgelösten Querjochen (Bunolophodon), die durch tiefe, zuweilen mit etwas Zement versehene Täler getrennt sind, in welchen häufig Sekundärhöcker auftreten. Jedes Joch und somit auch die ganze Krone wird durch einen medianen Spalt in zwei Hälften zerlegt. Die Krone der oberen Zähne ist innen stärker abgekaut als außen. Die etwas schmäleren unteren Zähne verhalten sich umgekehrt. Auch sind ihre Wurzeln einfach, die der oberen hingegen geteilt. Der letzte M hat häufig ein Joch mehr als der vorletzte.
Das Milchgebiß besteht aus 1. 0.31-0.0.3. Die zwei hinteren D werden bei den älteren Arten von unten her durch zwei P ersetzt, bei den späteren werden die D wie bei Elephas von vorne nach hinten ausgeschoben. Nach der Zahl der Joche unterscheidet man zwei Untergattungen: Trilophodon mit D 1-2.2.31-2.2 3 (P 2.22.2), M 3.3.43.3.4 und Tetralophodon mit D 2.3.42.3.4 (P 2.22.2) M 4.4.54.4.5 Jedoch kann die Zahl der Joche individuell um eins zunehmen.
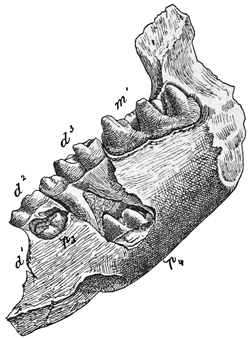
Fig. 731.
Mastodon angustidens Cuv. Miocän. Simorre. Gers. Rechter Unterkieferast von innen im Zahnwechsel, d1 d2 d3 Milchbackenzähne, p3 p4 Ersatzprämolaren, m1 erster Molar. 1/4 nat. Gr. (Nach Lartet.)
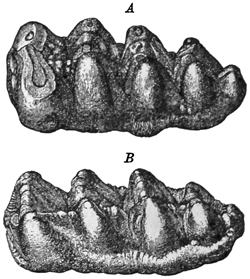
Fig. 732.
A Mastodon angustidens Cuv. Miocän. Il-en-Dodon. Letzter unterer Backenzahn. 1/4 nat. Gr. B Mastodon turicensis Cuv. Miocän. Simorre. Gers. Letzter unterer Backzahn. 1/5 nat. Gr. (Nach Gaudry.)
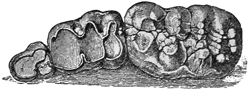
Fig. 733.
Mastodon (Tetralophodon) longirostris Kaup. Unt. Pliocän. Eppelsheim. Die drei oberen Milchbackenzähne. 1/3 nat. Gr. (Nach Kaup.)
Im Mittel- und Obermiocän von Europa M. (Tril.) angustidens Cuv. (auch in Nordafrika) und turicensis Schinz (tapiroid) sehr häufig, der erstere in Ostindien durch M. palaeindicus vertreten. Im Unterpliocän von Europa M. (Tetral.) longirostris Kaup, von Pikermi, Samos, Persien. M. Pentelici Gaudry (tapiroid) — in Ostindien. M. (Tril.) Falconeri Lyd., Pandionis Falc. (auch in China), M. (Tetral.) sivalensis Cautl., perimensis Lyd. (auch in China), Cautleyi Lyd., latidens Clift. in ganz Ostasien. Im Obermiocän von Nordamerika M. (Tril.) proavus und breviceps Cope, im Unterpliocän M. (Tril.) productus, euhypodon, campester, serridens Cope, floridanus Leidy, im Unter- und Mittelpliocän von Europa M. (Tril.) Borsoni Hays (tapiroid), im Oberpliocän in Europa M. (Tetral.) arvernensis Croiz. und Job, in Nordamerika M. (Tril.) Shepardi, tropicus Cope und M. (Tetral.) mirificus Leidy. — Die Gattung Mastodon existiert in Amerika auch noch im Pleistocän, sie wird hier im Schädel- und Kieferbau ganz Elephas ähnlich und es fungieren nie mehr als zwei Zähne gleichzeitig. In Nordamerika M. (Tril.) americanus Cuv. öfters in vollständigen Skeletten erhalten, in Süd- und Zentralamerika M. (Tetral.) Humboldti Cuv., im westlichen Südamerika M. Andium Cuv. und M. bolivianus Phil. Mastodon findet sich auch in den Diamantseifen von Südafrika.
Stegodon Falconer (Fig. 734, 735). Übergangsform von Mastodon zu Elephas, mit dem ersteren durch M. latidens verbunden. Ohne untere J. Obere J lang, ohne Schmelzband. M mit 6-12 niedrigen, dachförmigen, etwas konvexen und meist vielwarzigen Jochen. Täler teilweise mit Zement ausgefüllt. M1 und M2 mit gleicher Jochzahl. Obere M mit etwas weniger Jochen als die unteren. Mittel- und Oberpliocän von Süd- und Ostasien. St. insignis Falc., bombifrons Falc. Im Pleistocän des Narbadatales St. Ganesa Falc., von Java St. Airawana Martin.
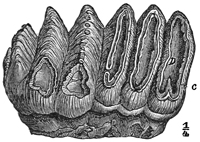
Fig. 734.
Stegodon Clifti Falcon. u. Cautley. Pliocän (oder Pleistocän) von Birma. Erster oberer Molar. 1/4 nat. Gr. D Dentin, c Zement. (Nach Clift.)
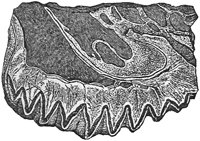
Fig. 735.
Stegodon insignis Falcon. Siwalik. Ostindien. Oberer Molar, der Länge nach durchgeschnitten. 1/6 nat. Gr. (Nach Falconer.)
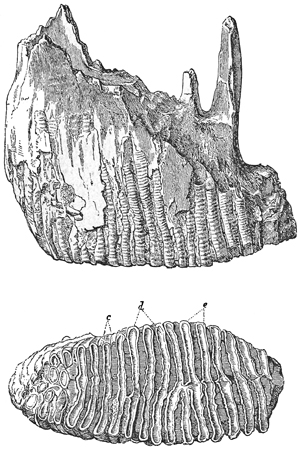
Fig. 736.
Elephas primigenius Blumb. Diluvium. Essex. Oberer Backenzahn von der Seite und von unten. 1/5 nat. Gr. (Nach Owen.) e Schmelz, d Dentin, c Zement.
Elephas Lin. (Fig. 736). 1.0. 30.0. 3, seltener 1.0.2.30.0.2.3. J ohne Schmelzband. M aus 5-27 hohen, komprimierten, am Oberrand gekerbten Querjochen bestehend. Täler ganz mit Zement ausgefüllt. Durch Abkauung entsteht eine ebene Fläche. Beim indischen Elefanten fällt D2 im zweiten, D3 im 5. und D4 im 9. Lebensjahr aus. M1 tritt erst im 15. Jahre in Funktion. Meist nur ein Zahn in jedem Kiefer im Gebrauch.
Die Zahl der Querjoche vermehrt sich bei jedem neu auftretenden Zahn, so daß »isomere« Zwischenzähne mit gleicher Jochzahl hier nicht vorkommen, während sie bei Mastodon häufig sind. Die Jochzahlen sind bei den wichtigsten Arten folgende:
D2 D3 D4 M1 M2 M3
Elephas africanus u. planifrons 33 66 77 77 88-9 1011
» meridionalis 33 5-65-6 7-87-8 8-98-9 8-119-11 10-1411-14
» antiquus 33 5-75-8 8-119-11 9-1210-12 12-1312-13 15-2016-21
Elephas indicus 44 88 1212 12-1412-14 16-1816-18 2424-27
» primigenius 44 6-96-9 9-129-12 9-159-15 14-1614-16 18-2718-27
Falconer teilt die Gattung Elephas in zwei Subgenera: Loxodon mit niedrigen, breiten, wenig zahlreichen Jochen, die bei der Abkauung rhombische Figuren bilden, und Euelephas mit hohen, schmalen, zahlreichen Jochen, die vollkommen parallel verlaufen. Die Zähne zerfallen leicht in die einzelnen lamellenartigen Joche. Fossile Elefanten erscheinen zuerst im Pliocän von Ostindien, E. (Lox.) planifrons und (Euelephas) hysudricus Falc. Im Oberpliocän von Europa Euelephas meridionalis Nesti, das größte aller bekannten Landsäugetiere, in Italien mit ihm vielleicht schon zusammen der sonst für das ältere europäische Pleistocän charakteristische Euel. antiquus Falc. Zwergrassen von diesem sind E. mnaidriensis Leith Ad. und melitensis Falc. auf den Mittelmeerinseln. E. namadicus Falc. vertritt den antiquus im älteren Pleistocän von Ost- und Südasien. Auf Java E. hysudrindicus Dubois. Im Pleistocän des südlichen Nordamerika E. imperator Leidy, des mittleren E. Columbi Falc., und im nördlichen der auch in Europa und Nordasien so verbreitete E. primigenius Blumb., das Mammut. Es ist charakteristisch für das jüngste Pleistocän. In Sibirien finden sich im gefrorenen Boden ganze Leichen mit Fleisch und wolligem Haar. Im europäischen Altpleistocän außer antiquus auch E. trogontherii Pohlig.
4. Unterordnung. Sirenia Seekühe.[170]
Dickhäutige, nackte, kurzhalsige, meist monophyodonte Pflanzenfresser. Nasenlöcher nach vorne gerichtet. Vorderfuß flossenartig. Hinterfuß frühzeitig reduziert. Schwanzflosse horizontal. Zwei Zitzen an der Brust.
Die Sirenen bewohnen den Unterlauf größerer Flüsse und Meeresküsten. Ihr zylindrischer, mit horizontaler Schwanzflosse versehener Körper, dessen Vorderfüße zu beweglichen Flossen umgestaltet sind, während die Hinterfüße höchstens durch Rudimente von Pelvis und Femur angedeutet werden, erinnert zwar an Cetaceen, die einzelnen Knochen haben jedoch viele Ähnlichkeit mit denen von primitiven Proboscidiern. Sie besitzen eine ungemein dichte Struktur, namentlich die Rippen und Wirbel zeichnen sich durch elfenbeinähnliche Beschaffenheit und bedeutende Schwere aus. Die langen Extremitätenknochen haben keine Markhöhlen. Auch die Schädelknochen sind zum Teil sehr dicht.
Die sehr kurzen Körper der Halswirbel bleiben in der Regel getrennt, die der Rückenwirbel haben annähernd dreieckigen Querschnitt und unten einen Kiel. Dornfortsätze und Zygapophysen sind wohl entwickelt. Die Zahl der Lendenwirbel ist 2-3, die der Sacralwirbel 1-2.
Der Schädel (Fig. 738) zeichnet sich durch starke Jochbogen, große Schläfenbeine und eigentümlich gestaltetes Perioticum und Tympanicum aus. Scheitel- und Stirnbeine bilden das Schädeldach. Die Nasenbeine sind verkümmert und die Nasenlöcher weit nach hinten gerückt. Die plumpen Unterkiefer besitzen einen hohen aufsteigenden Ast.
Das Gebiß besteht fast nur aus lophodonten oder bunodonten Backenzähnen, welche etwas an die von Tapir resp. von Schwein erinnern. Ihre Zahl schwankt zwischen 4 und 10. Bei den Halicoriden werden die D anfangs durch P ersetzt, später unterbleibt der Zahnwechsel. Dagegen bilden sich bei den Manatiden hinten immer neue Zähne, so daß gleichzeitig in einem Kiefer 7-11 Zähne funktionieren. C fehlen meistens, dagegen sind die J, namentlich die oberen, öfters sehr kräftig.
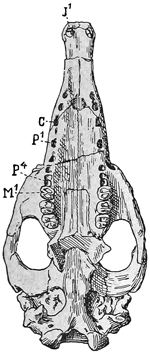
Fig. 737.
Protosiren Fraasi Abel. Obereocän. Fayum. Ägypten. Schädel von unten. 1/6 nat. Gr. (Nach Andrews.)
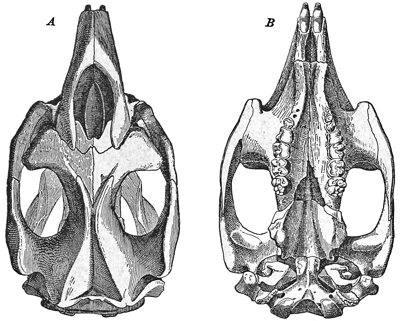
Fig. 738.
Halitherium Schinzi. Kaup. Oligocän. Flonheim b. Alzey. Rheinhessen. A Schädel von oben. B von unten. 1/6 nat. Gr. (Nach Lepsius.)
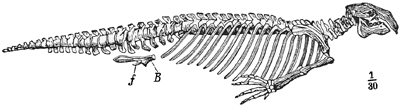
Fig. 739.
Skelett von Halitherium Schinzi. Kaup. Restauriert nach Lepsius. 1/30 nat. Gr. B Becken, f Oberschenkel.
Die Knochen der Vorderextremität sind gelenkig verbunden und beweglich. Schlüsselbeine fehlen, die Scapula ist sichelförmig, Radius und Ulna haben gleiche Stärke und Länge. Die proximale Carpusreihe besteht ursprünglich aus drei, die distale aus vier Knöchelchen, die zum Teil miteinander verwachsen. Die fünf Finger haben schlanke Metacarpalien und die normale Phalangenzahl. Das Becken besteht in der Halitherium — Halicore-Reihe aus einem langen dicken Ilium und aus einem kurzen breiten Ischium. Bei Eotherium befindet sich zwischen Pubis und Ischium noch ein weites Foramen obturatorium. Bei den Manatidae wird das Ilium reduziert. Das rudimentäre, in der Haut verborgene Femur ist bei den späteren Formen nur durch Ligament mit dem Becken verbunden. Becken und Schädel sowie das Gebiß der ältesten Sirenen gleichen fast ganz jenen von Moeritherium, wodurch die schon von Blainville vermutete Verwandtschaft mit den Proboscidea vollkommen sichergestellt wird. Die Sirenen sind also dem Wasserleben angepaßte Huftiere. Die beiden lebenden Gattungen Manatus und Halicore bewohnen die Küsten von Afrika, Ostasien, Zentral- und Südamerika. Fossile Sirenen erscheinen zuerst im Mitteleocän, Eotherium, aus welchem sich die Manatiden und Halicoriden entwickelt haben. Die Gattungen Halitherium, Metaxytherium und Felsinotherium bilden eine genetische Reihe, welcher auch Halicore und Rhytina nahestehen.
A. Manatidae.
Prorastomus Owen. Gebiß vollständig. 3.1.4.3.3.1.4.3. J im Querschnitt rund, oberer C groß. Obere M mit zwei rechtwinklig zur Längsachse stehenden Querjochen. Eocän. Jamaica. P. sirenoides Owen.
Manatus Rondel. (Ribodon Ameghino.) J und C rudimentär. Oben und unten je 8-10 Backenzähne; die oberen dreiwurzelig mit zwei Querjochen und Basalband, die unteren schmäler, zweijochig, mit Talonid. Beim Embryo Anlagen von 3 J, 1 C. Lebend an der Ostküste von Amerika. Fossil im Pliocän von Süd-Carolina und Argentinien.
Manatherium Hartlaub mit Manatus verwandt. Oligocän Belgien.
B. Halicoridae.
Eotherium Owen. 3.1.4.3.3.1.4.3. Alle J ziemlich groß. Eocän. Mokattam-Schichten. Ägypten.
Eosiren Andrews. 3.1.4.3.3.1.4.3. J1 groß, J2 und J3 später verschwindend. Schnauze überhängend. Obereocän von Ägypten.
Protosiren Abel. (Fig. 737.) Obereocän Ägypten.
Halitherium Kaup. (Fig. 738 u. 739.) Zwischenkiefer nach abwärts gekrümmt mit je einem langen J. Scheitelbeine lang, schmal, Stirnbeine kurz. Nasenbeine kurz, schildförmig, hinter der großen Nasenöffnung gelegen. J mit Ausnahme des großen oberen J1 sowie C frühzeitig ausfallend. Backenzähne, 44 P 33 M, bunodont mit warzigen Querjochen. P klein, einspitzig und einwurzelig, bald ausfallend. Im Eocän des Vicentin H. veronense de Zigno, im Oligocän von Deutschland und Frankreich H. Schinzi Kaup, im Miocän H. Christoli Fitzinger.
Metaxytherium Christol, ähnlich Halitherium, M komplizierter und stärker reduziert. Miocän M. Cuvieri Christ., Krahuletzi Depéret. Pliocän M. Serresi Gervais.
Felsinotherium Capellini. 1.0.2.3.0.0.2.3. Statt der P mit peristirenden D, welche den bunodonten M ähnlich sind. Zwischenkiefer- und Unterkiefersymphyse plump, nach unten gebogen. Pliocän Italien. F. Forestii Cap.
Halianassa Meyer. 1 J 2 D 3 M Miocän. H. Studeri Mey.
Miosiren Dollo. 1 J 2 D 3 M. Rhytiodus Lartet 1 J 1 D 3 M. Prohalicore Flot. Miocän.
Halicore Illiger. 2-32-3 D 33 M. Obere J groß. P klein, einwurzelig, stiftförmig. Lebend. Afrika.
Rhytina Illiger. Ohne Backenzähne, dafür eine hornige Kauplatte in der Mundhöhle. Rh. Stelleri Cuv., ausgerottet am Ende des 18. Jahrhunderts.
Desmostylus Marsh. 1.0.2.?2.2.0.2. 2. Schädel schmal und niedrig, Schnauze gestreckt, nicht abwärts gebogen. J stoßzahnartig, mäßig lang, vorwärts gerichtet, P klein, zweiwurzelig, M groß, zweiwurzelig, aus zahlreichen, miteinander verwachsenen, in Reihen geordneten Zylindern bestehend. Marines Miocän von Japan und Kalifornien. Osborn hält dieses Tier für einen Proboscidier.
Zeitliche Verbreitung der Notoungulata und Subungulata.
Obereocän Oligocän Untermiocän Obermiocän Pliocän Pleistocän Gegenwart
Notoungulata.
Typotheria
Notopithecidae
Interatheriidae
Hegetotheriidae
Typotheriidae
Archaeopithecidae
Archaeohyracidae
Toxodontia
Notohippidae
Nesodontidae
Toxodontidae
Entelonychia
Notostylopidae
Isotemnidae
Leontiniidae
Homalodontotheriidae
Astrapotherioidea
Trigonostylopidae
Albertogaudryidae
Astrapotheriidae
Pyrotheria
Subungulata.
Embrithopoda
Arsinoitheriidae
Hyracoidea
Hyracidae
Saghatheriidae
Proboscidea
Moeritheriidae
Barytheriidae
Moeritheriidae
Elephantidae
Sirenia
10. Ordnung. Primates. Herrentiere.
Linné hat unter dem Namen Primates den Menschen, die Affen, Lemuren, Fledermäuse und Edentaten zusammengefaßt. Abgesehen von den beiden letzten, bilden diese Gruppen eine in anatomischer Hinsicht wohl umgrenzte Ordnung, deren älteste Glieder freilich auch viele Anklänge an Insektivoren oder an Creodontier aufweisen. Die Primaten wurden bisher meist eingeteilt in die drei Unterordnungen der Prosimiae, Simiae und Bimana. Die Unterscheidung der beiden letzteren Unterordnungen ist jedoch in der Natur nicht begründet. Es empfiehlt sich daher, die von Wortman vorgenommene Zweiteilung in die Lemuroidea und die Anthropoidea anzunehmen.
1. Unterordnung Lemuroidea. (Prosimiae, Halbaffen.)[171]
Plantigrade, meist fünfzehige, frugivore oder omnivore Klettertiere mit opponierbarer erster Zehe. Finger und Zehen entweder sämtlich mit Nägeln oder teilweise mit Krallen versehen. Gebiß mehr oder weniger vollständig. Obere M quadri- oder trituberkulär, untere quadri- oder quinquetuberkulär. P einfacher als M. Schnauze meist verlängert, Orbita in der Regel etwas seitlich gestellt, hinten knöchern umgrenzt, aber nicht immer durch eine Wand von den Temporalgruben getrennt. Lacrimale und Lacrimalgrube fast immer außerhalb der Augenhöhle gelegen. Gehirn schwach gefurcht. Kleinhirn nicht vom Großhirn bedeckt. Zitzen brust- oder bauchständig.
Die Halbaffen bewohnen gegenwärtig vorzugsweise Madagaskar, zum Teil auch Afrika und Südasien, früher lebten sie in Nordamerika und Mitteleuropa. Von den Anthropoidea unterscheiden sie sich durch das kleinere, wenig gefurchte Gehirn, durch das freie Kleinhirn, durch den unvollständigen hinteren Abschluß der Augenhöhle, durch das außerhalb der Augenhöhle gelegene Lacrimale, durch die manchmal bekrallten Zehen, durch die großen, stets opponierbaren Pollex und Hallux, durch behaartes Gesicht, zweihörnigen Uterus und zum Teil abdominale Zitzen. Die Placenta ist diffus und adeciduat.
Das Skelett der Halbaffen ist in vielfacher Hinsicht primitiver als das der Affen und erinnert an Insektivoren, Creodontia und Carnivoren. Die Hinterextremitäten sind manchmal stark verlängert, sogar Astragalus und Calcaneum. Der Humerus hat fast stets ein Entepicondylarforamen, das Femur einen dritten Trochanter. Im Carpus treten nie Verschmelzungen ein, dagegen ist oft noch ein freies Centrale vorhanden. Das Gebiß ist bald geschlossen, bald hat es ein Diastema. Auch Verlust oder Spezialisierung von J, C und P kann vorkommen. Die oberen M sind entweder trituberkulär oder quadrituberkulär. Ihr Protocon ist oft noch ⋁förmig und durch seine beiden divergierenden Schenkel mit den Außenhöckern verbunden. Der Hypocon bleibt immer kleiner als der Protocon, auch kann er ganz fehlen. Ein Basalband ist fast immer vorhanden und öfters als Innenwall entwickelt. Die älteren Formen besitzen meistens ein oder zwei Zwischenhöcker. Die unteren M bestehen aus einem zweihöckerigen Talonid und einem ursprünglich höheren, oft noch dreihöckerigen Trigonid, jedoch verschwindet nicht allzuselten der unpaare Vorderhöcker, Paraconid, auch bleibt er öfter nur am ersten Molar erhalten. Die in der Vierzahl vorhandenen Höcker stehen opponiert oder alternierend und sind dann meistens durch rechtwinklige oder schräge Joche verbunden. Die P sind stets einfacher als die M. Ihre Zahl beträgt ursprünglich vier, kann aber stark reduziert werden. Bei den lebenden Lemuren ist sie in der Regel drei, und der vorderste des Unterkiefers nimmt hier fast stets die Form eines C an, während der wirkliche C sich in einen dritten J verwandelt. Der erstere macht sich aber dadurch als P kenntlich, daß er hinter dem oberen C stehen bleibt. Bei den ältesten Formen sind alle J und C normal entwickelt und mehr oder weniger vertikal gestellt. Die J sind meißel- oder schaufelförmig und in der Zweizahl vorhanden.
Das Milchgebiß enthält individuell noch zuweilen einen dritten JD —, die C haben die Form eines echten Eckzahnes. Die Reduktion von J und P tritt auch schon bei manchen geologisch alten Gattungen auf. Bei den jüngeren Halbaffen werden die oberen J sehr klein, die unteren J und der untere C hingegen zu horizontal gestellten Pfriemen.
Cope nannte einen Teil der eocänen Formen Mesodonta, einen anderen Teil stellte er zu den Prosimiae, Filhol nannte alle europäischen Pachylemuridae. Wortman erkannte die Beziehungen eines Teils der nordamerikanischen Formen zu den echten Affen. Er wählte daher für sie die Bezeichnung Palaeopithecini. Schlosser stellte für die Formen mit normalem Gebiß die Familie der Pseudolemuridae auf. Diese letzteren umfassen jetzt nach der Ausscheidung der zu den Insektivoren gestellten Hyopsodontidae nur mehr die Adapidae. Die Mixodectini mit ihren spezialisierten und in der Zahl stark reduzierten J schließen sich zwar im Bau ihrer M enge an die Primaten an, allein für die Ermittlung der wirklichen systematischen Stellung der einzelnen, hierher gerechneten Gattungen bedarf es noch weiterer Untersuchungen. Ein Teil, wenn nicht alle, gehört sicher zu den Insektivoren, bei welchen sie hier ausgeführt wurden.
Die Prosimiae oder Lemuroidea gliedern sich freilich am naturgemäßesten in die drei Abteilungen der Pseudolemuroidini, der Palaeopithecini und der Neolemuroidini, allein es dürfte hier genügen, die erste Gruppe nur als Familie der Adapidae anzuführen, die zweite zerfällt in die Anaptomorphidae und die lebenden Tarsiidae und die dritte in die Familien der Lemuridae, Archaeolemuridae und Chiromyidae.
1. Familie. Adapidae.
2.1.4.3.2.1.4.3. Zahnreihe meist geschlossen. J oben und unten meißel- oder schaufelförmig, mehr oder weniger vertikal gestellt. C als echter Eckzahn entwickelt, stets größer als die J. P einfacher als M, jedoch P4 öfters beträchtlich kompliziert. Untere M aus vier oder noch fünf, meist alternierenden und unter einander verbundenen Höckern bestehend. M3 mit kräftigem Talonid. Obere M trituberkulär, mit kleinem Hypocon und mit ein oder zwei Zwischenhöckern. Außenhöcker mehr oder weniger konisch. Obere P und M allseitig von einem äußeren Basalband umgeben, untere in der Regel nur mit einem äußeren Basalband versehen. Schnauze und Unterkiefer ziemlich lang. Letztere öfters eine feste Symphyse bildend.
Fossil im Eocän von Nordamerika und Europa.
Der nur von Adapis und Pronycticebus bekannte Schädel hat ein niedriges, aber breites Cranium, das bei Adapis mit einem hohen Sagittalkamm versehen ist. Hinter den ziemlich großen, hauptsächlich nach vorwärts sehenden und hinten durch eine breite Knochenspange abgegrenzten Augenhöhlen schnürt sich der Schädel stark ein. Die Schnauze ist ziemlich lang und schmal. Das Lacrimale befindet sich innerhalb der Augenhöhle, das Tympanicum liegt als freier Ring innerhalb der vom Petrosum gebildeten großen Bulla wie bei den madagascarischen Lemuren. Der Carotidkanal ist sehr eng. Das Gehirn zeigt einen sehr primitiven Bau. Die Unterkiefer bilden bei den späteren Formen in der Regel eine feste Symphyse. Der Schädel hat im ganzen ziemlich große Ähnlichkeit mit dem der Lemuriden. Dagegen unterscheidet sich der vordere Teil des Gebisses durch die normale Ausbildung der J und C sehr wesentlich von dem der Lemuriden. Es gleicht hierin fast ganz dem der echten Affen. Von den P bleiben die drei vordersten sehr klein, und selbst P2 hat wohl immer nur eine Wurzel. Dagegen erreicht der obere P4 meistens den Trituberkulärtypus, und der untere P4 kann fast ganz M-ähnlich werden. Die oberen M lassen den Trituberkulärtypus noch deutlich erkennen, obwohl sie einen Hypocon besitzen. Von Zwischenhöckern sind meistens zwei, seltener nur einer vorhanden. Auch die vier- oder fünfhöckerigen unteren M haben keine besonders charakteristische Form; sie erinnern teils an solche von primitiven Huftieren, teils an solche von Lemuren, jedoch ist die hintere Hälfte selten niedriger als die vordere. Die bis jetzt bekannten Skelettknochen besitzen am meisten Ähnlichkeit mit jenen der Lemuren. Der Humerus hat eine lange Deltoidcrista und ein wohlentwickeltes Entepicondylarforamen. Das Olecranon der dünnen Ulna ist kurz, die proximale Fasette des schlanken Radius kreisrund. Die Länge des Femurs ist anscheinend ziemlich verschieden. Calcaneum und Astragalus sind echt primatenartig, ebenso die Metapodien und Zehenglieder.
Pelycodus Cope (Prototomus, Tomitherium Cope). (Fig. 740.) Obere M undeutlich dreieckig, mit zwei pyramidenförmigen Außenhöckern, einem kräftigen ⋁förmigen vorderen und einem kleineren hinteren Innenhöcker und zwei Zwischenhöckern. Außenwand ohne Mittelpfeiler, M3 reduziert. Untere M mit zwei Paar opponierten stumpfen Höckern und einem unpaaren Vorderhöcker, Paraconid. M3 mit großem Talonid, Vorderhälfte höher als Hinterhälfte. Unterkiefer niemals verwachsen. Astragalus mit fast flachem Tibialgelenk. Endphalangen krallenartig. Im Eocän von Wyoming. P. tutus, frugivorus Cope. Wasatchbed. P. nunienus Cope Wind Riverbed.
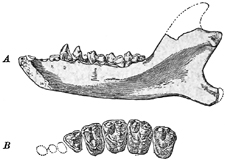
Fig. 740.
A Pelycodus frugivorus Cope. Untereocän. Wasatchbed. Unterkiefer von innen. Nat. Gr. B Notharctus sp. Obere Backenzähne. 2/1 nat. Gr. (nach Osborn.)
Cryptopithecus Schlosser. Unterkiefer ohne feste Symphyse. P4 kurz, aber M-artig. M mit zwei hohen Vorderhöckern und niedrigem dreihöckerigem Talonid. M3 kleiner als M2. Obereocän. Bohnerz von Frohnstetten. C. sideroolithicus Schlosser.
Pronycticebus Grandidier. Vermutlich der Schädel von Cryptopithecus. P1 und P2 sehr klein, P3 und P4 zweihöckerig. M dreihöckerig mit kleinem Innenhöcker, denen von Pelycodus sehr ähnlich. Eocän. Phosphorite von Quercy. P. Gaudryi Grandidier.
Notharctus Leidy (Tomitherium Cope, Thinolestes, Limnotherium, Telmatolestes Marsh, Hipposyus Leidy). J, C und P1 und P2 klein, durch kurze Lücken voneinander getrennt. P3 kräftig, mit Innenhöcker. P4 dreihöckerig, obere M vierseitig, außen mit Mittelpfeiler. Hypocon kräftig entwickelt. Untere P mit Ausnahme von P4 einfach aber dick und einwurzelig. Höcker der M schneidend entwickelt. Vorderhälfte kaum höher als Hinterhälfte. M3 mit großem Talonid. Unterkiefer mit fester Symphyse. Femur lang, ohne dritten Trochanter. Mitteleocän, Bridgerbed von Wyoming N. tenebrosus, formosus Leidy, rostratus Cope. Diese aus Pelycodus entstandene Gattung ist vielleicht der Stammvater von:
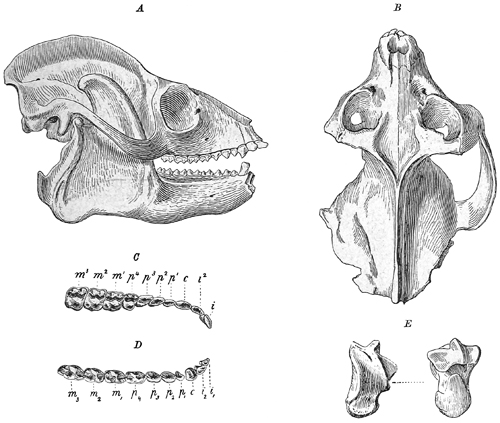
Fig. 741.
Adapis parisiensis Cuv. var. min. Phosphorite. Quercy. A Schädel mit Unterkiefer von der Seite, B von oben, C obere, D untere Zahnreihe. 2/3 nat. Gr. E Astragalus von vorne und hinten, nat. Gr.
Adapis Cuvier (Palaeolemur Filhol, Aphelotherium, Leptadapis Gervais). (Fig. 741.) Zahnreihe geschlossen, höchstens Lücke hinter C. Obere J schaufel-, untere meißelförmig, oberer C klein, unterer aufrecht, kräftig mit abgestutzter Spitze. P1-3 in beiden Kiefern einfach, obere mit innerem Basalband, P4 dreihöckerig. Obere M fast quadratisch, mit zwei pyramidenförmigen Außenhöckern, einem großen ⋁förmigen Protocon und schwachem Hypocon und vorne mit einem kleinen Zwischenhöcker. P4 und die unteren M mit zwei Paar alternierenden, komprimierten, jochartig verbundenen Höckern. Schädel hinter den Augenhöhlen stark eingeschnürt mit breitem niedrigen Cranium und hohem Scheitelkamm. Schnauze lang, Unterkiefer mit fester Symphyse und hohem aufsteigenden Ast. Femur mit drittem Trochanter, nicht viel länger als Humerus. Adapis ist wahrscheinlich der Ahne der ausgestorbenen Gattung Megaladapis, vielleicht auch der von Lemur. Im Obereocän. Gips von Montmartre, Phosphorite von Quercy. A. parisiensis Cuv. Phosphorite von Quercy und Mergel von St. Hippolyte de Caton (Gard). A. magnus Filh.
Caenopithecus Rütimeyer. Nur obere M bekannt, wahrscheinlich identisch mit Adapis. C. lemuroides Rütimeyer, im Bohnerz von Egerkingen.
2. Familie. Anaptomorphidae. Cope.
3-2.1.3-2.3.2-1.1.4-2.3. J und C normal, aber letztere klein. P in beiden Kiefern klein und einfach, untere kurz und dick, obere meist mit Innenhöckern. Obere M drei- oder vierhöckerig, meist mit Zwischenhöckern, untere M mit zwei Paar niedrigen, meist dicken und deutlich alternierenden Höckern. Unpaarer Vorderhöcker an den hinteren M häufig reduziert. Unterkiefer niedrig, ohne feste Symphyse. Schädel meist brachycephal. Lacrimale und Lacrimalgrube ganz oder größtenteils vor der weiten, hinten durch eine Knochenspange abgegrenzten Augenhöhle. Extremitäten zuweilen spezialisiert.
Wortman vereinigt die Anaptomorphiden mit den Tarsiiden in der Gruppe der Palaeopithecini, die er auch schon zu den echten Affen, den Anthropoidea stellt. Im Eocän von Europa und Nordamerika.
Anaptomorphus Cope (Microsyops Leidy). (Fig. 742.) Zahnformel 2?1. 3. 3.2.1.3-2.3. Obere J unbekannt, C klein, stiftförmig, durch eine Lücke von den kurzen, aber breiten, zweihöckerigen P getrennt. M trituberkulär, viel breiter als lang. Innenhöcker ⋁förmig. Untere P hoch mit innerem Basalband, untere M mit schmaler kurzer Trigonid- und breiterer Talonidhälfte, aus zwei Paar alternierender Höcker und einem undeutlichen Vorderhöcker, Paraconid, bestehend. Schädel kurz, mit geräumigem Cranium und weit abstehenden Jochbogen, Augenhöhlen hinten durch den Postorbitalfortsatz des Stirnbeins geschlossen. Im Eocän von Nordamerika. Wasatchbed. A. homunculus Cope. Bridgerbed A. aemulus Cope. Uintabed A. uintensis Osborn.
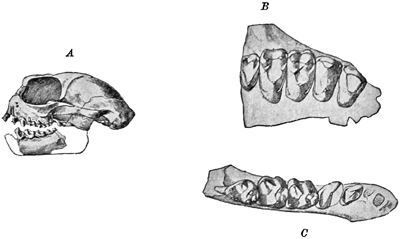
Fig. 742.
Anaptomorphus homunculus Cope. Untereocän. Wasatchbed. A Schädel, nat. Gr., B obere P3 bis M3, C Unterkiefer von oben, 3/1 nat. Gr. (nach Osborn.)
Anaptomorphus sowie die folgenden nordamerikanischen Gattungen sind wahrscheinlich der Ausgangspunkt aller Anthropoidea, zum mindesten aber die Ahnen der Simiiden.
Omomys Leidy (Palaeacodon, Hemiacodon, Euryacodon Marsh). Gebiß mit sehr breiten, ovalen, trituberkulären oberen M und mit unpaarem Vorderhöcker an den unteren M. Mitteleocän. Bridgerbed von Wyoming. O. Carteri Leidy.
Hemiacodon Marsh. Obere M viereckig, stark in die Breite gezogen, mit drei konischen Höckern und mit kräftigen Zwischenhöckern. Vorderhälfte der unteren M dreispitzig und bedeutend höher als die hintere. Bridger-Eocän. H. gracilis Marsh.
Washakius Leidy. Nur acht Zähne im Unterkiefer. Vorderhälfte der unteren M mit viertem Höcker. M3 mit vierhöckerigem Talonid. Nur ein J im Unterkiefer vorhanden. Obere M mit drei großen vierkantigen Höckern, mit zwei Zwischenhöckern und mit Hypocon. Mitteleocän. Bridgerbed W. insignis Leidy.
Trogolemur Matthew. Nur Unterkiefer bekannt. Drei einfache, dicke P. M fünfhöckerig. Kronen aller Zähne stark vorwärts geneigt. Eocän. Bridgerbasin. T. insignis Matthew.
Necrolemur Filhol (Fig. 743). (3)2.1. 3.3.1.1.(4)3.3. Zahnreihe geschlossen. Obere M vierhöckerig mit zwei pyramidenförmigen Außen-, zwei ⋁förmigen Innen- und zwei kleinen Zwischenhöckern. M3 reduziert. P4 in beiden Kiefern verdickt. Nur M1 mit wohlentwickeltem Paraconid. M3 mit starkem Talonid. Der vorderste untere P und ein oberer J gehen später verloren. Schädel niedrig, Cranium breit. Fibula mit dem unteren Drittel der schlanken Tibia verwachsen. Calcaneum und Astragalus gestreckt wie bei der lebenden Gattung Tarsius. Obereocän. Phosphorite von Quercy und Bohnerze von Mauremont. N. antiquus, Edwardsi Filhol, Zitteli Schlosser.
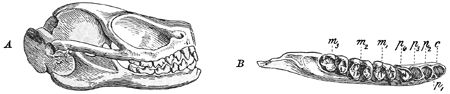
Fig. 743.
Necrolemur antiquus Filhol. Phosphorite. Quercy. A Schädel von der Seite, nat. Gr. (Nach Filhol.) B Unterkiefer von oben. 2/1 nat. Gr.
Microchoerus Wood. Nur Oberkiefer bekannt. Zähne ähnlich Necrolemur. Obereocän von Hordwell. England. M. erinaceus Woodw.
3. Familie. Tarsiidae.
2.1.3.3.1.1.3.3. J klein, C mäßig groß, untere P einfach, aber dick, obere P zweihöckerig. Untere M fünfhöckerig, obere M trituberkulär. Gesicht kurz, Cranium geräumig. Hinterextremität stark verlängert, namentlich Astragalus und Calcaneum.
Die ungemein primitive Form der P und M, welche mit jenen der Primaten aus dem Oligocän von Ägypten sehr große Ähnlichkeit haben, und die scheibenförmige deciduate Placenta, welche Tarsius mit den echten Affen gemein hat, machen es sehr wahrscheinlich, daß Tarsius auf die nämliche Urform zurückgeht wie die Anthropoidea. Anderseits steht er in der Zahl und Zusammensetzung der Zähne den nordamerikanischen Anaptomorphiden sehr nahe.
4. Familie. Lemuridae.[172]
2.1.3.3.2.1.3.3. Obere J klein, im Alter oft verschwindend, C dolchartig, P klein, nur P4 mit Innenhöcker. M dreihöckerig. Untere J und C stiftförmig, horizontal gestellt, vorderster unterer P in einen kleinen Eckzahn umgewandelt. Untere M aus alternierenden, durch Joche verbundenen Höckern bestehend. Extremitäten unspezialisiert. Femur nur wenig länger als der Humerus. Letzterer mit Entepicondylarforamen, ersteres mit drittem Trochanter versehen.
Alle lebenden und fossilen Gattungen sind auf Madagaskar beschränkt. Die letzteren finden sich in Torfmooren bei Ambolisatra, Antisirabé, Belo und in Höhlen bei Andrahomana und stammen aus der jüngsten Vergangenheit. Die größten haben die Dimensionen von Mensch.
Lemur Linné. Kleine Formen, lebend. L. insignis Grandidier fossil, ungefähr Paviangröße.
Megaladapis Major (Thaumastolemur Filhol, Peloriadapis Grandidier, Palaeolemur, Mesoadapis Lorenz v. Liburnau). 0.1.3.3.2.1.3.3. J kräftiger als bei Lemur, obere M gerundet dreieckig, untere M und Schädel Adapisähnlich. Unterkiefer mit fester Symphyse, Humerus ähnlich dem der Anthropoidea, aber mit Entepicondylarforamen. Femur von vorne nach hinten abgeplattet. M. madagascariensis Major, Edwardsi Grandidier. Wahrscheinlich die Nachkommen der europäischen Gattung Adapis.
Palaeopropithecus Grandidier 2.1.2.3.2.0.2.3. Schädel länger und niedriger und feste Symphyse, sonst wie bei der lebenden Gattung Propithecus, jedoch viel größer.
5. Familie. Archaeolemuridae. Grandidier.
2.1.3.3.2.0.3.3. Obere J und P kurz und dick. M in beiden Kiefern quadratisch, mit je zwei Paar opponierten Höckern. Cranium groß, ohne Sagittalkamm, Augen vorwärts gerichtet.
Schädel- und Backenzähne erinnern an Cercopitheciden, namentlich an Colobus.
Nur fossil in Höhlen und Torfmooren von Madagaskar.
Archaeolemur Filhol (Lophiolemur Filhol, Nesopithecus, Globilemur Forsyth Major, Protoindris Lorenz v. Liburnau). A. Majori Grandidier.
Bradylemur Grandidier. B. ingens Gr.
Hadropithecus Lorenz v. Liburnau. Höcker der P und M durch Joche verbunden. H. stenognathus L. v. Liburnau.
6. Familie. Chiromyidae.
Diese nur durch die auf Madagaskar lebende Gattung Chiromys vertretene Familie zeichnet sich durch kurzen, hochgewölbten Schädel, durch das stark reduzierte Gebiß mit 2.1.2.3.2.0.2.3. —, im Milchgebiß 2.1.3.2.1.3. —, die nagezahnähnlichen vorderen J und die stark verlängerten Finger aus.
Wortman stellt hierher einen Unterkiefer mit nur einem J und zwei winzigen Zähnchen sowie Humerus und Tibia aus dem Bridgerbed von Wyoming und begründet hierauf die Gattung Metachiromys. Osborn hält sie jedoch für einen Dasypus ähnlichen Edentaten. Die von Wortman hierher gerechneten Microsyopiden gehören eher zu den Insektivoren, jedoch sind genetische Beziehungen zu Chiromys nicht ganz ausgeschlossen.
2. Unterordnung. Anthropoidea. Mivart.[173]
Plantigrade, mit der ganzen Sohle oder dem äußeren Fußrand auftretende Land- oder Klettertiere, mit opponierbarem Daumen und meist auch opponierbarer großer Zehe. Sämtliche Endphalangen (außer bei den Hapaliden) abgeplattet und mit Nägeln bedeckt. Gebiß vollständig, mit nur zwei Paar Schneidezähnen. Öfters kurzes Diastema. Backenzähne bunodont, P in der Regel zweihöckerig, untere M vier- oder fünfhöckerig, obere M vier- oder dreihöckerig. Orbita nach vorne gerichtet, hinten durch eine knöcherne Scheidewand von den Schläfengruben getrennt. Foramen lacrimale innerhalb der Augenhöhlen gelegen. Gehirn groß, stark gefurcht. Zwei Zitzen an der Brust.
Die Affen bewohnen heutzutage vorwiegend die heißen Regionen von Afrika, Asien und Amerika, nur eine Art lebt bei Gibraltar. Die ersten fossilen Affen treten im Oligocän von Ägypten auf, im Mittelmiocän erscheinen sie auch in Europa und etwas später in Südamerika, im Pliocän auch in Asien. Aus dem Pleistocän kennt man einzelne Arten sowohl aus Europa als auch aus Nordafrika und Südasien. Auch Südamerika besitzt im Miocän und Pleistocän Vertreter der noch jetzt dort lebenden Formen.
Die niedrigsten und kleinsten Formen schließen sich noch etwas an gewisse Halbaffen an, die hochstehenden und größten werden in ihrem Körperbau ganz menschenähnlich.
Der Schädel hat ein sehr geräumiges Cranium. Die tiefgefurchten Hemisphären des Großhirns bedecken das Kleinhirn fast vollständig. Die großen rundlichen Augenhöhlen sind nach vorwärts gerichtet und hinten durch eine vom Jugale ausgehende knöcherne Scheidewand von der Schläfengrube getrennt. Lacrimale und Foramen lacrimale liegen innerhalb der Orbiten. Die nur selten etwas längeren Gesichtsknochen steigen steil nach hinten an. Die Nasenbeine sind kurz, die Nasenlöcher nach vorne gerichtet und seitlich und unten von den Zwischenkiefern begrenzt. Die Stirnbeine verschmelzen miteinander und die nur selten mit einem Scheitelkamm versehenen Scheitelbeine vereinigen sich in der Sagittalnaht. Auch die Orbitalcrista ist meistens nur schwach entwickelt. Der aufsteigende Ast der eine feste Symphyse bildenden Unterkiefer ist in der Regel hoch und breit. Das Kinn steigt senkrecht oder schräg nach vorne zu an. Das Gebiß weist nur oben vor, unten hinter dem, namentlich bei den Männchen, meist kräftigen konischen C eine kurze Lücke auf. Die beiden J sind oben und unten meißelförmig ausgebildet. Die P bestehen in beiden Kiefern aus einem spitzen Außenhöcker und in der Regel aus einem niedrigen Innenhöcker. Der erste untere P ist häufig in seiner Vorderpartie verstärkt, weil sie dem oberen Eckzahn als Antagonist dient. Die Zahl der P beträgt bei den neuweltlichen Affen und bei den Parapitheciden 33, bei den altweltlichen 22. Die oberen M besitzen bei den letzteren vier rechtwinklig oder schief gegenüberstehende, stumpfkonische oder kantige Höcker, von denen der zweite innere häufig schwächer ist als der vordere, bei den ersteren kann er auch vollständig fehlen. Die unteren M haben zwei opponierte oder alternierende Höckerpaare. In letzterem Falle und fast immer am M3 kommt ein weiterer Höcker am Hinterrand hinzu.
Die Zahl der Wirbel ist 7 Hals-, 11-14 Rücken-, 4-7 Lenden- und meist 5 Sacralwirbel. Die Zahl der Schwanzwirbel ist sehr verschieden. Die Form der einzelnen Wirbel gleicht im wesentlichen den menschlichen Wirbeln. Die Länge des Schwanzes und das Längenverhältnis von Vorder- und Hinterextremität variiert außerordentlich. Bei den lebenden Simiiden fehlt der Schwanz, und ihre Vorderextremität ist beträchtlich länger als die Hinterextremität. Der Humerus hat öfters ein Entepicondylarforamen. Radius und Ulna sind getrennt, kräftig und umeinander drehbar. Der mit dem Vorderarm artikulierende Hinterrand des breiten kurzen Carpus verläuft konvex. Die Carpalien bleiben sämtlich frei. Ein Centrale ist häufig vorhanden. Das Trapezium hat eine sattelförmige, nach außen und unten gerichtete Gelenkfläche für den opponierbaren Daumen, der übrigens zuweilen bloß aus einem kurzen Metacarpalstummel besteht. Die Phalangen sind auf der Rückenseite konvex, auf der Unterseite flach. Die letztere ist schmal abgeplattet und kaum gekrümmt. Dem schlanken Femur fehlt ein dritter Trochanter, Tibia und Fibula sind kräftig und nur oben und unten miteinander verbunden. Astragalus mit konvexer, nicht gefurchter Tibialfasette und einer seitlichen Artikulation für die Fibula. Calcaneum mit langem Tuber, unten gerade abgestutzt. Der kurze Hallux ist fast immer opponierbar, so daß der Hinterfuß als Hand funktionieren kann.
Die Anthropoidea gliedern sich in die Familien der Hapalidae, der Cebidae, der Cynopithecidae, der Simiidae und der Hominidae, denen jedoch eine weitere hinzuzufügen sein dürfte, die Parapithecidae. Die beiden ersteren Familien sind auf Amerika, die übrigen mit Ausnahme der Hominidae auf die Alte Welt beschränkt.
1. Familie. Hapalidae. Krallenaffen.
2.1.3.2.2.1.3.2. Die beiden oberen M trituberkulär, mit ⋁förmigem Innenhöcker. Obere P breit, mit spitzem Außen- und Innenhöcker. Untere M vierhöckerig, hinteres Höckerpaar niedriger als das vordere. C stark vorspringend. Schädel rundlich. Augenhöhle relativ klein. Alle Finger und Zehen mit Ausnahme des Hallux mit Krallen versehen. Schwanz länger als der übrige Körper.
Von den beiden im tropischen Südamerika lebenden Gattungen Hapale Illig. und Midas Geoffroy ist nur die erste durch eine in brasilianischen Knochenhöhlen vorkommende Art — Hapale penicillata Geoffroy — auch fossil vertreten.
2. Familie. Cebidae.
2.1.3.3.2.1.3.3. Obere und untere M vierhöckerig, P zweihöckerig. Alle Zehen mit Nägeln. Schwanz lang.
Lebend in Süd- und Zentralamerika, fossil im Pleistocän von Brasilien und im Tertiär von Patagonien.
Mycetes seniculus L., Callithrix personata Geoffr. und Cebus fatuellus L. auch fossil in brasilianischen Knochenhöhlen, daselbst auch der ausgestorbene Eriodes protopithecus Winge (Protopithecus brasiliensis Lund.)
Homunculus Ameghino (Ecphantodon Mercerat). C wenig vorragend und wie die einwurzeligen, kleinen P mit Basalband, das an der Innenseite mit kleinen Höckerchen versehen ist. M gerundet viereckig mit fünf schwachen, bogenförmig miteinander verbundenen Höckern. Vorderhälfte der M höher als die Hinterhälfte. Unterkiefer hoch, fast parallel gestellt, eine feste Symphyse bildend. Obermiocän von Santa Cruz. Patagonien. H. patagonicus Ameghino.
Anthropops und Eudiastatus Ameghino. Nur Unterkiefersymphyse bekannt. Pitheculus Ameghino nur Unterkieferfragment. Alle drei aus dem Obermiocän von Santa Cruz.
Clenialites und Pitheculites Ameghino aus den Colpodonschichten von Patagonien sind überhaupt keine Primaten.
3. Familie. Parapithecidae. Schlosser.
2.?.1.3.3.1.?.1.3.3. J klein, C (?) nur wenig größer als J und ebenfalls etwas vorwärts geneigt, P mit Ausnahme von P4 einfach, ohne Innenhöcker. M aus je zwei Paar dicken Höckern und einem kleinen Hinterhöcker bestehend. Vordere Hälfte der M etwas höher als die hintere. Höcker an M1 und M3 alternierend, an M2 opponiert. Unterkiefer niedrig, stark divergierend, mit schräg ansteigendem hinteren Ast, ohne feste Symphyse.
Zahnzahl, Form der Zähne und Beschaffenheit der Kiefer und Körpergröße vermitteln vollständig den Übergang von den Anaptomorphiden und Tarsiiden zu den Simiiden, namentlich zu Pliopithecus. Zweifelhaft ist dagegen die Verwandtschaft mit den Cynopitheciden. Direkte Vorläufer der Cebiden können die Parapitheciden nicht sein wegen der Einzahl der unteren J.
Parapithecus Schlosser. (Fig. 744.) Oligocän des Fayum Ägypten P. Fraasi.
Moeripithecus Schlosser. Nur Unterkieferfragment bekannt. Ebenda M. Markgrafi Schl.
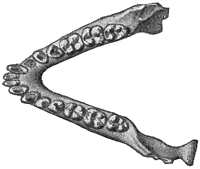
Fig. 744.
Parapithecus Fraasi Schlosser. Oligocän. Fayum. Ägypten. Unterkiefer nat. Gr.
4. Familie. Cynopithecidae. Hundsaffen.
2.1.2.3.2.1.2.3. M oben und unten vierhöckerig, Höcker paarig opponiert. Außenhöcker von den Innenhöckern bald durch eine Längsfurche getrennt, bald durch Querjoche verbunden. M3 mit drittem Lobus. P2 zweihöckerig, unterer P3 vergrößert. Schnauze vorspringend, häufig verlängert. Extremitäten plantigrad. Arme und Beine fast gleich lang. Schwanz meist lang.
Die lebenden Cynopitheciden zerfallen in die altweltlichen Paviane, Makak, Meerkatzen, Stummel- und Schlankaffen. Sie gehen fast immer auf allen Vieren, treten mit der ganzen Sohle auf und haben meist einen langen Schwanz, sowie Backentaschen und Gesäßschwielen. Die in Europa, Asien und Afrika fossil vorkommenden Formen schließen sich ziemlich enge an lebende Gattungen an.
Oreopithecus Gervais. Eckzähne oben und unten schwach. Obere M gleich groß, mit zwei Paar opponierten, durch eine mediane Längsfurche getrennten, konischen Höckern und starkem Basalband. Die oberen P mit hoher Außen- und kräftiger Innenspitze. Untere M schmäler als die oberen mit zwei Höckerpaaren und unpaarem Hinterhöcker, der an M3 sehr groß ist. Unterpliocän. Monte Bamboli, Toscana. O. Bambolii Gerv.
Cynocephalus Lacépède. Pavian. Lebend in Afrika und Arabien. Fossil in den Siwalikschichten von Ostindien C. (Semnopithecus) subhimalayanus Mey. sp. C. Falconeri Lyd. und in pleistocänen Knochenhöhlen von Madras.
Semnopithecus Cuv. Lebend in Südostasien. Fossil im Pliocän von Montpellier und von Casino in Toskana S. monspessulanus Gerv., in den Siwalikschichten von Indien S. palaeindicus Lyd., im Pleistocän von Madras S. entellus Düf.
Mesopithecus Wagner. Schädel und Gebiß wie bei Semnopithecus, Skelett plumper, Macacus ähnlicher. C beim Männchen viel stärker als beim Weibchen. Schwanz lang. M. Pentelici Wagner aus dem Unterpliocän von Pikermi bei Athen, Baltavar (Ungarn) und Maragha (Persien) ist der häufigste und am vollständigsten bekannte fossile Affe.
Dolichopithecus Depéret. Ähnlich Semnopithecus, jedoch Schnauze länger und Extremitäten kürzer und plumper. Im Pliocän von Perpignan D. ruscinensis Dep.
Zeitliche und räumliche Verbreitung der Primaten.
Afrika Europa Asien Nordamerika Südamerika
Jetztzeit Schimpanse Gorilla Cynopithecidae Lemuridae Chiromyidae Galaginae Macacus Simia Hylobates Cynopithecidae Lorisinae Tarsiidae ? Cebidae Hapalidae
Pleistocän Macacus Cynocephalus Megaladapis Lemur Palaeopropithecus Archaeolemur Bradylemur Hadropithecus Macacus Pithecanthropus Semnopithecus Cynocephalus Cebus Mycetes Eriodes Callithrix Hapale
Pliocän Anthropodus Dryopithecus Dolichopithecus Macacus Semnopithecus Mesopithecus Oreopithecus Palaeopithecus Macacus Semnopithecus Cynocephalus
Miocän ? Dryopithecus Pliopithecus Homunculus Anthropops? Eudiastatus? Pitheculus?
Oligocän Propliopithecus Parapithecus Moeripithecus
Eocän Adapis Caenopithecus Cryptopithecus Pronycticebus Necrolemur Microchoerus Notharctus Pelycodus Anaptomorphus Omomys Washakius Trogolemur
Macacus Lacépéde (Inuus Geoffroy, Aulaxinuus Cocchi). Obere M niedrig, vierseitig mit zwei Paar konischen oder kantigen, bald durch eine Längsfurche getrennten, bald durch Joche verbundenen Höckern. P mit Außen- und Innenhöcker. Untere M wie die oberen, nur schmäler. C beim Männchen sehr kräftig. M. (Inuus) ecaudatus Geoffr. ist der einzige in Europa (Gibraltar) lebende Affe. Die übrigen Arten sind weit verbreitet im südlichen und östlichen Asien und bewohnen zum Teil Gebirge — Tibet, Himalaya, Japan. — Im Pliocän von Montpellier M. priscus Gerv., im Pliocän des Val d' Arno M. (Aulaxinuus) florentinus Cocchi. In den Siwalikschichten von Ostindien M. sivalensis Lyd. und im Pleistocän von Java, M. (Inuus) nemestrinus var. saradana Deninger. Aber auch im europäischen Pleistocän haben sich Überreste von Macacus gefunden. Im Heppenloch bei Kirchheim in Württemberg M. (Inuus) suevicus Hedinger, in einer Höhle bei Montsaunès (Haute Garonne) fand Harlé einen Unterkiefer zusammen mit Resten von Hyaena striata — M. tolosanus Harlé, und kürzlich fand Forsyth Major zahlreiche Kiefer bei Cap Faro auf Sardinien. Aus dem Pleistocän von Algerien stammt Macacus trarensis Pomel.
5. Familie. Simiidae. Menschenaffen.
2.1.2.3.2.1.2.3. Obere und untere M vierhöckerig, Innen- und Außenhöcker miteinander alternierend. An den unteren M in der Regel ein dritter Außenhöcker oder ein Höcker am Hinterrand vorhanden. An den oberen M Außenhöcker mit dem ersten Innenhöcker mehr oder weniger innig verbunden, zweiter Innenhöcker kleiner als der erste. P kürzer als lang, zweihöckerig. Schädel mit Sagittal- und Supratemporalkamm oder mit Supratemporalwülsten. Vordere Extremität länger als die hintere. Gang meist aufrecht. Ohne Schwanz und ohne Gesäßschwielen (abgesehen von Hylobates).
Die Simiiden stehen dem Menschen im Skelettbau und in der Beschaffenheit des Gehirns am nächsten. Auch besitzen sie die Fähigkeit aufrecht zu gehen, wobei sie freilich nicht mit der Sohle, sondern mit dem äußeren Rand des Fußes auftreten. Auch das Gebiß nähert sich dem des Menschen, es unterscheidet sich hauptsächlich durch die etwas größere Länge der M und die stärkere Entwicklung der Eckzähne, die mit der Ausbildung eines Scheitel- und Hinterhauptkammes oder doch von Schläfenwülsten verbunden ist.
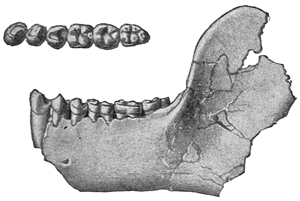
Fig. 745.
Propliopithecus Haeckeli Schlosser. Oligocän. Fayum. Ägypten. Unterkiefer und untere C bis M3 von oben, nat. Gr.
Fig. 746.
Pliopithecus antiquus Gervais. Obermiocän. Göriach in Steiermark. Oberkiefer, nat. Gr.
Propliopithecus Schlosser. (Fig. 745). J und C klein und aufrecht, P einfach, nur der hintere mit Innenhöcker, M niedrig mit kleinem Höcker am Hinterrand. Unterkiefer hoch, parallel gestellt, mit hohem, breitem aufsteigenden Ast. Sicher der Ahne der folgenden Gattung und wohl auch aller Simiiden und Hominiden. Oligocän des Fayum, Ägypten. P. Fraasi Schl.
Pliopithecus Gervais (Protopithecus Lartet) (Fig. 746). J schmal, ziemlich lang, C individuell sehr kräftig. Vorderer unterer P einspitzig, untere M mit zwei Paar stumpfen Höckern und einem unpaaren Hinterhöcker. Obere und untere M, abgesehen von dem starken Basalband, denen von Hylobates sehr ähnlich. Im Miocän von Sansan (Gers.), La Grive S. Alban (Isère), des Orléanais und von Oppeln in Schlesien, ferner im bayrisch-schwäbischen Dinotheriumsand, und in den Braunkohlen von Elgg (Schweiz) und Göriach (Steiermark). P. antiquus (P. platyodon Biederm.) Blainv. sp. Größe wie vom lebenden Gibbon, jedoch Unterkiefer viel höher.
Palaeopithecus Lydekker. Nur Oberkiefer bekannt. P relativ klein und breit. M vierhöckerig, glatt, menschenähnlich. Schimpansengröße. Pliocän der Siwalik von Jobi im Pundschab. P. sivalensis Lyd.
Dryopithecus Lartet (Paedopithex Pohlig, Pliohylobates Dubois) Unterkieferäste hoch, fast noch parallel gestellt, mit schwachen, vorwärts geneigten J, starkem C, großem einspitzigen P3 und langem zweihöckerigem, mit Talon versehenen P4. An Stelle des fünften Höckers des M1 und M2, an M3 ein Doppelhöcker. Obere M mit zwei großen Außen- und zwei ungleichen Innenhöckern, von denen der vordere, größere, mit beiden Außenhöckern verbunden ist. Schmelz aller M stark gerunzelt. Humerus — von St. Gaudens — schlank, viel kürzer als das gerade, dünne Femur — von Eppelsheim. Dryopithecus hatte die Dimensionen des Schimpanse und ist auch wohl dessen Stammvater sowie von Orang Utang und Gorilla. Im Miocän von St. Gaudens (Haute Garonne) D. Fontani Lartet, im Unterpliocän von Eppelsheim und in Bohnerzen von Schwaben D. rhenanus Pohlig sp.
Dryopithecus Darwini und Gryphopithecus Suessi Abel, aus dem Miocän von Neudorf im Wiener Becken sind durchaus problematisch.
Anthropodus Schlosser. Nur unterer M3 bekannt, viel länger als breit, mit vier niedrigen Höckern und großem Talonid. Runzelung mäßig. Unterpliocän, Bohnerz von Salmendingen. A. Brancoi Schl. Verwandtschaft mit Pithecanthropus und Homo nicht ausgeschlossen.
6. Familie. Hominidae.
Aufrechter Gang. Hand mit opponierbarem Daumen. Füße plantigrad, große Zehe nicht opponierbar. 2.1.2.3.2.1.2.3. in geschlossener Reihe, halbkreisförmig angeordnet. C schwach, nicht höher als die J. Schädel ohne Scheitelkamm und ohne Schläfenwülste. Augenhöhle hinten durch eine Wand abgeschlossen. Gehirn groß mit zahlreichen Windungen.
Pithecanthropus Dubois. Schädeldach schmal, wenig gewölbt, mit postorbitaler Einschnürung. Ohne Sagittalcrista und ohne Schläfenwülste, M3 stark reduziert, ohne deutliche Höcker mit vielen Runzeln. Femur lang, schlank, für aufrechten Gang geeignet. Unterpleistocän von Trinil in Java. P. erectus Dubois.[174]
Man kennt zwar nur das Schädeldach, einen Zahn und das Femur von Pithecanthropus, allein gerade diese Stücke sind am geeignetsten, uns ein Bild von seiner Organisation zu geben. Weil der Schädel trotz seiner Größe weder Scheitelkamm noch Schläfenwülste besitzt, so kann es nicht dem geringsten Zweifel unterliegen, daß die Eckzähne nicht größer gewesen sein können als die J. Auch kann der untere P3 nicht spezialisiert gewesen sein wie bei den eigentlichen Menschen-Affen. Es kann sich daher nur um einen Vertreter der Hominiden handeln. Auch die Form des M3 kann höchstens beim Menschen, aber niemals bei einem Menschen-Affen vorkommen, und selbst das Femur läßt sich nur dem menschlichen an die Seite stellen. Während manche Anthropologen in Pithecanthropus einen riesigen Hylobates erblicken wollten, betonen Turner, Topinard, Manouvrier und andere die große Ähnlichkeit mit dem Menschen. Auch Schwalbe findet im Schädelbau weitgehende Unterschiede gegenüber dem der Menschen-Affen. Es ist überhaupt ziemlich wahrscheinlich, daß wir es nur mit einer alten Spezies des Genus Homo zu tun haben.
Homo L.[175] Der Mensch wurde schon von Linné zu den Primaten gestellt, denen er sich in körperlicher Hinsicht auch aufs engste anschließt. Die rundliche gewölbte Form der sehr geräumigen Schädelkapsel, das Überwiegen des Gehirnschädels über das Gesicht und die fehlende Sagittalcrista unterscheiden zwar den Kopf des Menschen von dem aller Simiiden, dafür stehen aber manche Cebiden in dieser Hinsicht sehr nahe. Auch das Gehirn unterscheidet sich nur in der relativen Größe von dem der Affen. Es hat sonst den nämlichen Bauplan. Die frühzeitige Verschmelzung der Zwischenkiefer mit dem Oberkiefer sowie das Fehlen von Zahnlücken sind unerhebliche Merkmale. Das steil abfallende orthognathe Gesicht, die damit in Zusammenhang stehende, fast vertikale Unterkiefersymphyse mit dem etwas vorspringenden Kinn, die Hufeisenform der Unterkiefer und der hierdurch geschaffene breite Raum für die Zunge unterscheiden den Menschen von den Simiiden, allein die ältesten bekannten Menschenschädel zeigen bereits einen gewissen Grad von Prognathismus, das Kinn ist wenig oder gar nicht entwickelt, die Wölbung und Kapazität des Schädels wird geringer, die Supraorbitalwülste werden größer, so daß sich die Unterschiede gegenüber den Affen immer mehr verwischen. Das Gebiß stimmt in Zahl und Form der Zähne mit dem der Simiiden überein, jedoch sind die C schwächer und schließen dicht an ihre Nachbarn an, und die Höcker der Molaren sind stumpfer und breiter als bei den Affen. Obere und untere Molaren bestehen aus je vier Höckern, zu welchen jedoch im Unterkiefer in der Regel noch ein fünfter kommt, wie bei den Simiiden, während im Oberkiefer der kleine zweite Innenhöcker verschwinden kann. Bei den Negritos und den Negern erscheint zuweilen wie beim Orang Utang ein vierter Molar, während bei den zivilisierten Rassen der letzte Molar (Weisheitszahn) nicht selten ausbleibt.
Der aufrechte Gang des Menschen wird bedingt durch die doppelte S-förmige Krümmung der Wirbelsäule, die beträchtliche Länge und Muskulatur der Beine und die Breite der Schulter. Dagegen ist die relative Kürze der Arme viel eher ein primitives Merkmal als eine Folge des aufrechten Ganges. Die menschliche Hand übertrifft an Beweglichkeit, namentlich des Daumens, bei weitem die der Affen. Die Fußsohle liegt horizontal, Metatarsus und Tarsus bilden ein Gewölbe und die große Zehe dient nicht mehr als Greiforgan, sondern nur als Stütze des Körpers.
Unsere Kenntnis des prähistorischen Menschen hat in den letzten Dezennien ungeheure Fortschritte gemacht. Aus fast ganz Europa und den benachbarten Teilen von Asien sowie aus Nordafrika sind erstaunliche Mengen von Erzeugnissen menschlicher Kultur aus der Eisen- und Bronze- und aus der jüngeren Steinzeit zum Vorschein gekommen, nicht minder auch Überreste der Tiere, welche der Mensch gezüchtet oder gejagt hatte, und selbst zahlreiche mehr oder weniger vollständige menschliche Skelette hat die Forschung zutage gefördert. Für den Paläontologen bieten jedoch diese Funde kein weiteres Interesse, denn die Zeit, zu welcher diese Menschen lebten, war hinsichtlich des Klimas, der Pflanzen- und Tierwelt und der geologischen Verhältnisse von der Gegenwart nicht mehr verschieden. Diese Menschenreste und die damalige Kultur fallen daher ganz in das Gebiet der Anthropologie und Archäologie. Uns interessieren nur jene Überreste des Menschen und seiner Kultur, welche noch dem eigentlichen Pleistocän angehören, also den Perioden der mehrmaligen Vergletscherungen, der Zwischeneiszeiten und der unmittelbar auf die letzte Vergletscherung folgenden Postglazialzeit. Der damalige „paläolithische“ Mensch besaß noch keine Haustiere, er kannte noch keinen Feldbau, die Kunst der Töpferei und die Bearbeitung von Metallen war ihm noch gänzlich fremd, ja selbst die Anfertigung von polierten, den „neolithischen“, Steingeräten hatte er noch nicht erlernt, er war vielmehr darauf beschränkt, durch Schlag, Absprengen und Nacharbeiten der Ränder seine Steinwerkzeuge zweckdienlich zu gestalten. Die Form dieser Steinwerkzeuge und die Art ihrer Herstellung bietet nun ein Mittel für die Bestimmung der Zeit, in welcher der Mensch sich ihrer bediente. Man benennt diese verschiedenen Perioden nach den Fundorten, die zuerst die charakteristischsten Objekte geliefert haben und unterscheidet so von den jüngsten bis zu den ältesten Magdalénien, Solutréen, Aurignacien, Moustérien, Acheuléen und Chelléen (Fig. 747).
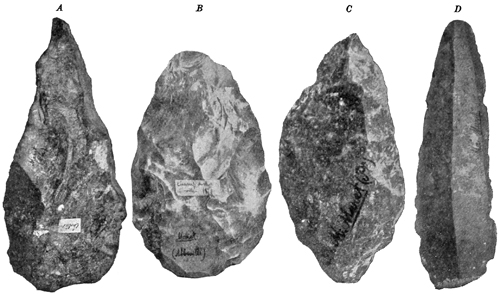
Fig. 747.
Paläolithische Steinwerkzeuge. A Chelléen, 1/3 nat. Gr. B Acheuléen, 2/3 nat. Gr. C Moustérien, nat. Gr. D Magdalénien, nat. Gr.
Im letzten Abschnitt des »Paläolithicums«, dem Magdalénien, hatte der Mensch zwar nur kleine Feuersteingeräte, die Mehrzahl seiner Waffen und Gebrauchsgegenstände verfertigte er aus Knochen und Geweihen von Renntier, aber er versah sie nicht selten mit Ornamenten, die zum Teil zwar nur in Linien bestehen, zum Teil aber auch Tiere, namentlich Ren, Pferd (Fig. 748) und Mammut, in durchaus künstlerischer Ausführung darstellen. Selbst die Wände vieler von ihm bewohnter Höhlen in Südfrankreich und Spanien hat er mit farbigen Abbildungen solcher Tiere geschmückt (Fig. 749), unter welchen besonders Bison sehr häufig vertreten ist.[176] Auch der Vorgänger dieses Menschen der »Renntierzeit«, der Mensch des Solutréen, war bereits ein Künstler, jedoch hinterließ er keine Gravierungen auf Knochen, oder Stein, oder farbige Bilder, sondern Schnitzereien in Stein, Knochen und Elfenbein, welche vorwiegend menschliche Figuren darstellen. Man kennt solche aus Frankreich, Mähren und Niederösterreich. Die auch in Ungarn und Süddeutschland gefundenen, lorbeerblattähnlichen Steingeräte des Solutréen bilden einen schroffen Gegensatz zu den roh bearbeiteten Kratzern und Schabern des Moustérien, zu welchen jedoch die Steinwerkzeuge des Aurignacien den Übergang vermitteln. Das in ganz Mitteleuropa verbreitete und in Frankreich besonders häufige Moustérien fällt wahrscheinlich teils in die letzte Eiszeit, teils in die ihr vorhergehende zweite — die kalte — Phase des letzten Interglazials. Diese Industrie ist vergesellschaftet mit Rhinoceros tichorhinus und Elephas primigenius in Krapina jedoch mit Rhinoceros Mercki, in Taubach auch mit Elephas antiquus. Freilich kommen in Taubach keine ganz typischen Moustérien-Werkzeuge vor, dagegen kann in Krapina über die Gleichzeitigkeit der zahlreichen Reste des Menschen und des Rhinoceros Mercki mit typischem Moustérien kein Zweifel bestehen. Wo jedoch sonst diese beiden, ein warmes Klima anzeigenden Säugetierarten zusammen mit Steinwerkzeugen vorkommen, sind es immer solche des Chelléen, charakterisiert durch die großen Faustkeile, deren Ränder nicht sorgfältig nachretuschiert wurden. Zwischen Chelléen und Moustérien vermitteln die Steinwerkzeuge des Acheuléen zeitlich und auch in ihrer Bearbeitung den Übergang. Das Klima hat sich während des Acheuléen verschlechtert.
Fig. 748.
„Kommandostab“ aus Renntiergeweih mit Gravierung. Magdalénien.
Fig. 749.
Bild eines Mammut aus der Höhle von Combarelles.
Mit dem Chelléen enden die sicher vom Menschen hergestellten Steinwerkzeuge. Man kennt zwar aus noch älterem Pleistocän und sogar aus dem Tertiär bis in das Oligocän die sog. Eolithe, deren Schlagspuren und Absplisse dem Menschen oder doch seinem Vorgänger zugeschrieben werden. Auch sollen sie ihre Form nicht einer wirklichen Bearbeitung, sondern nur der Benutzung von seiten des Menschen verdanken. Allein solche Eolithe können auch auf rein natürlichem Wege entstehen, bei dem Transport von Feuersteinen in wirbelndem Wasser und in Brandungswellen und sind daher kein Beweis für die einstige Anwesenheit des Menschen. Vor allem spricht gegen die Deutung der Eolithe als Gebrauchsgegenstand des Menschen der Umstand, daß sie bereits im Oligocän den nämlichen Charakter haben wie im Pleistocän, also keinerlei Fortschritt zeigen. Es müßte daher der Mensch schon im Oligocän fertig entwickelt gewesen sein und somit auch schon seine jetzige Körpergröße erreicht haben, eine Annahme, welche mit unseren Erfahrungen über die Entwicklung der Säugetierstämme gänzlich unvereinbar ist.
Entsprechend den zahlreichen Funden von Geräten des paläolithischen Menschen hat auch die Zahl seiner körperlichen Reliquien in der letzten Zeit einen so gewaltigen Zuwachs erfahren, daß wir jetzt nur mehr jene Reste zu berücksichtigen haben, deren geologisches Alter vollkommen sicher gestellt ist. Die jüngsten paläolithischen Menschenreste sind jene aus dem Magdalénien. Sie gehören der Cro-Magnon-Rasse an, welche sich im Schädel- und Kieferbau schon enge an die lebenden Europäer anschließt. Skelette der Cro-Magnon-Rasse kennt man aus mehreren Höhlen in der Dordogne, aus einer Höhle bei Roussillon und aus einer Höhle bei Mentone. Außerdem werden zu dieser Rasse gestellt die Schädel von Brünn, von Brüx, von Podblaba, von Egisheim im Elsaß, von Engis in Belgien und von Tillbury und Galley Hill in England, jedoch sollen einige von ihnen, namentlich der von Tillbury, schon den Übergang zu der Neandertalrasse, dem Homo primigenius bilden, welche für das Moustérien charakteristisch ist. Diese Rasse zeichnet sich durch geringere Schädelkapazität, durch die geringe Wölbung der Stirn, durch die schwache Aufrichtung der Hinterhauptsfläche, durch die vorspringenden Supraorbitalwülste und durch das Fehlen eines vorspringenden Kinnes aus, welche Merkmale Klaatsch auch bei den lebenden Australiern beobachtet hat. Man sollte daher konsequenterweise auch für diesen lebenden Typus eine besondere Spezies errichten. Außer Schädeln kannte man bisher auch schon Extremitätenknochen vom Neandertal im Rheinland und von Spy in Belgien. Sie unterscheiden sich durch ihre Plumpheit und Krümmung, durch die gleichmäßigere Rundung des Diaphysenquerschnittes, durch die Rückwärtsverlängerung der Femurcondyli und durch ihre Platyknemie von den Schenkelknochen des lebenden Menschen. Erst vor kurzem wurden Skelette dieser Menschenrasse auch bei Le Moustier in der Dordogne und bei La Chapelle aux Saints (Corrèze) gefunden, dagegen scheint der Schädel des neuentdeckten Skeletts von Montferrand de Périgord in der Dordogne dem von Galley Hill ähnlicher zu sein. Die Grimaldi-Grotte bei Mentone enthielt Skelette, welche nach Verneau negroide Merkmale zur Schau tragen, nämlich stark vorstehende Kiefer und Backenknochen und flache Nase. Sie waren vergesellschaftet mit Resten von Rhinoceros Mercki, Hippopotamus und Elephas antiquus und mit Steinwerkzeugen des Moustériens. Auch in Krapina in Kroatien fanden sich zahlreiche Menschenreste zusammen mit Rhinoceros Mercki und mit Industrie des Moustériens. Schwalbe stellt auch den Menschen von Krapina zu seinem Homo primigenius, er unterscheidet sich aber von dem echten Neandertalmenschen durch die starke Runzelung des Schmelzes und den auffallend hohen Wurzelhals seiner Backenzähne. Aus der Zeit des Acheuléen und Chelléen sind bis jetzt keine menschlichen Reste gefunden worden, abgesehen etwa von den erwähnten Skeletten von Mentone, welche wenigstens Boule in die Zeit des Chelléen zu versetzen geneigt ist. Um so größeres Interesse verdient daher der in Mauer bei Heidelberg gefundene Unterkiefer des Homo heidelbergensis, denn er stammt aus den ältesten bekannten außeralpinen Pleistocänschichten. Schon seine Begleitfauna, welche zum Teil aus Arten der pliocänen Val d'Arno-Fauna besteht, würde die Aufstellung einer besonderen Spezies vollständig rechtfertigen. Der Unterkiefer gleicht vollkommen dem der Anthropomorphen, die Zähne sind jedoch echte Menschenzähne. Durch die Reduktion seines letzten Molaren schließt sich Homo heidelbergensis enge an Pithecanthropus an. Ein genetischer Zusammenhang zwischen diesem und der Gattung Homo ist überaus wahrscheinlich, zum mindesten gehen beide auf eine gemeinsame Stammform zurück.
In Nordamerika fehlt es zwar keineswegs an Überresten des prähistorischen Menschen, allein ihr geologisches Alter ist nur in den seltensten Fällen näher zu ermitteln und dürfte höchstens bei einigen wenigen Funden in die letzte Interglazialzeit fallen, wie etwa bei dem Menschen von Lansing in Kansas. Somatische Unterschiede gegenüber dem jetzigen Menschen scheinen nicht zu bestehen. Die ältesten Steinwerkzeuge sollen nach Wilson dem Chelléentypus angehören. Sie stammen von der atlantischen Küste, von Ohio und vom Mississippi. Den Calaveras-Schädel hält Wilson für echt fossil, Sinclair hingegen ist der Ansicht, daß er erst später in die dortigen goldführenden Sande gekommen sein dürfte. Menschenknochen in Gesellschaft von ausgestorbenen Tieren wurden an verschiedenen Orten gefunden, bei Trenton zusammen mit Mammut, Mastodon und Ovibos, bei Natchez am Mississippi zusammen mit Mylodon, Megalonyx und Mastodon. Auch Steinwerkzeuge hat man im Missouri neben einem Mastodon-Skelett und in Kansas neben Bisonresten beobachtet. Dagegen sind alle Menschenreste, welche in Höhlen zusammen mit ausgestorbenen Tieren gesammelt wurden, anscheinend jünger als diese Tiere.
Mindestens ebenso gering wie das Alter des prähistorischen Menschen in Nordamerika ist auch das der menschlichen Überreste aus Südamerika. Der scheinbar älteste, von hier bekannte menschliche Knochen ist ein Atlas aus den unteren Pampasschichten von Monte Hermoso. Aus den mittleren stammt der Schädel von Baradero in Argentinien. Der oberen Pampasformation gehören die Menschenknochen von Carcarañá, Frias und Saladero, von Fontezuelas, vom Ufer des Samborombón, von Arrecifes, Chocoré und von La Tigra an. In Knochenhöhlen Brasiliens hatte schon Lund Menschenschädel zusammen mit Überresten von lebenden und ausgestorbenen Säugetieren gefunden, aber weder diese, noch auch die vorher erwähnten, von Lehmann-Nitsche genau studierten Menschenreste aus Argentinien zeigen Unterschiede gegenüber den jetzigen südamerikanischen Indianern. Die Gleichzeitigkeit von Mensch und ausgestorbenen Säugetieren, z. B. Riesenedentaten, scheint in Südamerika noch in die jüngste Vergangenheit zu fallen, wie die Funde in der Höhle von Ultima Esperanza in Patagonien beweisen, wo ein Mylodon-ähnliches Tier anscheinend sogar in Gefangenschaft gehalten wurde, von welchem hier auch noch Fellstücke und Kotballen erhalten geblieben sind.
Was den paläolithischen Menschen Afrikas betrifft, so scheint seine Existenz in Ägypten, vielleicht auch in Algerien ziemlich sicher gestellt zu sein, obschon über körperliche Überreste bisher nichts berichtet wurde und seine Anwesenheit bloß durch bearbeitete Feuersteine bewiesen ist. Im Kapland wurden vor kurzem Menschenreste in Zinkminen gefunden, deren Alter indessen kaum sehr weit zurückdatieren dürfte, denn die mit ihnen aufgesammelten Säugetierknochen gehören noch lebenden Arten an.
Asien wird voraussichtlich noch manche interessante Funde der paläolithischen Menschen liefern. Bis jetzt kennt man freilich erst aus Höhlen in Syrien Stationen des jungpaläolithischen Menschen, dagegen hat man auf Java in den Kendengschichten, welche bei Trinil auch die Reste des Pithecanthropus enthielten, einen Menschenzahn gefunden, welchem unzweifelhaft ein altpleistocänes Alter zukommt. In Birma wollte man auf Grund von wirklich geschlagenen Feuersteinen die Existenz des pliocänen Menschen bereits zusammen mit Hipparion nachgewiesen haben, allein genauere Untersuchungen ergaben, daß diese Silex nur auf der Oberfläche vorkommen. Gleichwohl dürfte Asien noch eine reiche Ausbeute an Werkzeugen und körperlichen Resten der ältesten Menschen in Aussicht stellen, denn nur Asien und Europa können als Urheimat des Menschen ernstlich in Betracht kommen.
Chronologisch Übersicht.
Geologische Gliederung Archäologische Gliederung
Penck und Obermaier Boule Penck Boule Obermaier
Nacheiszeit letzte Phase Nacheiszeit Magdalénien Magdalénien Magdalénien
Solutréen
Aurignacien
erste Phase Solutréen Moustérien
IV. Würmeiszeit III. Eiszeit Solutréen Moustérien
3. Zwischen- Eiszeit Kalte Phase 2. Zwischen- Eiszeit Moustérien Chelléen Moustérien ältester Typus
Warme Phase Acheuléen Chelléen
III. Rißeiszeit II. Eiszeit
2. Zwischen- Eiszeit Gemäßigte Phase 1. Zwischen- Eiszeit Acheuléen
Warme Phase Chelléen
II. Mindeleiszeit I. Eiszeit
1. Zwischeneiszeit
I. Günzeiszeit
Rückblick auf die geologische Entwicklung, Herkunft und Verbreitung der Säugetiere.[177]
Bisher sind uns keine Säugetierreste bekannt, welche in vortriadischen Ablagerungen gefunden worden wären. Auch in der Trias sind Säugetiere noch überaus spärlich, aber immerhin repräsentieren sie doch schon zwei wesentlich verschiedene Typen, nämlich die Allotheria und die teils an Insektivoren, teils an polyprotodonte Beuteltiere erinnernden Dromatheriidae. Die ersteren verteilen sich auf die Gattungen Microlestes und Triglyphus aus dem rhätischen Bonebed von Württemberg und auf die Gattung Theriodesmus aus den Karrooschichten von Südafrika. Sie zeigen uns wenigstens, daß die im Eocän erlöschenden Allotheria schon damals sehr weit verbreitet waren. Die zweite Gruppe ist vertreten durch die Kieferchen der Gattungen Microconodon und Dromatherium aus der oberen Trias von Nordcarolina, und vor einigen Jahren wurde aus der Trias des Kaplandes ein winziges Kieferchen als Karoomys beschrieben, dessen Säugetiernatur jedoch mehr als zweifelhaft ist.
Wesentlich zahlreicher sind die Reste von Säugetieren aus dem Jura, denn sowohl die Allotheria als auch die polyprotodonten Marsupialia entfalten hier bereits einen nicht unbeträchtlichen Formenreichtum. In Europa sind zwar zu den längst bekannten Fundplätzen, dem Großoolith von Stonesfield und dem »Dirtbed« des Purbeck von England keine neuen hinzugekommen, dafür lieferte aber das Atlantosaurusbed von Wyoming und Colorado eine Anzahl von Säugetieren, die mit den aus England bekannten Formen teils nahe verwandt sind, teils sogar den nämlichen Gattungen angehören. Die Allotheria haben in England Vertreter in der Gattung Plagiaulax, in Nordamerika in den Gattungen Allodon und Ctenacodon. Die übrigen Säugetiere des Jura besitzen ein sekodontes Gebiß und wurden von Owen wegen ihrer Ähnlichkeit mit der lebenden Gattung Myrmecobius zu den polyprotodonten Beuteltieren gestellt. Osborn zeigte später, daß manche von diesen Formen im Zahn- und Kieferbau gewissen Insektivoren recht ähnlich sind, und daß bei einer Gattung, Peramus, sogar die Zahnformel mit jener der ursprünglichen Placentalier vollkommen übereinstimmt. Andere Formen hingegen, die Triconodontidae erweisen sich schon durch die Gestalt des Unterkiefereckfortsatzes als unzweifelhafte Marsupialia. Bei der Unvollständigkeit des vorhandenen Materiales dürfte es sich empfehlen, auch die übrigen sekodonten Formen vorläufig nicht weiter in Familien und Ordnungen zu zerlegen und sie insgesamt den Marsupialia anzureihen.
In der Kreide kamen Säugetierreste erst im Jahre 1882 zum Vorschein. Die ersten Funde aus der Wealdonstufe Englands bestanden in Zähnchen der schon aus dem Jura bekannten Gattung Plagiaulax. Bald darauf entdeckte Cope in den Laramieschichten von Dakota einen Zahn von Meniscoëssus und kurz nachher glückte es Hatcher, in Wyoming und Colorado eine ziemliche Anzahl meist isolierter Zähne zu sammeln, auf welche Marsh eine Menge Gattungen und Arten begründete, die freilich durch Osborn eine gewaltige Reduktion erlitten haben. Durch diese Funde wurden zwar unsere Kenntnisse der fossilen Säugetiere nicht so bereichert, wie man gehofft hatte, denn die Mehrzahl dieser Zähne gehört den Allotheria an — Ptilodus, Meniscoëssus — aber nichtsdestoweniger verdienen sie doch insofern Interesse, als sie für diese Gruppe die Kluft zwischen Jura und Tertiär überbrücken. Unter den etwas weniger häufigen trituberkulären und tuberkulärsektorialen Formen glaubt Osborn sogar einige als Creodontier, Pediomys, und andere, Protolambda, als den Vorläufer von Pantolambda, mithin von Amblypoden ansprechen zu dürfen. Wäre das Material etwas zahlreicher und vollständiger, so ließen sich wahrscheinlich viel bessere phylogenetische Schlüsse ziehen.
Eocän.
Der Beginn der Tertiärzeit bedeutet einen entscheidenden Wendepunkt in der Entwicklung der Säugetiere, denn es treten jetzt schon mehrere Ordnungen von unzweifelhaften Placentaliern auf, während die Allotheria allmählich erlöschen. Die ältesten Säugetierreste des europäischen Tertiär stammen aus der Gegend von Reims. Lemoine unterscheidet hier zwei zeitlich aufeinanderfolgende Faunen, die des Cernaysien und die des Agéien. Die erstere enthält noch Vertreter der Allotheria, Neoplagiaulax, Creodontia-Arctocyon, Dissacus, Hyaenodictis, die zweifelhaften Insectivoren Plesiadapis, Protoadapis, Adapisorex, einen Condylarthren — Pleuraspidotherium — und das auf Anoplotherium weisende Orthaspidotherium. Die Fauna des Agéien werden wir besser im folgenden besprechen. Freilich bedürfen diese beiden Faunen wegen der höchst sonderbaren, von Lemoine gegebenen Abbildungen dringend einer Neubearbeitung. Viel reicher sind nun die dem Cernaysien ungefähr gleichalterigen Faunen des Puercobed von Neumexiko und des etwas jüngeren Torrejonbed von Neumexiko und Montana. Die erstere enthält noch mehrere Allotheria, darunter die wichtigen Gattungen Neoplagiaulax und Polymastodon, Creodontia — Triisodon, Oxyclaenidae, Condylarthra — Mioclaenus, Oxyacodon, Protogonodon, Periptychidae und Taeniodontia, in der letzteren finden wir die letzten Allotheria und die Creodontia werden mannigfaltiger. Sie sind vertreten durch Arctocyonidae, Mesonychidae, Oxyclaenidae, Triisodontidae und die den echten Raubtieren schon sehr nahe stehenden Miacidae. Die Condylarthren sind durch zahlreiche Mioclaenidae, die ersten Phenacodontidae und Periptychidae, die Taeniodontia durch Conoryctes und die Insectivoren allenfalls durch die Mixodectidae repräsentiert. Zugleich erscheint der erste Amblypode Pantolambda.
Für die Systematik ergeben sich freilich nicht selten erhebliche Schwierigkeiten, denn die Organisation ist bei vielen dieser Formen sehr primitiv, das Gebiß enthält fast immer raubtierähnliche Incisiven, Caninen und Prämolaren, die Molaren sind bunodont oder sekodont, die unteren mehr oder weniger tuberkulärsektorial und die oberen trituberkulär, die Extremitätenknochen haben fast immer eine sehr indifferente Gestalt, der Humerus ist mit einem Entepicondylarforamen und das Femur oft mit einem dritten Trochanter versehen, und die kräftige Fibula stößt nicht an das Calcaneum. Hand und Fuß sind fünfzehig und, soweit bekannt, mehr oder weniger plantigrad, und die Endphalangen sind weder als echte Hufe noch auch als echte Krallen entwickelt. Es darf uns daher nicht wundernehmen, daß so viele Arten schon wiederholt ihren Platz nicht nur innerhalb der Gattungen, sondern sogar innerhalb der Ordnungen gewechselt haben, und daß selbst die Grenzen von Familien und Ordnungen öfters Verschiebungen erfahren haben.