DRITTES CAPITEL. Artgleiche, symbiontische, parasitäre Zellvereinigung.
Reading edition
I. Artgleiche Vereinigung.
Die Lehre von der vegetativen Affinität.
Eine der wesentlichsten Grundbedingungen dafür, dass einzelne Zellen sich zu Aggregaten zusammenfügen, ist ihre Artgleichheit, ihre Verwandtschaft (siehe S. 8). Diese ist das Band, welches die Einzelindividuen zusammenhält und sie zu Bausteinen eines höheren Organismus umwandelt. Artgleiche Zellen ziehen sich an, artungleiche stossen sich ab. Da nun artgleich am meisten die Zellen sind, welche von einer gemeinsamen Mutterzelle abstammen, so sehen wir, dass die Eigenschaft der Zelle, sich auf dem Wege der Fortpflanzung zu vermehren, nicht nur die Grundlage und den Ausgangspunkt für die Erhaltung der Art, sondern auch für die Erschaffung höherer Organismenformen abgiebt. Theilstücke einer Mutterzelle, anstatt wieder zu selbständigen Individuen wie die erzeugende Mutterzelle zu werden, bleiben verbunden und stellen nun bloss Theile einer höheren Individualität dar. Aus selbständigen Artzellen sind sie zu Gewebszellen geworden. So wird das Fortpflanzungsvermögen der organischen Substanz auf der einen Seite Mittel zur Erhaltung der Art, auf der andern Seite Mittel zu höherer Formbildung.
Die Verwandtschaft der Gewebszellen zu einander bezeichnet man als vegetative Affinität. Sie bildet ein Gegenstück zur sexuellen Affinität, worunter man die Verwandtschaft der Fortpflanzungszellen zu einander versteht (I. Buch S. 240). Wie man sich in das Wesen der letzteren durch Kreuzung der Geschlechtsproducte verschiedener Arten auf experimentellem Wege einen Einblick verschaffen kann, so kann man auch in das Wesen der vegetativen Affinität tiefer eindringen durch das Experiment des Pfropfens oder der Verbindung zweier vegetativer Körper derselben oder verschiedener Art.
Am leichtesten lassen sich derartige Experimente bei den Pflanzen anstellen, so dass die meisten Erfahrungen in der vorliegenden Frage von Seiten der Botaniker gewonnen worden sind. Bei den Pflanzen kann man leicht einen abgetrennten Theil, das Reis, von einem Individuum auf ein anderes derselben Art, auf den Grundstock oder die Unterlage, transplantiren und mit ihm zu einer festen, dauerhaften Vereinigung bringen. Es verwachsen nach kurzer Zeit die entsprechenden Gewebe von Reis und Unterlage miteinander ohne jede Störung. Aus zwei verschiedenen Individuen ist so ein einheitlich functionirender Organismus auf künstlichem Wege hervorgerufen worden. Bei Individuen derselben Art gelingt die Vereinigung zweier Stücke sogar, wenn sie in abnorme Stellungen zu einander gebracht werden, oder wenn sie nicht direct zusammengehören, wie Wurzel und Blatt.
Der Erfolg des Pfropfens wird dagegen ein unsicherer oder ein von vornherein aussichtsloser, sowie es sich darum handelt, Stücke zweier verschiedener Arten miteinander zu verbinden. Im Allgemeinen ist auf ein Gelingen der Verbindung um so eher zu rechnen, je näher sich die zu verbindenden Arten im natürlichen System stehen, oder in anderen Worten: die vegetative Affinität wird in ähnlicher Weise wie die sexuelle Affinität durch den Grad der systematischen Verwandtschaft bestimmt.
Doch giebt es von dieser Regel sowohl bei der Pfropfung wie bei der Bastardbefruchtung unerwartete Ausnahmen, aus welchen NÄGELI schliesst, dass die äusseren Merkmale kein vollkommen zuverlässiger Maassstab für den Grad der inneren, constitutionellen Verwandtschaft, sowohl der vegetativen, als auch der sexuellen Affinität zwischen zwei verschiedenen Arten sind.
Als Beispiel hierfür führt VÖCHTING in seinem Werk über „Transplantation am Pflanzenkörper“ die Rassen des Birnbaums an, die sich mit dem derselben Gattung angehörenden und nahe verwandten Apfelbaum nur schwer durch Pfropfung vereinigen lassen, während die meisten auf der Quitte vortrefflich gedeihen, obschon diese zu einer verschiedenen Gattung gehört. In diesem Fall wird übrigens auch zwischen ihren Geschlechtsproducten die sexuelle Affinität vermisst. Denn Apfel- und Birnbaum lassen sich gleichfalls nicht mit einander bastardiren.
Je nachdem es nun zur Entstehung einer einheitlich functionirenden Individualität kommt oder nicht, unterscheidet VÖCHTING die Verbindungen von Reis und Grundstock als harmonische und als disharmonische. Die letzteren lassen verschiedene Abstufungen erkennen, die für uns ebenfalls von Interesse sind. Während gewöhnlich die nicht zu einander passenden Pflanzentheile sich von vornherein gegenseitig abstossen, so dass es zu keiner Verwachsung kommt und das Reis rasch zu Grunde geht, gelegentlich auch ein Stück des Grundstocks, gleichsam vom Reis vergiftet, abstirbt, tritt in andern Fällen die Disharmonie in weniger schroffer Weise auf. Reis und Grundstock beginnen unter einander zu verwachsen, nach kürzerer oder längerer Zeit aber treten Störungen ein, die allmählich zum Zerfall führen. Die Störungen bestehen gewöhnlich bei krautigen Pflanzen darin, dass das Reis an seiner Basis Wurzeln zu bilden beginnt, die gelegentlich auch in die Unterlage selbst hineinwachsen.
Ein lehrreiches Beispiel liefert die von VÖCHTING versuchte Pfropfung zwischen zwei Cactusarten, Rhipsalis paradoxa und Opuntia Labouretiana (Fig. 12). Zwischen Reis und Grundstock ist zwar äusserlich eine Vereinigung eingetreten, die schon etwa 20 Monate besteht; aber sie ist keine physiologisch normale wie bei gelungener Pfropfung. Denn der Grundstock ist durchzogen von den Wurzeln des Reises, deren längste in etwa 110 mm Entfernung von der Einfügungsstelle die Epidermis durchbrochen hat. Andere sind unter der Oberhaut hin gewachsen, ohne sie aber durchbohrt zu haben. An diesen Orten ist die Haut selbst abgehoben und zu Grunde gegangen. In Folge der Wurzelbildung des Reises sind die Gewebe des Grundstockes, der missfarbig und etwas durchsichtig aussieht, selbst verändert und theilweise in eine Gallerte verflüssigt worden, welche an einer Stelle (g) als Tropfen an die Oberfläche getreten ist.
In solchen und anderen Fällen benutzt das Reis die durch die Unterlage herbeigeschafften Säfte und Salze zu seiner Ernährung, will sich aber selbst mit ihr nicht zu einer geschlossenen Lebenseinheit verbinden; denn wie VÖCHTING mit Recht bemerkt, bedeutet die Wurzelbildung nichts Anderes als das Streben, sich zu einem selbständigen Individuum abzurunden. Anstatt zu einem dem Grundstock eingeordneten Theil zu werden, macht das Reis den Versuch, sich zu einem Parasiten desselben umzugestalten. Die weitere Folge ist, dass auch der Grundstock öfters auf den sich ihm nicht anpassenden Fremdling zu reagiren beginnt. So sah VÖCHTING, als er Rhipsalis paradoxa auf Opuntia Labouretiana aufpfropfte, dass um die Wurzeln der ersteren das Gewebe des Grundstocks theils Korkscheiden herumgebildet und theils sich zu einer gallertigen Masse umgewandelt hatte.
In manchen Fällen hat der Experimentator die Disharmonie zweier Arten A und B in der Weise überwinden können, dass er sich einer dritten Art C bediente, welche zu den unter einander disharmonischen Formen eine vegetative Affinität besass. Er schob dieselbe als Mittelglied zwischen die beiden disharmonischen Formen ein und stellte so einen aus Stücken dreier verschiedener Arten zusammengesetzten, einheitlichen Organismus dar, in welchem auf A als Grundstock ein Reis von C und auf dieses wieder ein Reis von B aufgepfropft war.
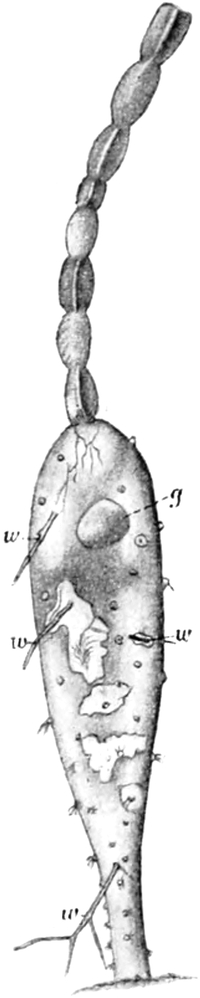
Fig. 12. Opuntia Labour. mit Rhipsalis paradoxa als Reis. Bei ww sieht man die vom Reis in die Unterlage hinabgesandten Wurzeln, welche hie und da die Oberhaut durchbrochen haben. g Die aus dem Sprosse der Opuntia hervorgetretene und erhärtete Gallertmasse.
Schwieriger und daher auch seltener ausgeführt sind Pfropfungen und Transplantationen bei Thieren. Doch scheinen bei ihnen nach dem Wenigen, was sich bereits hat feststellen lassen, ähnliche Gesetze wie bei den Pflanzen zu gelten.
TREMBLEY hat zwei Individuen von Hydra fusca der Quere nach in zwei Stücke zerschnitten und ihre vorderen und ihre hinteren Hälften vertauscht und dann zusammengeheilt. Während es ihm so leicht glückte, Theile zweier Individuen zu einer neuen Individualität zu vereinigen, haben weder er noch neuerdings WETZEL, welcher zahlreiche Experimente ausgeführt hat, es fertig gebracht, Polypenstücke von verschiedener Art, von Hydra viridis und von Hydra fusca, nach demselben Verfahren für die Dauer zusammen zu pfropfen.
BORN hat ohne grosse Schwierigkeiten geeignete Theilstücke von zwei Embryonen von Rana esculenta, wenn sie genügend jung waren, zu einer lebensfähigen Einheit zusammenpfropfen können. Auch auf Vereinigung artungleicher Embryonen hat er seine Untersuchungen ausgedehnt und dabei das folgende Resultat erhalten.
„Die vegetative Affinität zwischen embryonalen Theilstücken, die Angehörigen zweier verschiedener, aber nahe verwandter Arten entstammen (R. fusca, arvalis und esculenta), erwies sich als ziemlich ebenso gross wie die zwischen den Theilstücken artgleicher Componenten. Bei Gattungsverschiedenheit (R. esculenta und Bombinator igneus) erschien die vegetative Affinität „primär“ kaum geringer; die Verwachsung der Gewebe trat in den meisten Fällen leicht, sicher und vollkommen ein. — Ob das Ausbleiben der Verwachsung der Darmrohre und der Vereinigung der Bauchhöhlen in dem einen untersuchten Falle von Bauchvereinigung zwischen R. esculenta und B. igneus auf mangelnder vegetativer Affinität der Zellen beruht, muss so lange unentschieden bleiben, als nicht weiteres, einwandfreies Material vorliegt. In späterer Zeit sind mir bisher alle Zusammensetzungen zwischen R. esculenta und B. igneus, nachdem sie gefressen hatten und sich sicher schon ein Blutaustausch etablirt hatte, zu Grunde gegangen.“
BORN selbst lässt es vorläufig noch dahingestellt, „ob hier ein Zufall vorliegt, oder ob das bei solchen Versuchen immer der Fall sein wird,“ „ob die Todesursache bei diesen Formen in der mangelnden ‚vegetativen Affinität‘ der Zellen oder mehr in unvereinbaren Unterschieden der Gesammtorganisation zu suchen ist.“
Neuerdings hat JOEST auf KORSCHELT’s Anregung Transplantationen zwischen verschiedenen Arten von Regenwürmern (heteroplastische Vereinigungen, wie er sie nennt) ausgeführt. Während an dem Versuchsmaterial artgleiche (homoplastische) Vereinigungen leicht gelangen und auch von Dauer waren, blieben bei 59 Versuchen mit artungleicher Verbindung „vielfach die Stücke eine ganz kurze Zeit vereinigt, um sich dann einfach zu trennen oder zu Grunde zu gehen. Am besten hielten sich in erster Linie die Verbindungen von Allolobophora terrestris und Lumbricus rubellus, wie auch die von Allolobophora caliginosa und Allolobophora cyanea einerseits und Lumbricus rubellus und Allolobophora terrestris andererseits, wohingegen solche von Lumbricus rubellus mit Allolobophora foetida und Allolobophora chlorotica überhaupt unmöglich erschienen. Letztgenannte Vereinigungen könnte man in analoger Weise wie bei den Pflanzen als ‚disharmonische‘ bezeichnen“.
Seine Ergebnisse fasst JOEST in den Satz zusammen: „Dauernde Vereinigungen von Theilstücken verschiedener Art sind zwar nicht so leicht zu erreichen wie homoplastische Verbindungen, gelingen aber doch in vielen Fällen, und zwar verschmelzen die Theilstücke zu einem neuen Individuum, dessen Organisation, abgesehen von dem Speciescharakter der vereinigten Theilstücke, eine einheitliche ist.“
Anstatt ganzer Körpertheile hat man bei Thieren häufiger einzelne kleinere Gewebsstücke von einem Individuum auf ein anderes zu übertragen gesucht. Denn solche Experimente sind auch für den Chirurgen von besonderem Interesse. OLLIER und A. SCHMITT haben mit lebender Knochenhaut und Knochenstückchen experimentirt und Einheilungen und Weiterwachsthum derselben erreicht, wenn es sich um Uebertragungen zwischen Individuen derselben Art oder von einer zu einer anderen Körperstelle desselben Individuums handelte. Dagegen blieb der Erfolg aus z. B. bei Uebertragung eines Perioststückes von Hund auf Katze, Kaninchen, Ziege, Kameel etc. oder umgekehrt; entweder wurde das transplantirte Stück ganz resorbirt, oder es bildete sich um dasselbe ein Eiterherd aus, oder es wurde in eine Cyste eingeschlossen.
Eigenartige Experimente hat P. BERT angestellt: er trennte von weissen, einige Tage alten Ratten ein 2–3 cm langes Stück vom Schwanz ab und brachte es nach Abtrennung der Haut dem operirten Thiere an einer anderen Stelle in’s Unterhautbindegewebe. Schon nach wenigen Tagen war die Circulation in der Schwanzspitze durch Verbindung mit den Gefässen der Umgebung wieder hergestellt. Muskeln und Nerven verfielen einer regressiven Metamorphose, aber die andern Gewebe, Knochen, Knorpel, Bindegewebe etc., fuhren lebhaft zu wachsen fort, so dass die Schwanzspitze, die bei der Transplantation 2–3 cm gross war, bei einigen Thieren, welche einen, zwei oder drei Monate nach der Operation getödtet wurden, zu einer Länge von 5–9 cm ausgewachsen war.
Dagegen fiel das Resultat bei Verpflanzung von einer auf die andere Art abweichend aus. Bei Uebertragungen der Schwanzspitze von Mus decumanus oder Mus rattus auf Eichhörnchen, Meerschweinchen, Kaninchen, Katze, Hund oder umgekehrt traten entweder heftige Eiterungen ein, welche die Abstossung des verpflanzten Stückes und häufig auch den Tod des Versuchsthieres zur Folge hatten, oder es erfolgte bei weniger stürmischem Verlauf allmähliche Resorption. Ein Ueberleben und Weiterwachsen der Schwanzspitze wurde nur bei sehr naher systematischer Verwandtschaft der zum Versuche benutzten zwei Thierarten erzielt. So gelangen Transplantationen von Mus rattus auf Mus decumanus und umgekehrt, dagegen nicht von Mus sylvaticus auf Mus rattus.
Zu demselben Ergebniss führt die Vermischung der Blutarten von zwei verschiedenen Thieren, wie alle Experimentatoren, die sich eingehender mit der Lehre von der Transfusion beschäftigt haben, in übereinstimmender Weise berichten. Auch hier kann man harmonische und disharmonische Verbindungen unterscheiden, die wieder vom Grade der systematischen Verwandtschaft der Thierarten bestimmt werden.
Bei Vermischung disharmonischer Blutarten treten sofort schwere Störungen im Organismus auf. Schon nach wenigen Minuten beginnt ein Zerfall rother Blutkörperchen, eine Auflösung des Hämoglobins im Plasma (Lackfarbigwerden des Blutes) einzutreten, was in kurzer Zeit Blutharn zur Folge hat. Schon in schwachen Dosen wirkt ungleichartiges Blut schädlich, in starken Dosen oft sogar tödtlich. Der Erfolg ist ein ziemlich ähnlicher, mag man das Blut unmittelbar von Gefäss zu Gefäss zwischen zwei Thierarten, zwischen Hund und Kaninchen oder Hund und Hammel oder umgekehrt überleiten, oder mag man es in defibrinirtem Zustand einspritzen. Dagegen ist Transfusion von Blut zwischen Individuen derselben oder sehr nahe stehender Arten ohne Schaden ausführbar. Die Hämoglobinurie bleibt selbst bei sehr grossen Gaben aus. Hieraus zieht PONFICK den Schluss, dass die Blutkörperchen in ihrer weitaus überwiegenden Mehrzahl in dem fremden Organismus unverändert bestehen bleiben.
Die mitgetheilten Ergebnisse der Pfropfung, Transplantation und Transfusion berechtigen uns jetzt zur Aufstellung der folgenden These: an den Geweben von Pflanzen und Thieren sind zwei verschiedene Arten von Eigenschaften zu unterscheiden, erstens die Eigenschaften, welche mit der besonderen Leistung des Gewebes zusammenhängen, und zweitens die Eigenschaften, die ihnen als Theilen einer besonderen Organismenart zukommen.
Die functionellen Eigenschaften prägen sich meist in einer besonderen Structur der Gewebe aus, sie sind daher für unser Auge häufig leicht erkennbar und der mikroskopischen Untersuchung zugänglich. Ferner bedingt gleiche Function der Zellen auch eine gleiche Structur. Daher sehen wir, dass gleich functionirende Gewebe bei den verschiedensten Organismen sich ausserordentlich ähnlich sind. Eine Sehne, ein Nerv, ein Knochen- und Knorpelstück oder Blut eines Hundes und eines Pferdes sind möglicher Weise bei histologischer Untersuchung nicht zu unterscheiden; auch nach ihren specifischen Leistungen für den Organismus würden sich die entsprechenden Theile der beiden Säugethierarten gegeneinander austauschen und wechselseitig ersetzen lassen müssen. Eine entsprechend grosse Sehne des Hundes, mit einem Muskel des Pferdes vereinigt, würde den Zug vom Muskel auf den Knochen ebenso gut übertragen und somit einen Ersatz für die mechanische Leistung der Pferdesehne bilden können und ebenso ein Knochen-, ein Knorpel- und ein Nervenstück.
Durch die äusserlichen Aehnlichkeiten in der Structur darf man sich indessen nicht verleiten lassen, auch eine innere Aehnlichkeit zwischen gleich aussehenden Zellen und Geweben anzunehmen. In dieser Annahme liegt ein grosser Irrthum vor, in den schon manche Forscher verfallen sind. Denn es werden hierbei die an zweiter Stelle oben hervorgehobenen Eigenschaften, welche einem Gewebe als Theil einer besonderen Organismenart anhaften, die constitutionellen oder Arteigenschaften, ganz übersehen; sie werden so leicht übersehen, weil sie sich unserer Wahrnehmung nicht aufdrängen, da sie auf einem für unsere Erkenntnissmittel noch unzugänglichen Gebiete liegen und nur auf Grund der oben erwähnten Experimente und allgemeinen Erwägungen erschlossen werden können.
Der Sachverhalt ist bei den Gewebszellen ein ähnlicher wie bei den Geschlechtsproducten. Nach ihren histologischen Eigenschaften sind einerseits die Eier, andererseits die Samenfäden der verschiedenen Säugethiere einander ausserordentlich ähnlich und in vielen Fällen für uns gar nicht unterscheidbar; als Träger der Artcharaktere aber, die in diesem Zustand für uns nicht wahrnehmbar sind, müssen sie, worüber ein Zweifel nicht bestehen wird, so weit voneinander verschieden sein wie Art von Art.
Worauf beruht nun die Verwandtschaft der Zellen, ihre sexuelle und ihre vegetative Affinität? Auf der Gleichheit ihrer unseren Untersuchungsmitteln unzugänglichen, feineren Organisation, auf dem micellaren Aufbau derjenigen Zellbestandtheile, welche wir in dem ersten Buch als die Eigenschaftsträger des Organismus oder als seine Erbmasse nachzuweisen versucht haben. Dementsprechend werden artungleiche Zellen sich auch in ihren chemisch-physikalischen Eigenschaften von einander unterscheiden; der ganze celluläre Stoffwechsel wird einen für die Art specifischen Charakter haben und bewirken, dass nur Zellen mit gleichartigem Stoffwechsel und mit gleichen chemisch-physikalischen Eigenschaften zu einander passen.
II. Die symbiontische Vereinigung (Symbiose).
So richtig im Allgemeinen auch der Satz ist, dass nur Zellen gleicher Abstammung sich zu höheren Stufen der organischen Individualität zusammenfügen, so bietet die Natur mit ihrem unerschöpflichen Reichthum an Mitteln doch auch manche Ausnahmen von der Regel dar, nämlich Verbindungen von Zellen, die nicht auf innerer Verwandtschaft beruhen, und die wir daher den artgleichen als artungleiche gegenüber stellen können. Diese selbst aber lassen sich wieder in zwei Gruppen sondern.
In der einen Gruppe, mit welcher wir uns zunächst in diesem Abschnitt beschäftigen wollen, lernen wir Verbindungen kennen, in denen zwei artungleiche Zellen sich zwar in ihrer Micellarstructur und ihrem Stoffwechsel wesentlich unterscheiden, aber dabei doch auch wieder so beschaffen sind, dass die eine Art neben der anderen ohne gegenseitige Beeinträchtigung bestehen kann. Ja es kann sogar der Fall eintreten, dass beide Arten von Zellen aus ihrem Zusammensein in mancher Hinsicht einen wechselseitigen Nutzen erfahren. Ein solches Verhältniss hat der Botaniker DE BARY eine Symbiose genannt.
Das lehrreichste und interessanteste Beispiel einer Symbiose bieten uns die Flechten; sie wurden noch vor wenigen Jahrzehnten wegen ihres charakteristischen Aussehens für eine ganz eigenartige Classe von niederen Pflanzen gehalten, bis durch die morphologischen Untersuchungen von DE BARY und SCHWENDENER, denen sich die experimentell-entwicklungsgeschichtlichen Arbeiten von BARANETZKY, REES und STAHL anschlossen, der Nachweis geführt wurde, dass sie keinen einheitlichen Organismus, sondern ein Aggregat zweier innig zusammenlebender, im System weit auseinander stehender Organismenarten, eine Symbiose einer Pilz- und einer Algenart, darstellen.
Pilzfäden aus der Abtheilung der Ascomyceten bilden ein Geflecht (Fig. 13 P) und liefern so die gewebliche Grundlage, in deren Maschen zahllose kleine Algenzellen (A), die bald grünen, rothen oder gelben Farbstoff führen, eingeschlossen sind. Die zahlreichen verschiedenen Arten von Flechten aber, die einen so ausgeprägten Speciescharakter zur Schau tragen, kommen dadurch zu Stande, dass immer eine bestimmte Pilzart sich nur mit einer bestimmten Algenart vergesellschaftet.
In solcher Genossenschaft leben zwei Zellarten mit ganz entgegengesetzten Eigenschaften, mit einem grundverschiedenen Stoffwechsel zusammen, Zellen, die wie die grünen Pflanzenzellen Kohlensäure zersetzen und Kohlenhydrate etc. bilden können, und Zellen, welchen gerade dieses Vermögen fehlt, und die nur von schon gebildeter organischer Substanz leben können. Aber gerade aus diesem Gegensatz ziehen die beiden Organismenarten in dem merkwürdigen Doppelwesen, das wir Flechte nennen, besondere Vortheile, durch welche sie sich in ihrem Gedeihen gegenseitig fördern.
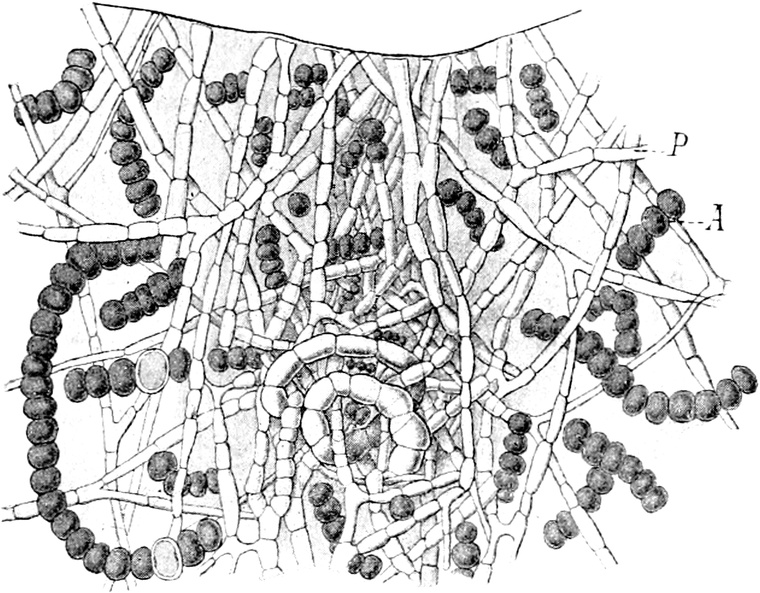
Fig. 13. Stark vergrösserter Durchschnitt durch ein Stück Flechte.
Nach
S
TAHL
.
Die Flechte setzt sich zusammen 1) aus den Pilzfäden (
P
), die, sich in allen Richtungen durchkreuzend, ein dichtes Geflecht bilden, und 2) aus den Algenzellen (
A
), die, grün gefärbt und wie Stücke einer Perlschnur aneinander gereiht, im Pilzgeflecht liegen.
In Folge des hohen Anpassungsgrades der Pilz- und Algenzellen an einander und der damit Hand in Hand gehenden specifischen Formbildung des durch sie gemeinsam erzeugten Aggregates erscheint jede Flechte in hohem Maasse als ein einheitlicher Organismus, der sich von einem artgleichen Aggregat kaum unterscheiden lässt. In einem Punkt aber tritt in voller Klarheit die Natur des Doppelwesens zu Tage, nämlich in der Art ihrer Fortpflanzung. Eine Pilzzelle besitzt niemals die Fähigkeit, eine Algenzelle, und diese ebenso wenig die Fähigkeit, eine Pilzzelle hervorzubringen. Die eine Zellenart kann auf die andere ihre Eigenschaften nicht übertragen. Soll ein neuer Flechtenorganismus daher gebildet werden, so ist dies nur in der Weise möglich, dass der Pilzkörper (P) und der Algenkörper (A) ihre eigenen Fortpflanzungszellen liefern, und dass beide dann bei ihrer Keimung wieder durch Zufall zusammen geführt werden und sich zu einem Aggregat von neuem vereinigen. Aus der Pilzspore wächst ein Keimfaden hervor, der sich zwar eine Zeit lang durch Sprossung weiter vermehren kann, aber schliesslich zu Grunde geht, wenn er nicht mit der zugehörigen Algenart zusammen trifft. Ist dies aber geschehen, so legt er sich derselben innig an und umspinnt sie mit Seitenästen, die er treibt. Beide beeinflussen sich dann in der Art ihres Wachsthums so sehr, dass sie zusammen Formen bilden, welche weder mit Pilzen noch mit Algen eine entfernte Aehnlichkeit haben.
„Es leuchtet ein,“ bemerkt SACHS, „dass die chlorophyllhaltigen Algen im Flechtenkörper geradeso als Assimilationsorgane wirksam sind wie die chlorophyllhaltigen Zellen etwa in der Rinde eines grünen Stengels oder in einem Blatt. Ihre Assimilationsproducte kommen dem Flechtenpilz als Nahrungsmaterial zu Gute, während umgekehrt die zur Assimilation nöthigen Aschenbestandtheile den Algenzellen durch den Pilz zugeführt werden. Durch dieses Convivium aber werden die Flechten nunmehr unabhängig von einem organischen Substrat. Während alle übrigen Pilze Parasiten oder Humusbewohner sind, können sich die Flechten auf rein mineralischem Boden, selbst auf der Oberfläche kristallinischen Gesteins ansiedeln, da ja die in ihnen enthaltene Alge sie unabhängig macht.“ Wir finden sie „befähigt, die unorganische Substanz von Gesteinen, z. B. des Granites, zu zersetzen, um, ähnlich wie die Wurzeln der höheren Pflanzen, diejenigen Mineralstoffe zu gewinnen, welche ihre chlorophyllhaltigen Zellen, die Algen in ihrem Gewebe, zur Assimilation bedürfen. Indem also diese Pilze mit bestimmten Algen sich vereinigen, um sich von ihnen ernähren zu lassen, gewinnen sie eine Freiheit in der Wahl ihrer Wohnorte, die keinem anderen Pilz zu Gebote steht.“ Entweder bilden sie, wie die Laubflechten, flächenartig ausgebreitete Blätter und Krusten, oder sie stellen, wie die Bartflechten, vielfach verzweigte Sträucher dar; mit einem Wort, sie erzeugen Gestalten, „wie sie sonst nur den typisch chlorophyllhaltigen Pflanzen eigen sind.“ Es handelt sich, wie bei diesen, so auch hier darum, die grünen Zellen in geeigneter Weise mit dem Licht und der Luft in Beziehung zu setzen, was entweder durch blattartige Ausbreitung oder durch vielfache Verzweigung des Gewebes zu erreichen ist (J. SACHS).
Der Symbiose der Flechten lassen sich ebenso im Thierreich Erscheinungen zur Seite stellen, welche ein inniges Zusammenleben zweier artverschiedener Zellen lehren, allerdings ohne ein so interessantes Gesammtbild darzubieten, wie es für die Flechten einzig in seiner Art ist. Es handelt sich auch hier um ein constantes Zusammenleben thierischer Zellen mit niedersten, einzelligen Algenarten.
Wie 1871 durch den russischen Botaniker CIENKOWSKY auf Grund entwicklungsgeschichtlicher Studien nachgewiesen wurde, kommen mit Constanz im Protoplasmakörper gewisser Radiolarienarten niederste, einzellige Algen vor, die sich in ihm durch Theilung vermehren und von anderen Forschern schon als gelbe Zellen beschrieben, aber für Bildungsproducte des Radiolarienkörpers selbst gehalten worden waren.
Einige Jahre später machten mein Bruder und ich die Entdeckung, dass bei zahlreichen Actinienarten in der den Urdarm auskleidenden Zellenschicht zahlreiche kleine, gelbe Zellen (Fig. 14 A) eingebettet sind, die wir auf Grund ihres ganzen Verhaltens (Cellulosemembran, Stärkekörnchen, selbständige Vermehrung durch Theilung (Fig. 15 A u. B), Ueberleben beim Tode ihres Wirthes) für niederste, einzellige Algen erklärten. Sie haben sich direct in die geisseltragenden Cylinderzellen des Darmdrüsenblattes (Fig. 14) eingenistet, so dass fast jede einzelne von ihnen 2 bis 5 einschliesst. Sie gehören so sehr zum charakteristischen Bestandtheil gewisser Actinienarten, dass sie in keinem Individuum vermisst werden, dass sie bei ihrem massenhaften Vorkommen der betreffenden Art ihre specifische grünliche, gelbliche oder bräunliche Färbung verleihen.
Aehnliche Genossenschaftsverhältnisse wie bei den Actinien wurden unmittelbar darauf noch in vielen anderen Fällen durch BRANDT, GEDDES, GRAFF, GEZA ENTZ etc. nachgewiesen, nämlich bei mehreren Infusorien, bei Hydra viridis, bei Spongilla viridis, bei Medusen und Velellen, bei Stachelhäutern, Würmern und Schnecken. Meist sind hier die eingenisteten Algenzellen intensiv chlorophyllgrün gefärbt und dabei noch von einer viel geringeren Grösse als die gelben Algenzellen der Radiolarien und Actinien. Auch tragen sie, wie bei Hydra viridis, zum charakteristischen Habitus der betreffenden Art so wesentlich bei, dass sie geradezu ein wichtiges Artmerkmal abgeben.
Wie bei den Flechten scheint aus der Symbiose von Thier- und Algenzellen ebenfalls ein gegenseitiger Nutzen zu erwachsen, so dass man von einem parasitischen Verhältniss nicht gut reden kann. Wahrscheinlich kommt die Kohlensäure, welche in dem thierischen Gewebe als Abfallsproduct bereitet wird, den Algen zu Gute, während der Sauerstoff, welcher im Stoffwechsel der Algen entsteht, von den Thierzellen wieder aufgenommen und zur Oxydation der als Nahrung dienenden organischen Substanzen verwendet wird. Dazu gesellen sich vielleicht noch andere Vortheile auf beiden Seiten. Eingenistet in den Geweben der Thiere, sind die Algen den Nachstellungen anderer Geschöpfe entzogen; sie können daher unter diesen in jeder Beziehung günstigen Bedingungen rascher wachsen und sich durch Theilung fortpflanzen, als es ohnedem möglich wäre, wofür die Massenhaftigkeit ihres Auftretens in klarer Weise spricht. Die Thiere dagegen beherbergen in den Algenzellen ein sehr nützliches Nährmaterial, das sich durch Fortpflanzung selbst erhält, indem sie ihnen wahrscheinlich überschüssige Producte ihrer Assimilation, wie Stärke und Zucker, theilweise entziehen.
Von solchen Gesichtspunkten aus betrachtet, bietet uns der Haushalt eines mit Algen zusammenlebenden Thieres ein interessantes Schauspiel dar. In ihrer Symbiose vollzieht sich gewissermaassen derselbe Kreislauf der Stoffe, der in der gesammten Natur zwischen Thier- und Pflanzenreich stattfindet, auf allerengstem Raume zwischen pflanzlichen und thierischen Zellen, die durch Symbiose scheinbar zu einer Individualität vereinigt sind.
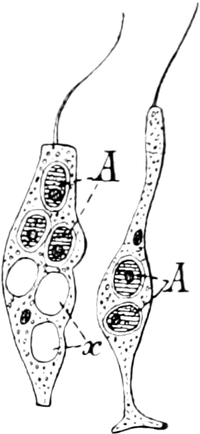
Fig. 14.
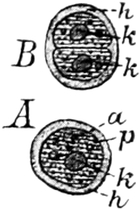
Fig. 15.
Fig. 14. Zwei isolirte Entodermzellen einer Seerose (Anthea cereus). Stark vergrössert.
Man sieht in der links stehenden Darmzelle drei gelbe Algenzellen (A), in der anderen zwei gelbe Algenzellen (A) eingebettet. In der linken Darmzelle gewahrt man noch drei Hohlräume, in welchen ursprünglich auch Algen gelegen haben, die aber bei der Präparation herausgefallen sind.
Fig. 15. Gelbe Algenzellen, aus der Darmwand einer Seerose herausgedrückt.
A Ungetheilt. B In Zweitheilung. h Cellulosehülle. k Kern. a Stärkekörnchen.
III. Die parasitische Vereinigung.
Von der Symbiose sind als eine zweite Gruppe solche Verbindungen zweier artungleicher Zellen zu unterscheiden, innerhalb welcher die eine durch die andere Art in ihren Lebensprocessen wesentlich geschädigt wird. Beide Zellenarten befinden sich gewissermaassen in einem Kampf mit einander. Im Gegensatz zur Symbiose bezeichnen wir die Verbindung daher als eine parasitäre, und wir begeben uns bei ihrer Betrachtung vom normalen auf das pathologische Gebiet.
In die Gewebe höherer Organismen können fremdartige Zellen, durch besondere Verhältnisse begünstigt, eindringen, in ihnen einen geeigneten Boden für ihre Vermehrung finden und durch ihren Einfluss auf die Wirthsgewebe charakteristische Gewebsformen hervorrufen, die man in der pathologischen Anatomie Infectionsgeschwülste nennt. Diese zeigen je nach der Localität, in der sie entstanden sind, und je nach der fremdartigen Organismenart, welche sie veranlasst hat, ein durchaus eigenartiges Gepräge, aus welchem man sofort einen Schluss auf den specifischen Krankheitserreger machen kann.
Auf die Anwesenheit von Tuberkelbacillen sind die eigenthümlichen Miliartuberkeln und die knötchenförmigen Geschwülste in der Haut bei Lupus zurückzuführen. Das syphilitische Contagium bedingt je nach den Organen, in denen es zur Entwicklung gekommen ist, eine ganze Reihe typischer Geschwulstformen, Condylome, Gummata etc. Die verschiedenen Arten der Carcinome und Sarcome endlich sind nach den vergleichend pathologischen Untersuchungen von PFEIFFER höchst wahrscheinlich auch parasitären Ursprungs, wenn es auch noch nicht geglückt ist, den Mikroorganismus, der in die Gruppe der Plasmodien und Sarcosporidien zu gehören scheint, isolirt darzustellen, in Reincultur zu züchten und zu überimpfen.
Durch das Zusammenleben zweier artverschiedener Zellen wird in den pathologischen Geschwülsten die gegentheilige Erscheinung wie bei der Symbiose hervorgerufen. Während hier die Stoffwechselprocesse der beiden verbundenen Organismen trotz ihrer Verschiedenartigkeit doch zu einander passen, so dass der eine den andern nicht schädigt, im Gegentheil ihm in vielen Fällen sogar ganz offenbaren Nutzen bringt, übt dort der Eindringling oder Parasit durch seinen Stoffwechsel eine bald mehr, bald weniger intensive Schädigung auf die umgebenden Gewebe des Wirthes, ja schliesslich auf seinen ganzen Organismus aus. Er wird für ihn zu einem Verderben bringenden, unter Umständen tödtlichen Gift.
Die Schädigung beruht weniger darauf, dass der Parasit dem Wirthsgewebe Nahrung entzieht, sondern ist in dem Umstand begründet, dass er bei seinem Stoffwechsel organische Verbindungen erzeugt, die schon in geringsten Dosen eine ganz erstaunliche Giftwirkung auf die Zellen des Wirthsorganismus ausüben. Von manchen Mikroorganismen ist es gelungen, die giftigen Stoffe oder Toxine zu isoliren und in concentrirtem Zustande darzustellen, das Tuberkulin, das Gift des Staphylococcus, des Diphtheriebacillus etc. Es ist überraschend, in welchen geringen Dosen die Toxine, welche in die Reihe der Proteinverbindungen gehören, wenn sie in den Kreislauf eines Thieres gebracht werden, die gefährlichsten Vergiftungssymptome bewirken, hohes Fieber, Lähmungen im Bereiche des Nervensystems, fettige Entartungen der Zellen, namentlich der Nierenepithelien, durch welche die Ausscheidung und Entfernung der Toxine aus dem Blute besorgt wird.
Im Gegensatz zur Symbiose, bei welcher man z. B. die eingedrungenen Algenzellen als integrirende Bestandtheile der Gewebszellen selbst gehalten hat, erscheinen die pathologischen Geschwülste als etwas dem Organismus Fremdartiges, als Störungen seines Normalzustandes. Auch zeigen sie uns theils eine directe Schädigung der Wirthszellen, theils reactive Erscheinungen vom Wirthsorganismus zur Abwehr der ihm fremdartigen Mikroben.
Um ein Beispiel anzuführen, so hat die Ansiedelung von Tuberkelbacillen zur Folge, dass durch den von ihnen ausgeübten Reiz die umgebenden fixen Gewebszellen in Wucherung gerathen und ein hirsekorngrosses Knötchen bilden, das aus protoplasmatischen, epitheloiden Zellen zusammengesetzt ist. Unter diesen entwickeln sich auch einzelne besonders protoplasmareiche und von vielen Kernen erfüllte Riesenzellen. Theils in den Zellen, theils zwischen ihnen finden sich die Bakteriencolonieen. Nach einiger Zeit lassen die von den Tuberkelbacillen befallenen Zellen Veränderungen des Kerns und Protoplasmas, Schrumpfung und Zerfall des ersteren, hyaline Degeneration des letzteren erkennen, Erscheinungen, die man als Coagulationsnekrose bezeichnet hat. Auf den fremdartigen Reiz reagirt dann auch die weitere Umgebung der vom Parasiten befallenen und veränderten Gewebspartie; es bilden sich entzündliche Erscheinungen aus unter Betheiligung des angrenzenden Gefässsystems; weisse Blutkörperchen wandern nach dem Ort der Schädigung hin, dringen theilweise zwischen die epitheloiden Zellen selbst hinein und infiltriren die nächste Umgebung des Tuberkels. Indem beim weiteren Fortschreiten der Coagulationsnekrose die centralen Partieen absterben, kommt es schliesslich zur sogenannten Verkäsung des Tuberkels.
Literatur zu Capitel III
1) Beresowsky. Ueber die histologischen Vorgänge bei der Transplantation von Hautstücken auf Thiere einer anderen Species. Ziegler’s Beiträge zur patholog. Anat. und zur allgemeinen Pathologie. Jena 1893.
2) P. Bert. Recherches expérimentales pour servir à l’histoire de la vitalité propre des tissus animaux. Annales des sciences naturelles, sér. V. Zoologie t. V. 1886.
3) G. Born. Ueber Ergebnisse der mit Amphibienlarven angestellten Verwachsungsversuche. Verhandl. d. anatomischen Gesellsch. in Basel 1895.
4) Derselbe. Die künstliche Vereinigung lebender Theilstücke von Amphibienlarven. Jahresber. d. Schles. Gesellsch. f. vaterl. Cultur. Medic. Section. 1894.
5) Derselbe. Ueber Verwachsungsversuche mit Amphibienlarven. Archiv für Entwicklungsmechanik Bd. IV. 1897.
6) Brandt. Ueber das Zusammenleben von Thieren und Algen. Verhandl. der physiol. Gesellsch. zu Berlin 1881.
7) Derselbe. Ueber die morphologische und physiologische Bedeutung des Chlorophylls bei den Thieren. Mittheil. aus der zoolog. Station zu Neapel Bd. IV. 1883. (Daselbst auch ausführlicher Literaturbericht.)
8) de Bary. Ueber die Erscheinung der Symbiose. Strassburg 1879.
9) v. Gärtner. Versuche und Beobachtungen über die Bastarderzeugung im Pflanzenreich. 1849.
10) P. Geddes. On the nature and functions of the yellow cells of the Radiolarians and Coelenterates. Proceedings of Royal Society of Edinburgh 1882.
11) Geza Entz. Ueber die Natur der „Chlorophyllkörperchen“ niederer Thiere. Biolog. Centralbl. Bd. I u. II. 1882. 1883.
12) Graff. Monographie der Turbellarien. Leipzig 1882.
13) Oscar Hertwig u. Richard Hertwig. Die Actinien anatomisch und histologisch etc. untersucht. 1879. Die gelben Zellen im Körper der Actinien. Seite 39.
14) Oscar Hertwig. Die Symbiose oder das Genossenschaftsleben im Thierreiche. 1883.
15) Derselbe. Zeit- und Streitfragen der Biologie. Heft 1. Präformation oder Epigenese. 1894. pag. 62. Die Erscheinungen der vegetativen Affinität.
16) Joest. Transplantationsversuche an Lumbriciden. Morphologie und Physiologie der Transplantationen. Archiv f. Entwicklungsmechanik Bd. V. 1897.
17) Landois. Die Transfusion des Blutes. Leipzig 1875.
18) Léopold Ollier. Recherches expérimentales sur la production artificielle des os au moyen de la transplantation du périoste etc. Journal de la physiologie de l’homme et des animaux. J. II. 1859.
19) Derselbe. Recherches expérimentales sur les greffes osseuses. Ebenda t. III. 1860.
20) Ponfick. Experimentelle Beiträge zur Lehre von der Transfusion etc. Virchow’s Arch. Bd. LXII.
21) v. Recklinghausen. Die Wiedererzeugung (Regeneration) und die Ueberpflanzung (Transplantation). Handbuch der allgemeinen Pathologie des Kreislaufs aus: Deutsche Chirurgie 1883.
22) Julius Sachs. Vorlesungen über Pflanzenphysiologie, pag. 472–476. 1882.
23) Adolf Schmitt. Ueber Osteoplastik in klinischer und experimenteller Beziehung. Arbeiten aus der chirurg. Klinik der Königl. Universität Berlin.
24) Schwendener. Untersuchungen über den Flechtenthallus etc. Nägeli’s Beiträge zur wissenschaftl. Botanik. 1860. 1862. 1868.
25) Stahl. Beiträge zur Entwicklungsgeschichte der Flechten. Heft 2. Leipzig 1877.
26) Trembley. Mémoires pour servir à l’histoire d’un genre de Polypes d’eau douce. 1744.
27) H. Vöchting. Ueber Transplantation am Pflanzenkörper. Untersuchungen zur Physiologie und Pathologie (ausführliches Literaturverzeichniss). Tübingen 1892.
28) Georg Wetzel. Transplantationsversuche mit Hydra. Archiv f. mikroskop. Anat. Bd. XLV.