Zur Biologie der phanerogamischen Süsswasserflora.
Reading edition
Von Prof. Dr. Friedrich Ludwig.
Die Beziehungen der Pflanzenwelt zu ihrer belebten und unbelebten Umgebung sind so mannigfaltige, die Anpassungen so ungeahnt bis ins einzelne gehend, dass trotz der grossen Zahl der Forscher, die sich in der Gegenwart auch hier, wie auf allen Gebieten geistiger Arbeit, zusammengefunden haben, um diese Beziehungen aufzudecken, fortgesetzt neue Entdeckungen zu verzeichnen, neue Fragen zu beantworten, neue Probleme zu lösen sind. Wir erinnern nur an die merkwürdigen gegenseitigen Anpassungen der beiden grossen Familien der Feigen und der Feigenwespen[1], an die Ameisenpflanzen[2], die Milbenpflanzen mit ihren Milbenhäuschen (Acarodomatien)[3], die mannigfachen Eigenschaften, welche die Pflanzen im Zusammenleben mit den Schnecken und anderen omnivoren niederen Tieren und als Schutz gegen dieselben erhalten haben[4], an die höchst eigentümliche Art der Ernährung unserer Waldbäume und vieler anderen Pflanzen durch die Vermittelung der Pilze (Mycorrhizen der Cupuliferen, Ericaceen etc.), die Stickstoffernährung der Hülsenfrüchtler durch die Wurzelknöllchen bildenden Bacillen (Bacillus radicicola Beyerinck, Franks Rhizobium), an die fleischverdauenden Pflanzen, an die Beziehungen zwischen gewissen Wirts- und Schmarotzerfamilien und -Arten, wie sie z. B. bei der Gruppe der Rostpilze so mannigfach zu Tage treten (die Gattung Phragmidium ist auf die Rosaceen, die Ravenelia auf Leguminosen beschränkt, Gymnosporangium bildet die erste Generation nur auf Pomaceen, die zweite und dritte auf Coniferen aus etc.), — der grossen Kapitel von den Anpassungen der Blumen und Blüten an Insekten, Vögel, Wind etc., von den Verbreitungsmitteln der Früchte und Samen, den Schutzmitteln gegen allerlei schädigende Einflüsse, die ganz besondere Bearbeitung gefunden haben, nicht zu gedenken. Immerhin hat man eine stattliche Anzahl solcher Beziehungen der Pflanzen zu der übrigen organischen und unorganischen Welt aufgedeckt, die Fäden gefunden, welche die verschiedensten Naturkörper einheitlich verknüpfen, zu einem Naturganzen zusammenschlingen — soweit es sich um Landtiere und Landpflanzen handelt. Nicht so weit ist man in die Lebensgeheimnisse der Wasserwelt eingedrungen.
Das Pflanzenleben im Wasser ist doch an ganz andere Bedingungen geknüpft. Luft und Erde mit ihren Organismen und unorganischen Bestandteilen sind es allein, mit und in welchen die gewöhnliche Landpflanze zu leben hat. Eine dritte Hülle unseres Planeten, die Wasserhülle, mit all ihren abweichenden physikalischen und chemischen Eigenschaften, mit einer ganz anderen Lebewelt, die teils der Pflanze von Nutzen ist, teils von ihr abgewehrt werden muss, ist das Element der Wasserpflanzen. Dazu kommt, dass auch das Luftmeer über dem Wasser und der Erdboden unter dem Wasser andere physikalische Eigenschaften und ein anderes Tierleben besitzt als Luft und Boden im Trocknen. Das grössere spezifische Gewicht des Wassers macht gewisse Einrichtungen der Landpflanzen, welche der Festigung dienen, überflüssig, indem das Wasser einen guten Teil der Last der Pflanzenorgane bei Wasserpflanzen trägt. Das Verhalten des Wassers zur Wärme ist der Pflanzenwelt besonders günstig. Die Temperaturveränderungen erfolgen allmählich, nicht plötzlich wie die der Luft und des trocknen Bodens, und vermöge seiner Eigenschaft, bei + 4° C. den kleinsten Raum einzunehmen oder die grösste Dichtigkeit zu haben, gefriert das Wasser nur an der Oberfläche, in der Tiefe eine Temperatur von über 0° bewahrend, welche auch dem Boden der Gewässer zu gute kommt. Im Wasser, am und im Boden der Gewässer, können daher Gewächse überwintern, welche am Lande im Winterfrost zugrundegehen würden. Daher sind auch die eigentlichen Wasserpflanzen ausdauernd, mit Ausnahme der uferbewohnenden Tännelarten (Elatine) und des Nixenkrautes (Najas flexilis und minor); und auch von solchen Arten, die in einer besondern einjährigen Landform vorkommen, wie dem Wasserhahnenfuss, dem schwimmenden Igelkolben etc., ist die Wasserform ausdauernd, auch im Winter flutend.
Die Löslichkeit für die Bestandteile der atmosphärischen Luft ist eine ungleiche und das Wasser nimmt von ihnen nur 2–3% Sauerstoff auf, während das Luftmeer davon etwa 21% enthält; dagegen hat das Wasser einen hohen Kohlensäuregehalt, auch die Bodengase haben eine wesentlich andere Zusammensetzung auf dem Wassergrund als am Lande. Schliesslich sind die Beleuchtungsverhältnisse im Wasser, das einen guten Teil der Sonnenstrahlen absorbiert, andere als in der Luft.
Diese und ähnliche Verhältnisse müssen in dem Bau und der Entwickelung der Wasserpflanzen zum Ausdruck gekommen sein und thatsächlich werden uns die wesentlichsten Unterschiede zwischen Land- und Wasserpflanzen von diesem Gesichtspunkte aus verständlich.
Von vornherein ist im Wasser ein fünffaches Pflanzenleben denkbar: 1. Das Leben im Boden der Gewässer (Schlammpflanzen). 2. Das Leben in Boden und Wasser (submerse Wasserpflanzen mit Wurzeln). 3. Das Leben im Wasser (nichtwurzelnde submerse Wasserpflanzen). 4. Das Leben in Wasser und Luft (nichtwurzelnde Schwimmpflanzen und nichtwurzelnde submerse Pflanzen, welche ihren Blütenstand über Wasser zur Entwickelung bringen) und 5. Das Leben in allen drei Medien zugleich (wurzelnde Pflanzen, welche ihren Blütenstand über Wasser entwickeln und die eigentlichen Sumpf- und Uferpflanzen). Von Schlammpflanzen, welche in dem an toter organischer Substanz reichen, lockeren, auch im Winter nicht gefrierenden Boden unserer Gewässer leben, sind bisher wohl nur die niedersten Pilzformen bekannt geworden, welche aber zumteil bedeutende Veränderungen an der Erdoberfläche hervorgebracht haben und die Zusammensetzung der Nährstoffe für die phanerogamischen Süsswassergewächse nicht unwesentlich beeinflussen. Erinnert sei an die Spaltpilze der Cellulosegärung (Bacillus Amylobacter etc.), die Bildner des Sumpfgases, durch dessen Wirkung der Gips unter Entwickelung von Schwefelwasserstoff in kohlensauren Kalk umgewandelt wird, ferner an die „Schwefelbakterien“ (Beggiatoa, Clathrocystis rosea-persicina, Ophidomonas etc.), welche den Schwefelwasserstoff der Cellulosegärung zu Schwefel, den sie in Form kleiner amorpher Kügelchen in der Zelle aufspeichern, und letztern sodann zu Schwefelsäure oxydieren. Durch die letztere verwandeln sie die Karbonate wieder in Sulfate und geben freie Kohlensäure an das Wasser ab. Auch die von Winogradski als „Eisenbakterien“ bezeichneten Bildner des Sumpf- und Wiesenerzes u. a. gehören hierher[5].
Die phanerogamischen Wassergewächse gehören den übrigen Abteilungen an, deren Lebensverhältnisse, soweit sie sicher bekannt sind, im folgenden an einigen ausführlicheren Beispielen etwas eingehender behandelt werden sollen.
Die submersen (untergetauchten) Wasserpflanzen.
Die Ernährung der Landpflanzen geht bekanntlich im grossen und ganzen in der Weise vor sich, dass das Wasser des Bodens mit den darin gelösten Nährsalzen von der Wurzel nach den chlorophyllhaltigen Geweben des Blattes emporgehoben und mit der aus der Atmosphäre durch die Blätter aufgenommenen Kohlensäure zu den ersten organischen Verbindungen (Stärke etc.) verarbeitet, „assimiliert“ wird. Die Bewegung des Wassers wird dabei wesentlich durch die an der Blattfläche, besonders auch durch die in den Spaltöffnungen der untern Blattseite stattfindende Verdunstung und hierdurch ausgeübte Saugkraft auf die darunter gelegenen Elemente bewirkt. Dieser „Transspirationsstrom“ geht durch die Gefässe von der Wurzel durch die Hauptachse zu den seitlichen Auszweigungen und den Blättern an ihnen, während die Kohlensäure durch die Spaltöffnungen in das „Schwammparenchym“ des Blattes gelangt. Das Blatt zeigt in der Regel unter chlorophyllfreier Epidermis oben das zu den Beleuchtungsverhältnissen in der Luft in Beziehung stehende sogenannte Pallisadengewebe, unten, innerhalb der von den Spaltöffnungen durchsetzten Epidermis, das Schwammgewebe mit den Atemhöhlen.
Bei den submersen Wasserpflanzen kommt dieser Transspirationsstrom, mit ihm der strenge Gegensatz von Haupt- und Nebenachse und das Hervortreten der Gefässe in Wegfall.
Die Spaltöffnungen fehlen den untergetauchten Blättern. Die Aufnahme der im Wasser gelösten Kohlensäure sowohl, wie der anorganischen Nährsalze, geschieht direkt durch die dünnwandige chlorophyllhaltige Epidermis[6]. Die Wurzeln dienen in der Hauptsache da, wo sie vorhanden sind, als Haftorgane, haben ihre Rolle der Nahrungsaufnahme verloren (besitzen keine Wurzelhaare mehr etc.), in vielen Fällen fehlen sie jedoch gänzlich. Da die ganze grüne Blattmasse an ihrer Oberfläche durch Diffusion die Aufnahme der flüssigen Nahrung und den Gasaustausch besorgt, muss bei ihr das Prinzip der äussern Oberflächenvergrösserung durch tiefgehende Zerteilung und Verzweigung, das den Grundbau der ganzen höhern Pflanze (Verzweigung von Wurzel und Stamm) im Gegensatz zu dem der höheren Tiere beherrscht, besonders zur Geltung kommen. Spaltet man einen Würfel oder einen andern Körper fortgesetzt, so kann man bekanntlich, ohne das Gesamtvolumen zu ändern, die Oberfläche bis zu jeder beliebigen Flächengrösse hinauf wachsen lassen. Derartig ist auch die Vergrösserung der mit der spärlichen Sauerstoffmenge im Wasser haushaltenden Atmungsorgane (Kiemen) unserer Wassertiere. Thatsächlich ist nun den submersen Wasserpflanzen mit wenigen Ausnahmen und nicht allein ihnen, sondern auch den untergetauchten Wasserblättern der Pflanzen der vierten und fünften Gruppe eine weitgehende Zerschlitzung des Blattes bis zu feinen haar- oder borstenförmigen Abschnitten gemein. So z. B. den Arten des Hornblattes (Ceratophyllum), des Tausendblattes (Myriophyllum), des Wasserschlauches (Utricularia), der Sumpffeder (Hottonia), der Aldrovandie. So sind wenigstens die untergetauchten Blätter haarförmig fein geteilt bei den Wasserhahnenfussarten (Batrachium), bei der Rebendolde (Oenanthe Phellandrium etc.). In anderen Fällen sind die dünnen Blätter zwar einfach, aber schmallinealisch, so z. B. bei der Wasserpest (Elodea), der Vallisnerie (Vallisneria spiralis), den Wassersternen (Callitriche) u. a. Die feine Zerteilung etc. sichert zugleich das Blatt vor einem Zerreissen durch Wasserströmungen und Wassertiere.
Betrachten wir des weitern die untergetauchte Wasserpflanze in ihren Beziehungen zu ihrer Umgebung an einigen besonderen Beispielen.
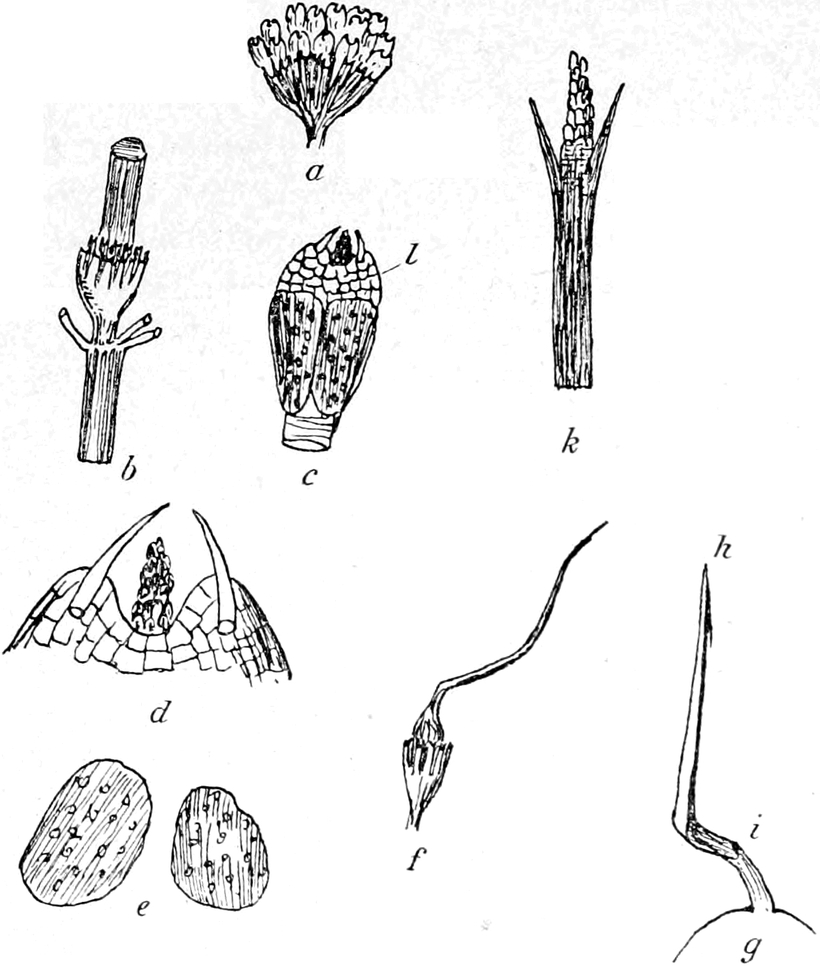
Fig. 6.
Befruchtung des Gemeinen Hornblattes (
Ceratophyllum demersum
:
a
Männlicher Blütenstand —
b
Hüllkelch desselben nach der Entleerung —
c
Ein Staubgefäss (vergrössert) —
l
Auftrieb —
d
Oberer Teil desselben (Auftrieb) —
e
Pollenkörner —
f
Weibliche Blüte (schwach vergrössert) —
g
Griffel —
h i
Narbenfläche).
Das Gemeine Hornblatt (Ceratophyllum demersum) ist eine in Teichen, langsam fliessenden Gewässern und am Rande von Seen weit verbreitete, wurzellose, frei im Wasser flutende Art mit quirlig stehenden, wiederholt gabelspaltigen, feingeteilten Blättern an verzweigtem runden Stengel, der an der Spitze fortwächst, vom untern Ende aus absterbend. Es ist die einzige Pflanzengattung des Süsswassers, welche streng hydrophil ist, d. h. zur Übertragung des Pollens vom Staubgefäss zur Narbe des Stempels des Wassers bedarf, während von Meerespflanzen eine Anzahl hydrophiler Pflanzen bereits seit längerer Zeit bekannt ist. Als ich vor zehn Jahren auf Veranlassung meines Freundes Hermann Müller die Bestäubungsverhältnisse unserer Süsswasserpflanzen und ihre Anpassungen an das Wasser und gewisse wasserbewohnende Insekten einem eingehenderen Studium unterzog[7], da war über diese — wie H. Müller sagt — „bis dahin auffallend vernachlässigte Gruppe“ noch so gut wie gar nichts bekannt. Ceratophyllum demersum (Fig. 6) zeigte mir einen in wunderbarer Weise der Wasserbefruchtung angepassten Mechanismus. Männliche und weibliche Blüten stehen, kaum gestielt, getrennt in verschiedenen Blattwirteln ordnungslos durcheinander (nur scheinen zu unterst die weiblichen Blüten zu überwiegen). Die männlichen staubgefäss- und pollenreichen Blüten sind in beträchtlich grösserer Zahl vorhanden, als die weiblichen. Letztere enthalten in einem anliegenden vielzipfeligen Kelche einen ovalen Fruchtknoten mit einem den Kelch um das vier- bis fünffache überragenden hakig nach unten gekrümmten Griffel, der sich nach der Spitze zu allmählich verschmälert. Der letztere ist nirgends warzig, doch sondert seine ganze Unterseite einen Klebstoff ab und fungiert als Narbe. — Der männliche Blütenstand besteht aus 12–16 sehr kurz gestielten Antheren, die von einer vielteiligen Hülle umgeben sind. Die einzelnen Teile der letztern sind linealisch, gestutzt, meist zweidornig. Die Staubgefässe bestehen im unteren, dem kurzen Stiele aufsitzenden Teile aus zwei seitlich sich längs öffnenden Pollenkammern und im oberen Drittel aus lockerem lufthaltigen Gewebe, an der Spitze mit zwei nach der Mitte zu gekrümmten Dörnchen, zwischen denen meist noch eine schwärzliche, mehr oder weniger gerade höckerige Drüse sich befindet. Diese Spitzenanhängsel des pollenerzeugenden Apparates (ebenso wie die sie einschliessenden Dornspitzen) kommen in fast gleicher Weise an den Enden der Hüllblätter und Laubblätter vor (vgl. Fig. 6 k). Sie sind nach neueren Untersuchungen[8] tanninhaltig und bilden nach Stahl[4] ein wirksames Schutzmittel gegen Wasserschnecken, wohl auch gegen andere Wassertiere. Zur Befruchtung stehen sie in keiner Beziehung. Anders verhält es sich mit dem aus lockerem lufthaltigen Gewebe bestehenden Antherenfortsatz, den ich als „Auftrieb“ bezeichnet habe. Derselbe macht das ganze Staubgefäss spezifisch leichter als Wasser und treibt dasselbe, wenn es aus der Blüte losgelöst wird, nach der Oberfläche des Wassers. Die rundlichen oder länglichen nur von einer zarten Haut umgebenen Pollenkörner haben genau das spezifische Gewicht des Wassers, so dass sie in jeder beliebigen Tiefe suspendiert bleiben. Dieses verschiedene spezifische Gewicht der Pollenkörner und des gesamten pollenerzeugenden Apparates, zusammen mit dem Verhalten der starrblättrigen Hülle, bestimmt den eigentlichen Pollentransport. Die Hüllblätter haben nämlich das Bestreben, sich nach innen zu biegen — an entleerten Blütenständen sind sie aufrecht —, so dass die Staubgefässe zur Zeit ihrer völligen Ausbildung keinen genügenden Platz mehr haben. Zur Zeit der Dehiscenz werden die letzteren daher aus der Hülle herausgepresst und schwimmen unter der Wirkung des Auftriebes nach oben, bis sie die Wasseroberfläche erreicht haben, oder, was häufiger geschieht, zwischen den hakigen Blättern der oberen Stengelglieder zurückgehalten werden. Während dieser Aufwärtsbewegung werden die Antheren entleert, wobei die durch den Auftrieb bedingte Vertikalstellung des Staubgefässes besonders günstig ist, und verbreiten sich — weil vom spezifischen Gewicht des Wassers — über den ganzen vom pollenerzeugenden Apparat bestrichenen Raum. Wird so schon das Wasser, in welchem Ceratophyllum wächst, überall von dessen grossen Pollenkörnern (40–50 µ breit und 50–75 µ lang) erfüllt, so kommt der Verbreitung der letzteren resp. einer Fremdbefruchtung durch dieselben nächst den Bewegungen des Wassers selbst und den passiven Bewegungen des Ceratophyllum durch Wassertiere ein anderer Umstand zu statten — die Eigenbewegung des Ceratophyllumstammes, die besonders in ruhigem, stehendem Wasser (in welchem ich meine Beobachtungen anstellte) nicht unterschätzt werden darf. Dieselbe wurde zuerst von E. Rodier[9] nachgewiesen. Die jungen (blütentragenden) Internodien haben eine vom Lichte unabhängige, komplizierte Bewegung, welche einen besonderen Fall der Darwinschen Circumnutationen[10] darstellt, sich aber von der Mehrzahl dieser durch die Weite und die verwickelte Art der Bewegung unterscheidet. Im allgemeinen biegen sich die Stämme früh von rechts nach links und am Nachmittag in entgegengesetzter Richtung. Zuweilen werden in sechs Stunden Winkel von 200°, in einem Fall wurde sogar in drei Stunden ein Winkel von 220° zurückgelegt. Zudem führen die Zweige um ihre Wachstumsachse Torsionsbewegungen aus. Die Biegung der Stämme ist schliesslich eine ganz eigentümliche, sie beginnt an der Spitze und pflanzt sich von da in abnehmender Stärke nach unten fort, während die Rückwärtsbewegung unten beginnt und oben endigt, so dass die letzten Internodien kurz vor ihrer Zurückbewegung zuweilen mit der Achse einen spitzen Winkel bilden. Berücksichtigt man noch, dass der Pollen in ausserordentlich reichlicher Menge erzeugt wird, so dürfte nach alledem eine erfolgreiche Fremdbefruchtung der — wie ich glaube etwas vor den Antheren entwickelten — weiblichen Blüten gesichert sein. — Herm. Beyer[11] spricht von einer gleichzeitigen Bewegung der weiblichen Blüten nach der Oberfläche, an welcher der vorher nicht entleerte Teil des Pollens umherschwimmt, doch habe ich eine solche Bewegung nicht wahrgenommen.
Die eigentümliche Befruchtungsweise der Ceratophyllumarten (bei den übrigen deutschen Arten C. submersum und C. platyacanthum wird sie in gleicher Weise angegeben) steht allem Anschein nach in der Mitte zwischen der der Seegräser einer- und der Hydrocharidaceen anderseits. Bei den Seegräsern (Zostera, Cymadocea, Halodule etc.) besteht der Pollen aus algenähnlichen bis zwei Linien langen Schläuchen, welche, vom spezifischen Gewicht des Wassers, direkt in dieses entleert werden und von den band- oder hakenförmigen Narben aufgefangen die Befruchtung bewirken; auch bei dem Nixenkraut (Najas), dessen Blütenverhältnisse Jönssen und Magnus näher studiert haben, kommen ähnliche Verhältnisse vor; die Pollenkörner sind aber hier nach Jönssen durch ihren Gehalt an Stärkekörnern schwerer als das Wasser und sinken nach unten, um von den Fangapparaten der tiefer sitzenden weiblichen Blüten aufgefangen zu werden (man vergleiche aber die diese Auffassung berichtigende Bemerkung von Magnus, nach dem erst die ausgekeimten Pollenkörner verbreitet werden). Durch den Mangel der Exine, der äusseren schützenden und oft mit Stachelfortsätzen besetzten Haut der Pollenkörner und das hohe spezifische Gewicht der letzteren stehen die Hornblattgewächse diesen submers blühenden Seegräsern nahe, während sie durch die sich loslösenden aufsteigenden Staubgefässe an die Hydrocharideen erinnern. Von letzteren ist die Vallisnerie (Vallisneria spiralis), die seit Jahrhunderten bekannte und schon vielfach poetisch und prosaisch geschilderte Wasserblume, wie eine im indischen Ozean heimische Verwandte (Enhalus acoroides), am charakteristischsten. Die ganzen männlichen Blüten lösen sich los und schwimmen während der Dehiscenz an der Wasserfläche umher, während die weiblichen Blüten auf langem schraubenförmigen Stiele die Oberfläche erreichen, um hier von den im Winde hin und her getriebenen Staubblüten die Pollenkörner aufzunehmen. Nach geschehener Befruchtung schraubt sich ihr Stiel wieder auf den Boden zurück, um hier die Früchte zu reifen. Auch bei der Wasserpest (Elodea canadensis), deren weibliche Form im Jahr 1836, nach Irland kam[12] und sich von da aus mit anfangs erschreckender Schnelligkeit überall in Europa ausbreitete, steigen in der nordamerikanischen Heimat die männlichen Blüten zur Höhe, um an der Oberfläche ihre Pollenmassen in die auf gestrecktem Fruchtknoten an die Oberfläche gelangten Stempelblüten auszuschütten. Bei Hydrilla verticillata, einer einheimischen Verwandten der Elodea, ist der Bestäubungsvorgang noch nicht ermittelt, wohl aber ein ähnlicher. Bei der Verwandten unseres Laichkrautes, der Meerstrands-Ruppie (Ruppia spiralis), streckt sich der Stiel des weiblichen Blütenstandes ähnlich wie der Blütenstiel der Vallisnerie schraubig zur Oberfläche, aber nur die aus den Antheren austretenden Pollenkörner gelangen infolge ihres geringen spezifischen Gewichtes zur Oberfläche, um dort herumschwimmend die weibliche Narbe zu erreichen.
Die Verbreitung der hakigen Früchte der Hornblattarten geschieht ohne Zweifel durch Wassertiere (Wasservögel, Wasserratten etc.), wie auch die leicht zerbrechlichen Zweige, die durch Fische und andere, auch über Land wandernde Tiere abgebrochen und an ihren hakigen Blättern verschleppt werden, leicht und schnell weiterwachsen, so dass in manchen Gegenden das Hornblatt eine der Wasserpest ähnliche Verbreitung erreicht hat.
Zwei weitere submerse Wasserpflanzen, der Wasserschlauch (Utricularia) und die ihm biologisch verwandte Aldrovandia, verdienen nach den Hornblattgewächsen ohne Zweifel zunächst unsere Beachtung.
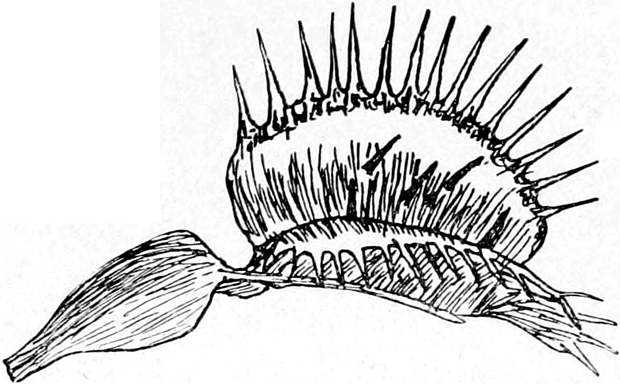
Fig. 7.
Blatt der Venusfliegenfalle (
Dionaea muscipula
).
Die Blasenpflanze (Aldrovandia vesiculosa), deren eigentliche Heimat die Gewässer des Südens von Südfrankreich und Italien bis Indien und Australien sind, findet sich zerstreut in Vorpommern, der Mark Brandenburg und Schlesien, ferner in den Etschsümpfen bei Bozen in Tirol und im Bodensee. Der submerse dünne Stengel wird kaum 30 cm lang und verästelt sich wenig; er ist dicht mit wirtelständigen Blättern besetzt, deren Stiel gegen das Ende breiter wird und in vier bis sechs steifen Vorsprüngen mit kurzen Borsten endet. Die dazwischen befindliche Spreite selbst erscheint, wenn sie geschlossen, blasenförmig. Abgesehen von den blasigen Blättern erinnert die Aldrovandie im Habitus an das Ceratophyllum; die starren Blattstacheln des letzteren sind wohl auch der Funktion nach den spitzen Seitenfortsätzen am Grunde der Aldrovandiablasen gleich. In einer anderen Hinsicht steht aber die letztere der prächtigen Venusfliegenfalle (Dionaea muscipula) sehr nahe, ja sie kann als eine kleine im Wasser wachsende Dionaea bezeichnet werden. Es ist bekannt, dass diese hübsch blühende Sumpfpflanze Carolinas (Fig. 7), welche in unseren Gewächshäusern nicht selten zu finden ist, auf breitem Blattstiel ein zweilappiges Blatt trägt, dessen Teile klappenartig zusammenschlagen, wenn sich ein Tier auf die Blattfläche setzt. Der Londoner Kaufmann Ellis, welcher die Dionaea benannte, hatte bereits beobachtet, dass auf jeder der beiden Blatthälften drei starre Haare befindlich sind, und gemeint, dass beim Zusammenschlagen des Blattes, dessen Randstacheln dann den Fingern der zum Gebet gefaltenen Hände ähnlich ineinandergreifen, Fliegen nicht nur gefangen, sondern durch die sechs messergleichen Spitzen durchbohrt würden, wie einst die Verbrecher von der „eisernen Jungfrau“ in der Folterkammer zu Nürnberg. Dies war ein Irrtum. Später fand man, dass die sechs Spitzen die Tentakeln des Blattes sind, deren Berührung ein ausserordentlich schnelles Schliessen des ganzen Blattes zur Folge hat, die aber selbst dabei den Klingen eines Taschenmessers ähnlich sich zusammenlegen. Das Blatt der Dionaea selbst kann man zwicken, stechen, schütteln, mit Wasser übergiessen, ohne dass es sich bewegt, stösst man aber einen der sechs Tentakeln mit einem Strohhalm leise an, so schliesst sich das Blatt im Nu[13]. Wie bei uns Fliegen gefangen werden, so werden in der Heimat an dem natürlichen Standort der Dionaea auch zahlreiche grosse und kleine Käfer, Spinnen, Skolopender gefangen und — verzehrt; denn die Wissenschaft hat nunmehr unumstösslich festgestellt, dass die Dionaea und ihre ganze Sippe der Sonnentaugewächse, nebst einer Reihe anderer Familien „Fleischfresser“ sind, Tiere fangen, durch Ausscheidung einer unserem Magensaft ähnlichen Flüssigkeit verdauen und die Verdauungsflüssigkeit als Nahrung aufsaugen.
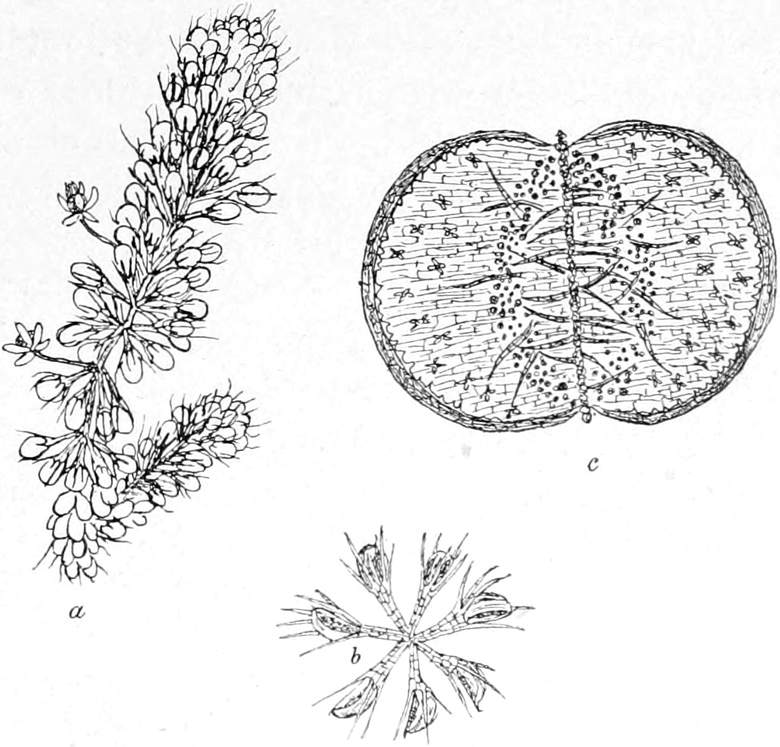
Fig. 8.
Blasenpflanze (
Aldrovandia vesiculosa
).
a
Ganze Pflanze (nach Schlechtendal-Schenk) —
b
Blattwirtel (vergr.) —
c
Offenes, flachgedrücktes Blatt (
b
und
c
nach Cohn-Darwin).
Bei den Landsonnentaugewächsen bewegen sich nur die Blattdrüsen, während sich bei der Dionaea das ausserordentlich reizbare Blatt selbst bewegt. Unsere Aldrovandia (Fig. 8), die gleichfalls zu den Sonnentaugewächsen zählt, verhält sich nun, wie Stein 1873 entdeckte und hernach Cohn und andere festgestellt haben[14], ganz wie die Dionaea. Das zweilappige Blatt, dessen Mittelrippe an der Spitze mit einer kurzen Borste endigt, öffnet sich bei warmem Wetter etwas weiter, bei uns gewöhnlich aber nur so viel als die beiden Klappen einer lebenden Muschel. Lange gegliederte Haare auf der Mittelrippe und dem konkaven Teil der Blattlappen sind sensitiv wie die sechs Dionaeahaare. Eine Reizung derselben bewirkt ein augenblickliches Zusammenklappen des Blattes. Larven und andere Wassertiere, besonders Krustentiere, werden nach den Untersuchungen von Cohn in grosser Menge gefangen und verzehrt. Neben den erwähnten in der Nähe der Mittelrippe und auf dieser selbst befindlichen längeren gegliederten Tentakeln ist nämlich das Blatt in dem der Mittelrippe zu gelegenen konkaven Teile (der eigentlichen Oberseite des Blattes) mit gestielten farblosen Drüsen, die denen des Dionaeablattes gleichen (aber einfacher als diese sind), dicht besetzt (vgl. die Figur). Die Ähnlichkeit mit den entsprechenden genauer untersuchten Verhältnissen bei der Fliegenfalle, wie auch Versuche mit Fleischaufguss und verschiedene Beobachtungen machen es mehr als wahrscheinlich, dass sie es sind, welche eine wahre verdauende Flüssigkeit absondern und später die verdaute Substanz aufsaugen. Der äussere und breitere Teil des Lappens am Aldrovandiablatte ist flach und sehr dünn und wird nur aus zwei Zellschichten gebildet (der konkave Teil). Seine Oberfläche (Innenfläche) trägt keine Drüsen, aber an ihrer Stelle kleine vierspaltige kreuzförmige Trichome. Zwei der schräg auseinanderlaufenden Arme derselben sind gegen die Peripherie gerichtet und zwei gegen die Mittelrippe. Ein schmaler Rand des flachen äusseren Teiles jedes Lappens ist einwärts gebogen, so dass, wenn die Lappen geschlossen sind, die äusseren Oberflächen der eingefalteten Teile in Berührung kommen. Der Rand trägt eine Reihe sehr zarter Spitzen, welche aber nicht wie die peripherischen Spitzen bei Dionaea Verlängerungen der Blattscheibe, sondern nur Hautgebilde sind. Sie, wie besonders die vierteiligen Trichome, dürften nach Darwin dazu dienen, faulende und zerfallene tierische Substanz aufzusaugen, welche von der Konkavität des Blattes abfliesst. Es würde, falls sich diese Ansicht bestätigt, hier der merkwürdige Fall vorliegen, dass verschiedene Teile eines und desselben Blattes sehr verschiedenen Zwecken dienen: der eine zu wahrer Verdauung, ein anderer zur Aufsaugung der Fäulnisprodukte der nicht verdauten tierischen Kadaver. Die Aussenseite des Aldrovandiablattes ist mit sehr kleinen zweiarmigen Papillen besetzt, die den achtstrahligen über Spreite und Blattstiel verbreiteten Papillen von Dionaea und den Papillen auf dem Blatt des gemeinen Sonnentaues analog sind. Für sie hat Darwin bei Drosera nachgewiesen, dass sie nicht abzusondern, wohl aber zu absorbieren vermögen. Sie könnten bei unserer Blasenpflanze die aus den Blasen ausgeflossenen Zersetzungsprodukte, welche nicht verdaut wurden, noch aufnehmen. Haben organische Körper den Reiz verursacht, so schliesst sich die der klaffenden Austerschale vergleichbare Tierfalle der Aldrovandia nur auf kürzere Zeit, 1–1½ Tage bei den Beobachtungen von Stein, während sie bei organischen Körpern geschlossen bleiben bis dieselben verdaut sind.
Eine besondere Beachtung bei der Venusfliegenfalle, wie bei der Blasenpflanze, verdient noch die fast momentane Schliessbewegung der Blattklappen, die auch in der Tentakelbewegung einiger exotischen Sonnentauarten beobachtet worden ist. Von zwei australischen Sonnentauarten (Drosera pallida und Drosera sulfurea) wie von einer indischen (D. lunata) und mehreren afrikanischen Spezies (besonders von D. trinervis) wird berichtet, dass sie ihre Blätter mit grosser Rapidität über Insekten schliessen.
Bei unserer einheimischen Drosera anglica Huds. hat v. Klinggraeff[15] sogar beobachtet, dass sich mehrere Blätter an dem Fang grösserer Tiere zugleich beteiligen, eine Beobachtung, die ich nach den Befunden an getrockneten Exemplaren einer australischen Spezies (dieselbe wurde mir als D. binata übersandt, weicht aber von der von Darwin behandelten Spezies durch nur einfach gegabelte Blätter ab) auch für diese glaube behaupten zu können. H. von Klinggraeff schildert einen derartigen Fang eines Schmetterlings in folgender Weise: ... „Nach kurzer Zeit bogen sich mehrere Tentakeln zusammen und klemmten den das Blatt berührenden Aussenrand des Unterflügels ein, hielten ihn so fest, dass bei dem heftigen Flattern derselbe einriss, der Schmetterling sich aber nicht befreien konnte. Bei dem Flattern wurde ein anderes Blatt mit dem Oberflügel berührt und, jedenfalls dadurch gereizt, bog sich dasselbe langsam gegen den Schmetterling hin, bis es den Körper desselben erreichte und umschlang. Während dessen hatte auch das erste fangende Blatt sich um den Schmetterling geschlungen, so dass dessen Bewegungen zuletzt ganz aufhören mussten. Meistens sah ich Schmetterlinge, die nur von zwei Blättern umschlungen waren, an einigen Exemplaren jedoch nahmen drei, auch vier Blätter an der Umschlingung teil“. Die zahlreichsten Opfer waren immer Papilio Daplidice, wie man sich auch an den vielen am Boden liegenden auf der Unterseite grünlich marmorierten Flügeln überzeugen konnte, dann P. Rapae; auch von einem muskelkräftigen Perlmutterfalter, Argynnis Latonia, wurde ein Exemplar gefangen.
Diese Bewegungen der ganzen Blätter wie auch der Tentakeln nach der gereizten Stelle hin bei den Sonnentauarten sowohl, wie die rapiden Bewegungen der Fliegenfalle und Aldrovandia, geschehen durch eine eigentümliche Fortleitung des Reizes — die nach der hübschen Entdeckung Darwins unter dem Mikroskop durch die Zusammenballung („Aggregation“) des roten Saftes von Zelle zu Zelle direkt beobachtet werden kann. Der Aggregation gehen indes, wie Burdon-Sanderson, durch Darwin veranlasst (1874), aufgefunden hat, elektrische Ströme voraus. Das ungereizte Blatt ist oben positiv, unten negativ elektrisch, bei der Reizung wird jedoch ein umgekehrter Strom erzeugt. Bezüglich der sonst sehr komplizierten elektrischen Erscheinungen, welche den Reiz des Dionaeablattes fortleiten und auch bei den Sonnentauarten etc. eine wichtige Rolle spielen, sei hier auf die bis in die neueste Zeit fortgesetzten Veröffentlichungen der Resultate von Burdon-Sanderson[16] selbst verwiesen.
Die Bestäubung der Aldrovandia geschieht offenbar über Wasser durch Insekten, doch ist Näheres über die Bestäubungsvermittler der unscheinbaren, durch über das Wasser emporragenden Stiel getragenen Blüten nicht bekannt geworden, zumal die Pflanze in Europa selten zu blühen scheint. Die Früchte werden unter Wasser gereift. Den Bau des Samens und die Keimung hat S. Korschinsky[17] neuerdings genauer beschrieben. Der Keimling, welcher beim Auskeimen den besondern Deckel der Samenhülle hervorstösst, hat noch ein rudimentäres Würzelchen und rudimentäre Erstlingsblätter. Es deutet dies darauf hin, dass die später wurzellose Pflanze, welche in der Keimung noch grosse Ähnlichkeit mit den Landformen der Sonnentaugewächse hat, verhältnismässig spät ihr Wasserleben angefangen hat, während bei der folgenden Gattung, dem Wasserschlauch, der Keimling durchaus ungegliedert, ohne Wurzelanlage ist.
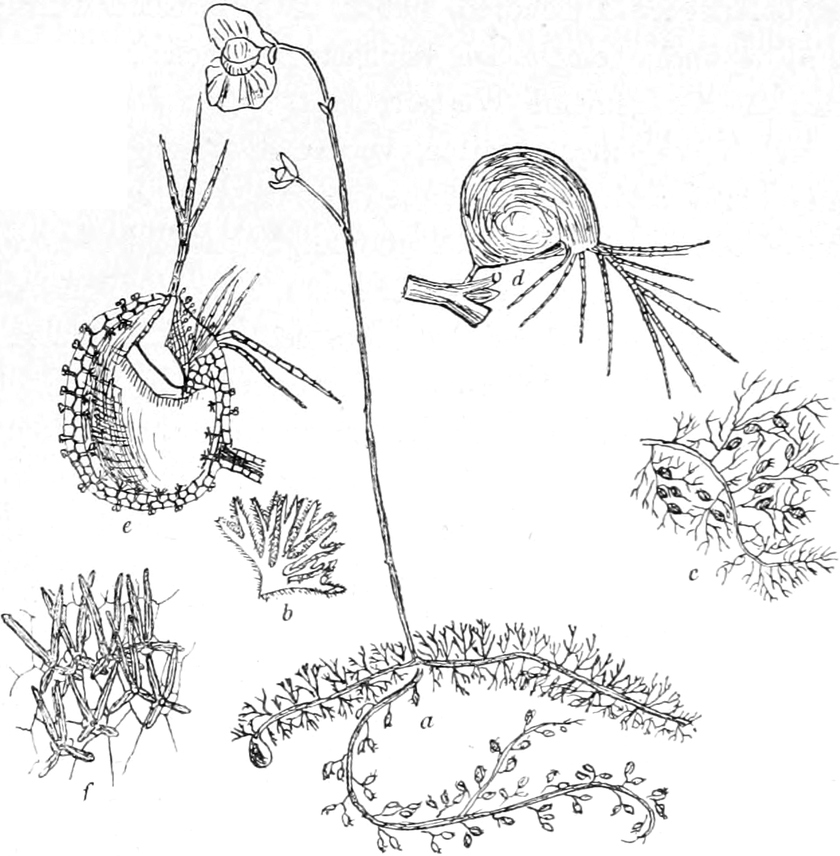
Fig. 9.
Wasserschlauch (
Utricularia
).
a
Utricularia intermedia
—
b
Blatt (vergr.) —
c
Blattzweig von
U. vulgaris
—
d
Blase davon (vergr.) —
e
Aufgeschnittene Blase (stärker vergr.) —
f
Kleines Stück der Innenseite der Blase von
U. neglecta
mit den vierteiligen Fortsätzen (s. Text) (
a
nach v. Schlechtendal,
d
und
f
nach Darwin).
Die weitverbreiteten, in unseren Gewässern häufigen Arten des Wasserschlauchs (Utricularia), welche (mit einer fleischfressenden Landpflanze, dem Fettkraut, Pinguicula) der Familie der Lentibulariaceen angehören, haben in biologischer Hinsicht viel mit der Aldrovandia gemein. Die häufigste der sechs bekannten deutschen Arten ist der gemeine Wasserschlauch (Utricularia vulgaris). Bei ihr tragen die langen, zarten, verzweigten Stengel, welche wurzellos vom untern Ende aus absterben, haarförmig zerschlitzte Blätter in wechselständiger, mehr oder minder zweizeiliger Anordnung. Das Blatt des gemeinen Wasserschlauchs (Fig. 9) teilt sich in zwei grössere mittlere und zwei kleinere seitliche Abschnitte, von denen jeder sich mehrfach fiederteilig oder gabelspaltig in feine cylindrische Zipfel auflöst. An letzteren treten die bekannten Blasen auf, welche von älteren Autoren als Schwimmblasen gedeutet wurden, jedoch lediglich dem Fang und der Verdauung kleiner Wassertiere dienen. Cohn[18] hat 1875 zuerst eine Darstellung der merkwürdigen Art und Weise gegeben, auf welche die Utricularia kleine Wassertiere zu fangen vermag, Darwin hat sodann diese Beobachtungen bestätigt und erweitert. Seitdem haben sich viele Forscher mit den Wasserschlaucharten in morphologischer und biologischer Hinsicht beschäftigt, zuletzt am erfolgreichsten M. Büsgen[19].
Die Blasen (Utricula) haben die Grösse kleiner Pfefferkörner, sind inwendig hohl mit einer Öffnung an der Seite, die durch eine von oben herabhängende Klappe verschlossen ist; vor der Öffnung befinden sich schleimige Härchen, von denen bereits Cohn vermutet, dass sie den Köder für die Wasserinsekten enthalten. Zwei borstliche Anhängsel an der Stirn geben dem ganzen Gebilde eine merkwürdige Ähnlichkeit mit einem Wasserfloh (Daphnia pulex), wie die Blasen der Aldrovandia grosse Ähnlichkeit mit Muschelkrebschen etc. haben. Cohn sagt: „Scharenweise gehen die kleinen Wasserkrebse der gefährlichen Lockung nach, heben dabei unversehens die einwärts leicht sich zurückschlagende Klappe; sobald sie aber ins Innere der Blase geraten, verschliesst die Klappe, die nach aussen sich nicht öffnen lässt, ihnen den Rückweg. Hierdurch lassen sich jedoch andere nicht abhalten, bald darauf dem gleichen Schicksal zu verfallen, und ich habe 1874, wo ich zuerst diese Beobachtung machte, in einzelnen Blasen eine ganze Menagerie von kleinen Wasserkrebsen, Mückenlarven und anderen Wassertierchen eingeschlossen gefunden, die vergeblich den Ausweg aus ihrem grünen Kerker suchten; sie alle waren nach wenigen Tagen dem Tode rettungslos verfallen; später findet man nur ihre leeren Schalen, die Weichteile sind völlig aufgezehrt“. Cohn fand ausser zahlreichen Krebschen (Daphnia, Cypris, Cyclops etc.) noch Naïs elinguis, Planaria u. a. Würmer, Blattläuse von Wasserpflanzen (Stratiotes), Rädertierchen, Infusorien und Wurzelfüsser gefangen. Büsgen teilt mit, dass bei seinen Untersuchungen eine mässig grosse Pflanze während eines anderthalbstündigen Aufenthaltes in Wasser, in welchem sich viele Wasserflöhe (Daphnia) befanden, in einer einzigen Blase zwölf Daphniden einfing. Eine andere Pflanze trug an jedem Blatte durchschnittlich sechs Blasen. Nur ganz vereinzelte derselben waren leer. Die meisten waren dicht erfüllt mit Exemplaren von Chydorus sphaericus. Im ganzen hatte die kleine, etwa 15 cm lange Pflanze mit ihren fünfzehn entwickelten Blättern etwa 270 ziemlich grosse Krebschen zu sich genommen. Dass der Wasserschlauch sogar Fischbrut fängt und in Fischteichen nicht unbedenklich zu dulden ist, berichtet H. N. Mosely[20]. Als ein Bekannter von ihm eine Pflanze in ein Glasgefäss brachte, in welchem sich zahlreiche junge Rochen befanden, die vor kurzem ausgebrütet waren, fand er, dass viele derselben in den Öffnungen der Blasenfallen gefangen wurden und daselbst verendeten. Mosely brachte nun selbst ein frisches Exemplar des Wasserschlauches in ein Gefäss mit frischen jungen Fischen und Laich und fand nach etwa sechs Stunden mehr als ein Dutzend Fische in Gefangenschaft. Die meisten waren am Kopf gefasst, der bis zur Hinterwand in die Blase hineingedrungen war, bei anderen war ein grosser Teil des Schwanzes verschluckt. Drei oder vier Beispiele wurden beobachtet, in denen ein Fisch mit seinem Kopfe von einer Blasenfalle und mit dem Schwanze von einer benachbarten verschluckt war, ein Fall, der mit dem von Klinggraeff[15] bei dem britischen Sonnentau (Drosera anglica) beschriebenen analog ist und die Frage nahelegt, ob die verzweigten Stirnborsten, die „Antennen“, nach deren Aufrichten (bei jungen Blasen sind sie über den Eingang nach unten gekrümmt) erst „die Falle gestellt ist“, nicht doch auch eine Reizbarkeit besitzen. Mosely fand beim Durchschneiden der fischgefüllten Blasen die Gewebe des Fisches in einer mehr oder weniger schleimigen Verflüssigung, wohl infolge seiner Zersetzung, die vierfiedrigen Fortsätze der Blasendrüsen reichten in die schleimige, halbflüssige, tierische Substanz hinein und schienen sehr viel körnige Substanz zu enthalten, jedenfalls das Ergebnis einer Resorption. Ch. Darwin kam bereits im Anfang seiner Utricularia-Studien (1874) zu dem Resultat, dass die Utricularia ein Aasfresser und nicht Fleischfresser ist; so schreibt er[21] am 7. Juli 1874 an J. Hooker: ... „Die Blasen fangen eine Menge Entomostraceen und Insektenlarven. Der Mechanismus zum Fangen ist ausgezeichnet. Es findet sich aber vieles, was wir nicht verstehen können. Nach dem, was ich heute gesehen habe, vermute ich stark, dass sie nekrophag ist, d. h. dass sie nicht verdauen kann, sondern zerfallende Substanz absorbiert“, und am 18. Sept. 1874 an Lady Dorothy Nevill: „... Denn Utricularia ist ein Aasfresser und nicht streng genommen fleischfressend wie Drosera“. Auch später kommt Darwin[14] zu dem Resultat, dass die Blasen eine Verdauungsflüssigkeit nicht ausscheiden, wohl aber Zersetzungsprodukte wie auch fauliges Wasser und Ammoniaksalze absorbieren und zwar mittels der vierarmigen Haare, die allein dem Blaseninnern eigen sind und den gleichgestalteten Haaren der Aldrovandia entsprechen dürften, wie die echten fleischverdauenden Trichome des Fettkrautes (Pinguicula) nur den farblosen Digestionsdrüsen der Konkavität der Aldrovandia entsprechen. „Wir können auch hiernach verstehen“, sagt Darwin bei Aldrovandia, „wie eine Pflanze durch den allmählichen Verlust einer der beiden Fähigkeiten (Fleischverdauung und Aasverdauung) nach und nach der einen Thätigkeit angepasst werden kann, mit Ausschluss der andern; und es wird später gezeigt werden, dass zwei Gattungen, nämlich Pinguicula und Utricularia, die zu derselben Familie gehören, diesen zwei verschiedenen Funktionen angepasst worden sind.“ Büsgen schildert auf Grund seiner neueren Untersuchungen den Fang bei dem Wasserschlauch folgendermassen: „Die Antennen und sonstigen von der Blase nach verschiedenen Seiten ausstrahlenden drüsenlosen langen Haare bilden eine Art von Leitstangen, auf welchen man sehr oft kleine Cypridinen nach der Blasenmündung hin wandern sieht. Dort angelangt, treffen sie die den Eingang umstehenden Köpfchenhaare, welche aus einer mehr oder minder langen Stielzelle, einer kurzen, besonders dickwandigen Halszelle und endlich einer etwas dickeren, länglichen oder runden Kopfzelle zusammengesetzt sind. In der letzteren bestehen die inneren Schichten der Membran aus einer glänzenden Masse, die sich mit Jod und Schwefelsäure blau färbt und mit Kalilauge stark aufquillt, wobei das Protoplasma von der Spitze des Haares her nach der Basis der Kopfzelle stark zusammengedrückt wird. Stellenweise findet man die äusserste Membranschicht durch die beschriebene Masse blasig aufgetrieben. Schon früh erscheint die ganze Kopfzelle von einem Schleim umgeben, der in reinem Wasser nur sehr schwer sichtbar ist, mit Methylviolett aber leicht nachgewiesen werden kann, da er sich mit diesem Reagens hellviolett färbt. Manchmal findet man neben dem Schleim am Grunde der Kopfzelle eine häutige, faltige Manschette. Aus dieser und den vorerwähnten Beobachtungen ist zu schliessen, dass der Schleim einer innern Membranschicht entstammt, die zu einer bestimmten Zeit aufquillt und die Cuticula sprengt; eigentümlicherweise besitzen aber auch die mit Schleim und Manschette versehenen Kopfzellen unter einer festen Membranschicht jene glänzende, quellungsfähige Substanz und anscheinend auch eine Cuticula. Es müssen diese Bildungen, wenn obiger Schluss über die Entstehung des Schleimes richtig ist, sehr rasch regeneriert werden, was übrigens auch sehr im Interesse der Pflanze liegt, da der letztere als Köder dient“. — Dass es der Schleim ist, welchem die Kruster nachgehen, schliesst Büsgen daraus, dass sich dieselben sehr bald an ins Wasser geworfenen Samen mit verschleimender Aussenschicht ansammeln. Bei dem Besuch der Knöpfchenhaare öffnet sich die Klappe meist ganz plötzlich mit weitem Spalt, um den vorwitzigen Gast verschwinden zu lassen und vom nächsten Augenblick wieder dieselbe Lage anzunehmen. Dieses Öffnen lässt sich jedoch ohne die Annahme von Reizerscheinungen aus den Elastizitätsverhältnissen der Klappe erklären. Die Tiere scheinen in ihrer Falle einen Erstickungstod zu erleiden; wenigstens sah Büsgen noch nach 24 Stunden, Cohn noch nach 6 Tagen die gefangenen Tiere im Innern umherschwimmen. Die in den Blasen sich findenden symbiotischen Fäulnis-Bakterien dürften sodann bei dem Wasserschlauch die Sekretion der Verdauungsflüssigkeit der echten carnivoren Pflanzen ersetzen.
Auch für die Blatthöhlungen der Blätter unserer Schuppenwurz (Lathraea squamaria) und der Alpenbartsie glaubt Scherffel (Mitt. d. bot. Inst. zu Graz, Heft II) gezeigt zu haben, dass die von Kerner und von Wettstein[22] beschriebenen rhizopodoiden, die Drüsenzellwand durchbrechenden Protoplasmafortsätze, die Jost für Wachsausscheidungen hielt, aus Bakterien bestehen, so dass diese Pflanzen gleichfalls Aaspflanzen wären. Büsgen hat bei den Kopfhaaren des Wasserschlauchs diese rhizopodoiden Fortsätze gleichfalls gefunden und ist geneigt, sie als aus Bakterien bestehend zu betrachten. Ob es sich aber hier wie bei der Schuppenwurz und in den Blattbechern der Weberkarde nicht doch um Elemente des Protoplasmas, nämlich die nach den Untersuchungen von Fayod[23] jedem Protoplasma eigenen, sich auch durch die Scheidewände der Zellen erstreckenden Elemente handelt, die er Spirifibrillen und Spirosparten nennt, bedarf jedenfalls noch der Untersuchung.
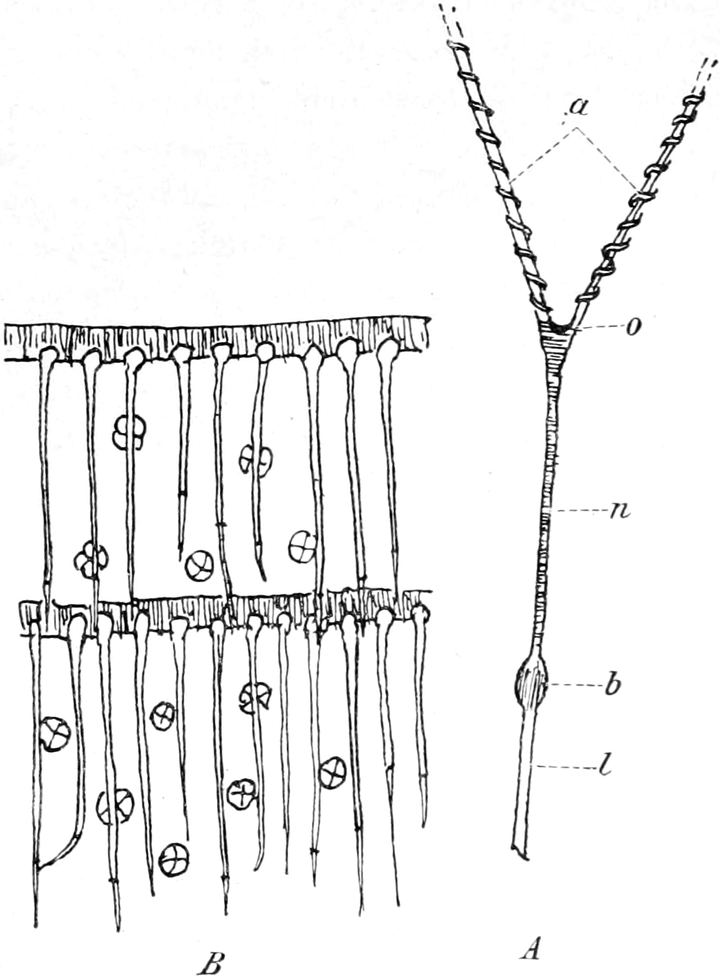
Fig. 10.
A
Schlauchtragendes Blatt von
Genlisea
, etwa dreimal vergr.
l
Oberer Teil der Blattspreite —
b
Schlauch —
n
Hals —
o
Mündung desselben —
a
Schraubig gewundene Arme (Enden abgebrochen).
B
Teil der Innenfläche des in den Schlauch führenden Halses, stark vergrössert, die Reussenhaare und Digestionsdrüsen zeigend. (Nach Darwin.)
Den Beweis, dass unsere Wasserschlaucharten thatsächlich von dem Krebsfange leben, hat Büsgen endgültig durch vergleichende Kulturversuche an gefütterten und nicht gefütterten Pflanzen erbracht, wie er für die echten Fleischfresser schon früher von Reess, Kellermann etc. erbracht wurde. Der Zuwachs der gefütterten Pflanzen war etwa der doppelte von dem der nicht gefütterten u. s. f. — Im tropischen Amerika und Asien leben auch Wasserschlaucharten auf dem Lande oder auf dem Moos der Bäume, aber auch hier von den Tieren ihres Wohnorts. Utricularia nelumbifolia kommt in Brasilien auf den hochgelegenen Felsen der Orgelberge vor, aber sie wird hier nur in dem Wasser gefunden, welches sich auf dem Grunde der Blätter einer grossen Tillandsia ansammelt, sie gelangt ausser durch Samen durch Ausläufer von einem Tillandsiabecken ins andere. Ihre Blasen fangen in gleicher Weise Wassertiere, wie die unserer Wasserschlaucharten. Darwin fand bei neun Utriculariaarten, die er untersuchte, allenthalben die Blasen mit Tieren und Tierresten erfüllt. Von verwandten Gattungen sei hier noch die merkwürdige Genlisea ornata (Fig. 10) aus Brasilien erwähnt, bei welcher das schlauchtragende Blatt die Beute nicht mittels einer elastischen Klappe, sondern durch eine einer Aalfalle ähnliche, wenngleich kompliziertere Vorrichtung fängt. Die schmale Blattscheibe trägt nämlich am Ende eine Blase, die sich in eine etwa fünfzehnmal so lange Röhre fortsetzt. Seitlich der Mündung der letztern entspringt auf jeder Seite ein aus einem spiralig gerollten, linealen Blattzipfel gebildeter Cylinder. Diese Seitenröhren wie die Hauptröhre sind mit langen, nach abwärts gerichteten Borsten (Reussen) und mit den vierzelligen Drüsen der Utricularia bekleidet. In Seitenhälsen und im Hauptrohre fanden sich Überreste von Würmern und Gliedertieren.
Unsere Wasserschlaucharten sind ausgeprägte Insektenblütler, die ihre Blütentrauben mit gelben, auffälligen Blüten auf langem Stiel über Wasser senden. Die Blumenkrone, deren Bau und Entwickelung zuerst Buchenau[24] genauer untersucht und deren Bestäubungseinrichtung Hildebrand[25] erläutert hat, birgt in einem Sporn den Honig zur Anlockung der Insekten. Ein Insekt muss, wenn es zur Gewinnung des Honigs seinen Rüssel unter die Oberlippe steckt, zuerst mit seiner Oberseite einen die Staubgefässe überragenden, mit der papillösen Seite nach unten umgebogenen Narbenlappen berühren, so dass dieser, wenn das Insekt schon vorher eine Blüte besucht hat, mit Pollen derselben behaftet wird, sodann die Staubgefässe, die es von neuem mit Pollen behaften. Der Pollenlappen ist, ähnlich der in der Blüte der an Flüssen und Bächen Deutschlands jetzt weit verbreiteten amerikanischen Gauklerblume (Mimulus luteus) und weniger anderen Blumen, reizbar, sodass er bei der Berührung sofort nach oben umklappt und so eine Übertragung des Blütenstaubes derselben Blüte auf die Narbe beim Rückzug des Insektes unmöglich macht.[26] Die ausgeprägte Honigblume wird vermutlich durch Hymenopteren und Schmetterlinge bestäubt, doch ist hier wie bei den meisten Insektenblumen unserer Gewässer über die Bestäubungsvermittler näheres nicht bekannt. — Die Früchte der Utricularien werden nicht, wie dies bei den meisten echten Wasserpflanzen der Fall ist, unter Wasser gereift, sondern, wie auch bei der Wasserfeder (Hottonia) und Lobelie (Lobelia Dortmanni), über Wasser. Die vielsamigen Kapseln streuen ihren Samen ins Wasser aus, wo er an der Oberfläche weit verbreitet und von wo er durch Wassertiere auch von Gewässer zu Gewässer übertragen wird.
Eine Verbreitung der vegetativen Organe durch die Larven der Köcherfliegen (Phryganiden) hat Gilbert[27] beobachtet. Nach ihm werden die Winterknospen des mittlern Wasserschlauchs (Utricularia intermedia) von diesen Insekten zum Larvenköcher verwendet, wodurch sie an andere Stellen gelangen, an denen sie zu weiterer Entwickelung kommen können.
Gegen Tierfrass besitzen die Wasserschlaucharten spitze Stacheln und chemische Schutzmittel. Mit Alkohol oder heissem Wasser ausgelaugte Pflanzenstücke wurden von kleinen Krustern bei einem Versuch Büsgens bald gefressen, während frische Pflanzenteile gänzlich verschont blieben. Der schützende Stoff schien Gerbstoff in einer schwachen Lösung zu sein, da bei Behandlung mit doppeltchromsaurem Kali eine nicht auswaschbare Färbung des Zellinhaltes auftrat. Nur die Stachelhaare färbten sich intensiv braun.
Wie die Wasserschlaucharten hinsichtlich der Blüteneinrichtung eine grosse Übereinstimmung mit ihren Verwandten auf dem Lande (dem gleichfalls tierfangenden, aber fleischverdauenden, nicht aasfressenden Fettkraut, Pinguicula) haben, so stimmt auch eine weitere submerse Wasserpflanze, die Wasser- oder Sumpffeder (Hottonia palustris), welche aber zur Familie der Primulaceen gehört (Fig. 11 S. 92) mit unseren Schlüsselblumenarten in Bezug auf die Fortpflanzungsorgane völlig überein, während sie im übrigen ganz die abweichenden Vegetationsorgane der bisher betrachteten Wasserpflanzen hat. Es giebt kaum einen grelleren Gegensatz zwischen Land- und Wasserpflanze als es gerade der zwischen der Schlüsselblume (und anderen Primulaceen) und der Wasserfeder ist — dort grosse, einfache, ganze Blätter, die dicht dem Wurzelstock entspringen, hier die feingeteilten Wasserblätter des Hornblattes, der Tausendblätter (Myriophyllum) etc., an wurzellosem, nur anfänglich im Schlamm steckenden Stengel.
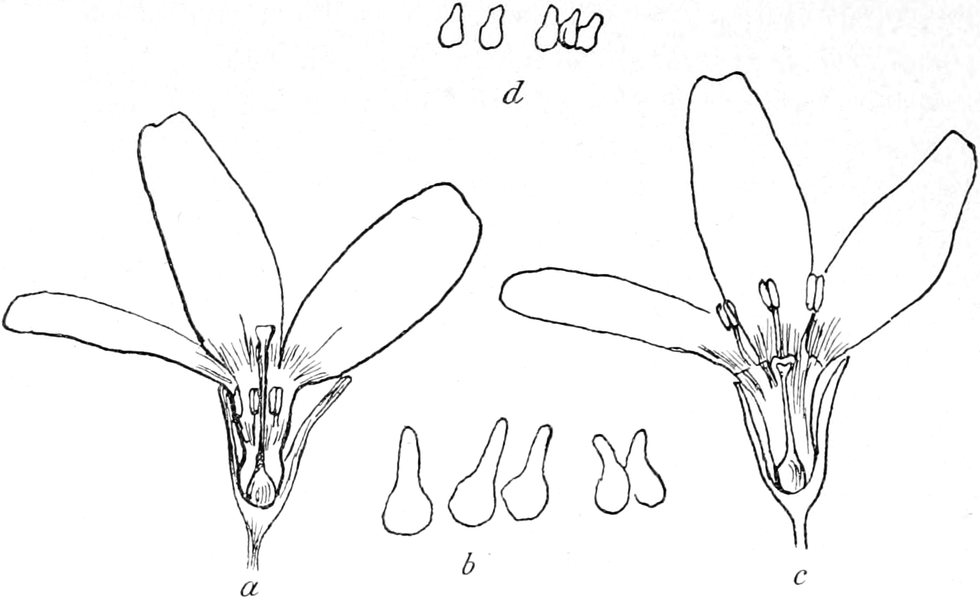
Fig. 11.
Heterostylie der Wasserfeder (
Hottonia palustris
).
a
Langgrifflige Blüte —
b
Narbenpapillen derselben —
c
Kurzgrifflige Blüte —
d
Narbenpapillen bei gleicher Vergrösserung wie in
b
. (Nach H. Müller.)
Zur Blühzeit steigt die Pflanze zur Oberfläche auf und streckt ihren terminalen Blütenstand über das Wasser empor. Die Sumpffeder ist, wie unsere Schlüsselblumen, ausgeprägt heterostyl-dimorph, d. h. es kommen zweierlei, wie männliche und weibliche Stöcke zusammengehörige Sorten von Stöcken vor, deren eine lauter langgrifflige Blüten mit tiefstehenden Staubgefässen trägt, während in den Blüten der andern die Griffel kurz, tief in der Blütenröhre versteckt sind, die Staubgefässe aber weit aus derselben hervorragen. Die Verschiedenheit zwischen den beiden Formen hat bereits die Aufmerksamkeit des Vaters der heutigen Blütenbiologie, Christian Konrad Sprengel, im Jahre 1793 erregt, welcher sagt, dass er die Existenz der zwei Formen nicht für zufällig halte, obschon er ihren Zweck nicht erklären könne. Bekanntlich hat Darwin[28] die Bedeutung dieser Zwiegestaltigkeit bei Primeln erkannt und durch Versuche festgestellt, dass erfolgreich allein die Bestäubung der langen Griffel durch die Pollen der grossen Staubgefässe der andern Form und die der kurzgriffligen Narben der letztern durch die Staubkörner aus den Staubgefässen der erstern wirkt, dass mit anderen Worten die Bestäubung zwischen den Organen gleicher Höhe einzutreten hat, wenn sie vollen Erfolg haben soll. Andere als diese „legitimen“ Bestäubungsweisen (also „illegitime“) haben bei vielen heterostylen Pflanzen überhaupt keinen, bei anderen Arten nur einen schwachen Erfolg. Nach der Entdeckung der heterostylen Pflanzen, zu denen zahlreiche Arten, von Wasserpflanzen noch Arten der Gattungen Villarsia, Menyanthes — unser dreiblättriger Fieberklee — und Polygonum, gehören, hat man noch die verwandten Gruppen der tristylen oder lang-, kurz- und mittelgriffligen Pflanzen und die rechts- und linksgriffligen entdeckt. Zu den ersteren gehört der an den Ufern unserer Gewässer wachsende Färbeweiderich (Lythrum Salicaria) nebst vielen ausländischen Sauerkleearten etc. Die Staubgefässe bilden in derselben Blüte zwei Höhensätze, in Bezug auf welche bei den dreierlei Stöcken der Griffel lang, kurz oder mittellang ist. Bei den rechts- und linksgriffligen Pflanzen (Verwandte unserer Kartoffel, wie Solanum rostratum, gehören dazu) sind zweierlei Stöcke da, in deren Blüten der Griffel entweder links oder rechts von dem Staubgefässbüschel steht und nach entgegengesetzter Seite gebogen aus der Blüte hervorsieht. Auch hier gilt das Gesetz der legitimen Bestäubung, d. h. des erfolgreichen Zusammenwirkens der Organe gleicher Lage. Dieses Zusammenwirken wird ja unter gewöhnlichen Umständen das natürliche sein, wenn gewisse Insekten alle Blüten in gleicher Weise besuchen, indem sie dann den Blütenstaub an einer Stelle absetzen, an welcher sie ihn in den anderen Blüten an ihrem Körper aufgenommen haben. Ein honigsuchendes Insekt wird also bei unserer Wasserfeder in der That am Vorderkörper den Blütenstaub der tiefgelegenen Staubbeutel, am Hinterleib den der langen Staubgefässe mit sich führen; mit letzterem kann es aber nur die Narbe der langen Griffel, mit ersterem die der kurzen Griffel bei seiner gewöhnlichen Art des Besuchs erlangen. Anders ist es mit pollensuchenden Insekten. Sie haben keinen Grund, die kurzen Griffel zu besuchen, während beim Besuch der kurzen Staubgefässe der staubbeladene Kopf gelegentlich die Narbe der langen Griffel berühren wird. Stellen wir uns nun vor, dass bei der Ausbildung einer Blüteneinrichtung nur oder vorwiegend honigsuchende Insekten mitgewirkt haben, so würden Formen der Heterostylie zu stande gekommen sein, wie sie sich thatsächlich häufig finden, bei denen illegitime (künstliche) Bestäubung fast gänzlich wirkungslos ist, während da, wo pollensuchende Insekten neben den honigsuchenden regelmässige Gäste sind, eine Heterostylie entstanden sein wird, bei welcher die legitime Bestäubung zwar die erspriesslichste ist, von den illegitimen Bestäubungen aber die der langen Griffel immerhin jener nahekommt. So ist es nach den künstlichen Befruchtungsversuchen von John Scott und Herm. Müller[26] bei der Sumpffeder, bei welcher nach Herm. Müller die Bestäubung durch pollenfressende Fliegen in ausgedehntem Masse ausser durch saugende Hautflügler (Pompilus viaticus) und Fliegen (Empis, Eristalis, Rhingia) bewirkt wird. Bei den Versuchen Müllers ergaben die zwei legitimen Verbindungen mit den zwei illegitimen zusammen verglichen Samenkörner im Verhältnis von 100 zu 61. Es war die mittlere Zahl der Samenkörner auf die Kapsel bei
1. legitimer Bestäubung der langgriffligen Form 91.4,
2. illegitimer Bestäubung der langgriffligen Form von einer verschiedenen Pflanze 77.5,
3. legitimer Bestäubung der kurzgriffligen Form 66.2,
4. illegitimer Bestäubung der kurzgriffligen Form mit Pollen dieser Form von einer verschiedenen Form 18.7.
Sehr deutlich sprechen die Resultate für die schädliche Wirkung der Inzucht bei Kreuzung der Blüten ein und desselben Stockes und bei Selbstbefruchtung. Die mittlere Samenzahl war hierbei nur 15.7 bei den langgriffligen und 6.5 (wie bei Scott) bei den kurzgriffligen Blüten anstatt 77.5 und 18.7 (bei illegitimer Kreuzung). Die ungleiche Grösse der Narbenpapillen bei den grossen und kleinen Griffeln stimmt bei der Sumpffeder ebenso wie bei anderen Heterostylen überein mit der ungleichen Grösse der Pollenkörner in den oberen und unteren Antheren (die letzteren kleiner), für welche Verschiedenheit die bisherigen Erklärungsversuche nach neueren Versuchen nicht auszureichen scheinen.
Den frei im Wasser flottierenden Arten submerser Gewächse, welche wurzellos sind, schliessen sich solche in grösserer Zahl an, die unter gewöhnlichen Verhältnissen zwar ein Wasserleben führen, aber am Boden festgewachsen sind. Bei ihnen ist die Wurzel in den meisten Fällen nur Haftorgan. Sie haben zumeist die Fähigkeit, bei Wassermangel auch in der Luft längere oder kürzere Zeit zu vegetieren, oder gar eine besondere Luftform zu bilden. Eine Umbildung der Blattorgane, welche der neuen Lebensweise angepasst (Verbreiterung und Verkürzung der Blattflächen, Auftreten von Spaltöffnungen etc.), tritt oft sehr bald, zuweilen sogar an einzelnen Blattteilen, die künstlich in dem neuen Medium gehalten werden, ein. Solche Landformen sind von Schenk z. B. für das Tausendblatt (Myriophyllum) beschrieben, deren Arten sonst mit ihren feingeteilten Blättern ein ausgeprägtes Wasserleben führen. — Die Myriophyllumarten besitzen ähnlich wie die Wasserpest, die Hornblattarten, die Wasserschlaucharten eine sehr üppige vegetative Vermehrung, abgebrochene Zweige, die durch Strömung oder Tiere verschleppt sind, entwickeln sehr bald wieder eine weitverbreitete Vegetation am Grunde des Gewässers. Solche üppig sich vermehrende Arten kommen an manchen Orten überhaupt selten zur Blüte. Das Ährentausendblatt (Myriophyllum spicatum) trägt in seinen in die Luft emporgestreckten Blütenständen in den Achseln kleiner Brakteen zu oberst männliche, unten weibliche Blütenstände, welche sich viel früher als die ersteren entwickeln (die Pflanze ist proterogynisch). Der platte, leicht verstäubende Pollen, die grossen, an dünnen Staubfäden lebhaft im Winde flatternden Antheren, wie auch die stark höckerigen Narben kennzeichnen die Pflanze als windblütig (anemophil), während bei dem quirlblättrigen Tausendblatt dadurch, dass die Blüten in den Blattwinkeln sitzen, die Anpassung an den Pollentransport durch den Wind vermindert ist. Es kommen aber wie bei den anderen Myriophyllumarten (M. alternifolium habe ich nicht untersucht) auch unter Wasser normale (nicht wie Hermann Müller in seinem Referat meiner Arbeit[7] vermutete[29] kleistogame) Blüten zur Entwickelung, so dass hier vermutlich Übergänge von der Windbefruchtung zur Wasserbefruchtung vorliegen. Nach dem Blühen tauchen auch bei M. spicatum die Ähren unter Wasser, um hier ihre Früchte zu reifen.
Zu den submersen Gewächsen, die aber in einigen ihrer Arten Übergänge zu den Schwimmpflanzen bilden, indem sie bei diesen andersgestaltete, an der Oberfläche ausgebreitete oder schwimmende Blätter entfalten, gehören ferner die Wassersternarten und die Laichkräuter, deren submerse Blätter aber nicht haarförmig zerteilt, sondern einfach, schmallinealisch etc. sind. Die völlig submersen Wassersterne bilden auf dem Boden der Gewässer eine sehr üppige, dichte, hellgrüne Vegetation, die an die der kleinen Armleuchtergewächse (Nitella) erinnert, während die schwimmenden breitblätterigen Blattrosetten die Oberfläche den Wasserlinsen ähnlich überkleiden. Die einfache Blüte besteht aus einem starren Staubgefäss oder aus einem zweifächerigen Fruchtknoten mit kurzen Griffeln. Auch sie wird gewöhnlich für windblütig gehalten, doch dürften die an der Oberfläche schwimmenden Rasen mit ihren starren Staubfäden und spärlicher Pollenproduktion eher die später zu erörternden Eigentümlichkeiten der Wasserlinsen besitzen. Die zahlreichen untergetauchten Blüten haben Wasserbefruchtung. Die Gruppe Pseudocallitriche, zu welcher unser Herbstwasserstern (Callitriche autumnalis) gehört, besitzt, wie die früher besprochenen Wasserblütler, Pollenkörner ohne äussere Zellhaut (Exine), sind nach Jönsson ölhaltig und leichter als Wasser, steigen daher nach der Oberfläche zu, wobei sie die Befruchtung vollziehen können, es wechseln nicht selten mehrere weibliche und männliche Stengelglieder mit einander ab; bei der Gruppe der Eucallitrichen dagegen, die auch wohl als Varietäten ein und derselben Art, des Frühjahrswassersterns (Callitriche verna) betrachtet werden, sind die Pollenkörner noch von einer äussern etwas höckerigen derben Haut umkleidet und an den Antheren ist die den Luftblüten eigentümliche Faserschicht vorhanden, welche bei dem Aufspringen der Staubbeutel eine wichtige Rolle spielt.
Zieht man die frischgrün beblätterten Zweige der Wassersterne oder anderer submerser Wasserpflanzen (Hornblatt, Tausendblatt etc.) aus dem Wasser, so findet man zwischen dem feinen Blattgewirr ein buntes Tierleben von Wasserasseln, Flohkrebsen, Milben, Käfern, Larven, Schnecken etc., das wohl hauptsächlich durch die reiche Entwickelung des Sauerstoffs bei der Assimilation herbeigezogen wird. Es ist kaum anders zu erwarten, als dass dieses reiche Tierleben, mit welchem diese Wasserpflanzen in steter Berührung sind, mehr als alle Landpflanzen, dem pflanzlichen Organismus zu mancherlei Anpassungen Veranlassung gegeben hat. Schutzvorkehrungen gegen Tierfrass sind thatsächlich mehrfach bekannt geworden, wie später noch hervorgehoben werden wird. Ob aber die Pflanze Glieder dieser Tierwelt sich zu Nutzen gemacht hat und mit ihnen im Bunde gegenseitiger Förderung lebt ist noch kaum untersucht worden und verdient seitens der Süsswasserforschung besondere Beachtung. Hier sei nur hervorgehoben, dass diesen Tieren sicherlich die Reinhaltung der assimilierenden Blattflächen zuzuschreiben ist und dass es mir immer geschienen hat, als ob an Standorten, wo ein besonders reiches Tierleben sich bemerkbar machte, die submersen Pflanzenorgane frischer grün und reiner aussahen, als an Orten wo diese fehlte. An den letzteren sind die Blätter und Blattzipfel oft völlig eingehüllt und unkenntlich gemacht von zahlreichen Algen (Kieselalgen, wie Exilaria, Gomphonema etc.), Wasserpilzen (Chytridiaceen), Infusorien (Vorticellen etc.), welche ja bekanntlich manchem der erwähnten Tiere zur Nahrung dienen.
Das Hauptkontingent liefern zur Wasserflora die Laichkräuter (Potamogeton), von denen etwa 50 Arten überhaupt und etwas weniger als die Hälfte aus den süssen Gewässern Deutschlands, Österreichs und der Schweiz[30] bekannt sind. Sie weichen durch ihre einfachen Blätter wie durch mannigfache Variationen von den völlig untergetauchten Formen bis zu den ausgeprägtesten Schwimmpflanzen, wie auch schliesslich dadurch ab, dass sie ein am Boden kriechendes sehr ausgebreitetes Rhizom haben. Im fliessenden Wasser treiben sie, ähnlich wie andere festwurzelnde Flussgewächse (Flusshahnenfuss etc.), lange Laubtriebe, welche durch besondere mechanische Elemente in ihrem anatomischen Aufbau der hohen Inanspruchnahme durch die Wasserströmung völlig gewachsen sind. In stehenden Gewässern sind die Stengelglieder oft sehr verkürzt. Nach der Meinung von Schenk stammen die Laichkräuter von Landpflanzen ab, die sich erst der amphibischen, gegenwärtig nicht mehr erkennbaren, Lebensweise und sodann der Lebensweise der Schwimmpflanzen, zuletzt aber der submersen Lebensweise angepasst haben. Es würde dann unser gemeines schwimmendes Laichkraut (Potamogeton), welches nur ausgeprägte Schwimmblätter besitzt, der Urtypus unserer jetzt lebenden Laichkrautarten sein. Hierfür spricht auch dessen Verbreitung. Nach A. de Candolle[31] giebt es nur 19 Phanerogamen, die sich über mehr als die halbe Erdoberfläche verbreitet haben, zu denen z. B. das einjährige Straussgras (Poa annua), die Krötenbinse (Juncus bufonius), unsere Brennesseln (Urtica dioica und U. urens), Gänsefussarten (Chenopodium album und Ch. murale), eine Taubnessel (Lamium amplexicaule), der schwarze Nachtschatten (Solanum nigrum), die gemeine Sternmiere (Stellaria media), die Gänsedistel (Sonchus oleraceus), das Hirtentäschel (Capsella bursa pastoris) und das schwimmende Laichkraut von bei uns gemeinen Pflanzen gehören. Das letztere ist aber die einzige kosmopolitische Wasserpflanze, alle übrigen sind Landgewächse und zwar Ruderalpflanzen. Die übrigen Vertreter des Laichkrautstammes Heterophylli (Potamogeton oblongus, P. fluitans, P. spathulatus, P. rufescens, P. gramineus, P. nitens, P. Hornemanni) sind der submersen Lebensweise bereits mehr oder weniger angepasst, indem sie oft nur wenige oder gar keine Schwimmblätter mehr zeigen, während ihre untergetauchten Blätter zwar den anatomischen Bau, aber noch nicht die Gestalt echter Wasserblätter haben. Bei den Gruppen der Homophylli und Enantiophylli[30] fehlen bereits die Schwimmblätter gänzlich und es bahnt sich der Übergang von den breitblätterigen zu den sehr schmalblätterigen Arten an, der in den Gruppen Chloëphylli und Coleophylli echt submerser Laichkräuter (Potamogeton pusillus, trichoides etc.) sein Extrem erreicht. Eine gleiche Stufenleiter der Anpassung ergiebt sich auch bezüglich der Blüteneinrichtungen. Das schwimmende Laichkraut und seine nächsten Verwandten sind ausgeprägte Windblütler, die ihre Blüten in dicht gedrängter Ähre an langer dicker Spindel über das Wasser heben. Das kleine Laichkraut hat bereits nur noch kleine, meist vierblütige Ährchen und das Haar-Laichkraut in jeder Blüte nur noch einen Fruchtknoten (sonst vier). Dazwischen und von dem letztern weiter finden sich Übergangsformen bis zu solchen, welche den submersen Wasserpflanzen sehr nahe kommen, deren Blüten nur aus einem Staubgefäss, oder einem Fruchtknoten bestehen. P. pectinatus erhebt einen Blütenstand überhaupt nicht mehr über Wasser, sondern besitzt lange dünne schwimmende Blütchen, die zur Fortpflanzungszeit nur wenig über das Wasser emporragen. Ob bei unserer zweiten Gattung der Laichkräuter, der Zanichellie, bereits eine echte Wasserbestäubung eintritt nach Art der der Meerstrands-Ruppie, bedarf noch der nähern Untersuchung, ist aber nicht unwahrscheinlich, zumal auch nach Fritzsche dem Pollenkorn die äussere Hülle fehlt. Die Windblütigkeit der Laichkräuter, deren Blüten oft dicht an der Wasseroberfläche stehen, wird nach v. Kerner[32] unterstützt durch einen Ausschleuderungsmechanismus der Blüte, durch welchen der Blütenstaub in die Luft gelangt.
Schwimmgewächse.
Wie die untergetauchten Blätter, so sind auch die Schwimmblätter der Wasserpflanzen völlig ihren Lebensverhältnissen angepasst. Die schwimmenden Blätter sind nie zerteilt, stets einfach, ganzrandig rundlich oder elliptisch länglich u. dergl., auf der Oberseite lederartig, schwer benetzbar, im anatomischen Bau eine dreifache Anpassung verratend, eine mechanische zum Schutz gegen die an der Oberfläche am heftigsten wirkenden Bewegungen des Wassers und gegen die heftigere Wirkung der auffallenden Regentropfen, eine Anpassung an die schwimmende Lebensweise und an die intensivere Einwirkung des direkten Sonnenlichtes. Dementsprechend zeigt das Schwimmblatt an der Oberseite, unter einer chlorophyllfreien wasserhaltigen Epidermis, die assimilierenden grünen Zellen als Palissadenparenchym ausgebildet. Unter diesem sind grössere lufthaltige Intercellularräume, welche das Blatt schwimmend erhalten. Die Spaltöffnungen, welche zur Ermöglichung des Transpirationsstromes bei den Schwimmpflanzen — im Gegensatz zu den submersen Pflanzen — vorhanden sind, finden sich hier allein auf der Oberseite des Blattes, die mit der Luft in Berührung steht, während sie bei den Luftblättern zur Verhinderung einer zu starken Transpiration in der Epidermis der Unterseite zur Ausbildung gelangen. Die zur Assimilation nötige Kohlensäure wird hier hauptsächlich aus der Luft, wohl aber auch durch Diffusion von der dem Wasser aufliegenden Blattunterseite besorgt. Da, wo Blattstiele vorhanden sind, zeigen diese die besondere Eigentümlichkeit, dass sie ihr Längenwachstum genau nach der Tiefe des Wassers einrichten, so dass das Blatt immer zum Schwimmen kommt.
Die Wasserlinsengewächse, von denen nur eine Art (Lemna trisulca) bei uns submers vorkommt, gehören zu unseren einfachsten Schwimmpflanzen, die gleichzeitig durch ihre Kleinheit, wie durch ihr massenhaftes Auftreten — sie bedecken oft weithin die ganze Fläche der Gewässer — auffallen. In unseren Gewässern finden sich nur fünf Arten, von denen die kleinste, die wurzellose Wasserlinse (Wolffia arrhiza) nur die Grösse von 1 mm erreicht — nur die in Bengalen lebende Wolffia microscopica, zweifellos die kleinste Phanerogame, ist noch winziger — gar keine Wurzeln erzeugt und in einzelnen Sprossen (Stengelgliedern) vorkommt, während die übrigen Arten ein oder mehr Adventivwurzeln nach abwärts treiben, welche mehr als zur Nahrungsaufnahme zur Erhaltung der horizontalen Lage dienen dürften. Es sind dies ausser der untergetauchten Wasserlinse (Lemna trisulca), welche bereits erwähnt wurde, noch die buckelige (L. gibba) und grosse Wasserlinse (Spirodela polyrrhiza) mit mehreren Wurzeln, welche gesellig mit der auch häufig in ganz reinen Beständen wachsenden kleinen Teichlinse (L. minor), unserer häufigsten Art, vorkommen. Hegelmaier[33], auf dessen Monographie (die auch von Engler in seinen „Natürlichen Pflanzenfamilien“ hauptsächlich zu Grunde gelegt ist) wir hier besonders hinweisen müssen, weil es unmöglich ist, im Rahmen dieser Abhandlung die obwaltenden Verhältnisse auch nur einigermassen genau zu schildern, hat 19 Arten von Wasserlinsen unterschieden, welche über den ganzen Erdkreis verbreitet sind:
1) Die wurzellosen Wolffioideen, bei denen auf dem Rücken des Sprosses in kleinen Grübchen (zwei bei Wolffia Welwitschii, eine bei den übrigen Arten) die einfachen Blüten mit einem Staubgefäss und Stempel (resp. einer männlichen und einer weiblichen Blüte) entspringen und sich auch sonst durch die Sprossverhältnisse auszeichnen. Sie zerfallen in die beiden Untergattungen Wolffia und Wolffiella, mit je acht und vier Arten, von denen letztere durch ihre abnorme Gestalt mit länglich-pfeilförmigen Hauptsprossen ausgezeichnet sind.
2) Bei den bewurzelten Lemnoideen, unter denen ausser durch die Sprossverhältnisse noch durch das Vorhandensein von vielen Wurzeln Spirodela [mit zwei Arten: Sp. oligorhiza (im indisch-malayischen Gebiet) und unserer L. polyrrhiza] von Lemna abgegrenzt wird, kommen die Blütenstände (Blüten) mit je zwei Staubblüten(gefässen) und einem weiblichen Blütenstempel in seitlichen Taschen zur Entwickelung. Von Lemna sind ausser den einheimischen Arten noch zwei unserer kleinen Wasserlinse nahe stehende Arten bekannt. Die Wolffiaarten scheinen am meisten dem Wasserleben angepasst zu sein, da bei ihnen auch an der Oberseite wenige, bei Wolffiella sogar gar keine Spaltöffnungen vorhanden sind und die Blüten ganz auf dem Rücken stehen.
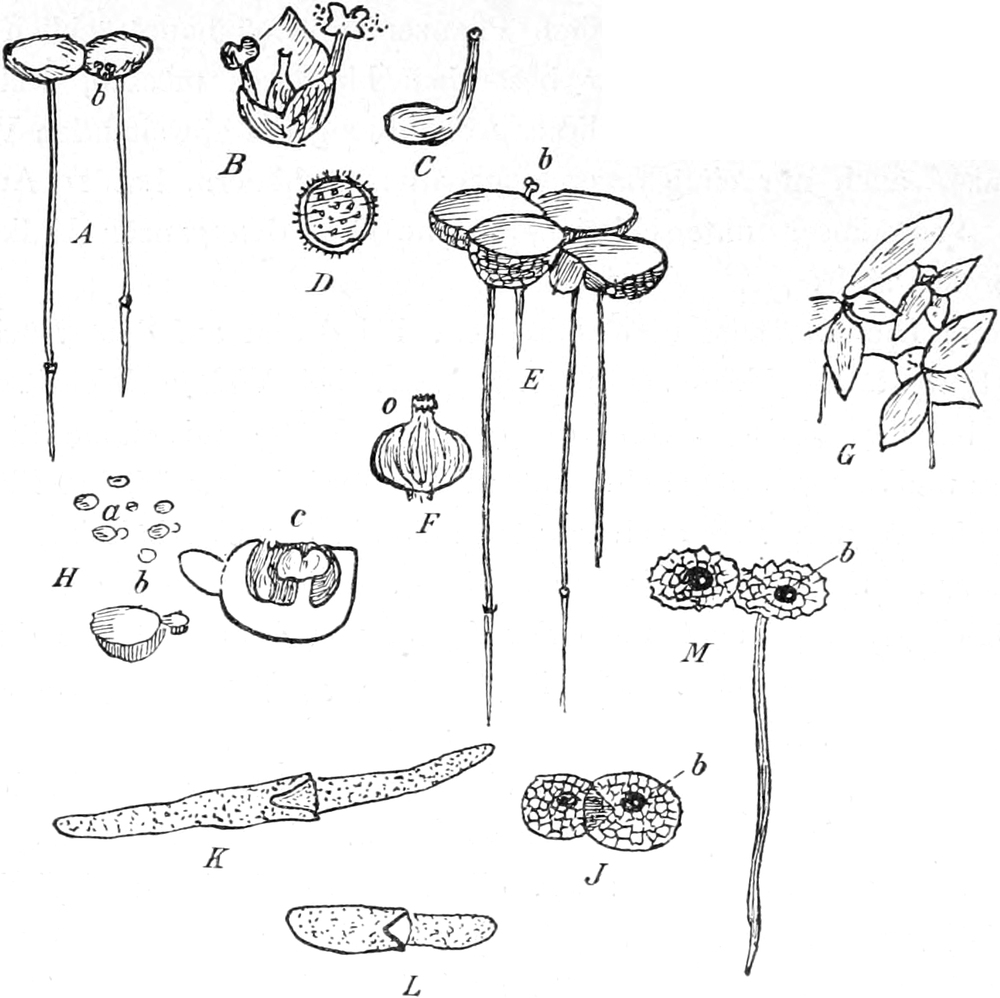
Fig. 12.
Wasserlinsen (Lemnaceen).
A
Lemna minor
(
b
Blüte) —
B
Blütenstand —
C
Stempel (vergrössert) —
D
Pollenkorn nach 610facher Vergrösserung —
E
Lemna gibba
—
F
Frucht derselben (das Operculum
o
wird bei der Keimung abgehoben) —
G
Lemna trisulca
—
H
Wolffia arrhiza
,
a
in natürlicher Grösse,
b
schwach vergrössert,
c
im Durchschnitt, um den dem Spross eingesenkten Blütenstand zu zeigen —
M
Wolffia repanda
(von Loanda) —
J
Wolffia hyalina
(aus Ägypten) —
K
Wolffiella gladiata
(aus Mexiko) —
L
Wolffiella oblonga
(aus Chile) (
H
c
,
J
,
K
,
L
,
M
nach Hegelmaier).
Bezüglich der Bestäubungsverhältnisse der Wasserlinsen, die zu den interessantesten Vorkommnissen der Blütenbiologie überhaupt gehören, liegen zumteil scheinbar widersprechende Beobachtungen vor, die aber recht wohl zugleich richtig sein können. Hat doch die Blütenbiologie mehrfach gezeigt, dass eine Pflanze z. B. in einer Gegend typisch proteranderisch, in einer andern, besonderen Verhältnissen entsprechend, proterogynisch ist. Ich werde zunächst die Verhältnisse schildern, wie ich sie bei unserer gemeinen Wasserlinse um Greiz typisch getroffen habe und zwar in einem ruhig gelegenen Teiche sowohl, wo sie vom Mai bis in den Juli hinein blühte, wie auch im Zimmer. Der monöcische Blütenstand besteht hier entweder aus einem höher stehenden kurzgriffeligen Stempel und zwei tiefer stehenden, wie jener nach oben gerichteten Staubgefässen mit nicht allzulangem Filament und gelben Antheren, oder Stempel und Staubgefässe kommen an verschiedenen Stellen des Thalloms hervor, von einer unregelmässig zerreissenden Hülle umschlossen. Die beiden Staubgefässe entwickeln sich nach einander, aber längere Zeit bevor der Stempel hervorbricht. Proterandrische Dichogamie und Stellung schliessen demnach auch Selbstbestäubung aus. Ebenso ist es undenkbar, dass der Wind bei der Kürze der starren Sexualorgane und der geringen Pollenmenge, die in den beiden Staubblüten erzeugt wird, unmittelbar über dem dicht durch Lemnarasen bedeckten Wasserspiegel bei der Übertragung des Pollens eine Rolle spielt. Von den bekannten zoidiophilen Pflanzen weicht die Wasserlinse ab durch den gänzlichen Mangel eines gefärbten Perigons oder anderer auffälligen Anlockungsmittel der Blüten; trotzdem glaube ich behaupten zu können, dass Lemna minor ausgeprägt zoidiophil ist — und zwar angepasst den auf der Oberfläche des Wassers sich umhertreibenden Wassertieren (Hydrometriden etc.). Die Pollenkörner sind stachelig mit zahlreichen Protuberanzen besetzt, wie bei den ausgeprägtesten Entomophilen (z. B. Malva, Cucurbita, Compositen). Die Pollenkörner haben einen Durchmesser von etwa 26 µ, ihre Stacheln eine Länge von etwa 1 µ, sodass sie einerseits leicht dem Körper der über die Staubgefässe streichenden Insekten, anderseits der etwas konkaven Narbenscheibe am Ende des Griffels anhaften, während sie durch den Wind wohl kaum von der dehiszierenden Anthere losgerissen werden könnten. Die auf den Lemnarasen oder zwischen ihnen umherkreisenden Kerfe müssen anderseits sowohl mit den Staubgefässen als den Narben in Berührung kommen, ohne dass sie besonders darauf aufmerksam gemacht werden. Die Pflanze hat es hier nicht nötig, besondere Lockmittel zu gebrauchen, ohne allen Aufwand und ohne eine andere Gegenleistung, als etwa die Gewährung eines festen Untergrundes, erreicht sie dasselbe, was die „Blumen“ durch Entwickelung von Farbenpracht, von Honigsaft und Wohlgeruch, die zuweilen nur unberufene Gäste anlocken, erzielen. Trelease[34] hatte später (ehe er indessen meine Arbeit[7] kannte) vermutet, dass die Lemnarasen zusammengedrängt würden und dabei sich wechselseitig befruchteten, an seinen Exemplaren waren die Blütenstände proterogynisch. Im Zimmer dehiszierte das erste Staubgefäss drei Tage nachdem die Narbe empfängnisfähig geworden und ebenso lange nachher das zweite Staubgefäss des Blütenstandes. Auch Hegelmaier hatte L. minor als proterogynisch bezeichnet und Spirodela polyrrhiza. George Engelmann[35] hat aber bei letzterer gleichfalls Proterandrie beobachtet. Federico Delpino bestätigt meine Beobachtungen und Deutung der Blütenentwickelung; vermutet aber, dass Schnecken bei der Befruchtung in Betracht kommen. Er sagt[36]: „A rinforzare la interpretazione di Ludwig noi potremmo addurre il singolare appianamento e allivellamento di caulomi, antere e stimmi; per il che per manifesta la designazione a pronubi striscianti e perambulanti. Così questa rara associazione di caratteri biologici, efficiente un apparecchio florale reptatorio, si riproduce in questa minuscole pianticelle. E non deve far meraviglia, poi chè le lemnacee senza dubio appartengono alla famiglia delle aroidee, presso la quale tanto frequentemente accorono apparecchi reptatorii. Ludwig non menziona fra i pronubi le chioccioline aquatiche, eppura noi congetturiamo que queste sia noi principali ausiliarii della dicogamia delle lemne“. — Henry Gillmann[37] berichtet von der grossen Wasserlinse (Sp. polyrrhiza), die er in einem Gefäss mit Wasser beobachtete, dass sich um 4 Uhr 15 Min. nachmittags die Stamina entfalteten, in der Nacht aber sich zurückbewegten (but closed at night). Am andern Morgen um 7 Uhr entfalteten sich wieder zunächst drei Blütenstände, bis 7 Uhr 45 Min. 18, und bis 8 Uhr 30 Min. hatten sich 30 Blüten geöffnet.
Die von Delpino vermutete Beteiligung der Schnecken bei der Pollenübertragung der Lemnaceen, wie auch die von andrer Seite vermutete bei einer Aroidee, der Schlangenwurz (Calla palustris), einer Sumpf- und Uferpflanze unserer Teiche, verdient noch besondere Beachtung der Botaniker und Zoologen, da über die Schneckenbefruchtung (Malacophilie) der Pflanzen viel hin und her gestritten worden ist, die bisherigen Beobachtungen aber zur Entscheidung der Frage nicht ausreichen. Auffällig und bemerkenswert bleibt es immerhin, dass diese beiden nach Delpino u. a. malacophilen Pflanzen in ihren Blattorganen besondere Schutzmittel gegen Schneckenfrass haben. Nach Stahl[4] bilden die Raphiden (Bündel von beidseitig sehr spitzen Nadeln des Kalkoxalates) eins der wirksamsten Schutzmittel gegen Schneckenfrass. Bei der gemeinen Schlangenwurz hat die Wirkung dieser Raphiden in den Blättern schon der alte Tabernaemontanus verspürt. Er sagt von ihr: „Am Anfang wo man sie kauet scheint sie ungeschmackt zu sein, aber bald darauf zwackt sie die Zungen, gleich als stäche man sie mit den allerkleinsten Dörnern“. Auch die Zellen der Wasserlinsen sind vollgepfropft von den spitzen Nadelbüscheln des oxalsauren Kalkes. Nur Wolffia macht auch in dieser Hinsicht eine Ausnahme, indem sie keine Raphiden besitzt. Dagegen scheint ein brauner Farbstoff in Oberhaut und Grundgewebe wie die Gerbsäure bei den Hornblattgewächsen bei ihr zu wirken; denn nach Stahls Versuchen verschmähen auch die Wasserschnecken die gerbstoffreichen Wasserpflanzen wie die Hornblattgewächse, ferner die, gleichzeitig durch Kalkinkrustation geschützten Laichkräuter und andere (Hippuris, Hydrocharis, Trapa etc.), sowie sie die durch ätherische Öle und Bitterstoffe (Bitterklee und Kalmus) oder Verkieselung der Zellwände geschützten Gräser etc. verschonen.
Die eigentümliche Symbiose verschiedener Wasserlinsen mit Nostocaceen (Hydrocytium), die der regelmässigen Symbiose von Anabaena in den Azollablättern und des Nostoc bei Gunnera und Cycadeen sowie bei gewissen Lebermoosen analog ist, ist gleichfalls als Schutzmittel für die Wasserlinsen gedeutet worden. Trotzdem haben auch die Wasserlinsen ihre Feinde aufzuweisen aus anderen Abteilungen der Lebewelt, Pilzen (Chytridiaceen) und Insekten. Eine Fliege Hydrellia albilabris Mg. höhlt die Wasserlinsen aus trotz ihrer Raphiden und Nostockolonien.
Bei den Wasserlinsen drängt sich uns am ersten die Frage auf nach dem Verbleiben der Schwimmpflanzen im Winter. Im Herbste noch sehen wir unsere Teiche von einem dichten scheinbar immergrünen Lemnateppich bedeckt, im Frühjahr ist aber keine Spur mehr davon zu sehen, die Oberfläche ist rein und klar. Wo ist die dichte grüne Decke hingekommen und wo kommt sie in der wärmeren Jahreszeit eben so schnell wieder her?
Während die Hornkrautarten, die Wasserpest und einige andere völlig submerse oder an der Oberfläche blühende Pflanzen im Wasser ganz überwintern, sinken andere zu Boden und bilden besondere Winterknospen (Hibernacula), die sich im Frühjahr loslösen (die übrige Pflanze stirbt ab) und an die Oberfläche schwimmen. Zu ihnen gehören die Wasserschlaucharten (Utricularia), die Wasserfeder (Hottonia), die Blasenpflanze (Aldrovandia), welche jedoch in ihrer südlichen Heimat überwintert. Noch andere überwintern durch ihre Rhizome, wie der Kalmus, die Wasserrosen, der Knöterich und das schwimmende Laichkraut. Winterknospen bilden noch der Froschbiss (Hydrocharis morsus ranae), die Krebsschere (Stratiotes aloides), die quirlblättrige Hydrille (Hydrilla verticillata), das kleine Laichkraut (Potamogeton pusillus) etc. Bei manchen Laichkrautarten, z. B. dem krausen Laichkraut (Potamogeton crispus), wandeln sich einzelne Seitenzweige zu besonderen Winterästen um, die sich infolge ihrer starren Beschaffenheit leicht von der Mutterachse loslösen, zu Boden sinken und daselbst überwintern. Dieses Laichkraut überwintert auch durch sein im Boden befindliches Rhizom, während wieder andere Laichkrautarten wie Potamogeton pectinatus L. ebenso wie das Pfeilkraut (Sagittaria sagittifolia), Froschlöffel (Alisma), Binsen (Scirpus palustris) u. a. Knollen bilden und im Herbst bis auf diese absterben. Die Überwinterung unserer Wasserlinsen geschieht nach der Beschreibung von Hoffmann und Hegelmaier bei der wurzellosen Wasserlinse (Wolffia arrhiza) bei uns — in wärmeren Gegenden sind keine besonderen Vorkehrungen nötig — durch Sprosse, die sich von den Sommersprossen wenig, hauptsächlich durch massenhafte Anhäufung von Reservestoffen, unterscheiden. Sie sinken im Herbst infolge dieser Aufspeicherung von Reservestoffen und der dadurch bedingten Zunahme des spezifischen Gewichtes zu Boden, um im Frühjahr wieder emporzusteigen. Auch die grosse Teichlinse (Spirodela) bildet besondere Wintersprosse, welche aber von den Sommersprossen durch geringere Grösse und fast nierenförmige Gestalt unterschieden sind, keine Lufthöhlen bilden, einen bis 2 mm langen Sprossstiel haben, durch den sie sich scharf abgrenzen, und nur zwei bis drei sehr kurze Wurzeln treiben. Die Spaltöffnungen bleiben bei den Wintersprossen, so lange sie auf dem Boden liegen, geschlossen. Im Frühjahr sprossen aus ihnen die Sommersprossen hervor, brauchen die Reservestoffe auf und steigen, indem sie Lufthöhlen bilden, an die Oberfläche. Die Ausbildung der Wintersprosse geschieht hier auch im Zimmer. Die eigentlichen Lemnaarten: die gemeine Wasserlinse und die untergetauchte Wasserlinse (L. trisulca) können einen hohen Kältegrad vertragen, bilden daher keine besonderen Wintersprosse. Die überwinternden Sprosse trennen sich nur bei Abschluss der Vegetationsperiode meist in jugendlichem Zustand von ihren verwesenden Muttersprossen los und harren so den Winter aus, Lemna minor verbleibt dabei am Wasserspiegel so lange er nicht zufriert.
Zu den prächtigsten Bewohnern unserer Seen, Teiche und Flüsse gehören die Seelilien oder Teichrosen, die Nymphaeaceen, eine Familie der Wassergewächse, welche in einer früheren geologischen Epoche auf dem Höhepunkt ihrer Entwickelung stand. Unsere wenigen jetzt lebenden europäischen Arten geben uns nur noch ein mattes Bild von der bunten, prächtigen Nymphaeaceenflora der Braunkohlenzeit. Der Graf von Saporta[38] sagt darüber: „Man muss nach Ägypten, Nubien, an die Gewässer von Senegambien und die überschwemmten Savannen von Guyana oder an die Lagunen von Indien und China gehen, um auch dann noch abgeschwächte Beispiele von dem zu finden, was in Europa in der oligocänen Zeit die Seelilien waren. Nicht allein Nelumbium Buchii Ett. vom Monte Promina und die Fragmente von Wurzelstöcken, welche Heer auf der Insel Wight beobachtete, bezeugen die Gegenwart von europäischen oligocänen Lotosblumen. Die eigentlichen Nymphaeen (Nymphaea parvula Sap., N. Charpentieri Mr.) beweisen nicht allein die Existenz von Pflanzen, doppelt so gross als unsere weisse Seelilie (N. alba); es gab auch in dem damaligen Europa Gattungen oder Sektionen von Gattungen, die heute ausgestorben sind, deren Charaktere wir nur in sehr unvollkommener Weise analysieren können, die sich aber hinlänglich von unseren heutigen Arten unterscheiden, um uns glauben zu lassen, dass ihre Blumen uns überraschen und unsere Bewunderung erregen würden, wenn es uns möglich wäre, sie zu betrachten. Der erste dieser tertiären Typen ist in den Gipsen von Aix vertreten (Nymphaea gypsorum Sap.), ein anderer in Saint-Zacharie (N. polyrrhiza Sap.), ein dritter, wie es scheint, in dem Aquitan von Manosque (N. calophylla Sap.). Ein Bruchstück seiner Früchte mit Lappen von Blumenblättern umgeben, beweist, dass er gefüllte Blumen hatte, die wenigstens doppelt so gross als diejenigen unserer heutigen Seelilien und nach einem ganz anderen Plan konstruiert waren.....“. In unseren Gewässern finden sich gegenwärtig nur noch die beiden Gattungen der gelben und weissen Seerose (Nuphar und Nymphaea), von denen die erstere fünf grosse gelbe Kelchblätter und zahlreiche winzige zu Nektarien umgestaltete Blumenblätter besitzt, während die letztere weisse nektarienlose Blumenblätter und grüne Kelchblätter hat. Von den gelben Teichrosen sind bei uns zwei Arten (Nuphar luteum und N. pumilum), von den weissen gleichfalls zwei Arten (Nymphaea candida und N. alba) mit verschiedenen Spielarten und Bastarden bekannt. Man kennt im Ganzen gegen 52–53 lebende Arten der Nymphaeaceen, die sehr verschiedene biologische Anpassungen zeigen. Die (zwei) Arten von Nelumbo (Unterfamilie Nelumbonoideae) strecken ihre schildförmigen Blätter hoch über das Wasser empor und reifen auch die Früchte über Wasser, ihre Blüten sind gelblich oder rosenfarben. In der Unterfamilie Cabomboideae haben dagegen die (vier) Arten von Cabomba schildförmige, unten ausgerandete Schwimmblätter und vielteilige untergetauchte Blätter von ähnlicher Gestalt und Zerteilung wie unser gemeiner Wasserhahnenfuss. Bei der Gattung Brasenia (eine Art, Brasenia purpurea) sind Schwimmblätter und Wasserblätter schildförmig elliptisch. Die dritte Unterfamilie der Nymphaeoideae umfasst 1) die Barclayeae mit der Gattung Barclaya (drei Arten) mit fünfblättrigem Kelche und oberständiger, walzig-röhrenförmiger Blumenkrone, der innen die zahlreichen abwärtsgebeugten Staubgefässe eingefügt sind. Die Blätter der B. longifolia sind länglich, gestielt, denen unseres Wasserknöterichs nicht unähnlich; 2) die Nuphareae mit der Gattung Nuphar (sieben Arten); 3) die Tetrasepaleae mit den Gattungen Nymphaea (etwa 32 Arten), Euryale (eine Art) und Victoria (zwei bis drei Arten). Die Gattung Victoria, deren bekannteste Art Victoria regia mit ihren riesigen Schwimmblättern von 1 m Durchmesser und Blüten von 2–4 dm Durchmesser in den ruhigeren Nebenflüssen des Amazonenstromes oft meilenweit die Wasserfläche bedeckt, und die Gattung Euryale haben bestachelte Stengel und Blätter. In der Gattung Nymphaea selbst sind die Arten der Untergattungen Lotos (z. B. die afrikanische Nymphaea Lotus, die sich bereits auf alten ägyptischen Denkmälern vielfach dargestellt findet und mit der N. thermalis der ungarischen Thermen identisch ist) und Hydrocallis (mit grüngelblichen Blüten) mit glattem Blütenstaub versehen und blühen nur des Nachts. Die Nymphaea Amazonum öffnet ihre Blüte nur etwa 20–30 Minuten in den ersten Morgenstunden. Die übrigen Arten der Untergattungen Xanthantha (mit gelber Blüte), Castalia (mit fünf Arten, worunter unsere einheimischen), Brachyceros und Anecephya sind Tagblüher, meist mit kurzstacheligen oder warzigen Pollenkörnern versehen. Die blaue Lotos der Ägypter Nymphaea coerulea hat blaue, die den Ostindiern heilige Nymphaea stellata und die australische N. gigantea haben blau rosig und weiss aussehende Blüten.
Die Blütenbiologie unserer einheimischen Seerosen ist bereits mehrfach studiert worden. Bei unserer weissen Teichrose (Nymphaea alba) öffnet sich die Blüte des Morgens gegen 7 Uhr und schliesst sich nachmittags gegen 4 Uhr, dabei birgt sie ihre zarten Blüten (wohl gegen die Kälte der Nachtluft) unter Wasser. Linné (Disquis. de sexu plantarum 1760) sagt:
Nymphaea alba quotidie mane ex aqua tollitur, floremque dilatat adeo ut meridiano tempore tres omnino pollices pedunculo aquam superemineat. Sub vesperam penitus clausa et contecta demergitur. Circa horam enim quartam post meridiem contrahit florem, agitque sub aqua omnem noctem, quod nescio an cuiquam per bis mille annos notatum sit, id est inde a Theophrasti aevo, qui hoc observavit in Nymphaea Loto.... Scripsit autem Theophrastus, hist. plant. IV, 10. de Loto eaquae sequuntur: „In Euphrate caput floresque mergi referunt, atque descendere usque in medias noctes: tantumque abire in altum, ut ne de missa quidem manu capere sit: diluculo dein redire et ad diem magis. Sole oriente jam extra undas emergere floremque patefacere, quo patefacto amplius insurgere, ut plane ab aqua absit alte“. — Idem prorsus mos est nostrae Nymphaeae albae.
Die Seerosen sind zoidiophil, der Bestäubung durch Tiere angepasst, da sie aber, wie wir oben hervorhoben, die Höhe ihrer Entwickelung bereits in einer früheren geologischen Epoche erreicht hatten, wird man heutzutage nicht mehr mit Sicherheit behaupten können, welcher Abteilung der Tiere sie ihre Bestäubungsverhältnisse angepasst haben. Für einige Arten scheinen die geeigneten Bestäuber ausgestorben zu sein, so dass dieselben jetzt auf Selbstbestäubung angewiesen sind. So soll nach Caspary[39] in der Unterabteilung Hydrocallis der Gattung Nymphaea die Bestäubung vor Aufbruch der Blüten stets mit eigenem Blütenstaub erfolgen, wobei 10000 bis 30000 Samen, die aufs beste keimen, gebildet werden. Auch Euryale ferox befruchtet sich stets selbst, oft bei ganz geschlossener, ja völlig unter Wasser bleibender Blüte. Gegenwärtig scheinen unsere Seerosen auf die Käfer und Fliegen angewiesen zu sein. Nach Delpinos Vermutung werden Nymphaea alba und Victoria regia von Cetonien (Rosenkäfern) und Glaphyriden befruchtet. Bei Nuphar sondert die Unterseite der reduzierten Blumenblätter Honig ab, während die Kelchblätter durch Ausdehnung ihrer Fläche und ihre gelbe Farbe die Rolle der Blumenblätter übernommen haben. Unsere Nuphar wie Nymphaea sind proterogynisch und ist z. B. bei Nymphaea die Narbe nur am ersten Tage des 3–7 Tage währenden Blühens empfängnisfähig, so dass Bestäubung ohne Insekten nicht erfolgt.[40]
Sprengel fand bei der gelben Teichrose Blumenkäfer in den Blüten und Hermann Müller sah dieselben ausser von Meligethes von Schilfkäfern (Donacia dentata) und Fliegen (Onesia floralis) besucht. Neuerdings hat der amerikanische Biologe Charles Robertson[41] den Bestäubungsverhältnissen der Seerosen ein besonderes Interesse zugewandt. Nach ihm ist Nelumbo und Nymphaea Pollenblume, während Nuphar Pollen und Nektar deren Besuchern darbietet. Jordan giebt jedoch bei Nymphaea alba vor den introrsen Staubgefässen (nach innen) gelegene flache Honigdrüsen an.[42] Robertson fand bei Nelumbo lutea als Hauptbestäuber Hautflügler, besonders Andreniden (Halictus) und Schwebfliegen, bei Nuphar advena sowohl im Staate Illinois (im August) wie in Florida (im Februar) Halictus pectoralis (Andrenide), Helophilus divisus (Schwebfliege), Donacia piscatrix (Schilfkäfer), Trelease fand in Madison gleichfalls Halictus pectoralis und Donacia piscatrix. Bei Nymphaea tuberosa fand Robertson acht Andreniden, zwei Syrphiden, eine Bombylide, besonders häufig auch hier Halictus pectoralis, letztere auch bei Nymphaea alba. Piccioli fand bei dieser gleichfalls Donacia, so dass als besonders regelmässige Bestäubungsvermittler der Seerosen Schilfkäfer (Donacia dentata in Deutschland, D. piscatrix in Nordamerika), Halictusarten (H. pectoralis in Nordamerika) und Fliegen bisher beobachtet worden sind.
Die Blüten der Seerosen scheinen nicht selten eine Todesfalle für Insekten zu sein, so fand Delpino tote Insekten bei Nymphaea alba und nahm an, dass sie durch die durch einen starken Geruch bemerklichen Ausdünstungen der Pflanze getötet worden seien. Planchon (Flore des serres et des jardins 1850) denkt an eine Anhäufung von Kohlensäure in dem Blütenkessel. Robertson fand zuweilen in den Nelumboblüten tote Hummeln (Bombus virginicus) und Fliegen, die durch die Petala eingeschlossen waren und in ihrem Gefängnis erstickt zu sein schienen. Dagegen fand er in dem Blütenbassin von Nymphaea tuberosa Halictus occidentalis ertränkt. Auch A. Bacon (Bull. Torr. Bot. Club V, 51) berichtet, dass er in den Blüten der Nymphaea odorata gefangene und getötete Insekten eingeschlossen gefunden habe.
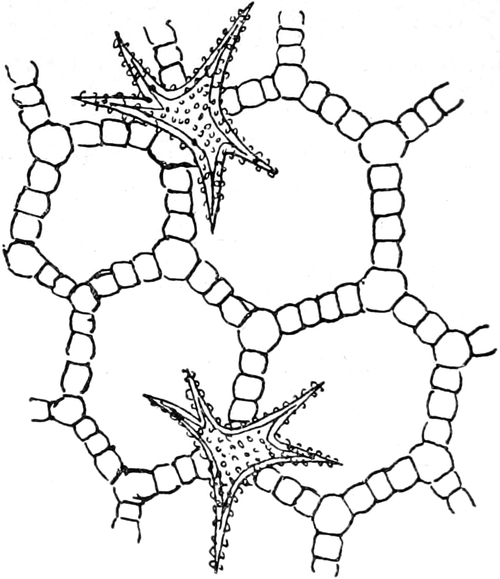
Fig. 13.
Luftgänge und Sternhaare aus dem Stengelquerschnitt einer Teichrose. (Nach Engler.)
Fig. 14.
a
Same von
Villarsia nymphaeoides
—
b
Frucht von
Bidens tripartitus
—
c
Frucht von
Trapa natans
—
d
Blüte von
Scirpus lacustris
—
e
von
Scirpus palustris
mit widerhakigen Perigon-Borsten —
f
Frucht von
Typha latifolia
.
a
–
e
der Verbreitung durch Tiere,
f
der Windverbreitung angepasst;
c
zugleich „Ankerklette“. (Nach Hildebrand und Huth.)
Die von Lufthöhlen durchzogenen Blatt- und Blütenstiele (Fig. 13) und Wurzelstöcke sind bei unseren Teichrosen (überhaupt bei Victoria, Euryale, Nymphaea, Nuphar, bei letzterer Gattung nur die Wurzelstöcke nicht) im Innern mit vielästigen Sternhaaren mit körniger Oberfläche versehen, welche in die Zwischenzellräume hineinragen. Man bemerkt dieselben schon mit blossem Auge deutlich, wenn man ein kurzes Stück aus dem Blattstiel ausschneidet und durch dasselbe hindurch sieht. Nach den Untersuchungen Stahls sind solche Feilenhaare ein Schutzmittel gegen Schneckenfrass und die Zerstörungen anderer omnivoren Tiere. Nun scheinen Schnecken in der That gerne das Innere grüner Stengel auszufressen. (In meinem Garten wurden die Stengel der Kaiserkrone mehrere Jahre hindurch durch Nacktschnecken abgefressen, die den Stengel dicht an der Erde durchfressen und dann aushöhlen, während die Versuche, an den Blättern zu fressen, wohl wegen des hohen Raphidengehaltes derselben, bald aufgegeben wurden.) Bei anderen Wasserpflanzen, welche einen solchen Schutz ihres Stengelmarkes nicht haben, werden die Stengel nicht selten ausgehöhlt und zu Grunde gerichtet. So leben von dem Mark des Wasserliesches (Butomus umbellatus) die Larve einer Fliege (Agromyza confinis), in dem des Igelkolbens etc. die Larve von Faltern (Orthothaelia sparganella, Nonagria Sparganii) und fressen die Stengel aus, wenn nicht Blesshühner, Rohrdommeln und Störche, welche Raupen und Puppen sehr geschickt herausholen, oder Schlupfwespen (Ichneumon divisorius) Einhalt thun. Abgesehen von einer Blattlaus (Aphis Nymphaeae, die sich auch an verschiedenen anderen Wasserpflanzen, dem Froschbiss, Froschlöffel, Wasserliesch etc. einfindet), einigen Käfern (Donacia crassipes, Donacia Menyanthidis, Galeruca Nymphaeae) und Falterraupen (Nymphula nymphaealis verpuppt sich unter einem der oberen Blattfläche angeleimten Blattstückchen, der Falter ist im Mai und Juni in der Nähe der Teichrosen häufig) haben unsere Teichrosen wohl wenig Feinde oder nutzlose Gäste (Bryozoën etc.) aus der Tierwelt aufzuweisen. Auch gegen Pilzschmarotzer scheinen sie gefeit zu sein. Ein durch dieses Vorkommen bemerkenswerter Rostpilz (Aecidium nymphaeoides)[II] ist sehr wenig verbreitet. Die Verbreitungsmittel der Wassergewächse sind nicht selten derartige, dass sowohl eine Weiterverbreitung innerhalb desselben Gewässers, als auch eine weitere Verbreitung von Gewässer zu Gewässer möglich ist. In ersterer Hinsicht ist es von Vorteil, wenn die Samen oder Früchte zu schwimmen vermögen (wobei sie durch Wasserströmung und Wind verbreitet werden), später aber ein grösseres spezifisches Gewicht als das Wasser erlangen und zu Boden sinken (wenn sie nicht wurzellosen Pflanzen zugehören). Bei der Verbreitung von Gewässer zu Gewässer kommen, wenn wir von Überschwemmungen absehen, hauptsächlich Wind und Tiere als Verbreitungsfaktoren in Betracht. Bei den Schwimmgewächsen spielen besonders die letzteren eine hervorragende Rolle und unter ihnen besonders die geflügelten Wassertiere, Vögel und Wasserkäfer. Bei unseren weissen Teichrosen sind die Samen mit einem Samenmantel versehen, so dass sie nach dem Platzen der Frucht an der Wasserfläche, durch die zwischen ihnen und dem Samenmantel enthaltene Luft gehalten, umherschwimmen können. Dieser Schwimmmantel umgiebt den Samen lose als weissliche Hülle. Zunächst sind nach dem Auseinanderfallen der Fruchtwände die Samen zu einem schleimigen Klumpen vereinigt, der sich aber schliesslich auflöst, so dass die Samen sich frei umherbewegen. Zuletzt vergeht auch der Samenmantel, die Luftblasen entweichen und der Same fällt vermöge seiner Schwere zu Boden[43]. Anders verhält sich die gelbe Teichrose. Bei ihr findet sich die Vorrichtung zur Wasserverbreitung nicht an den Samen, sondern sie liegt in einer besonderen Konstruktion der Fruchtwände. Zur Reifezeit löst sich die Frucht gleichfalls von ihrem Stiele ab, aber die Samen werden dabei nicht sogleich frei, sondern es geschieht, wie es Hildebrand schildert, etwas dem Verfahren ähnliches, welches man einschlägt, wenn man eine Apfelsine in einzelne halbmondförmige Teile zerlegt. Von der äusseren Fruchtwand löst sich nämlich nur die äussere grüne Schicht los, während die innere mit den Scheidewänden der Frucht in Verbindung bleibt. Die Scheidewände spalten sich dann bald von aussen beginnend in je zwei Lamellen, wodurch jene halbmondförmigen Scheiben entstehen, gebildet aus einer festen Aussenhaut, welche die zahlreichen schweren Samen in einen Schleim eingebettet umschliesst. Diese Scheiben sinken nicht unter, weil in dem Schleime ihres Inneren zahlreiche Luftblasen entstanden sind. Erst später, wenn die Scheiben länger umhergeschwommen sind, löst sich die äussere Hülle auf, die Luftblasen entweichen aus dem Schleime und die Samen werden auf den Grund des Wassers ausgesäet. Der Samenmantel der Nymphaea fehlt ganz. Noll hat darauf hingewiesen, dass die Wasserhühner die eigentlichen Verbreiter der Samen der Teichrosen von Teich zu Teich sind. Die Früchte sind ihre Lieblingsspeise. Bei dem Verzehren derselben bleiben die klebrigen Samen den Vögeln an Haaren und Schnäbeln haften und werden, wie Noll fand, von ihnen verschleppt. Durch Wasservögel werden auch unsere Wasserlinsen weiter verbreitet. Nicht im Wasser schwimmende Samen und Früchte (Fig. 14) kletten sich den Wasservögeln häufig an und die Verbreitung vieler Wasserpflanzen ist von den Wanderungen und der Zugrichtung der Wasservögel abhängig. So verdanken Villarsia- und Limnanthemumarten den Wasservögeln ihre weite Verbreitung. Leersia oryzoides ist nach Ebelings Vermutung durch Steissfüsse, Enten, Wasserhühner aus Südeuropa bis zur norddeutschen Küste verbreitet worden. Unsere Wasserbinsen Scirpus lacustris und Scirpus palustris, sind mit einem aus sechs Borsten bestehenden Perigon mit rückwärts gerichteten Stacheln versehen. Ähnliche Klettvorrichtungen sind bei Rhynchospora etc., ferner vom Zweizahn (Bidens) bekannt. Bidens cernuus ist — jedenfalls durch Vögel verschleppt — aus Europa zu Anfang dieses Jahrhunderts nach Nordamerika gekommen. B. pilosus wanderte aus Nordamerika nach Teneriffa und Neuseeland, B. leucanthus aus Mittelamerika nach Madeira und der Insel Mauritius und der in Nordamerika heimische B. bipinnatus ist jetzt in Tirol eine wahre Landplage geworden. Die mit gefiedertem Flugapparat versehenen Samen vom Rohrkolben und andere den Wind als Transportmittel benutzende Wasserpflanzen haben gleichfalls noch das Vermögen eine Zeit lang an der Oberfläche zu schwimmen. — Bei einer Anzahl tropischer Wassergewächse keimen die Samen erst, nachdem sie eine gewisse Zeit ausgetrocknet waren[45]; es kann dies mit ihrem Vorkommen in Gewässern zusammenhängen, die regelmässig einen Teil des Jahres austrocknen. Möglich wäre es aber auch, dass diese, von einem vorherigen Austrocknen bedingte Keimfähigkeit der Samen in Zusammenhang stände mit dem Transport der Samen von Gewässer zu Gewässer durch das Trockene hindurch.
Eine Schwimmpflanze, welche nicht nur, wie die Seerosen, die Zeit ihrer hauptsächlichsten Entfaltung an der Erdoberfläche hinter sich hat, vielmehr jetzt im Aussterben begriffen zu sein scheint, ist die Wassernuss (Trapa natans). Nathorst und Carlsen[46], welche die Verbreitung dieser Pflanze in Schweden untersucht haben, fanden ihre Früchte in vielen Seen Schwedens verbreitet, in denen die Pflanze jetzt gar nicht mehr wächst oder jetzt sehr selten geworden ist, in dem Schlamm des Bodens. Die Pflanze scheint gewöhnlich mit der weissen Seerose gelebt zu haben und es ist daher zweckmässig, in der Nähe dieser auch die Seen anderer Länder nach den Trapafrüchten, die zudem einen Reichtum von Varietäten zur Schau tragen, zu durchsuchen.
Nach Huth[44] sind die hakigen Früchte als „Ankerkletten“ zu betrachten (welche ein Festhaken des Keimlings am Boden bewirken) — im Gegensatz zu den Verschleppungskletten des Zweizahns (Bidens) etc.
Die submersen Blätter, welche sich neben den Schwimmblättern finden, besitzen eine Reihe von Eigentümlichkeiten, welche anderen submersen Blättern abgehen. Die obersten von ihnen besitzen sowohl Luftspalten als Wasserspalten von charakteristischer Anordnung. Luft- und Wasserspalten sind sonst bei Wasserpflanzen sehr selten. Sie finden sich nach De Bary noch auf den Samenlappen von Batrachium, den Laubblättern von Callitricheen, Hippuris, Hottonia. Die sehr feinfiedrig geteilten grünen submersen Blattorgane sind Wasserwurzeln, welche gewissermassen an die grünen von Fritz Müller beobachteten Luftwurzeln anderer Pflanzen erinnern. Eine eingehendere Darstellung dieser Verhältnisse wie auch der Keimung hat Wittrock[47] gegeben. — In Deutschland findet sich die (mit einer anderen Wasserpflanze Isnardia und den landlebigen Weidenröschen und Circaeaarten) zu den Nachtkerzengewächsen (Onagraceae) gehörige Wassernuss sehr zerstreut. Orte ihres Vorkommens sind ausser den seenreichen Gegenden Norddeutschlands z. B. der Niederrhein, Seen und Teiche um Dessau, bei Plothen und Drebra bei Gera.
Die Arten des Wasserhahnenfusses (Batrachium), deren systematische Bearbeitung z. B. bei J. Freyn[48] nachzusehen ist, zeigen merkwürdige Übergänge von dem Landleben und amphibischen Leben zu echten Schwimmpflanzen und typisch submersen Arten. Von den acht in Nord- und Mitteldeutschland vertretenen Arten ist nur Batrachium hederaceum eine echte Schwimmpflanze, die lauter eigentliche Schwimmblätter besitzt. Ihm steht eine in Sizilien, Asturien, England etc. vorkommende Art B. caenosum nahe. Die submersen Arten bilden wie die Tausendblattarten sehr ausgedehnte Wiesen unter Wasser oder weithin flutende Rasen in unseren Flüssen. Am häufigsten sind B. divaricatum in stehenden Gewässern mit nur zerschlitzten (untergetauchten), flächenförmig ausgebreiteten, kreisrunden Blättern, die meist einmal dreiteilig sind mit weiterhin wiederholt gabelspaltigen Zipfeln, B. fluitans, welches vorwiegend in Flüssen und Bächen wächst, dreiteilig vielspaltige, sehr langhin ausgedehnte Wasserblätter, nur selten aber nierenförmige oder geschlitzte Schwimmblätter besitzt und die gemeinste und vielgestaltigste, allen möglichen Lebensverhältnissen angepasste Art B. aquatile. Letztere erzeugt im Wasser nur zuweilen Schwimmblätter und zwar zur Blütezeit. Askenasy[6] ist durch Versuche zu der Ansicht gelangt, dass ein typisches Schwimmblatt sich bilde, wenn das einer Blüte gegenüber stehende Blatt in einer bestimmten Periode in die Luft emporgehoben wird. Besonders merkwürdig sind die Luftformen der Hahnenfussarten in kleinen Tümpeln etc., die sonst sehr dicht mit Wasserpflanzen besetzt sind. Sie haben ausser submersen zerschlitzten Blättern und echten Schwimmblättern typische Luftblätter (mit den Spaltöffnungen an der unteren Seite) etc. Eigentliche Landformen kommen beim völligen Austrocknen der Sümpfe bei fast allen drei Arten vor, sie haben aber bei B. divaricatum nur die typischen zerschlitzten Blätter. Der Übergang der einen in die andere biologische Form erfolgt meist schnell bei Eintritt anderer Lebensverhältnisse. — Ähnliche amphibische Wasserpflanzen sind z. B. der Tannenwedel (Hippuris), die Tännelarten Elatine etc. — Die Blüteneinrichtung des gemeinen Wasserhahnenfusses B. aquatile ist von Herm. Müller (l. c.) beschrieben worden. Die Honigblumen, zu deren Saftdrüsen die als Saftmal dienende gelbgefärbte Basis der Blumenblätter führt, werden besonders von Schwebfliegen (Eristalisarten, Helophrilus florens, Chrysogaster viduata), kleineren und grösseren Musciden, Bienen (Apis mellifica), Hummeln (Bombus terrestris) bestäubt. Ein von H. Müller beobachteter Käfer (Helodes Phellandri) frisst die Blumenblätter und Staubgefässe. Bei hohem Wasserstand bleiben die Blüten geschlossen unter Wasser und befruchten sich selbst. Ob solche kleistogamische Blüten, wie sie sich bei dieser mit dem Landhahnenfuss (Ranunculus) doch nahe verwandten und wohl von diesem abstammenden Gattung von Batrachium finden, auch sonst bei echten Hydrophyten vorkommen, oder ob hier überall die früher erörterten Anpassungen an eine typische Wasserbefruchtung eingetreten sind, bedarf noch eines besondern Studiums. H. Müller war nach brieflichen Mitteilungen, welche er an mich richtete, geneigt, eine weitere Verbreitung kleistogamischen Blühens auch bei Wasserpflanzen anzunehmen. Das Vorkommen einer gross- und kleinblütigen Form, wie es bei vielen Landpflanzen (Stellaria graminea, Cerastium arvense, Thymian, Gundermann etc.) bekannt ist — in Verbindung mit einer Trennung in Zwitterblüten und weibliche Blüten, ist z. B. von Kirchner beobachtet worden, welcher unter den normalen Stöcken (Blüte 20–27 mm im Durchmesser) solche mit Blüten von 3–4 mm Durchmesser und wenigen Staubgefässen fand. Der letztgenannte Forscher hat auch die Blüteneinrichtung des B. divaricatum näher beschrieben. Beyer[49] hat die spontanen Bewegungen der Staubgefässe des gemeinen Wasserhahnenfusses, dessen Blüte „auf Unterbestäubung eingerichtet ist“, in ihrem gesetzlichen Ablauf näher studiert. (Bei Ranunculus auricomus hatte schon Konrad Christian Sprengel die Staminalbewegung beobachtet.)
Von amphibischen Schwimmpflanzen sei hier nur noch des Wasserknöterichs (Polygonum amphibium) mit einigen Worten Erwähnung gethan. Der Gegensatz einer besondern Landform und Wasserform tritt bei ihm besonders hervor. Wächst Polygonum amphibium im Wasser, so bildet es die Form natans mit langgestielten, breitlanzettlichen, am Grund herzförmigen Schwimmblättern von lederartiger Konsistenz der Blätter und Stengel. Bei der Landform P. terrestris sind dagegen die dem Wurzelstock entspringenden Stengel aufrecht von unten auf mit schmallanzettlichen, festsitzenden Blättern besetzt, deren Fläche nicht glatt, sondern runzlig ist. Während bei der Wasserform der Luftkanal stärker entwickelt und dadurch das spezifische Gewicht des Stengels herabgesetzt ist, bildet die Landform zur Erreichung der für sie unentbehrlichen Biegungsfestigkeit ausserhalb des Bastgewebes (Phloëms) besondere mechanische Zellen, ein Skelett, im Stengel aus[50]. Das ganze Hautgewebe hat zum Zweck der Transpiration und Durchlüftung besondere Umgestaltungen erfahren. Besonders beachtenswert ist aber, dass die Landform besondere Schutzmittel gegen ungeflügelte aufkriechende Tiere hat. Kerner[51] hebt es besonders hervor, dass den Wasserpflanzen, wie Alisma, Butomus, Sagittaria, Hottonia, Utricularia, Villarsia, Nuphar, Nymphaea, Hydrocharis, Stratiotes, welche durch das umgebende Medium vor aufkriechenden Tieren (Ameisen, Raupen etc.) geschützt sind, die besonderen Schutzmittel der Blüte fehlen, welche bei den Landpflanzen in so reichem Masse zur Entwickelung gelangt sind. „Sehr lehrreich in dieser Beziehung“, sagt Kerner, „ist das Verhalten des Polygonum amphibium. Die schön rosenroten Blüten dieser Pflanze sind zu kleinen Cymen vereinigt und diese bilden eine dichte, cylindrische, ährenförmige, sehr reiche Inflorescenz von 2.5 bis 3.5 cm Länge und 1 bis 1.2 cm Breite. Die Blätter des Perianthiums sind fast bis zum Grunde getrennt; der Fruchtknoten ist von einem fleischigen, roten, fünflappigen, nektarabsondernden Becher umgeben und der Grund der Blüte auch reichlich mit Nektar erfüllt. Die mit der Basis des Perianthiums verwachsenen Pollenblätter sind sehr kurz und die Pollenbehälter bleiben in der Tiefe der Blüte geborgen; die zwei Griffel des Gynaeceums sind dagegen sehr lang und ragen sogar über die Blätter des Perianthiums hinaus. Während der Anthese beträgt die Länge des Perianthiums 4 mm, die obere Weitung kaum 3 mm. Da der Nektar im Blütengrunde durch kein besonderes Gebilde am Perianthium geschützt ist, so erscheint er selbst kleinen Insekten zugänglich und wird von diesen auch gern abgeholt. Bei den angegebenen Dimensionen der Blüte können aber selbst sehr kleine anfliegende Insekten nicht vermeiden, dass sie beim Abholen des Nektars zuerst an die über das Perianthium vorstehenden und etwas spreizenden Narben und dann an die dicht über dem Nektar befindlichen Pollenbehälter streifen, und da die Blüten proterandrisch sind, so wird selbst durch sehr kleine anfliegende Insekten, welche mehrere Blüten und Blütenstände nach einander besuchen, Kreuzung der Blüten (bald Geitonogamie, bald Xenogamie) veranlasst. Die von unten her kommenden flügellosen, aufkriechenden kleinen Insekten würden sich aber nicht die Mühe nehmen, über den obern Rand des Perianthiums an den aus der Apertur hervorragenden Narben vorbei zum Blütengrunde vorzudringen, sondern auf dem kürzesten und für sie bequemsten Wege von unten durch die tiefen, die Perigonzipfel trennenden Spalten sich den Nektar holen. Sie würden daher auch eine Belegung der Narben nicht veranlassen und es würde somit der Nektar geopfert, ohne dass zugleich der Vorteil der Allogamie erreicht wäre. Da zudem bei Polygonum amphibium infolge der Dichogamie und der gegenseitigen Lage der Blütenteile eine Autogamie (Selbstbestäubung) unmöglich ist, würde durch den Besuch solcher aufkriechenden kleinen Insekten das Entstehen von Früchten überhaupt gänzlich vereitelt werden. Zu den Blüten der im Wasser wachsenden Stöcke des Polygonum amphibium können nun sehr kleine ankriechende Insekten auch nicht kommen. Wie aber dann, wenn das Wasser abgelaufen ist und Polygonum amphibium aufs Trockene gesetzt wird? — Da ist es nun sehr merkwürdig, dass sich in solchem Falle besondere Schutzmittel ausbilden, welche der im Wasser wachsenden Pflanze bisher fehlten. Es entwickeln sich nämlich dann aus der Epidermis sowohl der Blätter als der Stengel eine Unzahl horizontal abstehender, im Mittel 0.7 mm langer Trichomzotten („Drüsenhaare“), die insbesondere an dem Stengelteile, welcher durch eine Inflorescenz abgeschlossen ist, so dicht als nur möglich gestellt sind und deren kugelige Schlusszellen einen klebrigen Stoff secernieren, so dass sich die Achse, welche die Inflorescenz trägt, ganz schmierig anfühlt. Jene kleinen, flügellosen aufkriechenden Insekten, welche den Nektar rauben möchten, ohne dabei den Vorteil einer Kreuzung der Blüten zu vermitteln, können über diese klebrige Achse nicht emporkommen, sie würden an derselben wie an Leimspindeln kleben bleiben.“ Die Landform hat also dasselbe Schutzmittel gegen unberufene Blütenbesucher wie die Pechnelke (Lychnis viscaria) und viele andere Pflanzen. Wird der Standort des Polygonum aber wieder einmal unter Wasser gesetzt, so entwickelt dasselbe Rhizom wieder die Wasserform ohne diese Trichomzotten, aber mit allen Anpassungen an das Wasserleben. — Übrigens dürfte Kerner bei den oben beschriebenen Exemplaren nur die langgrifflige Form des Wasserknöterichs vor sich gehabt haben, daneben aber eine kurzgrifflige (wie bei der Wasserfeder und dem Fieberklee) existieren; wenigstens hat Kirchner[52], wie bereits angedeutet wurde, in der Landform einen neuen Fall des Vorkommens der Heterostylie entdeckt. Ob bei dem Wasserknöterich eine ähnliche Blühfolge besteht, wie ich sie für den gemeinen Wiesenknöterich beschrieben habe[53], hat ebenso besonderes Interesse (weil diese Art nicht heterostyl ist), wie die Frage, welches der Insektenkreis der Bestäubungsvermittler der Landform und welches der der Wasserform ist. Doch ist man zur Beantwortung dieser wie tausend anderer ebenso einfacher und doch wichtiger Fragen zur Biologie der Wasserpflanzen bisher nicht gekommen.
Die Luftpflanzen unserer Gewässer.
Die Luftpflanzen unserer stehenden und fliessenden Gewässer sind stets im Boden festgewurzelt, haben zumeist auch einen sehr kräftig entwickelten Wurzelstock, wie z. B. der Kalmus, die Schwertlilien etc., zeigen im übrigen aber noch deutliche Anpassungen an das Wasserleben. Wir können zwei Hauptformationen unterscheiden, die Schilfgewächse und die unter deren Schutz (gegen Wind und Wasserströmung) gestellten, die Wasserfläche nur wenig überragenden Sumpfpflanzen. Beginnen wir mit den letzteren, die sehr verschiedenen Abteilungen, zumeist aber den Monokotyledonen angehören.
Am tiefsten in die Gewässer steigen von höheren Gewächsen (z. B. neben der den Kreuzblütlern angehörigen Brunnenkresse, den Wasserehrenpreisarten etc.) noch einige Doldenpflanzen, wie der Wassermerk (Sium, Berula), die Sumpfdolde (Helosciadium), die Rebendolde (Oenanthe fistulosa und aquatica) und der Wasserschierling (Cicuta virosa) hinein. Besonders Oenanthe aquatica ist mit röhrigem Stiel (wie auch der noch durch Gift geschützte Wasserschierling) und mit haarförmigen, sehr fein zerteilten Wasserblättern versehen und kann in sehr tiefem Wasser nur die letzteren untergetaucht ausbilden, ein völlig submerses Wasserleben führend. Auch die Froschlöffelgewächse (Alismaceen) bilden noch besondere Wasserblätter aus und führen gewöhnlich ein Wasserluftleben oder unter besonderen Verhältnissen sogar ein Wasserleben. Nur der schwimmende Froschlöffel, der von Buchenau, dem Bearbeiter dieser Pflanzenfamilie, unter die besondere Gattung Elisma (Elisma natans) gebracht wird — Buchenau beschreibt zehn Gattungen mit 45–48 Arten von Alismaceen —, ist eine echte Schwimmpflanze mit Schwimmblättern und submersen Blättern. Die beiden verbreitetsten Arten unserer Flora sind der gemeine Froschlöffel (Alisma Plantago) und das Pfeilkraut (Sagittaria sagittifolia), welche beide mit ihren zierlichen Blattbüscheln und hübschen Blütenständen die Ufer unserer Teiche und Flüsse schmücken. Beide bilden in tiefem Wasserstand submerse Formen mit schmallinealischen Blättern (forma graminifolia), die von Linné sogar mit einer Vallisnerie verwechselt werden konnten, auch der hahnenfussblättrige Froschlöffel (Echinodorus ranunculoides) verhält sich so. Unser Alisma Plantago, dessen Blütenstand sich mit mathematischer Regelmässigkeit in die Luft erhebt (nach den Messungen und Abbildungen von Xaver Pfeifer[54] träte das Verhältnis des goldenen Schnittes besonders häufig in dem Aufbau dieser Pflanze zutage), besitzt zierliche kleine Zwitterblüten mit sechs (2 × 3) vor den Kelchblättern stehenden Staubgefässen, während der Blütenstand des Pfeilkrautes aus grösseren, rötlichweissen Blüten getrennten Geschlechts besteht, von denen die oberen männlich, die unteren weiblich mit vielen Staubgefässen bezügl. Stempeln in spiraliger Anordnung versehen sind. Beide Pflanzen sind der Bestäubung durch Vermittlung der Insekten angepasst (sind entomophil). Nach Hermann Müller sind bei Alisma Plantago die pollenübertragenden Insekten Schwebfliegen (Eristalis, Syritta, Ascia, Melanostoma, Melithreptus). Bei Elisma natans kommen nach Hildebrand auch kleistogamische Blüten vor[55]. Die Verbreitung der Samen geschieht durch den Wind (mit teilweiser Anpassung an die nächstgelegene Verbreitung durch das Wasser), bei der ostindischen Gattung Limnophyton besitzen die Samen zwischen der verholzten Innenschale (Endocarpium) und der Aussenschale Lufthöhlen (Schwimmvorrichtung); Caldesia parnassifolia kommt bei uns überhaupt nicht zur Fruchtbildung, sondern pflanzt sich nur durch Brutknospen fort. — Die gleichfalls im Schutz der Schilfpflanzen wachsende Schlangenwurz (Calla palustris), welche bei uns zweimal blüht (im Mai und September), wäre besonders in Bezug auf die Bestäubungsweise zu untersuchen. Ob diese durch Raphiden geschützte Pflanze durch Schnecken oder Insekten befruchtet wird oder, wie Kerner u. A.[56] vermuten, einer Befruchtung durch Regen und Tau angepasst ist, ist bisher nicht festgestellt worden (vgl. die Bemerkung bei Lemna). Sie hat rote Beerenfrüchte (Verbreitung durch Vögel!).
Fig. 15.
Schematische Querschnitte durch Blätter der Schilfgewächse.
a
Schwertlilie —
b
Kalmus —
c
Ästiger Igelskolben —
d
Einfacher Igelskolben —
e
Wasserveilchen oder Blumenbinse —
f
Breitblättriger Lieschkolben —
g
Schmalblättriger Lieschkolben —
h
Waldbinse.
Ein hervorragendes Interesse beanspruchen noch die Schilfgewächse, welche neben dem Röhricht der Schachtelhalme und Binsen der Wasserlandschaft ihr eigentümliches Gepräge verleihen. Sie gehören alle den Monokotyledonen an, und da zudem ihre Arten bereits in den Tertiärformationen auftreten, ist es wahrscheinlich, dass sie eine der ältesten Anpassungen an das Luftwasserleben darstellen. In den Luftströmungen und besonders gegen die Bewegung des Wassers, wie sie besonders bei heftigeren meteorologischen Katastrophen (Wolkenbrüche, Überschwemmungen etc.), die in der Vorzeit noch weit mächtiger und häufiger eingetreten sein mögen als jetzt, vorkommen, sind die schmallinealischen (schwertförmigen), sehr elastischen, leichten und dabei biegungsfesten Blätter der Schilfgewächse (die Wind und Regen eine minimale Angriffswaffe darbieten) besonders widerstandsfähig. Ihr ganzer Aufbau (Fig. 15), das von Lufthöhlen durchzogene Blatt (dem meist auch der Blütenschaft gleichgestaltet ist) mit seiner verdickten Mittelrippe, den oft parallel gestellten Querwänden, die wie Strebepfeiler wirken (bei Iris, Typha, Scirpus silvaticus), deuten darauf hin. Mächtige, weit verbreitete Rhizome, welche am Grunde festgewurzelt sind, sichern diesen Pflanzen eine dauernde Existenz durch Sommer und Winter und eine rasche Ausbreitung über ein grosses Areal. Besondere Vorkehrungen[57] schützen die jugendlichen Teile gegen Verletzungen durch die Bodenteile (tütenförmige Niederblätter bei Glyceria etc.). So schildert Warming[58] die besondere Entwickelung der Rhizome von Phragmites communis. Die neuen, am Grunde der Muttersprosse entspringenden Sprosse senken sich tief in die Erde, ehe sie sich umbiegen und nach oben wachsen. Das ganze unterirdische Stengelsystem wird so immer weiter in die Erde gebracht, bis es eine gewisse Normaltiefe hat, und es entsteht in wenigen Monaten ein sehr reich und weit verzweigtes Rhizom. — In welcher Weise die von der mittleren Windrichtung beeinflusste Verwachsung der Teiche, Seen und Flüsse durch solch üppige Rhizombildung vor sich geht und durch sie ein Weiterrücken der Flussläufe bewirkt wird, hat kürzlich M. J. Klinge[59] in einer besonderen Abhandlung ausgeführt. Haben flutende, schwimmende und untergetauchte Gewächse, die sich am günstigsten entwickeln an Stellen, die von der Stromrichtung nicht getroffen sind, im Verein mit dem zwischen ihnen abgelagerten Detritus soweit vorgearbeitet, dass Butomus umbellatus, Sagittaria sagittifolia, Glyceria, Acorus, Arundo, Phragmites, Scirpus lacustris etc. geeigneten Boden finden, so arbeiten diese Gewächse durch Massenentwickelung darauf hin, das Gefälle der Flüsse durch Überwachsen ganz zu heben, um für ihre Sippschaft weiten Raum zu schaffen. Der Fluss sucht der Pflanze seitlich auszuweichen und zwar meist unter dem Winde.
Zu den Schilfgewächsen gehören zunächst von ausgeprägten Windblühern die Lieschkolben oder Rohrkolben (Typhaceen), deren kolbenförmiger Blütenstand zuoberst die männlichen, unten die weiblichen Blüten trägt. Den eigentümlichen Blütenstand, welcher einem Lampencylinder-Putzer nicht unähnlich ist, haben Dietz[60] und Kronfeld[61] näher untersucht. Die Blüten stellen die denkbar einfachsten Monokotyledonenblüten dar, aus zwei Staubfäden oder einem Stempel bestehend, an dessen Grund haarähnliche Gebilde stehen. Sie bilden bei den weiblichen Blüten später den Flugapparat der Früchtchen, die aber auch zu schwimmen vermögen. Im Herbst und Frühjahr treiben sich die letzteren in mächtigen wolligen Massen auf und an den Gewässern umher. Gegen Tierfrass sind die Lieschkolben durch Büschel von Nadeln des Kalkoxalats (Raphiden) geschützt. Von zwölf bekannten Arten finden sich bei uns verbreitet der breite und der schmalblättrige Lieschkolben (Typha latifolia und angustifolia), selten der kleine Lieschkolben (T. minima). Ihnen verwandt sind sodann die gleichfalls windblütigen Igelkolben (Sparganiaceen), deren männliche Blüten in zahlreichen endständigen Köpfchen der einfachen oder verästelten, ährig angeordneten Inflorescenzen drei langfädige Staubgefässe haben, während die gleichfalls kugeligen weiblichen Köpfchen am Grunde sitzen und 1–2 Griffel haben. Die Haargebilde fehlen und könnten die Früchte des stacheligen Fruchtstandes wohl eher durch Tiere verbreitet werden. Der Blütenstand ist hier wie bei den Typhaceen proterandrisch, so dass der Wind nur Fremdbestäubung bewirkt. Am häufigsten ist Sparganium ramosum und S. simplex, während S. minimum und S. affine, die häufig flutende Formen ausbilden und echte Schwimmpflanzen darstellen können, seltenere Arten sind.
Von anderen Gattungen, die das Wasserleben vereinigt und in Bezug auf die vegetativen Organe gleichgestaltet hat, die aber in Bezug auf die Biologie der Blüte sehr verschiedene Anpassungen — nämlich die der nahe verwandten Landpflanzen — besitzen, mögen hier noch die Blumenbinsen (Butomus), die Schwertlilien (Iris) und der Kalmus (Acorus), welche alle drei zoidiophil sind, Erwähnung finden. Die prächtigen Blütendolden des Wasserveilchens (Butomus umbellatus), welche in dem schwertförmigen Blattwerk einen ebenso fremdartigen Eindruck auf den Beschauer machen, wie die gelben, grossen Blumen der Wasserschwertlilie (Iris Pseudacorus) mit ihren blattähnlichen Griffeln, werden durch Insekten bestäubt. Sprengel und H. Müller fanden sie ausgeprägt proterandrisch, während sie A. Schulz[62], der gleichfalls ihre Blüteneinrichtung beschreibt, homogam oder schwach proterandrisch fand. Am nächsten ist unserem Wasserveilchen die ausländische Gattung Tenagocharis mit langgestielten eilanzettförmigen Staubblättern verwandt, während eine andere Butomacee Lemnocharis (ebenso wie die Alismaceen Echinodorus und Hydrocoleis) auffallende Ähnlichkeit mit Nymphaea und der Gentianee Limnanthemum nymphaioides haben. Die Wasserbinsengewächse, welche überhaupt den Froschlöffelgewächsen nahe stehen, haben wie diese Milchgefässe, welche eine Ölemulsion (Schutzmittel?) enthalten. — Der Kalmus (Acorus Calamus) ist dagegen durch ätherische Öle geschützt, ein Umstand, der ebenso wie die Zugehörigkeit zu den Schilfpflanzen um so mehr auffällt, als die ihm verwandte (gleichfalls zu den Arongewächsen gehörige) Schlangenwurz (Calla palustris), die die Blattform unserer Zimmer-Calla (C. aethiopica) teilt, Raphiden zum Schutz hat.