Die Rädertiere (Rotatoria).
Reading edition
Von Dr. Ludwig H. Plate in Marburg.
Zu den Lebewesen des süssen Wassers, deren Körperbau wegen ihrer geringen Grösse nur mit Hilfe des Mikroskopes studiert werden kann, gehört eine Tiergruppe, die in manchen Organisationsverhältnissen sich einerseits an die im vorigen Kapitel vom Herausgeber dieses Werkes geschilderten Turbellarien anlehnt, anderseits einzelne Gattungen enthält, deren Körper lange, mit Borsten besetzte, an die Gliedmassen der Arthropoden in morphologischer und physiologischer Hinsicht auffallend erinnernde Anhänge besitzt. Es ist die kleine, an häufigen Gattungen nicht allzu reiche Familie der Rädertiere oder „Rotatoria“, deren Besprechung sich demnach ungezwungen zwischen die von den Strudelwürmern und den Entomostraken handelnden Schilderungen einfügt.
Die Rädertiere sind vorwiegend Bewohner des süssen Wassers und zwar, man kann sagen, jeder Form, in der dasselbe in unseren Breitengraden auftritt; doch enthält auch das Meer eine ganze Anzahl von Gattungen, deren meiste Arten dem Süsswasser angehören, aber nur in seltenen Fällen treten die marinen Vertreter in solcher Individuenzahl auf, dass sie einen charakteristischen Bestandteil der pelagischen Fauna bilden. Wir werden daher im folgenden vornehmlich auf die Süsswasserformen eingehen und nur gelegentlich der Meeresbewohner Erwähnung thun. Die Rotatorien sind, wie angedeutet wurde, keineswegs wählerisch in Bezug auf ihre Fundplätze; der fliessende Strom und die sprudelnde Bergquelle gewähren ihnen ebensogut alle Bedingungen zur Erhaltung des Lebens, wie der stagnierende Sumpf, und die nie austrocknenden Wasserbecken grösserer Teiche und Seen werden ebenso zahlreich von verschiedenen Gattungen und Arten bevölkert wie die vergängliche Lache, die sich irgendwo nach einem heftigen Regenschauer bildet und schon nach wenigen Tagen der Macht der Sonne weichen muss. Selbst an Orten, die immer nur ganz vorübergehend mit dem feuchten Elemente in Berührung kommen, die der Zeitdauer nach viel eher als trocken denn als nass bezeichnet werden müssen, also unter Existenzbedingungen, wie sie ungünstiger kaum für einen Wasserorganismus gedacht werden können, selbst dort begegnen wir dem munteren Völkchen der Rotatorien. Derartige Fundorte sind z. B. die Rinnen auf den Dächern alter Häuser, sobald sich in ihnen Sand und Schlamm angesammelt hat; ferner leben viele Rotatorien in dichten Moos- und Flechtenpolstern sowie in den oberflächlichen Erdlagen zwischen den Wurzeln von Gräsern und anderen Kräutern. Da die Rotatorien allseitig von Wasser umspült sein müssen — eine feuchte Atmosphäre genügt nicht —, um ihre Lebenskräfte bethätigen zu können, so folgt daraus, dass dieselben an den letztgenannten Fundorten nur nach einem Regenguss oder nach reichlichem Taufall zum Genusse ihres Daseins kommen. Sobald ihr Lebenselement wieder abgeflossen oder verdunstet ist, schrumpfen sie zu einem winzigen Körnchen zusammen, das regungslos daliegt und wie ein Staubatom vom Winde überall hin geführt werden kann, um bei der nächsten Anfeuchtung wieder aufzuquellen und, vom Scheintod erweckt, aufs neue in den Kreis der Lebewesen einzutreten. Viele Rädertiere — wir können sie als „Erdrotatorien“ den ständigen Wasserbewohnern gegenüberstellen — sind demnach in wunderbarer Weise an solche periodisch auftretende Lebensbedingungen angepasst und führen ein intermittierendes Dasein, auf das ich eingehender weiter unten (s. IV) zu sprechen kommen werde.
Obwohl nun die meisten Wasserrotatorien ausgezeichnete Schwimmer sind, die vielfach pfeilschnell sich mit Hilfe ihres „Räderapparates“ zu bewegen vermögen, so giebt es doch nur verhältnismässig wenige Gattungen, die beständig schwimmen und daher auch dort vorkommen, wo das Wasser fast frei von Pflanzen und Treibmaterial ist, also in der Mitte unserer Teiche und Seen. Man pflegt gegenwärtig die im offenen Meere lebenden Tiere und Pflanzen im Gegensatz zu den die Küste und den Meeresgrund bewohnenden als „pelagische“ zu bezeichnen und wendet diesen Ausdruck, übertragend, aber wenig logisch, auch auf die Süsswasserfauna an. Zu den pelagischen Rädertieren des Süsswassers gehören vornehmlich die Gattungen Asplanchna, Anuraea, Triarthra, Polyarthra und Synchaeta, für die weiter charakteristisch ist, dass sie dort, wo sie vorkommen, meist in sehr grosser Individuenzahl, zu Tausenden und Abertausenden, angetroffen werden. Die Mehrzahl der Rotatorien liebt es hingegen, abwechselnd zu schwimmen und sich vorübergehend mittels besonderer am Hinterende des Körpers angebrachter „Fussdrüsen“ festzuheften, und sie halten sich aus diesem Grunde zwischen Wasserpflanzen oder, bei seichten Gewässern, dicht über dem Boden auf. Bei einigen wenigen Gattungen endlich ist die Beweglichkeit noch mehr beschränkt. So treffen wir in der Abteilung der Philodiniden nur Formen an, die, wenn sie ungestört sind, sich fest irgendwo vor Anker legen und ihren Räderapparat nur zum Herbeistrudeln von Nahrung benutzen; erst wenn sie beunruhigt werden, verlassen sie teils spannerraupenartig kriechend, teils frei schwimmend den Platz. Endlich giebt es noch eine kleine Familie, die Melicertiden, welche nur in der Jugend frei beweglich sind, später aber sich dauernd an Wasserpflanzen oder untergetauchten Gegenständen festheften.
Ehe wir uns nun einer vergleichenden Schilderung der ganzen Gruppe der Süsswasserrotatorien zuwenden, wollen wir eine bestimmte Art möglichst eingehend anatomisch und biologisch untersuchen, um so einen gesicherten Ausgangspunkt zu gewinnen, von dem aus der Leser in das Studium dieser interessanten kleinen Wesen eindringen und einen Massstab an die innerhalb derselben vorkommenden Variationen des Körperbaues und der Lebensweise anlegen kann. Wir wählen als Typus der Klasse eine der gemeinsten, überall sich findenden Arten, die zuerst von dem dänischen Zoologen Otto Friedrich Müller 1773 entdeckt und später von dem grossen Berliner Erforscher der kleinsten Lebewesen, Christian Gottfried Ehrenberg, im Jahre 1838 unter dem Namen
Hydatina senta, das Krystallfischchen,
beschrieben wurde. Das Tierchen gehört zu den ständigen Wasserbewohnern, und wir können uns dasselbe ebenso wie seine übrigen Verwandten mit Hilfe eines sehr engmaschigen seidenen kleinen Netzes aus sogen. „Müllergaze“ leicht verschaffen. Exemplare von Hydatina finden sich häufiger in kleinen stehenden Tümpeln als in grösseren Wasserbecken, was vielleicht nur damit zusammenhängt, dass sie sich in letzteren auf einen grösseren Raum verteilen, während sie sich in ersteren nicht selten in enormen Scharen ansammeln, sodass wir nur für einige Augenblicke das Netz durch das Wasser hin und her zu ziehen und dann den im Grunde desselben angesammelten Niederschlag in einem Wasserglase abzuspülen brauchen, um mit einer schwachen Lupe Tausende von durchsichtigen etwa ½ mm langen Hydatinen sich rastlos im Wasser umhertummeln zu sehen. Sehr häufig erkennt man von jedem Tierchen nicht viel mehr als einen grünen zentralen Fleck, der sich bei Besichtigung mit einem Mikroskope als ein im Magen liegender Nahrungsballen von kleinen grünen Algen oder Flagellaten erweist. Um eine volle Einsicht in den Bau der Hydatinen zu gewinnen, bedarf es eines Mikroskopes, dessen Vergrösserungskraft sich etwa bis zu einer 500fachen steigern lässt. Mit Hilfe eines „Tropfenzählers“ übertragen wir einige der Tierchen in ein Uhrschälchen, greifen zur Lupe und bringen eines derselben mittels der Pipette in einem kleinen Tropfen auf den Objektträger, bedecken ihn mit einem Deckglase und betrachten nun das Rädertier mit einer schwachen Vergrösserung. Jenachdem sich noch relativ viel oder wenig Wasser unter dem Deckglase befindet, schwimmt das Tier rasch oder langsam umher, sodass wir — durch Zusatz oder durch Absaugen von Wasser — es vollkommen in der Hand haben, die Geschwindigkeit der Fortbewegung so zu regulieren, dass eine Beobachtung der natürlichen Körpergestalt möglich ist. Zum Studium der inneren Organisation ist es jedoch unumgänglich nötig, die lebhaften Bewegungen der Hydatina ganz oder nahezu zu hemmen, und hierzu stehen uns drei Mittel zur Verfügung. Einmal lässt sich durch Absaugen eines Teiles des Wassers ein solcher Druck auf das Objekt ausüben, dass dasselbe fast unbeweglich daliegt; wird die Körpergestalt hierbei auch unnatürlich breit, so hat doch diese Methode den grossen Vorzug, die Lebensäusserungen fast aller Organe der Beobachtung selbst mit starken Vergrösserungen zugängig zu machen. Zweitens kann man durch Zusatz eines Tropfens einer dünnen Lösung von Kokain (1 Teil auf 20 Teile Wasser) die Hydatinen in vielen Fällen vorübergehend lähmen; leider ist dieses Mittel nicht immer zuverlässig und geht auch nur zu oft Hand in Hand mit Verzerrungen der natürlichen Körpergestalt. Der letztere Übelstand beeinträchtigt sehr häufig auch die Resultate, welche mit der dritten Methode, der Abtötung unter dem Deckglase oder im Uhrschälchen, erzielt werden. Am meisten anzuraten ist die Anwendung 1%iger Überosmiumsäure, da diese die Gewebe vorzüglich fixiert. Um das Schwarzwerden der Objekte zu verhüten, ist es nötig, dieselben, nachdem die Säure ½ bis 2 Minuten eingewirkt hat, mit destilliertem Wasser auszuwaschen. Eine Abtötung durch langsames Erwärmen des Wassers erhält die Tiere nicht selten schön ausgestreckt, ist aber bei feineren histologischen Studien nicht verwertbar.
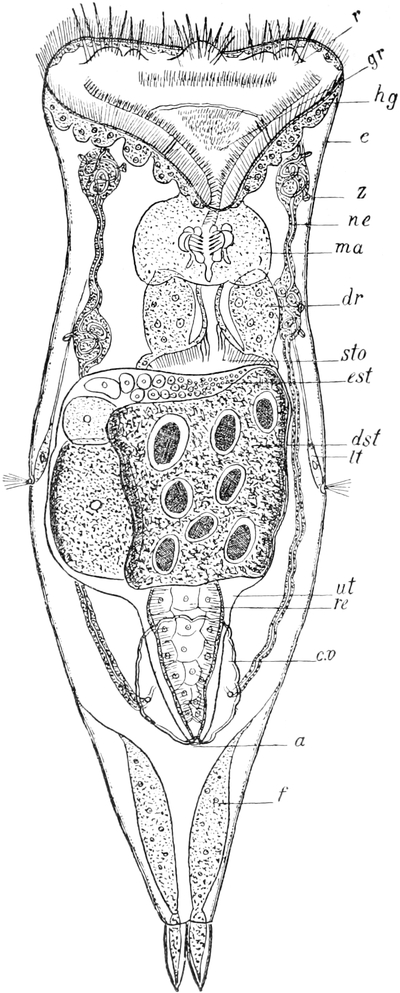
Fig. 62.
Hydatina senta
♀. Ventralansicht. (Starke Vergrösserung.)
Die Körpergestalt der Hydatina senta (Fig. 62 S. 282) ist die eines nicht sehr breiten, dafür aber ziemlich hohen Kegels, etwa eines Zuckerhutes. Der Basis des Kegels entspricht das vordere Körperende, während die Spitze in zwei kleine dolchförmige Anhänge, die „Fusszehen“, ausgezogen ist. Die Gestalt des völlig ausgestreckten Tieres weicht nur darin von der eines mathematischen Kegels ab, dass sie erstens etwas abgeplattet, gleichsam zusammengedrückt ist, sodass der Querschnitt keinen Kreis, sondern ein Oval darstellen würde, und dass sie zweitens hinter dem Vorderende eine ringförmige Einschnürung besitzt, um sich dafür in der Mitte um so stärker auszubauchen. Es ergiebt sich daraus eine Gliederung des Körpers in drei undeutlich von einander geschiedene Regionen, die von vorn nach hinten als Kopf, Mittelleib und Schwanz (letzterer von der Spitze des Kegels und den zwei Zehen gebildet) unterschieden werden. Betrachten wir den Kopf genauer, so sehen wir, dass seine nach vorn gekehrte Fläche nicht eben ist, sondern dass sie sich zu einer tiefen trichterförmigen Grube (gr) einsenkt. Der Rand dieses Trichters beschreibt kein regelmässiges Oval, sondern ein Dreieck, dessen zwei bauchständige oder „ventrale“ Seiten nach hinten winkelig vorgezogen sind, sodass sie etwas hinter dem „Dorsal-Rand“ liegen. Denken wir uns demnach einen Kegel an seiner Basis schräg abgestutzt und die so erhaltene Fläche trichterförmig eingestülpt, so ergeben sich annähernd gleiche Verhältnisse wie am Kopfe der Hydatina senta.
Schon eine flüchtige Betrachtung unseres Tierchens zeigt uns, dass die Kraft, welche dasselbe so munter im Wasser umhertreibt, vom Kopfende ausgehen muss, denn während der Mittelkörper und der Schwanz regungslos durch das flüssige Element dahingleiten, bemerken wir am Kopfe eine lebhafte Strudelung, deren Ursache uns ein starkes Objektiv erkennen lässt. Der ganze Rand des Kopfes und auch ein grosser Teil der Trichterwandung ist mit zahllosen Härchen (r) besetzt, die abwechselnd schnell hakenförmig zusammenknickend nach hinten schlagen und sich dann wieder langsam ausstrecken; jedes Härchen stellt gleichsam ein Ruder dar, das um einen festen Punkt herum hin und her bewegt wird. Bei manchen Rotatorien, namentlich den meisten Erd- und Moosbewohnern, ruft das Spiel dieser Wimpern oder „Cilien“ den Eindruck eines sich drehenden Rades hervor; indem nämlich immer nur wenige Ciliengruppen in den Fokus der betreffenden Linse gleichzeitig hineintreten, und diese dabei den Kopfrand umkreisend nach einander sichtbar werden, wird auf das Auge ein ähnlicher Reiz ausgeübt, wie ihn die Speichen eines in Drehung befindlichen Rades hervorrufen. Aus diesem Grunde hat man der ganzen Abteilung den Namen „Rädertiere“ gegeben, und bezeichnet man die Summe der zur Bewegung dienenden Härchen als „Räderapparat“ oder „Räderorgan“. Bei unserer Hydatina hält es nun gar nicht leicht, den Bau dieses Wimpertrichters genau festzustellen, so dass in Einzelheiten die Angaben der verschiedenen Forscher vielfach differieren. Unsere Abbildung zeigt, wie der Räderapparat im wesentlichen aus zwei Cilienkränzen, einem äussern und einem innern, besteht. Jener wird aus einer Reihe sehr zarter und langer Cilien gebildet, zwischen die sich nur auf der Ventralseite, ungefähr in der Mitte jeder Seitenhälfte, einzelne derbere Borsten einschieben. Der innere Kranz hingegen ist vielgestaltiger und zerfällt in drei von einander getrennte Zonen. An der Rückenwand erhebt er sich zu fünf grösseren Polstern, die mit starken Borsten besetzt sind und hinter denen eine Doppelschnur von kleineren Cilien entlang zieht. Auf der Ventralfläche des Kopftrichters breitet sich jederseits der Medianlinie ein Wimperband aus, das aus einer Reihe grosser und einer Reihe kleiner Härchen gebildet wird. Endlich ist auch noch der Grund des Trichters mit zahlreichen kleinen Cilien besetzt, deren Anordnung sich nicht weiter verfolgen lässt. Der Räderapparat hat nun nicht allein den Zweck, die Hydatina unter beständigen Umdrehungen um die Längsachse durch das Wasser zu treiben, sondern erfüllt auch die viel wesentlichere Aufgabe, die nötige Nahrung herbeizustrudeln. Unser Krystallfischchen nährt sich, wie der meist grüne Mageninhalt beweist, vornehmlich von Flagellaten (Euglenen u. dergl.), kleinen Algen, Diatomeen, Infusorien und ähnlichen niedrigsten Organismen. Der vom Cilienapparat hervorgerufene Strudel packt dieselben und schleudert sie auf den Grund des Trichters (gr) in die daselbst gelegene Mundöffnung, von wo aus sie durch andere Wimpern in den eigentlichen Verdauungskanal getrieben werden. Die geschilderten Cilien des Kopftrichters besitzen die Kraft zu ihrer rastlosen Thätigkeit in sich selbst, sie bewegen sich spontan und werden nicht etwa durch Muskeln bewegt. Sie müssen naturgemäss fest in der Haut wurzeln, und daher sehen wir diese am Kopfe etwas stärker entwickelt als an anderen Körperstellen.
An der glashellen Körperwand der Hydatina lassen sich zwei verschiedene Lagen unterscheiden. Die äussere (c) ist völlig homogen und gegen dünne Kalilauge sehr widerstandsfähig, sodass wir ihr eine hornartige, „chitinige“ Beschaffenheit zuschreiben dürfen. Die innere (hg) hingegen ist feinkörnig, protoplasmatisch und enthält von Stelle zu Stelle einen Kern. Besondere Zellgrenzen lassen sich in dieser Protoplasmaschicht nicht erkennen, sie stellt vielmehr ein „Zellsyncytium“, d. h. eine durch Verschmelzung der ursprünglich getrennten Zellen einheitlich und kontinuierlich gewordene Lage dar. Man bezeichnet sie als „Hypodermis“ und nimmt an, die äussere Schicht, die „Kutikula“, sei durch Abscheidung von ihr erzeugt. Nur in zwei Körperregionen schwillt die Hypodermis zu ungewöhnlicher Dicke an. Dieselben liegen an den beiden Polen des Körpers, nämlich einmal längs des ganzen Randes des Kopftrichters, woselbst die Hypodermis zu zahlreichen halbkugeligen Polstern sich verdickt, welche eben den Cilien des Räderapparates die gewünschte feste Unterlage bieten, und ferner in den Zehen des Schwanzes, in denen die Hypodermis sich zu den zwei langen schlauchförmigen und ein gutes Stück nach vorn in die Leibeshöhle hineinragenden „Fuss- oder Klebdrüsen“ (f) erweitert. Beobachtet man eine lebende Hydatina, so wird man bald bemerken, dass diese keineswegs beständig umherschwimmt, sondern dass sie von Zeit zu Zeit sich an irgend einem untergetauchten Gegenstande für wenige Minuten festheftet. Das Spiel der Wimpern hört unterdessen nicht auf, dient dann aber lediglich seiner zweiten (nutritorischen) Funktion. Die Anheftung erfolgt mittels eines klebrigen Sekretes, das in Tropfenform von den Fussdrüsen an der Spitze der Zehen durch eine sehr kleine Öffnung entleert wird und bei Berührung mit dem Wasser sofort zu einer festen Masse erstarrt. Die Drüsen sind ebenso gebaut wie die Hypodermis, aus der sie hervorgegangen sind; sie stellen also ein Zellsyncytium dar ohne zentrales Lumen, d. h. ohne innere Höhle. Nach vorn läuft jede Drüse in einen feinen bindegewebigen Faden aus, der sich an der Körperwand befestigt und dadurch das Organ in der Leibeshöhle suspendiert erhält. Die Ausmündung erfolgt durch ein feines Röhrchen.
Von den inneren Organen des Krystallfischchens fallen durch ihre Grösse dem Beobachter vornehmlich diejenigen sofort auf, welche der Selbsterhaltung und der Fortpflanzung des Tierchens dienen, die Ernährungs- und die Geschlechtsorgane. Zu den ersteren kann man, wie wir oben gesehen haben, auch den Cilienbesatz des Kopfes rechnen. Die von demselben herbeigestrudelten Nahrungsteilchen treten am Grunde des Kopftrichters in die Mundöffnung über, welche nicht genau in der Mitte des von den Cilien umstellten Feldes liegt, sondern stark ventralwärts verschoben ist. Dies hat zur Folge, dass die dorsale Fläche des Kopftrichters etwas grösser ist, als jede der beiden ventralen, wie dies auch aus der Betrachtung unserer Abbildung erhellt. Der Verdauungskanal erstreckt sich unter der Rückenhaut als ein gerades, der Medianlinie folgendes Rohr nach hinten und gliedert sich in vier Abschnitte, die vom Munde aus gerechnet nach einander als Kauapparat oder Mastax, Schlund oder Oesophagus, Mitteldarm oder Magen und Enddarm oder Rectum bezeichnet werden können. Der Kauapparat (ma) ist ein relativ grosses, querovales, am Hinterrande dreilappig ausgezogenes Gebilde, das sich nicht direkt an die Mundöffnung anschliesst, sondern mit dieser durch ein kurzes flimmerndes Rohr verbunden ist. Ich sehe in diesem keinen besonderen Abschnitt des Verdauungskanales, sondern rechne es mit zur Mundöffnung. Der Mastax wird aus einem äusseren protoplasmatischen Mantel und einem zentralen chitinigen Kieferapparat zusammengesetzt, dessen eigenartige Bewegungen dem Beobachter sofort ins Auge fallen. Wie etwa die Backen eines Nussknackers durch den Druck der Hand gegen einander bewegt und nach Sprengung der Schale wieder von einander entfernt werden, so rücken die beiden Seitenteile des Gebisses um einen festen Angelpunkt abwechselnd gegen und von einander und zermalmen so jedes zwischen sie geratene Nahrungsteilchen. Der Kieferapparat ist im einzelnen so kompliziert eingerichtet, dass man seinen Bau nur nach völliger Isolierung erkennen kann. Bei der Kleinheit des Objektes ist an ein Zerzupfen des Tieres mittels feiner Nadeln nicht zu denken; wir opfern daher lieber ein Individuum und bringen einen Tropfen dünner Kalilauge unter das Deckglas. Dieselbe zerstört, vornehmlich in der Hitze, sämtliche protoplasmatischen Bestandteile der Hydatina, sodass nur der chitinige Zahnapparat erhalten bleibt. Jetzt hält es nicht schwer, sich eine ungefähre Vorstellung von dem zierlichen Gerüste der Kiefer zu bilden: zwei nach vorn gerichtete Seitenteile werden hinten durch ein stabförmiges unpaares Gebilde zusammengehalten. Sie tragen als wichtigsten Bestandteil auf der Innenfläche fünf lanzettförmige, quergerichtete Zahnleisten, die beim Zusammenklappen des Gebisses sich zwischen einander schieben und so die Nahrung zerquetschen. Die den Kieferapparat umhüllende Plasmamasse ist offenbar zum grossen Teile muskulöser Natur und bewirkt die rhythmischen Bewegungen, wenn sie auch keine fibrilläre Struktur erkennen lässt. Einzelne Partien lassen aus ihrem Aussehen auf eine drüsige Funktion schliessen. Auf der Dorsalfläche und nahe dem Hinterrande des Mastax entspringt der kurze, sehr enge und schwer sichtbare Schlund. Abgesehen vom Kauapparat ist er der einzige Abschnitt des Verdauungskanales, welcher der Flimmercilien entbehrt. Der sich an ihn anschliessende Magen (sto) ist gross, sackförmig, vorn und hinten etwas verschmälert; in ihm pflegen bei frisch gefangenen Tieren die Nahrungsbestandteile so dicht angehäuft zu liegen, dass, wie gesagt, die ganze Hydatina unter der Lupe nur wie ein wandelnder grüner oder schwärzlicher Fleck erscheint. Unter dem Mikroskope erweisen sich jene Bestandteile grösstenteils in beständiger zitternder Bewegung, die durch die langen Cilien der aus einer Schicht grosser polygonaler Zellen gebildeten Wandung hervorgerufen wird. Besonders gross sind diese Flimmerhaare am Übergange des Schlundes in den Magen. Neben dieser Stelle sitzt dem Magen noch ein Paar drüsiger, birnförmiger Anhänge (dr) an, die einzigen, welche dem Verdauungskanal überhaupt zukommen. Sie dienen vermutlich als Leber, indem sie ein die Verdauung unterstützendes Sekret in den Magen entleeren. Der Enddarm unterscheidet sich im histologischen Bau nur unwesentlich von dem Magen, von dem eine ringförmige, muskulöse Einschnürung ihn trennt. Er geht nicht direkt in den querspaltigen, ungefähr am Anfange des letzten Körperviertels auf der Rückenseite gelegenen After (a) über, sondern beide trennt ein kurzer, flimmerloser Zwischenkanal, die sogen. Kloake. Sie nimmt ausser dem Enddarm die Ausführgänge der Zeugungs- und Exkretionsorgane auf.
Die Ausscheidung einer harnartigen Flüssigkeit, welche dem Körper nicht mehr dienliche stickstoffhaltige Stoffe entfernt, besorgen zwei schmale, dünnwandige Röhren, die Nephridien (ne) — mit einem unpassenden Namen auch wohl als „Wassergefässe“ bezeichnet —, welche sich vom Kopfabschnitt der Leibeshöhle an seitlich nach hinten bis zur Kloake erstrecken; sie verschmelzen hier zu einer gemeinsamen Blase, einem Harnreservoir (c.v), das in die Kloake einmündet und seinen Inhalt durch rhythmische Kontraktion seiner Wände in diese entleert. Bei einem gesunden Tiere folgen Zusammenziehung und Ausdehnung der Blase einander in regelmässigem Wechsel, mehrere Male in jeder Minute, sodass man von einem Pulsieren derselben sprechen kann. Jedes Nierengefäss zeigt aussen eine zarte, feinkörnige, protoplasmatische Wandung mit hie und da eingestreuten Kernen und innen einen engen Kanal. An zwei kleinen Stellen, nämlich vorn im Kopfe und in der Höhe der Magendrüsen, windet sich der Kanal knotenartig mehrfach hin und her, und hier findet sich dementsprechend auch eine reichlichere Ansammlung von Protoplasma. Die beiden vorderen Knäuelpartien stehen ausserdem durch ein enges, bogenförmig unter der Rückenhaut (genauer gesagt: dem Gehirn) verlaufendes Quergefäss mit einander in Verbindung. Jeder Nierenschlauch trägt eine Anzahl eigenartiger sehr kleiner Anhänge (z), die man auch bei den Turbellarien vorgefunden hat, und die nach der flackernden, unsteten Bewegung, die man in ihrem Innern stets bemerkt, als „Zitterflammen“ oder „Zitterorgane“ bezeichnet werden. Es sind Ausstülpungen des Kanallumens, die sich bald mit einer dreieckigen Breitseite, bald mit einer birnförmigen Schmalseite dem Beobachter präsentieren. Jene Bewegung wird hervorgerufen durch die Schwingungen einer kleinen Membran, die dem freien, nach aussen geschlossenen Ende der Ausstülpung aufsitzt und in ihr Lumen hineinragt. Die ganze Bildung ist wohl als eine eigentümliche Wimperzelle anzusehen, deren physiologische Bedeutung freilich noch ganz unklar ist.
Untersucht man eine grosse Anzahl von ausgewachsenen Hydatinen, so wird man erstaunt darüber sein, bei allen auf der Ventralseite und in der Mitte des Körpers ein grosses Organ anzutreffen, das unzweifelhafte Eier enthält und demnach als Geschlechtsorgan des Weibchens angesehen werden muss. Vergebens aber suchen wir in diesem Tiere und in anderen Individuen nach irgendwelchen Andeutungen von einer männlichen Sexualdrüse. Es hat lange gedauert, bis die hier obwaltenden Verhältnisse klar erkannt worden sind. Bei der Hydatina sind nämlich fast alle Individuen weiblichen Geschlechtes, und der Prozentsatz der Männchen ist ein so ausserordentlich niedriger, dass auf viele Hunderte von ♀ nur ein oder einige wenige ♂ kommen. Die ♂ weichen auch in Grösse und Bau so erheblich von den ♀ ab, dass wir weiter unten diesen Dimorphismus der Geschlechter besprechen werden. Da nun die ♂ so sehr viel seltener sind, haben die Hydatinen die Fähigkeit erworben, sich auch ohne die Männchen „parthenogenetisch“ fortzupflanzen, d. h. die von ihnen erzeugten Eier bedürfen keiner Befruchtung, sondern entwickeln sich ohne diese „jungfräulich“ zu neuen Tieren. In dem Ovar bemerkt man zunächst nur eine dichtkörnige dunkele Protoplasma-Masse (dst), in der acht ovale, von einem schmalen, hellen Hofe umgebene Gebilde liegen. Wir sehen hierin acht Kerne, deren Kernkörperchen eine riesige Ausdehnung gewonnen haben, sodass der eigentliche Kern auf jene Randzone sich beschränkt. Früher nahm man an, dass diese Kerne sich, von etwas Protoplasma umgeben, abschnürten und sodann zu Eiern heranwüchsen. Es hat sich nun neuerdings gezeigt, dass diese Anschauung nicht richtig ist, sondern dass jene zusammenhängende mit acht grossen Kernen versehene Protoplasma-Masse nur einen Teil des Ovars darstellt und zwar denjenigen, der nicht die Eier erzeugt, sondern diese nur mit Nahrungsdotter versorgt und daher als Dotterstock zu bezeichnen ist. An seinem Vorderrande erblickt man an Tieren, die mit Osmium-Säure abgetötet, und deren Kerne hinterher durch irgend eine der gebräuchlichen Flüssigkeiten, etwa Borax-Karmin, gefärbt worden sind, noch eine Anzahl sehr kleiner und dicht zusammenliegender Kerne. Diese stellen den Eierstock (est) dar, denjenigen Teil der Geschlechtsdrüse, welcher die Keimzellen, die Eier, liefert. Wie ein Blick auf unsere Abbildung lehrt, werden die Kerne des Eierstockes nach der rechten Ecke des Vorderrandes (die Bauchseite des Tieres ist dem Beobachter zugewendet) zu immer kleiner. Sie liegen hier, wie es scheint, in einem kontinuierlichen Protoplasma-Lager, an das sich nach links zu deutlich gesonderte kleine Eizellen anschliessen. Je mehr wir uns der linken Ecke des Ovars nähern, um so grösser werden die Eizellen, und die grössten schieben sich dabei nach hinten vor und kommen so neben den linken Seitenrand des Dotterstockes zu liegen, dem sie sich dicht anschmiegen. In dieser Stellung beginnt nun auch die ernährende Thätigkeit des Dotterstockes. Letzterer, wie auch die Eizelle, werden von einer sehr zarten Membran umhüllt, und durch diese diffundiert die im Dotterstock angesammelte Dottersubstanz hindurch und gelangt so in die Eizelle hinein. Dieser Übertritt kann natürlich nur in einer flüssigen Form geschehen und entzieht sich deshalb der direkten Beobachtung. Aber der Umstand, dass die dem Dotterstocke angelagerten Eizellen sehr bedeutend an Grösse zunehmen, während die Plasma-Masse des Dotterstockes abnimmt, lässt keine andere Deutung der Verhältnisse zu. — Die gesamte Geschlechtsdrüse wird von einer dünnen Membran sackartig umgeben. Hinter dem Dotterstock umschliesst dieselbe einen trichterförmig sich nach hinten verengernden Raum, den „Uterus“ (ut), welcher neben der kontraktilen Blase der Nephridien in die Kloake mündet. Sobald die Eier ihre definitive Grösse erreicht haben, fallen sie in den Uterus hinein und werden aus diesem durch die Kloake hindurch einzeln abgesetzt. Die Eier sind von runder oder ovaler Gestalt und schwanken in der Länge ihrer grössten Achse etwa zwischen 0.10 bis 0.14 mm. Untersucht man eine grössere Anzahl solcher Eier, so wird man einzelne von besonderer Kleinheit antreffen (0.07 bis 0.11 mm), die im Innern einen sehr auffälligen tiefschwarzen Fleck aufweisen. Der Breslauer Botaniker Cohn hat zuerst gezeigt, dass sich aus derartigen Eiern stets Männchen entwickeln. Die genannten zwei Eisorten sind nun nicht die einzigen, welche unserer Hydatina zukommen. Da das Tierchen, wie angegeben wurde, mit Vorliebe sich in ganz seichten Lachen und Gräben aufhält, welche oft schon nach wenigen Tagen eintrocknen, so würde dasselbe in solchen Fällen stets zu Grunde gehen, wenn nicht die Natur ein Schutzmittel in der Erzeugung besonders widerstandsfähiger „Dauereier“ geschaffen hätte; denn die Hydatina besitzt nicht das von den Erdrotatorien eingangs geschilderte Eintrocknungsvermögen. Sobald das Tier dem feuchten Elemente entrückt wird, geht es rettungslos zu Grunde. Jene Dauereier hingegen können unbeschadet ihrer Lebenskraft eintrocknen. Sie unterscheiden sich von den gewöhnlichen Eiern äusserlich nur dadurch, dass sie von einer doppelten Hülle umgeben sind, von denen die äussere sehr derb und mit einem dichten Haarbesatz versehen ist. Ob auch ein Unterschied — etwa in der Grösse — zwischen männlichen und weiblichen Dauereiern existiert, oder ob überhaupt nur letztere vorkommen, was wahrscheinlicher ist, ist zurzeit noch nicht entschieden. Alle drei Eisorten vermögen sich nun auf parthenogenetischem Wege zu entwickeln und zwar die dünnschaligen sehr rasch, ungefähr in 24 Stunden, während die Entwickelungsdauer der hartschaligen sehr verschieden zu sein scheint. Jedenfalls können diese wochenlang ohne Veränderung verharren und bedürfen vielleicht unter Umständen erst einer Trockenperiode. Früher bezeichnete man die hartschaligen Eier vielfach als „Wintereier“, indem man annahm, dass sie im Herbste aufträten und die Art über die rauhe Jahreszeit hinaus erhielten. Cohn stellte ferner den Satz auf, dass dieselben nur nach erfolgter Begattung gebildet werden könnten. Beide Ansichten sind nicht richtig. Die Dauereier werden den ganzen Sommer hindurch gebildet und zwar auch von Weibchen, die nie mit Männchen in Berührung gekommen sind. Sie dienen auch nicht als Schutz gegen die Kälte, sondern gegen das Eintrocknen, daher sie auch bei den Erdrotatorien, die in anderer Weise an das Versiegen des Wassers angepasst sind, fehlen. Merkwürdigerweise werden alle drei Eisorten je von besonderen Individuen erzeugt, wenigstens bin ich auf Grund grösserer Versuchsreihen seinerzeit für die Hydatina senta zu diesem Schlusse gedrängt worden. Die Mehrzahl aller Hydatinen legt nur weichschalige weibliche „Sommereier“, und zwar während ihrer zwei- bis dreiwöchigen Lebensdauer etwa fünfzig Stück; einige wenige Tiere erzeugen ebenso ausschliesslich die kleinen weichschaligen Eier, aus denen die Männchen schlüpfen. Das Gleiche gilt von denjenigen Tieren, welche Dauereier ablegen, nur dass die Zahl derselben eine viel geringere ist, indem täglich nur 1–5 derselben abgesetzt werden[IX].
Das Nervensystem der Hydatina besitzt als Zentralorgan ein über und etwas vor dem Schlundkopf gelegenes Ganglienpaar, das als „Gehirn“ bezeichnet wird. Betrachtet man dasselbe vom Rücken aus, so hat es annähernd den Umriss eines Parallelogramms, dessen Längsachse quergestellt ist. Von der Seite gesehen erscheint es kegelförmig nach hinten verjüngt. Nach Anwendung von Reagentien lassen sich zahlreiche in den peripherischen Schichten liegende Kerne erkennen; seine Struktur ist im einzelnen noch nicht untersucht worden. Von dem Gehirn ziehen jederseits nach vorn drei Nervenstränge, welche diejenigen Matrix-Verdickungen versorgen, welche die grossen Borstenbüschel tragen. Nach hinten setzt sich das Gehirn in einen Nerv fort, der schräg nach hinten und oben zur Rückenwand zieht und hier ein für die Rotatorien sehr charakteristisches Sinnesorgan, den „dorsalen Taster“, bildet. Dicht unter der Haut schwillt nämlich der Nerv zu einem kleinen, aus nur wenigen bipolaren Ganglien-Zellen gebildeten Ganglion an, das an eine kreisrunde Öffnung in der Kutikula sich ansetzt. Aus dieser Öffnung strahlt ein Büschel langer zarter Borsten hervor, welche offenbar sehr empfindlich sind, den bei Berührung empfundenen Reiz zum Gehirn weiterleiten und hier zum Bewusstsein kommen lassen. Ein ganz ähnlich gebautes Sinnesorgan findet sich jederseits ungefähr in der Mitte des Körpers (lt), doch ist dasselbe wegen seines zarten, durchsichtigen Baues nicht eben leicht zu finden und bis vor kurzem von allen Beobachtern übersehen worden. Die „lateralen Taster“ laufen nach vorn in einen Nerv fort, der sicherlich direkt oder indirekt mit dem Gehirn in Zusammenhang steht, wenn es auch bis jetzt noch nicht hat glücken wollen, denselben nachzuweisen.
Auf eine eingehende Darstellung des Muskelsystems der Hydatina will ich hier verzichten. Es sei nur bemerkt, dass die Muskelfasern sämtlich glatt sind und unter der Haut liegen, an die sie sich mit beiden Enden anheften. Der Richtung nach kann man Quer- und Längsmuskeln unterscheiden. Die ersteren umziehen reifenförmig in ziemlich gleichen Abständen den Körper und bewirken am lebenden Tier, wenn sie sich kontrahieren, häufig den Anschein einer segmentalen Gliederung. Zu den Längsmuskeln rechne ich auch diejenigen Bänder, welche in etwas schräger Richtung durch die Leibeshöhle ziehen. Sie bewirken vornehmlich die so häufige und für die Untersuchung so störende Einstülpung von Kopf und Schwanz in den Mittelkörper. — Besondere Respirationsorgane fehlen der Hydatina ebensosehr, wie Blutgefässe. Die Atmung findet offenbar durch die ganze Haut statt. Die die Leibeshöhle erfüllende Flüssigkeit ist wasserklar, ohne irgendwelche an Blutkörperchen erinnernde Zellen. Durch die Wirkung der Muskeln wird sie beständig in der Körperhöhle hin und her getrieben und kann daher die von den inneren Organen ausgeschiedene Kohlensäure leicht der Hautfläche zuführen und so den Gasaustausch vermitteln. Sie dient auch als Antagonist der Längsmuskeln, indem die eingestülpten Körperpole durch sie unter gleichzeitiger Wirkung der Ringmuskeln wieder hervorgepresst werden. — Endlich seien hier noch die zahlreichen zarten Bindegewebsfäden erwähnt, welche sich zwischen den einzelnen Organen ausspannen und diese in ihrer Lage zu einander und zur Haut erhalten.
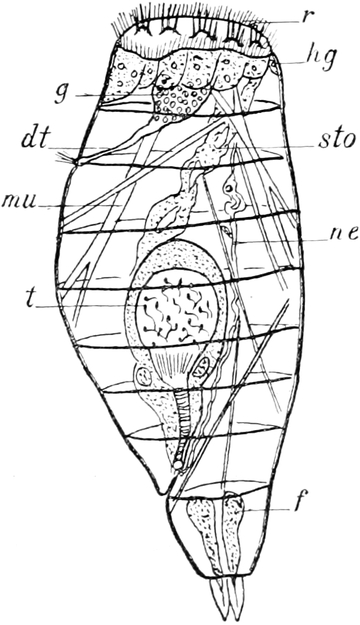
Fig. 63.
Hydatina senta
♂. Nach Weber. Seitenansicht.
Schon oben habe ich kurz des eigenartigen Geschlechts-Dimorphismus gedacht, welcher unserer Hydatina zukommt. Die früher herrschende Ansicht, derzufolge die Männchen nur im Herbste auftreten, um die Produktion von Dauereiern hervorzurufen, ist nicht richtig. Sie finden sich zu allen Jahreszeiten; da sie aber an Individuenzahl hinter den Weibchen so ausserordentlich zurückstehen, so wird man ihrer nur dann habhaft werden, wenn man über grosse Mengen von Hydatinen verfügt. Am zweckmässigsten ist es in diesem Falle, etwa hundert Weibchen, einzeln oder in beschränkter Anzahl, in Uhrschälchen zu isolieren und die abgelegten Eier zu kontrollieren. Bemerkt man unter diesen solche von geringer Grösse und mit einem schwarzen, wahrscheinlich aus fäkalartigen, nicht mehr verwertbaren Massen gebildeten Fleck, so hält es nicht schwer, das zugehörige Muttertier zu ermitteln und sich durch dieses fortlaufend mit männlichen Individuen versorgen zu lassen. Für die Männchen ist zweierlei charakteristisch: einmal die geringe Grösse im Vergleich mit den Weibchen und zweitens die Reduktion der Organisationshöhe, welche sich vornehmlich in dem fast völligen Schwunde des Verdauungskanals ausspricht. Es sind äusserst flinke, kleine Tierchen, die nur ungefähr halb so lang als die Weibchen sind und blitzschnell im Wasser umherschwimmen. Die Körpergestalt (Fig. 63) ist ungefähr die gleiche wie bei den Weibchen, nur ist der Kopftrichter weit flacher und stellt eine seichte Mulde dar, was wohl mit dem Schwunde der Mundöffnung zusammenhängt. Am Räderapparat erkennt man den äussern Cilienkranz und die fünf mit stärkeren Cilien besetzten dorsalen Polster. Das einzige Organ, welches in der Leibeshöhle durch seine Grösse auffällt, ist der birnförmige Hoden (t), der durch einen kurzen, mit starker Ringmuskulatur ausgezeichneten Ausführgang an der der weiblichen Kloakenöffnung entsprechenden Stelle ausmündet. Er kann bei der Begattung vorgestülpt werden und darf daher als Penis bezeichnet werden. Im Innern des Hodens bemerkt man bei geschlechtsreifen Tieren ein siedendes Gewimmel kleiner Samenfäden, die bei Anwendung sehr starker Objektive einen angeschwollenen Kopf und einen schwanzartigen Anhangsfaden mit undulierendem Saume erkennen lassen. An der Wurzel des Ausführganges zeigt die Hodenblase eine feine Längsstreifung; dieselbe liegt nicht in der Wandung, sondern wird durch kleine nadelförmige Gebilde hervorgerufen, die bewegungslos sind und deshalb kaum als Samenfäden gedeutet werden können. Der Verdauungskanal (sto) hat sich nur in ganz rudimentärer Form erhalten; er ist bandförmig, ohne Lumen und erstreckt sich von der Rückenfläche des Hodens bis zur Kopfmulde. Die Berechtigung, dieses Gebilde als rückgebildeten Darm aufzufassen, ergiebt sich einmal aus seiner Lage im Körper und dann daraus, dass in ihm die oben erwähnten schwarzen Körnchen liegen, welche bei den Weibchen verschiedener anderer Rotatorien im Darm angetroffen werden. Auch das Exkretionssystem der Männchen ist einfacher als bei den Weibchen; eine pulsierende, für beide Nephridien gemeinschaftliche Blase fehlt, so dass dieselben getrennt neben der Penisöffnung ausmünden. Im übrigen sind die Verhältnisse hier, wie auch im Nerven-, Muskel- und Hautsystem dieselben wie bei den Weibchen. Da die Männchen nicht imstande sind, Nahrung aufzunehmen, so ist ihre Lebensdauer eine sehr kurze; ich habe sie in der feuchten Kammer nur 2–3 Tage zu halten vermocht. Sehr eigenartige Verhältnisse scheinen bei der Begattung vorzuliegen. Man trifft nicht zu selten weibliche Tiere an, die in ihrer Leibeshöhle lebende Samenfäden aufweisen, während man dieselben doch höchstens im Uterus erwarten sollte. Bringt man nun mehrere (5–6) Männchen mit einem Weibchen in einem kleinen Wassertropfen zusammen, so nehmen die Tierchen anfangs, auch bei gegenseitiger Berührung, keine Notiz von einander. Nach einiger Zeit ändert sich das Bild. Die Männchen beginnen das Weibchen zu umschwärmen und gelegentlich sieht man ein, event. auch mehrere Männchen sich dem Weibchen mit vorgestülptem Penis an irgend einer Körperstelle, aber nicht an der Geschlechtsöffnung, anheften. Wird nun ein solches Weibchen sofort genauer untersucht, so finden sich Ballen von Spermatozoen der Innenseite der Haut an eben jenen Stellen angeheftet, während einige Samenfäden sich schon in der Leibeshöhle umhertummeln. Es kann daher nicht zweifelhaft sein, dass es hier zu einer Begattung gekommen ist, wenn es zurzeit auch noch nicht möglich ist, zu entscheiden, ob diese Samenfäden sich später in das Ovar einbohren und hier eine Befruchtung herbeiführen; da ich nach 24 Stunden stets nur abgestorbene Samenkörper in begatteten Weibchen antraf, so scheint es mir wahrscheinlicher, dass es in solchen Fällen überhaupt nicht zu einer Befruchtung kommt, der ganze Vorgang daher eigentlich überflüssig ist, und dass eine solche wohl nur dann eintritt, wenn es dem Männchen gelingt, die Kloakenöffnung des Weibchens aufzufinden[X].
Nachdem wir im vorstehenden Bau und Biologie eines typischen Rotators kennen gelernt haben, werden wir verhältnismässig leicht uns ein Bild der in der ganzen Klasse vorkommenden Organisationsverschiedenheiten entwerfen können, denn die Rotatorien sind im Vergleich mit anderen Abteilungen des Tierreiches sehr einförmig zu nennen, und ihre morphologische Differenzierung schwankt nur innerhalb enggezogener Grenzen.
II. Vergleichende Schilderung der Morphologie der Rotatorien[XI].
1. Die Körpergestalt.
Alle Rädertiere sind ungegliedert und bilateral-symmetrisch, d. h. sie lassen sich nur durch eine in die Längsachse des Tieres gelegte Ebene in zwei symmetrische Körperhälften — eine linke und eine rechte — teilen, und dementsprechend kann man an ihnen ein vorderes und ein hinteres Körperende und eine Bauch- und eine Rückenseite unterscheiden. Von allen Körperachsen ist diejenige, welche vom vordern zum hintern Körperpole geht, fast ausnahmslos die längste, und da gleichzeitig die Breite des Tieres im Verhältnis zur Länge in der Regel sehr gering ist, so haben die meisten Rotatorien einen gestreckten, wurmartigen Habitus, dessen Länge zwischen 3 bis 0.05 mm schwankt. Der Querschnitt durch die Mitte des Körpers zeigt entweder einen runden bis ovalen Umriss, oder die Dorsoventral-Achse ist nur sehr klein, und das Tier (z. B. ein Brachionus, Fig. 69 S. 300, oder eine Polyarthra, Fig. 66 S. 298) erscheint dann stark abgeplattet, scheibenförmig. Dass alle drei Körperachsen ungefähr gleich lang sind, und der Körper daher die Gestalt einer Kugel besitzt, kommt nur bei zwei, auch in der innern Organisation sehr abweichenden Arten vor, nämlich erstens bei der von Semper auf den Philippinen entdeckten Trochosphaera aequatorialis, bei der die Stirnfläche des Kopfes halbkugelförmig aufgeblasen ist, sodass der Ciliensaum des Räderapparates den Körper in äquatorialer Stellung umzieht, und zweitens bei Apsilus lentiformis, einer seltenen deutschen (bei Giessen beobachteten) Art. Annähernder Gleichheit in der Grösse der Quer- und Längsachsen begegnen wir schon häufiger, z. B. bei den scheibenförmigen Gattungen Pterodina und Pompholyx. Bei fast allen Rotatorien ist das vordere Körperende quer abgestutzt, und die so entstandene „Stirnfläche“ trägt den Räderapparat und, der Ventralseite genähert, die Mundöffnung. Die Breite des Kopfes ist bald dieselbe wie in den mittleren Körperregionen, bald wird sie etwas geringer als diese, so dass sich der Körper nach vorn leicht verjüngt. Bei besonders mächtiger Entwickelung des Räderapparates (s. weiter unten) kann der Stirnfläche auch die Maximalbreite des Körpers zukommen. Hinter der Afteröffnung verjüngt sich der Körper fast aller Rädertiere und bildet so den zur dauernden oder vorübergehenden Anheftung dienenden Schwanz (Fig. 62, 63, 64, 65, 69). Dieser Schwanz kann in sehr verschieden deutlichem Grade sich vom Mittelkörper absetzen. Bei den in Fig. 62–65 abgebildeten Arten gehen beide ganz allmählich in einander über. Bei der Asplanchnopus myrmeleo (Fig. 68) sitzt der kurze in zwei Zehen auslaufende Schwanz nicht am Hinterende des Rumpfes, sondern fügt sich der Bauchseite ein gutes Stück weiter nach vorn an. Fig. 69 zeigt uns einen Brachionus, bei dem der schmale Schwanz fast die halbe Körperlänge erreicht, von dem viel breitern Mittelkörper sehr scharf abgesetzt ist und durch besondere Muskeln vorübergehend ganz in diesen zurückgezogen werden kann. Endlich giebt es eine Anzahl Formen, denen ein echter Schwanzanhang überhaupt fehlt; so die Gattungen Polyarthra (Fig. 66), Triarthra, Hertwigia, Asplanchna, Anuraea (Fig. 67), Sacculus. Bei diesen mangeln mit dem Schwanze gleichzeitig die Fuss- oder Klebdrüsen, sodass die Tiere nicht im stande sind, sich festzuheften. — Die Fussdrüsen (f) sehr vieler Rädertiere münden an der Spitze zweier (selten einer: Monostyla) sehr verschieden langer dolchförmiger Zehen, die bald an einander gelegt, bald gespreizt getragen werden. Bei den im erwachsenen Zustande dauernd festsitzenden Melicertiden, z. B. der Gattung Floscularia (Fig. 65), sind zwar die Fussdrüsen mächtig entwickelt, Zehen hingegen fehlen, und der Körper endet mit einer quer abgestutzten kleinen Fläche. Anderseits giebt es eine Abteilung unter den Rädertieren, bei denen die Zehen stets in grösserer Zahl als zwei auftreten. Es sind dies die Philodiniden, wozu der gemeine Rotifer vulgaris und fast alle Erdrotatorien gehören. Bei diesen läuft der Schwanz bald in drei (Rotifer, Actinurus), bald in vier (Philodina[XII]) Zehen aus, die cylindrische fingerförmige Anhänge darstellen. Vier kurze Zehen kommen auch der an den Beinen unseres Bachflohkrebses lebenden Callidina parasitica Gigl. zu, während bei anderen nahen Verwandten noch weitergehende Modifikationen beobachtet werden. Bei Callidina symbiotica Zel. (Fig. 64) endigt der Schwanz mit zehn sehr kleinen Zehen, und bei Call. magna Plate münden die Ausfuhrgänge der Klebdrüsen in eine von zahlreichen dichtstehenden Kanälen durchbrochene kreisförmige Platte aus. Alle die genannten Gattungen der Philodiniden besitzen ausserdem noch zwei „Afterzehen“ oder „Sporen“, welche kurz vor den eigentlichen Zehen von der Rückenseite ausgehen und in der Gestalt diesen sehr ähneln (Fig. 64, zh). Bei Call. parasitica fungieren sie auch als echte Zehen, indem sie Ausführgänge der Klebdrüsen aufnehmen; bei allen übrigen Arten hingegen enden sie blind geschlossen und sind daher wohl ihrer ursprünglichen Funktion verlustig gegangen.
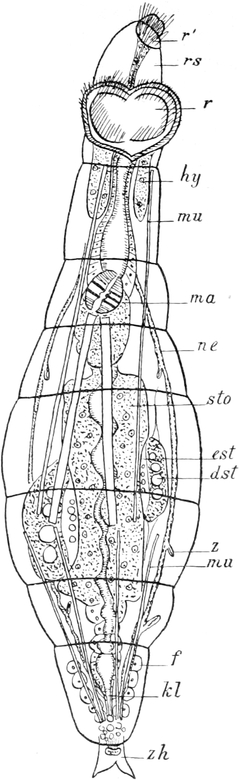
Fig. 64.
Callidina symbiotica.
Nach Zelinka, etwas geändert. Ventralansicht.
Fig. 65. Floscularia cornuta. Nach Leydig. Seitenansicht. Fig. 66. Polyarthra platyptera. Nach Leydig. Rückenansicht. Fig. 67. Anuraea aculeata. Nach Hudson-Gosse. Rückenansicht.
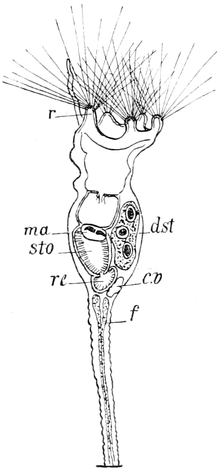
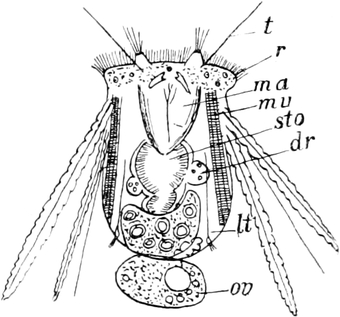
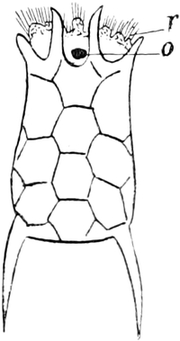
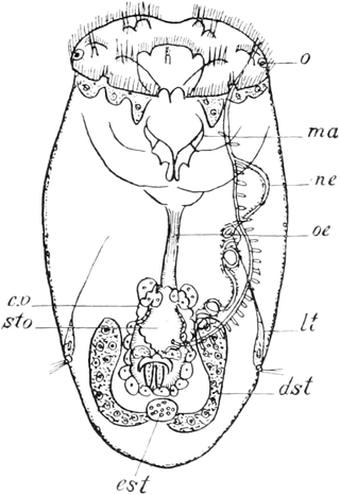
Fig. 68.
Asplanchna (Asplanchnopus) myrmeleo.
Bauchansicht.
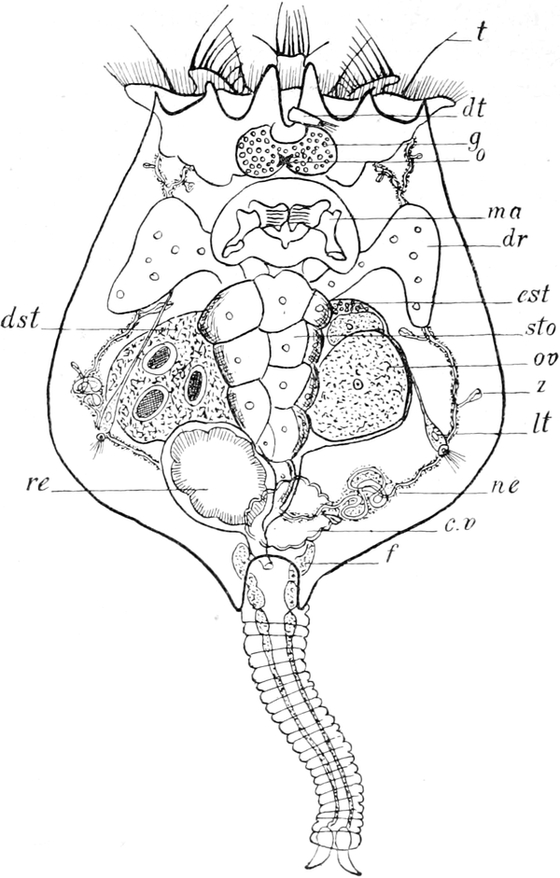
Fig. 69.
Brachionus rubens.
Nach Hudson-Gosse. Rückenansicht.
Die Fusszehen der Rotatorien können als Körperanhänge angesehen werden, welche durch Ausstülpungen der Haut entstanden sind. Ähnliche, aber nicht der Festheftung sondern der Bewegung dienende Anhänge, die ihren Trägern häufig ein sehr absonderliches Aussehen verleihen, treffen wir bei einigen Rädertieren an, die sehr verschiedenen Unterabteilungen des Systems angehören. Ich erwähne hier nur drei verschiedene Arten derartiger Ausstülpungen. Bei den Philodiniden entspringt dicht hinter dem Räderapparat ein langer, aus- und einstülpbarer „Rüssel“ (Fig. 64, rs), der an seinem verjüngten Vorderende mit beweglichen Cilien besetzt ist. Der Rüssel ist an seiner Basis fast so breit wie der Körper, sodass man darüber im Zweifel sein kann, ob man ihn als eine aus der Rückenfläche hervorgewachsene Neubildung oder nicht vielmehr als das ursprüngliche Vorderende des Körpers anzusehen hat, in welchem Falle der Cilienapparat zum grössten Teile auf die Bauchfläche übergetreten wäre und sich mit der Mundöffnung ein gutes Stück nach hinten verschoben hätte. Rüssel und Räderapparat sind bei den Philodiniden nie gleichzeitig in Thätigkeit, sondern in dem Moment, wo ersterer sich hervorstülpt, wird letzterer eingezogen. Der Rüssel dient teils als Träger von Sinnesorganen (Tastborsten, Augenflecke), teils vermittelt er mit den Fusszehen die spannerraupenartige Bewegungsweise der Philodiniden, wobei seine vordere Wimperplatte wie eine Saugscheibe der Unterlage angeheftet wird. — Unter den Arten der Gattung Asplanchna zeichnen sich einige durch den Besitz von 2–4 kegelförmigen Hautauswüchsen aus, die vom Rücken oder den Körperseiten entspringen und zumteil eine beträchtliche Höhe erreichen. Bald treten dieselben nur bei den Männchen auf (so bei Aspl. Sieboldii Leyd.[XIII] in Vier-, bei Aspl. intermedia Huds. in Zweizahl), bald sind beide Geschlechter, wenn auch zuweilen in verschiedener Weise, mit ihnen ausgerüstet (Aspl. amphora Huds. und Aspl. Ebbesbornii Huds.). Eine besondere Funktion scheint ihnen nicht zuzukommen. — Ein besonderes Interesse beanspruchen die bei den Gattungen Polyarthra, Triarthra, Pedetes und Pedalion vorkommenden Anhänge, da sie auffallend an die Extremitäten der Entomostraken erinnern. Wie diese sind sie scharf, zumteil sogar gelenkig, vom Körper abgesetzt, sind beweglich, tragen nicht selten gefiederte Borsten und dienen der gleichen Funktion, nämlich zum Rudern. Dennoch sind dieselben nur als analoge Bildungen anzusehen, denn die zwei wichtigsten Merkmale der Entomostraken-Gliedmassen, die paarweise und ausschliesslich ventrale Gruppierung und der Spaltfusscharakter, gehen ihnen völlig ab.
Dass nun der Habitus der Rädertiere im einzelnen so vielen kleinen Veränderungen unterworfen ist, wird vornehmlich durch zwei Organsysteme bewirkt, nämlich einmal durch die Vielgestaltigkeit des Räderapparates und dann durch den wechselnden Grad von Festigkeit, welcher der Haut eigen ist. Wir beginnen daher die vergleichende Betrachtung der Organsysteme mit diesen.
2. Die Körperhaut.
Wenn ich die Rädertiere oben als ungegliedert bezeichnete, so scheint die Beschaffenheit der Körperdecke vieler Arten sich hiermit schwer in Einklang bringen zu lassen. Fanden wir doch schon bei der Hydatina und ebenso bei Callidina symbiotica (Fig. 64), wie der Körper durch mehrere in ziemlich gleichen Abständen aufeinanderfolgende Einschnürungen, ähnlich einem Ringel- oder Bandwurme, in Segmente gegliedert wurde. In der That lässt die Haut vieler Rotatorien eine Zusammensetzung aus mehreren gleichen Zonen erkennen, aber da wir bei keinem innern Organe etwas Ähnliches antreffen, sondern alle nur in Ein- oder Zweizahl vorhanden sind, kann von einem metameren Körperbaue nicht die Rede sein, sondern höchstens von einer auf die Haut und die zugehörigen Muskeln beschränkten Scheinsegmentierung. Diese kommt entweder nur durch die Anordnung der Ringmuskeln zu stande (Hydatina), oder Hand in Hand mit dieser geht eine Zusammensetzung der Haut aus abwechselnd derben und weichen Partien. Die ersteren bilden bei den Philodiniden die eigentlichen Hautsegmente, die letzteren die je zwei Segmente von einander sondernden Furchen, welche in Gestalt von Ringfalten sich unter die Haut des nächsthintern Scheinsegmentes legen. In der Dicke verhält sich die Kutikula der Falten ganz gleich derjenigen der Segmente, in die sie ja auch kontinuierlich übergeht. Dass jene Falten konstante Bildungen sind, lässt sich daher wohl nur aus einer weicheren Beschaffenheit derselben erklären. Kontrahieren sich die Längsmuskeln, so schieben sich die schmäleren Scheinsegmente in die weiteren hinein, ähnlich wie man die Ringe des Tubus eines Fernrohres in einander stecken kann. — Viel auffallender als bei den Philodiniden ist der Unterschied zwischen weichhäutigen und derben Partien der Kutikula bei den sogenannten „gepanzerten“ Rädertieren. Es gehören hierher zahlreiche Gattungen, von denen manche, wie Brachionus, Anuraea, Pterodina, Salpina, Colurus, Metopidia, zu den gemeinsten Vertretern der Klasse zählen. Der Panzer, d. h. der derbhäutige unelastische Abschnitt der Haut, umfasst bei diesen Formen nur den Mittelkörper. Die Haut des Kopfes und des Schwanzes (falls ein solcher überhaupt vorhanden ist) hingegen bleibt von der gewöhnlichen Konsistenz. Im Panzer nimmt die Kutikula eine grössere Dicke an und bedeckt sich mit den verschiedenartigsten Skulpturen, wie Leisten, Rillen, Punkten, Höckern u. dgl., welche häufig zu sehr zierlichen Zeichnungen zusammentreten. Unsere Abbildung der Anuraea aculeata (Fig. 67) lässt z. B. die polygonalen Felder der Rückenfläche des Panzers deutlich erkennen. Sehr häufig läuft der Panzer dort, wo er in die weiche Haut des Kopfes und des Schwanzes übergeht oder, obwohl seltener, an anderen Stellen in zahnartige Fortsätze aus. So verdankt die eben erwähnte Anuraea ihren Speziesnamen aculeata dem Umstande, dass der Panzer am Vorderrande sechs, am Hinterrande zwei ansehnliche Dornen trägt. Bei den verschiedenen Brachionus-Arten differiert vornehmlich die Zahl, Grösse und Anordnung der Zähne am Vorderrande der Schale; ausser diesen begegnen wir vielfach zwei kleinen Zähnen an der Basis des Schwanzes (Fig. 69). Bei einigen Rädertieren erreichen die Stacheln des Panzers eine solche Länge, dass ganz abenteuerliche Formen hierdurch entstehen, Anuraea longispina Kellic. z. B. trägt vorn drei, hinten einen spiessartigen Fortsatz von der Länge des ganzen Panzers. Bei Stephanops tripus Lord und Steph. Leidigii Zacharias sitzt der Rückenfläche ein nach hinten gerichteter und bogenförmig gekrümmter Stachel auf, welcher bei ersterer etwas kürzer, bei letzterer länger als das ganze Tier ist. — Der Panzer bewirkt in einzelnen Fällen eine Abweichung von der typischen Lagerung der inneren Organe. Ist er z. B. sehr flach gebaut (Pterodina, Metopidia), so kommen die Geschlechtsorgane im entwickelten Zustande teilweise neben den Darm, anstatt unter ihn, zu liegen. Ferner hat sich die Öffnung der Kloake von der Dorsalseite auf die Bauchfläche verschoben bei den Gattungen Pterodina, Anuraea und Dinocharis, welch’ letztere auch dadurch bemerkenswert ist, dass bei ihr der Hals panzerartig erhärtet ist, während sonst der Kopf stets weichhäutig bleibt.
3. Der Räderapparat.
Von allen Organsystemen zeigt keines eine so grosse Vielgestaltigkeit und einen so verschiedenen Ausbildungsgrad als dasjenige, welches die Lokomotion und die Nahrungsaufnahme vermittelt, das Räderorgan. Dennoch zeigt eine vergleichende Betrachtung, dass den meisten Rotatorien eine gemeinsame Grundform in der Anordnung der Cilien zukommt, die freilich nicht immer mit gleicher Deutlichkeit zu Tage tritt. Dieselben stehen nämlich in zwei Kreisen, von denen der eine, innere in vielen Fällen vor, der andere, äussere hinter der Mundöffnung gelegen ist; der letztere setzt sich in der Regel in die Mundöffnung selbst fort. In sehr prägnanter Weise treffen wir einen derartigen doppelten Wimpersaum, einen praeoralen und einen postoralen, bei den Gattungen Rotifer, Philodina, Callidina (Fig. 64), Pterodina, Melicerta, Lacinularia und einigen anderen an. Hier ist auch eine Arbeitsteilung in der Funktion der beiden Cilienkränze eingetreten. Der praeorale ist mit besonders starken Cilien versehen und dient zur Fortbewegung des Tieres, während die schwächeren Flimmern des postoralen Kranzes die Nahrungsteilchen in den Mund strudeln. Die eigenartige Radbewegung, welche das Spiel der praeoralen Wimpern dem Auge vortäuscht, ist, wie schon erwähnt wurde, die Veranlassung zur Benennung der hierher gehörigen Organismen als Rädertiere gewesen. Unsere Abbildung der Callidina symbiotica (Fig. 64) zeigt, wie die Cilien dieses vordern Kranzes auf zwei durch eine mediane Furche von einander getrennten Polstern, Ausstülpungen der Stirnfläche, randständig angebracht und in der Mitte der Bauch- und Rückenseite durch eine nackte Stelle unterbrochen sind. Man könnte daher auch von zwei unvollständigen Cilienkreisen reden, wenn die Raddrehung derselben nicht in gleichem Sinne dem Auge sich darböte. Der hintere, postorale Kranz besteht nicht aus einer einfachen Cilienreihe, sondern stellt einen Flimmerstreifen dar, welcher jederseits aus der ventralwärts stark lippenförmig vorspringenden Mundöffnung hervortritt und um jene Stirnpolster herum sich dem Rücken zuwendet. Eine Verschmelzung in der dorsalen Mediane findet aber auch bei diesem Kranze nicht statt. — Die Umbildung der beiden für die genannten Gattungen charakteristischen primitiven Wimpersäume erfolgte bei den übrigen Rädertieren nach zwei Richtungen hin, jenachdem der postorale, äussere oder der praeorale, innere Cilienkranz der mächtigere wurde und besondere Differenzierungen einging. Der erstere Fall ist nur selten, nämlich bei den festsitzenden Gattungen Floscularia (Fig. 65) und Stephanoceros, eingetreten. Bei beiden hat sich die Stirnfläche kelchförmig eingesenkt und trägt im Grunde die von kleinen Cilien des inneren Kranzes umstellte Mundöffnung. Der Kelchrand trägt die sehr langen [bei einzelnen Arten (Floscularia mira Huds.) geradezu enorm grossen] Cilien des äusseren Kranzes und ist in fünf Anhänge ausgezogen, auf die sich die Wimpern auch fortsetzen. Bei Floscularia sind es kurze, stumpfkegelförmige Zipfel, bei dem schönen Stephanoceros Eichhornii hingegen lange, zungenförmige Fortsätze. — Bei der weitaus grössten Zahl der Rotatorien erleidet hingegen der innere Cilienkranz mannigfache Umgestaltungen: aus der ursprünglich einfachen Cilienreihe werden mehrere; einzelne erheben sich auf besonderen Polstern und nehmen dann die Gestalt derber Griffel an; andere verlieren ihre Beweglichkeit und werden zu starren langen Tastborsten; die ursprüngliche ringförmige Anordnung wird verwischt, indem der Zusammenhang der Cilien durch nackte Partien unterbrochen wird; es treten sehr feine Cilien sekundär an ursprünglich nackten Stellen der Stirnfläche auf, und so fort. Auf alle diese zahlreichen Modifikationen hier näher einzugehen, ist unmöglich, und seien daher nur noch zwei Abweichungen erwähnt. Bei Besprechung der Körpergestalt der Philodiniden wurde schon hervorgehoben, dass die Spitze des dorsalen „Rüssels“ mit einer kleinen Flimmerplatte besetzt ist, also mit einer Art sekundären Räderorgans (vgl. Fig. 64). Wie dieselbe zu deuten ist, ob als Bildung sui generis oder als abgespaltener Teil des ursprünglich einheitlichen Cilienapparates, lässt sich schwer entscheiden. Letzteres scheint die grössere Wahrscheinlichkeit für sich zu haben, indem der Dorsalrand der Wimperscheibe sich in verschiedenen Gattungen in einen zungenförmigen Anhang auszieht, der dann entweder (Rhinops vitrea) noch vom äusseren Wimpersaum umzogen wird oder nur einige Tastborsten trägt (Adineta vaga) oder endlich ganz nackt geworden ist (Metopidia, Stephanops). Abspaltungen seitlicher Partien des Räderapparates werden auch sonst beobachtet, so bei der Gattung Synchaeta, die jederseits ein „Wimperohr“ am Kopfe trägt. — Die zweite hier zu erwähnende Abweichung betrifft Formen, deren Cilienapparat eine ventrale und vorn am Körper gelegene Scheibe darstellt (Notommata tardigrada Leyd., Adineta vaga Dav., Diglena forcipata Ehr., Digl. giraffa Gosse), die dicht mit kleinen Wimpern besetzt ist. Von einer ursprünglich ringförmigen Anordnung der Cilien haben sich keine Andeutungen erhalten, und die ganze Bildung erinnert ausserordentlich an die Gastrotrichen, eine kleine Gruppe mikroskopischer Süsswassertierchen, die ungefähr die Gestalt der Rotatorien haben, aber auf der ganzen Bauchseite bewimpert sind. — Der Räderapparat fehlt nur bei wenigen Gattungen, die auch sonst in ihrer Organisation sehr abweichen, völlig: so bei dem an der Unterseite von Nymphaeablättern festgehefteten Apsilus lentiformis Metschn., bei dem Regenwurmparasiten Balatro clavus Clap. und bei dem marinen, auf Nebalia schmarotzenden Paraseison nudus Plate. Bei manchen der kleineren Arten scheint er stark reduziert zu sein, ohne dass jedoch unsere Instrumente zurzeit für ein eingehendes Studium derselben ausreichten. — Der Cilienapparat kann bei allen Rotatorien mit Ausnahme der Gattung Adineta vorübergehend in den Mittelkörper eingestülpt werden. In diesem Zustande ruhen die Cilien, beginnen aber mit dem Moment der Ausstülpung, offenbar unwillkürlich, wieder ihre Thätigkeit. Soll bei den Philodiniden der Räderapparat benutzt werden, so muss der „Rüssel“ eingestülpt im Körper liegen. Anderseits wird jener sofort eingezogen, wenn das Tier beginnt sich spannerraupenartig unter abwechselnder Festheftung und Loslösung der Rüsselspitze und der Zehen fortzubewegen. Man erblickt daher nur ausnahmsweise die beiden Cilienregionen gleichzeitig in Thätigkeit.
4. Die Muskulatur
der Rädertiere ist noch zu wenig erforscht, um eine vergleichende Schilderung zu ermöglichen. Bei vielen, vielleicht allen Rotatorien giebt es in der Mitte des Rumpfes eine Querlinie, von der die grossen nach vorn und nach hinten laufenden Längsmuskeln ausstrahlen. Neben den glatten Muskeln, welche weitaus die Mehrzahl bilden, kommen bei einigen Arten auch quergestreifte vor; solche sind z. B. die Kopfretraktoren von Pterodina und Polyarthra (Fig. 66, mu). Die Ringmuskeln verteilen sich gewöhnlich in ziemlich gleichen Abständen auf den ganzen Körper; nur bei Asplanchna myrmeleo liegen sie am Halse dicht nebeneinander, hier auf schmalem Querringe einen echten Hautmuskelschlauch bildend. Bei den Philodiniden ist jeder Ringmuskel aus einer bestimmten Zahl kleiner Segmente zusammengesetzt.
5. Das Nervensystem
besteht überall aus einem grossen, dorsal vom Schlundkopfe gelegenen Zentralorgan, dem Gehirn, dessen beide Ganglien breit mit einander verwachsen sind. Die Gestalt ist bei verschiedenen Arten wechselnd: rundlich, parallelogrammförmig, bei den Philodiniden dreieckig. Bei letzteren ist eine Zusammensetzung aus peripherischen Ganglienzellen und zentraler Fasermasse nachgewiesen, und daher eine solche auch für die übrigen Arten sehr wahrscheinlich. Vom Gehirn strahlen Nerven aus einmal an die zwischen den lokomotorischen Cilien oder auf der Wimperscheibe stehenden Tastborsten, die „Stirntaster“ (t, Fig. 66, 69), dann nach hinten und oben an den (resp. die) dorsalen Taster und endlich nach hinten in den Mittelkörper. Wie die Zahl der Stirntaster, so schwankt auch die Zahl der sie versorgenden Nerven, über die übrigens nur für wenige Arten Untersuchungen vorliegen. Bei den Philodiniden laufen die Cerebralnerven nach vorn teils in den Rüssel hinein, dessen Spitze mit Tastbüscheln versehen ist, teils versorgen sie das Räderorgan und den Mund. Die nach hinten in den Rumpf tretenden Nerven scheinen bei den einzelnen Arten der Philodiniden sich ziemlich verschieden zu verhalten. Bei Callidina magna fand ich nur einen starken Nerv jederseits, von dem Seitenzweige an die Haut ausstrahlten. Zelinka hingegen beschreibt von Call. symbiotica einen ventralen und einen seitlichen Nerv und bei Discopus synaptae sogar noch einen dritten, dorsalen, die aber bei dieser Art alle drei nicht direkt, sondern durch besondere Ganglienzellen mit dem Gehirn zusammenhängen. — Die Stirntaster der Rädertiere treten bald als einzelne Borsten, bald als Büschel von solchen auf, während die Rücken- und Seitentaster stets nur in letzterer Form angetroffen werden. Bei den meisten Gattungen ist der Rückentaster unpaar, wird aber sehr häufig von einem doppelten, erst an der Basis des Tasters verschmelzenden Nerv versorgt, was vielleicht auf eine ursprüngliche Duplicität des Organs hinweist. Die Arten mit paarigem Rückentaster (Asplanchna, Hertwigia, Apsilus) würden dann, obwohl im sonstigen Bau wenig typisch, hierin ein primitives Verhalten bewahrt haben. Bei einigen Arten erhebt sich der dorsale Taster in auffälligem Masse über die Rückenfläche, der er gewöhnlich direkt aufsitzt. So treffen wir ihn bei Lacinularia in Gestalt einer kleinen Doppelpapille, bei Brachionus (Fig. 69, dt) und Anuraea als kurzen Kegel, endlich bei den Philodiniden als stabförmigen retraktilen Tentakel an. In der Regel sitzt der dorsale Taster im Nacken und rückt nur selten, z. B. bei Asplanchna, weiter nach hinten, sodass man ihn zunächst, da er paarig ist, mit den Seitentastern verwechseln kann. Die Dorsal- und Lateraltaster sind für die Rädertiere in hohem Masse charakteristisch, da sie fast konstant angetroffen werden. Ersterer fehlt meines Wissens nur bei Conochilus, letztere nur den Philodiniden und den marinen Seisoniden. Über den Zusammenhang des zum Lateraltaster gehörigen Nervs mit dem Gehirn liegen zurzeit noch keine sicheren Mitteilungen vor, da derselbe wahrscheinlich durch einen im Kopfe liegenden Nervenplexus bewirkt wird. In ihrer Lage am Körper schwanken die Seitentaster insofern, als sie bald weiter nach vorn, bald mehr nach hinten die Kutikula durchbrechen. Die meisten liegen ungefähr am Beginn des hinteren Körperdrittels. Bei Polyarthra finden sie sich dagegen fast am Hinterrande des Körpers, bei Asplanchna und Hydatina in der Mitte, und bei Lacinularia und Melicerta — bei letzterer sind sie, ebenso wie bei Copeus spicatus, zu zwei langen Tentakeln ausgezogen — ungefähr in Schlundhöhe. In allen diesen Gattungen stehen sie hinter dem dorsalen Taster, und nur bei Pterodina liegen alle drei Sinnesorgane auf einer Querlinie.
Von anderweitigen Sinnesorganen kommen nur Augenflecke den Rädertieren häufig zu. Sie sind meist unpaar und sitzen als rötlicher oder schwärzlicher Pigmentfleck der Unterseite des Gehirns an. In anderen Fällen sind sie paarig und gehören dann dem Rande der Wimperscheibe an. Ihr Bau ist ausserordentlich einfach, häufig nur ein Pigmentfleck, dem bei einzelnen Arten noch ein lichtbrechender weisslicher Körper, die sogenannte Linse, sich hinzugesellt.
6. Der Verdauungskanal
zeigt eigentlich bei allen Rotatorien dieselben Verhältnisse, und nur einem Abschnitte desselben, dem Kauapparat, kommt eine grössere morphologische Variabilität zu. Die Mundöffnung liegt nur bei Floscularia und Stephanoceros genau am Vorderende der Längsachse des Körpers, sonst ist sie stets ventralwärts verschoben und kann in einzelnen Fällen (Adineta vaga) sogar ein beträchtliches Stück nach hinten verlagert sein. Ein besonderes Mundrohr, wie wir es für Hydatina kennen lernten, braucht nicht immer vorhanden zu sein, sondern nicht selten (Eosphora, Diglena) schliesst sich der Mastax direkt an die Eingangsöffnung an und kann aus dieser zum Ergreifen der Beute etwas hervorgestossen werden. Anderseits erreicht das Mundrohr bei Floscularia und Stephanoceros eine ungewöhnliche Länge und erweitert sich vor dem Zahnapparat zu einem besonderen kropfartigen Abschnitt. Vielleicht ist der grosse sackartige Raum, in dem bei Asplanchna die Kiefer liegen, ebenfalls als eine Erweiterung des Mundrohres anzusehen. — Die Struktur des Kauapparates ist für die Systematik von hoher Bedeutung. Nach dem Vorgange von Gosse kann man an demselben meist folgende Zusammensetzung beobachten: an einen mittleren, nach hinten gerichteten unpaaren Abschnitt, den „Incus“, heften sich die vorn und seitlich gelegenen paarigen „Mallei“, von denen jeder aus zwei gelenkig mit einander verbundenen Stücken besteht. Das eine von diesen, der Uncus, liegt medianwärts und stellt den eigentlichen Kauapparat dar; er kann in der verschiedensten Gestalt auftreten: als Träger quergestellter Leisten, als spitzer oder gesägter Zahn u. dgl. Das andere Stück sitzt dem Uncus aussen an und dient als Stützbalken für denselben; es wird als Manubrium bezeichnet. Bei nicht wenigen Rädertieren scheint übrigens der Kauapparat weit einfacher gebaut zu sein. Bei den Asplanchnen z. B. (Fig. 68) lässt sich nur der mediane Incus und der paarige gebogene Zahn des Uncus unterscheiden; ein Manubrium fehlt hier vollständig. Noch reduzierter tritt uns der Mastax der Philodiniden entgegen; er besteht im wesentlichen aus zwei halbkreisförmigen, mit derben Querleisten in wechselnder Zahl bedeckten Chitinplatten, die nur längs des Durchmessers eng aneinanderschliessen, und sich um diesen als Gelenkachse gegen einander bewegen. Die den Zahnapparat umhüllende Fleischmasse ist teils muskulöser Natur, teils scheint sie als Speicheldrüsen zu fungieren. — Der Schlund ist meist kurz, nur bei Synchaeta und Asplanchna (Fig. 68, oe) von ansehnlicher Länge. Flimmerzellen werden in ihm sicherlich nicht immer angetroffen, denn gerade die genannten Gattungen schieben die aufgenommene Nahrung durch eine Art peristaltischer Bewegung nach hinten. — Im Mitteldarm oder Magen sind Cilien hingegen stets vorhanden. Mit Ausnahme der Philodiniden wird die Wand desselben stets aus grossen polygonalen Zellen gebildet, die in einer Schicht liegen. Bei jener Abteilung hingegen ist die Magenwand ungewöhnlich dick und besteht aus einer kontinuierlichen Protoplasmamasse mit zahlreichen eingestreuten kleinen Kernen. In den Magenzellen der Rotatorien tritt nicht selten ein braunes Pigment auf, das aber immer nur vorübergehend sich zeigt und bei Nahrungsmangel sofort verschwindet. Dass dasselbe als Leber funktioniert, ist daher sehr unwahrscheinlich. Näher liegt es, den zwei konstant am Vorderende des Magens einmündenden Drüsen eine Förderung der Verdauung zuzuschreiben. Ihre Gestalt ist sehr verschieden, bald kurz birnförmig, bald gestreckt und in mehrere Lappen ausgezogen. Vielleicht haben die bei Triphylus (Diglena) lacustris Ehr. jederseits vorhandenen drei schlauchförmigen Ausstülpungen eine ähnliche Bedeutung. Mit Ausnahme der Gattungen Asplanchna und Paraseison, bei denen der Magen blind geschlossen endet, kommt ein flimmernder Enddarm allen Rädertieren zu. Die sich an ihn anschliessende Kloake entbehrt der Cilien mit Ausnahme einer Art (Rhinops vitrea).
7. Die Exkretionsorgane.
Die Nephridien der Rotatorien zeigen bei allen Arten ein sehr gleichförmiges Verhalten. Man kann an ihnen in der Regel zwei zartwandige enge Längskanäle, die mit einer wechselnden Anzahl von Geisselzellen besetzt sind, und eine gemeinsame kontraktile Blase, welche in die Kloake ausmündet, unterscheiden. Im Gegensatze zu den ganz ähnlich gebauten Nierenorganen der Turbellarien, Trematoden und Cestoden bilden die Nephridien der Rädertiere keine Seitenzweige und keine netzartigen Anastomosen untereinander, sondern jedes „Wassergefäss“ zieht als ein leicht hin und her geschlängelter Kanal von der kontraktilen Blase neben dem Darme nach vorn. In der Regel reichen die Nephridien bis in die Kopfregion herein, wo sie blind endigen und mittels zarter Bindegewebsfäden in ihrer Lage erhalten werden. Nur bei wenigen Arten, z. B. der Gattung Synchaeta, sind sie weit kürzer und reichen kaum über die Mitte des Körpers hinaus. Bei vier verschiedenen Rädertieren stehen ausnahmsweise beide Nephridien im Kopfe durch einen Querkanal mit einander in Verbindung; es sind dies zumteil im System sehr weit getrennte Arten, nämlich Hydatina senta, Lacinularia socialis, eine Floscularia-Spezies und Apsilus lentiformis, sodass diesem Quergefäss vermutlich noch eine weitere Verbreitung zukommt. Jedes Wassergefäss pflegt an zwei oder drei Stellen sich knäuelförmig zu verschlingen, wobei die die Wandung der Schlingen bildenden Zellen zu einer kontinuierlichen Protoplasmamasse verschmelzen. In den so entstehenden Anschwellungen gelingt es noch am leichtesten die Kerne der Wandzellen zu erblicken, welche in den unverschlungenen Partien der Nephridien wegen ihrer Kleinheit und Zerstreutheit schwer zu erkennen sind. Zellgrenzen haben sich zwischen den Wandzellen bis jetzt nicht nachweisen lassen. Die eigenartigen Geisselzellen der Nephridien, wegen ihrer flackernden Bewegungen auch „Zitterorgane“ oder „Zitterflammen“ genannt, sitzen in kleinen zartwandigen Ausstülpungen entweder direkt oder mittels eines kleinen Stieles dem Nierenschlauche an. Jede Nephridie besitzt in der Regel fünf bis zehn derselben — die Zahl ist für ein und dieselbe Art konstant —, die sich in mehr oder weniger gleichmässigen Abständen auf das ganze Organ verteilen. Bei den Asplanchnen wird die Anzahl derselben meist eine viel grössere, und es tritt dann eine Spaltung jeder Nephridie in zwei vorn und hinten zusammenhängende Kanäle ein, von denen der eine dicht mit Zitterorganen besetzt ist (Fig. 68). Der feinere Bau dieser Geisselzellen ist bis in die jüngste Zeit Gegenstand lebhaftester Controverse gewesen, die sich vornehmlich darauf bezog, ob dieselben am freien Ende offen oder geschlossen seien. Nach unserer Ansicht ist unzweifelhaft das Letztere der Fall. — In die pulsierende Blase münden die Nephridien mittels einer scharf umschriebenen runden Öffnung ein. Die Kontraktilität wird durch ein Netzwerk feiner Muskeln, die in der Wandung sitzen, hervorgerufen. Bei einigen Rotatorien (Lacinularia, Tubicolaria, Pterodina) fehlt das gemeinsame Harnreservoir, und die Nephridien münden direkt in die Kloake. Endlich findet sich noch eine auffallende Modifikation bei Conochilus volvox und den meisten Philodiniden. Hier hat sich ein Teil der Kloake zur Harnblase umgewandelt und pulsiert ebenso regelmässig wie die gewöhnlichen, von der Kloake scharf abgesetzten Reservoire.
8. Die Klebdrüsen.
Von diesen sind in der Regel, den zwei Zehen entsprechend, nur zwei vorhanden. Mit der Zahl der Zehen wächst aber auch häufig diejenige der Drüsenschläuche; so finden wir z. B. bei der sechszehigen Callidina parasitica und bei der am Schwanzende mit zehn kleinen Zäpfchen besetzten Call. symbiotica vier Klebdrüsen. Das Sekret der Fussdrüsen kann vielfach zu dünnen, elastischen Fäden ausgezogen werden, mit denen sich das Tierchen vorübergehend vor Anker legt. Eine ganz isoliert dastehende Umbildung haben die Klebdrüsen bei Monocerca und Diurella erfahren, bei denen sie zu einer mit kontraktiler Wandung versehenen Blase geworden sind.
9. Der Keimdotterstock und die Eibildung.
Das weibliche Geschlechtsorgan zeigt bei allen Rädertieren, mit Ausnahme der marinen, auch in anderer Hinsicht sehr abweichenden Seisoniden, eine Zusammensetzung aus zwei verschieden funktionierenden Abschnitten. Der eine derselben ist so gross, dass er fast ausschliesslich die Masse der Sexualdrüse ausmacht. Er liefert nur die Nährsubstanzen, welche das heranwachsende Ei nötig hat, und wird daher als Dotterstock bezeichnet. Der zweite, sehr viel kleinere Abschnitt ist der Erzeuger der Eizellen und führt dementsprechend den Namen Eierstock. Über Bau und Physiologie dieser beiden Teile des weiblichen Geschlechtsapparates ist zurzeit kaum mehr bekannt, als von Hydatina senta geschildert wurde. Es ist daher hier nur Folgendes nachzutragen. Die Mehrzahl aller Rädertiere hat ein unpaares Geschlechtsorgan, also nur einen Keimstock und einen Dotterstock. Man kann sie als „Monogononten“ den Philodiniden gegenüberstellen, da diese „digonont“ sind, d. h. ein rechtes und ein linkes Ovar, also zwei Keimstöcke, zwei Dotterstöcke und zwei Ovidukte, besitzen. Keimstock und Dotterstock haben nun bei jeder Spezies eine konstante Lage zu einander, infolgedessen die Eier auch immer an derselben Seite des dotterbildenden Abschnittes zur Entwickelung gelangen. Die Stellung beider ist aber bei verschiedenen Arten eine verschiedene, und zwar findet sich der Keimstock bald dem Vorder-, bald dem Hinter-, bald endlich dem Seitenrande des Dotterstockes angelagert. Im ersten Falle liegt der Keimstock meist sehr unsymmetrisch, nämlich der linken Ecke des Dotterstockes angeschmiegt, wenn man von unten auf denselben blickt. So situiert kommt er z. B. bei den Gattungen Hydatina, Euchlanis, Brachionus, Triarthra u. a. vor. Der zweite Typus wird durch Polyarthra, Conochilus, Asplanchna u. a. vertreten. Unsere Abbildung 68 zeigt, wie der Dotterstock der Asplanchna myrmeleo nicht die gewöhnliche Sackform aufweist, sondern sich zu einem langen, hufeisenförmig gekrümmten Bande gestreckt hat, dem in der Mitte der Hinterseite der kleine rundliche Eierstock anliegt. Hier finden wir auch nicht die typische Achtzahl der Kerne, sondern eine weit grössere. Dem seitlichen und medianen Rande des Dotterstockes ist der Keimstock bei den Philodiniden angelagert (Fig. 64), ein Verhalten, das auch wahrscheinlich noch anderen Gattungen zukommen dürfte. Sehr interessant werden viele Philodiniden, z. B. der gemeine Rotifer vulgaris, dadurch, dass ihnen ein Ovidukt abgeht. An den Keimdotterstock setzt sich zwar hinten und vorn ein Faden an, der aber lediglich als Aufhängeapparat dient. Die Folge ist, dass die Eier in die Körperhöhle fallen und hier ihre Entwickelung durchmachen. Diese geht sehr rasch vor sich, und daher findet man selten einen Rotifer vulgaris, der nicht in seiner Leibeshöhle ein oder zwei munter sich umherbewegende und völlig ausgebildete Junge neben einigen Embryonen beherbergte. Da eine besondere Geschlechtsöffnung fehlt, kann die Geburt nur auf eine etwas gewaltsame Weise geschehen, und in der That schieben sich die Tierchen mit dem Kopfe voran durch die Wand der Kloake und dann durch den After ins Freie. Die der Mutter dadurch zugefügte Risswunde scheint bald wieder zu heilen.
Die zwei Eisorten, welche wir bei Hydatina kennen lernten, die hartschaligen Dauereier und die gewöhnlichen, weichhäutigen scheinen allen Monogononten zuzukommen. Bei den Erdrotatorien hingegen sind Dauereier noch nicht beobachtet worden, da sie an die Austrocknung in anderer Weise angepasst sind. Die derbe Schale der Dauereier ist häufig mit sehr zierlichen Skulpturen: Punkten, Stacheln, Haaren u. dergl. besetzt. Sie entwickeln sich bald schon nach einigen Wochen, bald erst nach Monaten. Sie werden meines Wissens stets abgesetzt, während die gewöhnlichen Eier bei vielen Gattungen (Brachionus, Anuraea) dem Rücken angeheftet und so herumgetragen werden.
III. Die männlichen Rotatorien.
Dieselben Verhältnisse, welche die charakteristischen Unterschiede der männlichen Hydatinen von den weiblichen bilden, kehren bei allen übrigen Rädertieren wieder. Die Männchen bieten, soweit sie überhaupt bekannt sind, was nur für eine relativ kleine Anzahl von Gattungen (etwa 30) zutrifft, in ihrer Organisation viel einfachere Verhältnisse dar als die zugehörigen Weibchen, und ist dies so zu erklären, dass sie einerseits überhaupt auf niedrigerer phyletischer Entwickelungsstufe als die Weibchen stehen geblieben, anderseits auch in Folge der untergeordneten Rolle, die sie seit dem Auftreten der Parthenogenese im Geschlechtsleben spielen, rückgebildet sind. Ersteres macht die grosse Gleichförmigkeit, welche die Mehrzahl der Männchen in Gestalt und Organisation aufweist, verständlich, während auf letzteres die geringe Körpergrösse, das Fehlen einer Mundöffnung und die Rückbildung des Darmkanales und des Räderapparates zurückzuführen ist. Bei den verschiedenen Gattungen ist der Geschlechtsdimorphismus in verschieden starkem Grade ausgeprägt. Bei den marinen Seisoniden haben sich die ursprünglichen Verhältnisse erhalten: Männchen und Weibchen stehen auf gleicher Organisationshöhe und sind auch annähernd gleich häufig. Bei den Euchlaniden besitzen die Männchen noch den Panzer in derselben Gestalt wie die Weibchen, aber sie sind etwas kleiner als diese, und der Darm ist auf einen unregelmässigen Zellstrang reduziert. In allen übrigen Gattungen haben die Männchen eine weiche Haut, auch wenn die Weibchen gepanzert sind, und einen sehr viel kleineren, walzenförmigen Körper, der sich nach hinten verjüngt und, wie bei den Weibchen, häufig mit zwei kleinen Zehen endet. Sehr auffallend ist das ♂ der Asplanchna Sieboldii dadurch, dass es vier kegelförmige Körperanhänge besitzt, die der einen Form[XIV] von ♀ abgehen. Der Räderapparat erinnert manchmal (Hydatina) noch an denjenigen der Weibchen, meist aber ist er stark rückgebildet. Ein Stirntrichter ist nur bei der männlichen Hydatina angedeutet, während sonst die Wimperscheibe stark halbkugelig vorspringt und keine Spur der ursprünglichen Mundöffnung erkennen lässt. Die im rudimentären Darm vieler Männchen vorkommenden schwarzen Körnerhaufen — wahrscheinlich bestehen sie aus Kalk — treten bei ganz jungen Weibchen einzelner Gattungen (Brachionus) ebenfalls im Enddarm auf und beweisen die Richtigkeit der Deutung jenes Zellstranges als eines rückgebildeten Verdauungskanales. Die primitivere Organisation der Männchen spricht sich im Nervensystem darin aus, dass die Tastbüschel nie auf besonderen Hügeln oder Tentakeln stehen und im Exkretionsapparat in dem Fehlen der kontraktilen Blase bei manchen Gattungen (Hydatina, Brachionus), deren Weibchen eine solche besitzen; doch giebt es auch Männchen mit einer Harnblase (Asplanchna, Apsilus). Ein dorsaler einstülpbarer Penis ist nur bei einzelnen Gattungen (Hydatina, Brachionus) vorhanden, bei anderen scheint das hintere, verjüngte Körperende als solcher zu funktionieren (Conochilus, Polyarthra, Anuraea). Über die Begattung sind unsere Kenntnisse noch äusserst mangelhaft. Dem bei Hydatina über sie Gesagten sei hier hinzugefügt, dass Weber neuerdings bei Diglena catellina[XV] beobachtet haben will, wie der Penis direkt in die weibliche Kloake geführt wurde. Merkwürdigerweise kennt man von den gemeinsten Arten unter den Philodiniden, z. B. von Rotifer vulgaris, die Männchen immer noch nicht, und fast scheint es, als ob dieselben hier ganz fehlten, und die Fortpflanzung ausschliesslich parthenogenetisch erfolgte.
IV. Einige Bemerkungen über die Biologie der Rädertiere.
Planmässige und allseitige Studien zur Biologie der Rotatorien fehlen fast ganz, sodass ich an dieser Stelle nur auf einige wenige Verhältnisse eingehen kann. — Über die Lebensdauer der Wasserrotatorien ist nur das bekannt, was S. 295 über Hydatina senta gesagt wurde. Bei den Erdrotatorien wird sich dieselbe überhaupt schwerlich ermitteln lassen, da sie je nach Länge und Zahl der Trockenperioden sehr verschieden ausfallen wird. Aus den an Hydatina gemachten Beobachtungen scheint hervorzugehen, dass die Lebenskraft der Weibchen erlischt, wenn der Keimstock sich erschöpft hat. Die Männchen hingegen führen nur ein ganz ephemeres, zwei- bis dreitägiges Dasein. — Als Nahrung dienen den Rädertieren die verschiedenartigsten Mikroorganismen: Bakterien, Flagellaten, Diatomeen, Infusorien, kleine Algen u. dergl. Einige Arten haben eine schmarotzende Lebensweise angenommen und sich dadurch an besondere Ernährungsbedingungen gewöhnt. So lebt Proales (Notommata) Werneckii Ehr. im erwachsenen Zustande in den Kolben von Vaucheria und nährt sich von dem Protoplasma dieser Alge. Notommata parasita Ehr. und Hertwigia volvocicola Plate leben in Volvoxkolonien. Die genannten Arten sind aber auch im stande, sich von ihrem Wirte zu entfernen und sind daher nur als zeitweilige Schmarotzer anzusehen. Albertia vermiculus Duj. hingegen ist zum echten Entoparasiten geworden, der dauernd in der Leibeshöhle des Regenwurmes und im Darme verschiedener Nacktschnecken angetroffen wird. Eine Anzahl Rädertiere werden konstant auf gewissen Tieren oder Pflanzen angetroffen, weil bestimmte Lebensgewohnheiten derselben ihnen einen leichten Nahrungserwerb sichern. Sie sind für den Wirt völlig indifferent, schaden ihm weder, noch nützen sie ihm. Man hat ein derartiges Zusammenleben zweier verschiedener Organismen als Raumparasitismus bezeichnet, eine nicht gerade glückliche Benennung, da man von Parasiten nur dann reden kann, wenn der eine Organismus durch den andern benachteiligt wird. Zutreffender ist der Ausdruck „Raumsymbiose“, wenn die von dem einen Lebewesen geschaffenen räumlichen Verhältnisse dem andern zu gute kommen. Solche Raumsymbionten sind unter den Rädertieren die Seisoniden, welche an den Extremitäten der marinen Krebsgattung Nebalia leben, die Callidina parasitica, welche in derselben Weise dem Bachflohkrebse sich anheftet, der auf der Haut von Synapten lebende Discopus synaptae Zel. und endlich Callidina symbiotica Zel. und Call. Leitgebii Zel., welche konstant auf gewissen Lebermoosen der Gattungen Radula, Lejeunia, Frullania angetroffen werden und hier in kleinen, von bestimmten Blattteilen gebildeten Höhlen, in denen die Feuchtigkeit sich relativ lange erhält, leben. — Alle Raumsymbionten leben in der Regel in einer grössern Individuenanzahl zusammen. Das Gleiche gilt von vielen festsitzenden Rädertieren, z. B. der Lacinularia socialis, der Melicerta ringens; indem die jungen Tierchen sich neben den alten niederlassen, entsteht eine Art Kolonie. Echte Kolonien werden nur von einem Rotator, dem Conochilus volvox, gebildet. Sämtliche Individuen einer solchen stossen im Zentrum einer Gallertkugel zusammen und sind selbst radiär gerichtet. Der Ähnlichkeit, welche diese beständig rotierenden Kugeln mit einem Volvox globator haben, verdanken die Tierchen ihren Speziesnamen. — Gallertumhüllungen von Röhrenform werden auch von anderen festsitzenden Arten abgeschieden, z. B. von dem schönen Stephanoceros Eichhornii. Melicerta ringens kann sogar den Anspruch erheben, ihr Gehäuse mit Hilfe eines Kunsttriebes zu bauen. Sie weiss die herbeigestrudelten Partikelchen in einer becherförmigen Vertiefung des Kopfes zu runden Ballen zu formen und diese mittels einer Gallertausscheidung zu einer sehr regelmässigen Wohnröhre zusammenzuheften. — Alle festsitzenden Rädertiere machen natürlich in der Jugend ein freibewegliches Stadium durch. Zwei Arten der Lokomotion werden bei den Rädertieren beobachtet. Weitaus die meisten schwimmen mit Hilfe ihres Räderapparates unter beständigen Drehungen um die Längsachse herum, bald schneller, bald langsamer. Besonders rasch bewegen sich so alle Männchen durch das Wasser. Die wenigen Formen mit ventraler Wimperscheibe (Adineta vaga, Notommata tardigrada) kriechen ohne Rotation über die Unterlage. Ein spannerraupenartiges Kriechen ist ausser dem Schwimmvermögen den Philodiniden eigen, wobei sie sich abwechselnd mit den Fusszehen und der Rüsselspitze anheften. — Unter allen biologischen Erscheinungen der Rädertiere hat keines seit den Zeiten eines Leeuwenhoek die Aufmerksamkeit der Naturforscher mehr gefesselt als die wunderbare Lebenszähigkeit und die schier unverwüstliche Lebenskraft, welche einigen derselben, nämlich den Erdrotatorien, innewohnt. Die Fähigkeit, nach einer Periode völliger Austrocknung auf Wasserzusatz wieder aufzuleben, kommt nur den zwischen Erde und Moos lebenden Philodiniden zu. Alle echten Wasserbewohner und auch schon die ständig im Wasser lebenden Philodiniden[XVI] gehen hingegen beim Verdunsten des Wassers rettungslos zu Grunde. Diesen Tieren ist eben in den Dauereiern ein besonderes Anpassungsmittel zur Erhaltung der Art gegeben. Sehr merkwürdig ist es, dass sich viele Erdrotatorien so sehr an ein intermittierendes Leben gewöhnt zu haben scheinen, dass ihnen zeitweilige Trockenperioden geradezu zum Bedürfnis geworden sind. Thut man nämlich philodinidenhaltiges Moos in ein Wassergefäss, so beobachtet man bei vielen Arten nach einigen Tagen den Eintritt des Todes. Obwohl Wasserorganismen und obwohl nur im flüssigen Elemente ihrer Lebenskräfte sich erfreuend, sterben die Tiere dennoch bei längerem Aufenthalte im Wasser ab, weil ihnen ein solcher in ihren natürlichen Existenzbedingungen nie zu Teil wird. Die Lebenszähigkeit der Erdrotatorien erweist sich nun nicht bloss beim Verdunsten des Wassers, sondern auch gegenüber ungewöhnlich hohen oder niedrigen Temperaturen, denn beiden muss die auf schwarzem Basaltfelsen zwischen Flechten lebende, der glühenden Augustsonne nicht minder als der Kälte der Dezembernacht blossgestellte Callidine gewachsen sein, soll die Art nicht zu Grunde gehen. So verträgt die Callidina symbiotica, wie Zelinka gezeigt hat, im eingetrockneten Zustand eine Kälte von − 20° C. und eine Hitze von + 70°, und mit anderen Philodiniden hat man ähnliche Erfahrungen gemacht.
V. Überblick über das System der Rotatorien.
Sieht man das System der Tiere als Ausdruck ihrer phyletischen Entwickelung, ihrer Stammesgeschichte, an, so lassen sich die Rädertiere nur mit manchen Bedenken in einem der Endzweige des natürlichen Stammbaumes unterbringen. Ihre Organisation ist nämlich so eigenartig, dass sie sich an keine Tiergruppe bei ausschliesslicher Berücksichtigung der erwachsenen Individuen derselben anschliessen lassen. Am ungezwungensten reihen sie sich noch auf Grund ihres Cilienapparates und ihrer Nephridien an die Turbellarien an. Verständlich wird ihr Verhältnis zu den Evertebraten erst dann, wenn man in ihnen eine sehr alte, primitive Tiergruppe sieht, deren Ahnen den Ausgangspunkt für die Phylogenie einer ganzen Anzahl anderer Tierklassen gebildet haben. Zu dieser Ansicht drängt der Umstand, dass bei sehr vielen Anneliden, Turbellarien, Mollusken und Bryozoen im Laufe der Ontogenie Larven auftreten, die eine ausgesprochene Ähnlichkeit mit Rädertieren aufweisen, Larven, die man unbedingt für Rotatorien halten würde, wenn sie in diesem Zustande geschlechtsreif würden und einen Kauapparat besässen. Man nimmt daher zurzeit an, dass jene Tierklassen und die Rädertiere phyletisch in einer rotatorienartigen Stammform wurzeln, welche als „Trochophora“ bezeichnet wird.
Die Rotatorien zerfallen, wenn wir von den marinen Seisoniden absehen, in zwei natürliche Gruppen:
1. Digononta seu Philodinida: Geschlechtsorgane paarig, jedes mit oder ohne Ovidukt. Mitteldarm von einem Zellsyncytium gebildet. Stets ohne laterale Taster. Am Rücken ein grosser, einstülpbarer Rüssel, welcher die spannerraupenartige Bewegung vermittelt. Teils Erd-, teils echte Wasserbewohner. Gattungen: Rotifer, Philodina, Actinurus, Callidina. — Adineta.
2. Monogononta: Ovar unpaar, stets mit Ovidukt. Mitteldarm aus grossen Zellen gebildet. Mit lateralen und dorsalen Tastern. Ohne Rückenrüssel. Schwimmend oder festsitzend. Nur ständige Wasserbewohner. — Hierher gehört die Mehrzahl aller Rädertiere, deren weitere systematische Einteilung am besten aus Hudson-Gosses Monographie zu ersehen ist. Wir erwähnen nur die Hauptfamilien:
a) Melicertida seu Rhizota. Im Alter festsitzend. Ohne Zehen. Hinteres Körperende nicht einziehbar. Gattungen: Floscularia, Stephanoceros, Melicerta, Lacinularia, Limnias, Oecistes, Conochilus.
b) Illoricata. Haut weich. Gattungen: Asplanchna, Synchaeta, Hydatina, Notommata.
c) Loricata. Mit Panzer. Gattungen: Rattulus, Dinocharis, Salpina, Euchlanis, Lepadella, Colurus, Pterodina, Brachionus, Anuraea.
d) Scirtopoda. Mit scharf abgesetzten, beweglichen Anhängen. Gattungen: Polyarthra, Triarthra, Hexarthra, Pedetes, Pedalion.
Figurenerklärung.
Alle Abbildungen sind bei starker Vergrösserung gezeichnet. Die Buchstaben bedeuten:
a After
c Kutikula
c.v Kontrakt. Blase
dst Dotterstock
dt dorsaler Taster
dr Magendrüse
est Eierstock
f Fussdrüse
g Gehirn
hg Hypodermis
kl Kloake
l lateraler Taster
ma Kauapparat
mu Muskel
ne Nephridie
o Augenfleck
oe Oesophagus
ov Ei
re Enddarm
r Räderapparat
sto Magen
t Tastborste
te Hoden
ut Uterus
z Zitterflamme (Geisselzelle).
Litteratur.
1) F. Cohn, Die Fortpflanzung der Rädertiere. Zeitschr. f. wiss. Zool. VII, 1856, p. 431–486.
2) E. v. Daday, Morphologisch-physiol. Beiträge zur Kenntnis der Hexarthra polyptera. Budapest 1886.
3) C. Eckstein, Die Rotatorien der Umgegend von Giessen. Zeitschr. f. wiss. Zool. XXXIX, 1884, p. 343–443.
4) G. Chr. Ehrenberg, Die Infusionstierchen als vollkommene Organismen. Leipzig 1838.
5) H. Grenacher, Einige Beobachtungen über Rädertiere. Zeitschr. f. wiss. Zool. XIX, 1869, p. 483–497.
6) C. T. Hudson u. P. H. Gosse, The Rotifera or Wheel-Animalcules. 2 Bde. London 1886 und 1 Supplementband 1889. Grundlegend für die Systematik.
7) F. Leydig, Über den Bau u. die systematische Stellung d. Räd. Zeitschr. f. wiss. Zool. VI, 1854, p. 1–120.
8) L. Plate, Beiträge z. Naturgesch. d. Rot. Jenaische Zeitschr. f. Nat. XIX, 1885, p. 1–120.
9) L. Plate, Untersuch. einiger an den Kiemenblättern des Gammarus pulex lebenden Ektoparasiten. Zeitschr. f. wiss. Zool. XLIII, p. 229–235.
10) L. Plate, Über die Rotatorienfauna des bottnischen Meerbusens etc. ibid. XLIX, p. 1–42.
11) G. Tessin, Über Eibildung und Entwickelung der Rotatorien. ibid. XLIV, 1886.
12) E. F. Weber, Notes sur quelques Rotateurs des Environs de Genève. Arch. de Biologie. VIII, 1888.
13) C. Zelinka, Studien über Rädertiere. I. Über die Symbiose und Anatomie von Rot. aus dem Genus Callidina. Zeitschr. f. wiss. Zool. XLIV.
14) C. Zelinka, II. Der Raumparasitismus u. die Anatomie von Discopus Synaptae. ibid. XLVII.