III. Die Gasträatheorie.
Reading edition
Die ersten Vorgänge der individuellen Entwicklung, welche nach erfolgter Befruchtung der Eizelle und Bildung der Stammzelle eintreten, sind im ganzen Tierreiche wesentlich dieselben; sie beginnen überall mit der sogenannten Eifurchung und Keimblätterbildung. Nur die niedersten und einfachsten Tiere, die Urtiere oder Protozoen, machen davon eine Ausnahme; denn sie bleiben zeitlebens einzellig. Zu diesen Urtieren gehören die Amöben, Gregarinen, Rhizopoden, Infusorien usw. Da ihr ganzer Organismus nur durch eine einzige Zelle repräsentiert wird, können sie niemals „Keimblätter“, d. h. bestimmt geformte Zellenschichten bilden. Alle übrigen Tiere dagegen, alle Gewebetiere oder Metazoen (wie wir sie im Gegensatz zu jenen Protozoen nennen) bilden durch wiederholte Teilung der befruchteten Eizelle echte Keimblätter. Das gilt ebensowohl von den niederen Nesseltieren und Wurmtieren, wie von den höher entwickelten Weichtieren, Sterntieren, Gliedertieren und Wirbeltieren.
Bei allen diesen Metazoen oder vielzelligen Tieren sind die wichtigsten Vorgänge der Keimung im wesentlichen gleich, obwohl sie, äußerlich betrachtet, oft sehr verschieden erscheinen. Überall zerfällt die Stammzelle, welche aus der befruchteten Eizelle hervorgegangen ist, zunächst durch wiederholte Teilung in eine große Anzahl von einfachen Zellen. Diese Zellen sind alle direkte Nachkommen der Stammzelle und werden aus später zu erörternden Gründen als Furchungszellen oder „Furchungskugeln“ bezeichnet (Blastomera oder Segmentella). Der wiederholte Teilungsprozeß der Stammzelle, durch welchen die Furchungszellen entstehen, ist schon lange unter dem Namen der Eifurchung oder schlechtweg „Furchung“ (Segmentatio) bekannt. Früher oder später treten die Furchungszellen zur Bildung einer runden (ursprünglich kugeligen) Keimblase (Blastula) zusammen; dann aber sondern sie sich in zwei wesentlich verschiedene Gruppen und ordnen sich in zwei getrennte Zellenschichten: die beiden primären Keimblätter. Diese umschließen eine Verdauungshöhle, den Urdarm, mit einer Öffnung, dem Urmund. Die bedeutungsvolle Keimform, welche diese ältesten Primitivorgane besitzt, nennen wir Gastrula, den Vorgang ihrer Entstehung Gastrulation. Dieser ontogenetische Vorgang besitzt die höchste Bedeutung und ist der eigentliche Ausgangspunkt für die Gestaltung des vielzelligen Tierkörpers.
Die fundamentalen Keimungsprozesse der Eifurchung und der Keimblätterbildung sind erst in den letzten dreißig Jahren vollkommen klar erkannt und in ihrer wahren Bedeutung richtig gewürdigt worden. Sie bieten in den verschiedenen Tiergruppen mancherlei auffallende Verschiedenheiten dar, und es war nicht leicht, die wesentliche Gleichheit oder Identität derselben im ganzen Tierreiche nachzuweisen. Erst nachdem ich 1872 die Gasträatheorie aufgestellt und später (1875) alle die einzelnen Formen der Eifurchung und Gastrulabildung auf eine und dieselbe Grundform zurückgeführt hatte, konnte jene wichtige Identität als wirklich bewiesen angesehen werden. Es ist damit ein einheitliches Gesetz gewonnen, welches die ersten Vorgänge der Keimung bei sämtlichen Tieren beherrscht.
Der Mensch verhält sich in bezug auf diese ersten und wichtigsten Vorgänge jedenfalls durchaus gleich den übrigen höheren Säugetieren, und zunächst den Affen. Da der menschliche Keim oder Embryo selbst noch in einem viel späteren Stadium der Ausbildung, wo bereits Gehirnblasen, Augen, Gehörorgane, Kiemenbogen usw. angelegt sind, nicht wesentlich von dem gleichgeformten Keime der übrigen höheren Säugetiere verschieden ist, so dürfen wir mit voller Sicherheit annehmen, daß auch die ersten Vorgänge der Keimung, der Eifurchung und Keimblätterbildung dieselben sind. Wirklich beobachtet sind diese Verhältnisse allerdings bisher noch nicht. Da aber sowohl die jüngsten wirklich beobachteten menschlichen Embryonen (in Form von Keimblasen), als auch die darauf folgenden weiter entwickelten Keimformen mit denjenigen des Kaninchens, des Hundes und anderer höherer Säugetiere wesentlich übereinstimmen, so wird kein vernünftiger Mensch daran zweifeln, daß auch die Eifurchung und Keimblätterbildung hier geradeso wie dort verläuft.
Nun ist aber die besondere Form, welche die Eifurchung und Keimblätterbildung bei den Säugetieren besitzt, keineswegs die ursprüngliche, einfache und palingenetische Form der Keimung. Vielmehr ist dieselbe infolge von zahlreichen embryonalen Anpassungen sehr stark abgeändert, gestört oder cenogenetisch modifiziert. Wir können dieselbe daher unmöglich an und für sich allein verstehen. Vielmehr müssen wir, um zu diesem Verständnis zu gelangen, die verschiedenen Formen der Eifurchung und Keimblätterbildung im Tierreiche vergleichend betrachten; und vor allem müssen wir die ursprüngliche, palingenetische Form derselben aufsuchen, aus welcher die abgeänderte, cenogenetische Form der Säugetierkeimung erst viel später allmählich entstanden ist.
Diese ursprüngliche, palingenetische Form der Eifurchung und Keimblätterbildung besteht im Stamme der Wirbeltiere, zu welchem der Mensch gehört, heutzutage einzig und allein noch beim niedersten und ältesten Gliede dieses Stammes, bei dem wunderbaren Lanzettierchen oder Amphioxus. Dieselbe palingenetische Form der Keimung finden wir aber in ganz gleicher Weise auch noch bei vielen niederen, wirbellosen Tieren vor, so z. B. bei der merkwürdigen Seescheide (Ascidia), bei der Teichschnecke (Limnaeus), beim Pfeilwurm (Sagitta), ferner bei sehr vielen Sterntieren und Nesseltieren, so z. B. beim gewöhnlichen Seestern und Seeigel, bei vielen Medusen und Korallen und bei den einfachsten Schwämmen (Olynthus). Wir wollen hier als Beispiel die palingenetische Eifurchung und Keimblätterbildung einer achtzähligen Einzelkoralle betrachten, welche ich 1873 im Roten Meere entdeckt und in meinen „Arabischen Korallen“ als Monoxenia Darwinii beschrieben habe.
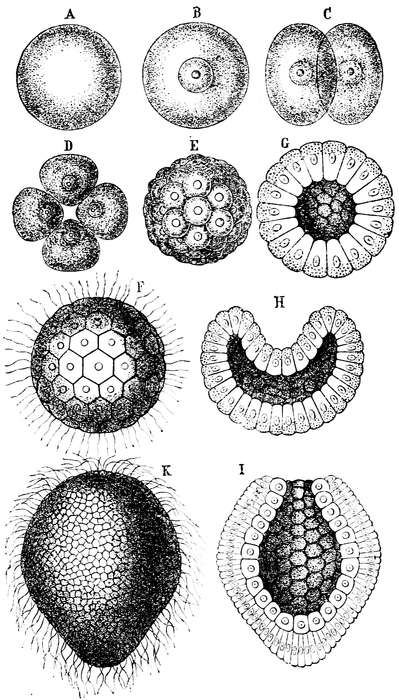
Fig. 1. Gastrulation einer Koralle (Monoxenia Darwinii).
Die befruchtete Eizelle dieser Koralle (siehe die Abbildungen S. 93) zerfällt zunächst durch Teilung in zwei gleiche Zellen (C). Zuerst teilt sich der Kern der Stammzelle und das anhängende Centrosoma in zwei gleiche Hälften, diese stoßen sich ab, weichen auseinander und wirken als Anziehungsmittelpunkte auf das umgebende Protoplasma; infolgedessen schnürt sich das letztere durch eine Ringfurche ringsherum ein und geht ebenfalls in zwei gleiche Hälften auseinander. Jede der beiden so entstandenen „Furchungszellen“ zerfällt auf dieselbe Weise wiederum in zwei gleiche Zellen, und zwar liegt die Trennungsebene dieser beiden letzteren senkrecht auf derjenigen der beiden ersteren (Fig. D). Die vier gleichen Furchungszellen (die Enkelinnen der Stammzelle) liegen in einer Ebene. Jetzt teilt sich jede derselben abermals in zwei gleiche Hälften, und wiederum geht die Teilung des Zellkernes derjenigen des umhüllenden Protoplasma voraus. Die so entstandenen acht Furchungszellen zerfallen auf die gleiche Weise wieder in sechzehn. Aus diesen werden durch abermalige Teilung 32 Furchungszellen. Indem jede von diesen sich halbiert, entstehen 64, weiterhin 128 Zellen usw. Das Endresultat dieser wiederholten gleichmäßigen Zweiteilung ist die Bildung eines kugeligen Haufens von gleichartigen Furchungszellen, und diesen nennen wir Maulbeerkeim (Morula). Die Zellen liegen so dicht gedrängt aneinander, wie die Körner einer Maulbeere oder Brombeere, und daher erscheint die Oberfläche der Kugel im ganzen höckerig.
Nachdem die Eifurchung dergestalt beendigt ist, verwandelt sich der dichte Maulbeerkeim in eine hohle kugelige Blase. Wässerige Flüssigkeit oder Gallerte sammelt sich in der Mitte der dichten Kugel an; die Furchungszellen weichen auseinander und begeben sich alle an die Oberfläche derselben. Hier platten sie sich durch gegenseitigen Druck vielflächig ab, nehmen die Gestalt von abgestutzten Pyramiden an und ordnen sich in eine einzige Schicht regelmäßig nebeneinander (Fig. F, G). Diese Zellenschicht heißt die Keimhaut (Blastoderma); die gleichartigen Zellen, welche dieselbe in einfacher Lage zusammensetzen, nennen wir Keimhautzellen, und die ganze hohle Kugel, deren Wand die letzteren bilden, heißt Keimhautblase, auch kurz „Keimblase“ oder „Blasenkeim“ (Blastula). Der innere Hohlraum der Kugel, der mit klarer Flüssigkeit oder Gallerte gefüllt ist, heißt „Furchungshöhle“ oder Keimhöhle.
Bei unserer Koralle, wie bei vielen anderen niederen Tieren, beginnt schon jetzt der junge Tierkeim sich selbständig zu bewegen und im Wasser umherzuschwimmen. Es wächst nämlich aus jeder Keimhautzelle ein dünner und langer, fadenförmiger Fortsatz hervor, eine Peitsche oder Geißel; und diese führt selbständig langsame, später raschere Schwingungen aus (Fig. F). Jede Keimhautzelle wird so zu einer schwingenden „Geißelzelle“. Durch die vereinigte Kraft aller dieser schwingenden Geißeln wird die ganze kugelige Keimhautblase drehend oder rotierend im Wasser umhergetrieben. Bei vielen anderen Tieren, insbesondere bei solchen, wo sich der Keim innerhalb geschlossener Eihüllen entwickelt, bilden sich die schwingenden Geißelfäden an den Keimhautzellen erst später oder kommen überhaupt nicht zur Ausbildung. Die Keimhautblase kann wachsen und sich ausdehnen, indem sich die Keimhautzellen durch fortgesetzte Teilung (in der Kugelfläche!) vermehren und im inneren Hohlraum noch mehr Flüssigkeit ausgeschieden wird. Es gibt noch heute einige Organismen, welche auf der Bildungsstufe der Blastula zeitlebens stehenbleiben, Hohlkugeln, welche durch Flimmerbewegung im Wasser umherschwimmen und deren Wand aus einer einzigen Zellenschicht besteht: die Kugeltierchen (Volvox), die Flimmerkugeln (Magosphaera, Synura) und andere.
Jetzt tritt ein sehr wichtiger und merkwürdiger Vorgang ein, nämlich die Einstülpung der Keimblase (Fig. H). Aus der Kugel mit einschichtiger Zellenwand wird ein Becher mit zweischichtiger Zellenwand (Fig. G, H, I). An einer bestimmten Stelle der Kugeloberfläche bildet sich eine Abplattung, die sich zu einer Grube vertieft. Diese Grube wird tiefer und tiefer; sie wächst auf Kosten der inneren Keimhöhle oder Furchungshöhle. Die letztere nimmt immer mehr ab, je mehr sich die erstere ausdehnt. Endlich verschwindet die innere Keimhöhle ganz, indem sich der innere, eingestülpte Teil der Keimhaut (oder die Wand der Grube) an den äußeren, nicht eingestülpten Teil derselben innig anlegt. Zugleich nehmen die Zellen der beiden Teile verschiedene Gestalt und Größe an; die inneren Zellen werden mehr rundlich, die äußeren mehr länglich (Fig. I). So bekommt der Keim die Gestalt eines becherförmigen oder krugförmigen Körpers, dessen Wand aus zwei verschiedenen Zellenschichten besteht, und dessen innere Höhlung sich am einen Ende (an der ursprünglichen Einstülpungsstelle) nach außen öffnet. Diese höchst wichtige und interessante Keimform nennen wir Becherkeim oder Becherlarve (Gastrula, Fig. 1 I im Längsschnitt, K von außen).
Die Gastrula halte ich für die wichtigste und bedeutungsvollste Keimform des Tierreichs. Denn bei allen echten Tieren (nach Ausschluß der einzelligen Protozoen) geht aus der Eifurchung entweder eine reine, ursprüngliche, palingenetische Gastrula hervor, oder doch eine gleichbedeutende cenogenetische Keimform, die sekundär aus der ersteren entstanden ist und sich unmittelbar darauf zurückführen läßt. Sicher ist es eine Tatsache von höchstem Interesse und von der größten Bedeutung, daß Tiere der verschiedensten Stämme: Wirbeltiere und Manteltiere, Weichtiere und Gliedertiere, Sterntiere und Wurmtiere, Nesseltiere und Schwammtiere sich aus einer und derselben Keimform entwickeln. Als redende Beispiele stelle ich hier einige reine Gastrulaformen aus verschiedenen Tierstämmen nebeneinander:
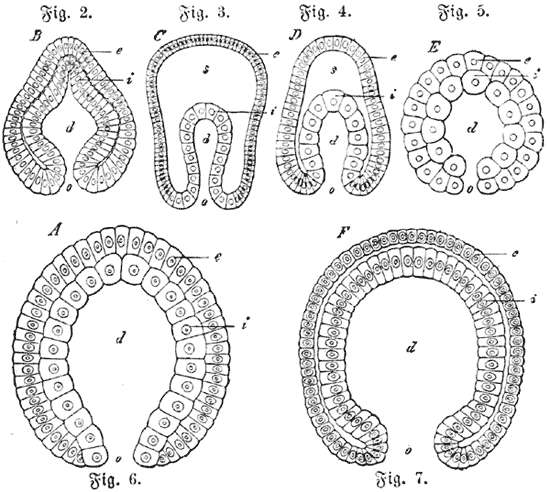
Fig. 2 (B). Gastrula eines Wurmes (Pfeilwurm, Sagitta) nach Kowalevsky. — Fig. 3 (C). Gastrula eines Echinodermen (Seestern, Uraster), nicht völlig eingestülpt (Depula), nach Alexander Agassiz. — Fig. 4 (D). Gastrula eines Arthropoden (Urkrebs, Nauplius) (wie 3). — Fig. 5. (E). Gastrula eines Mollusken (Teichschnecke, Limnaeus), nach Karl Rabl. — Fig. 6 (A). Gastrula eines einfachsten Urdarmtieres, einer Gasträade (Gastrophysema), Haeckel. — Fig. 7 (F). Gastrula eines Wirbeltieres (Lanzettierchen, Amphioxus), nach Kowalevsky. (Frontal-Ansicht.) — Überall bedeutet: d Urdarmhöhle. o Urmund. s Furchungshöhle. i Entoderm (Darmblatt). e Ektoderm (Hautblatt).
Bei dieser außerordentlichen Bedeutung der Gastrula müssen wir die Zusammensetzung ihrer ursprünglichen Körperform auf das genaueste untersuchen. Gewöhnlich ist die typische reine Gastrula sehr klein, mit bloßem Auge nicht sichtbar oder höchstens unter günstigen Umständen als ein feiner Punkt erkennbar, meistens von 1/20-1/10, seltener von 1/5-1/2 mm Durchmesser (bisweilen mehr). Ihre Gestalt gleicht meistens einem rundlichen Becher, bald ist sie mehr eiförmig, bald mehr ellipsoid oder spindelförmig; bei einigen mehr halbkugelig oder fast kugelig, bei anderen wiederum mehr in die Länge gestreckt oder fast zylindrisch. Sehr charakteristisch ist die geometrische Grundform des Körpers, welche durch eine einzige Achse mit zwei verschiedenen Polen bestimmt wird. Diese Achse ist die Hauptachse oder Längsachse des späteren Tierkörpers; der eine Pol ist der Mundpol; der entgegengesetzte der Gegenmundpol. Bei den Bilaterien oder den höheren Tieren mit zweiseitiger Grundform nimmt die cenogenetisch abgeänderte Gastrula gewöhnlich schon frühzeitig ebenfalls die bilaterale (dreiachsige) Grundform an. Durch die einachsige Grundform unterscheidet sich die Gastrula sehr wesentlich von der kugeligen Blastula und Morula, bei denen alle Körperachsen gleich sind. Der Querschnitt der primären Gastrula ist kreisrund.
Die innere Höhle des Gastrulakörpers bezeichne ich als Urdarm (Progaster) und seine Öffnung als Urmund (Prostoma). Denn jene Höhle ist die ursprüngliche Ernährungshöhle oder Darmhöhle des Körpers, und diese Öffnung hat anfänglich zur Nahrungsaufnahme in denselben gedient. Später allerdings verhalten sich Urdarm und Urmund in den verschiedenen Tierstämmen sehr verschieden. Bei den meisten Nesseltieren und vielen Wurmtieren bleiben sie zeitlebens bestehen. Bei den meisten höheren Tieren hingegen, und so auch bei den Wirbeltieren, geht nur der größere mittlere Teil des späteren Darmrohrs aus dem Urdarme hervor; die spätere Mundöffnung bildet sich neu, während der Urmund zuwächst oder sich in den After umwandelt. Wir müssen also wohl unterscheiden zwischen dem Urmund und Urdarm der Gastrula einerseits und zwischen dem Nachdarm und Nachmund des ausgebildeten Wirbeltieres anderseits.
Von der größten Bedeutung sind die beiden Zellenschichten, welche die Urdarmhöhle umschließen und deren Wand allein zusammensetzen. Denn diese beiden Zellenschichten, die einzig und allein den ganzen Körper bilden, sind nichts anderes als die beiden primären Keimblätter oder die Urkeimblätter (Blastophylla). Die äußere Zellenschicht ist das Hautblatt oder Ektoderma (Fig. 2-7 e); die innere Zellenschicht ist das Darmblatt oder Entoderma (i). Ersteres wird auch oft als Ektoblast oder Epiblast, letzteres als Endoblast oder Hypoblast bezeichnet. Aus diesen beiden primären Keimblättern allein baut sich der ganze Körper bei allen Metazoen oder vielzelligen Tieren auf. Das Hautblatt liefert die äußere Oberhaut, das Darmblatt hingegen die innere Darmhaut. Zwischen beiden Keimblättern bildet sich später das mittlere Keimblatt (Mesoderma) und die mit Blut oder Lymphe erfüllte Leibeshöhle (Coeloma).
Die beiden primären Keimblätter wurden zuerst im Jahre 1817 von Pander beim bebrüteten Hühnchen klar unterschieden, das äußere als seröses, das innere als muköses Blatt oder Schleimblatt. Aber ihre volle Bedeutung wurde erst von Baer erkannt, welcher in seiner klassischen Entwicklungsgeschichte (1828) das äußere als animales, das innere als vegetatives bezeichnete. Diese Bezeichnung ist insofern passend, als aus dem äußeren Blatte vorzugsweise (wenn auch nicht ausschließlich) die animalen Organe der Empfindung: Haut, Nerven und Sinnesorgane entstehen; hingegen aus dem inneren Blatte vorzugsweise die vegetativen Organe der Ernährung und Fortpflanzung, namentlich der Darm und das Blutgefäßsystem. Zwanzig Jahre später (1849) wies dann Huxley darauf hin, daß bei vielen niederen Pflanzentieren, namentlich Medusen, der ganze Körper eigentlich zeitlebens nur aus diesen beiden primären Keimblättern besteht. Bald darauf führte Allman (1853) für dieselben die Benennung ein, die bald allgemein angenommen wurde; er nannte das äußere Ektoderm (Außenblatt), das innere Entoderm (Innenblatt). Aber erst seit dem Jahre 1867 wurde (vorzugsweise von Kowalevsky) durch vergleichende Beobachtung der Nachweis geführt, daß auch bei wirbellosen Tieren der verschiedensten Klassen, bei Wurmtieren, Weichtieren, Sterntieren und Gliedertieren, der Körper sich aus denselben beiden primären Keimblättern aufbaut. Endlich habe ich selbst auch bei den niedersten Gewebetieren, bei den Schwämmen oder Spongien, dieselben (1872) nachgewiesen und zugleich in meiner Gasträatheorie den Beweis zu führen gesucht, daß diese „Grenzblätter“ überall, von den Schwämmen und Korallen bis zu den Insekten und Wirbeltieren hinauf (also auch beim Menschen) als gleichbedeutend oder homolog aufzufassen sind. Diese fundamentale „Homologie der primären Keimblätter und des Urdarms“ ist im Laufe der letzten dreißig Jahre durch die sorgfältigen Untersuchungen zahlreicher vortrefflicher Beobachter bestätigt und jetzt für sämtliche Metazoen fast allgemein anerkannt worden.
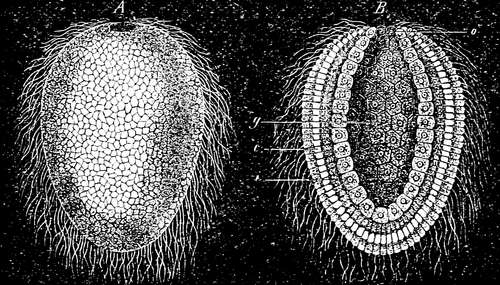
Fig. 8. Gastrula eines niederen Schwammes (Olynthus). A von außen, B im Längsschnitte durch die Achse. g Urdarm (primitive Darmhöhle). o Urmund (primitive Mundöffnung). i innere Zellenschicht der Körperwand (inneres Keimblatt, Entoderm, Endoblast oder Darmblatt). c äußere Zellenschicht (äußeres Keimblatt, Ektoderm, Ektoblast oder Hautblatt).
Gewöhnlich bieten auch schon am Gastrulakeim die Zellen, welche die beiden primären Keimblätter zusammensetzen, erkennbare Verschiedenheiten dar. Meistens (wenn auch nicht immer) sind die Zellen des Hautblattes oder Ektoderms (Fig. 8c, 9e) kleiner, zahlreicher, heller, hingegen die Zellen des Darmblattes oder Entoderms (i) größer, weniger zahlreich und dunkler. Das Protoplasma der Ektodermzellen ist klarer und fester als die trübere und weichere Zellsubstanz der Entodermzellen, letztere sind meist viel reicher an Dotterkörnern (Eiweiß- und Fettkörnchen) als erstere. Auch besitzen die Darmblattzellen gewöhnlich eine stärkere Verwandtschaft zu Farbstoffen und färben sich in Karminlösung, Anilin usw. rascher und lebhafter als die Hautblattzellen. Die Kerne der Entodermzellen sind meistens rundlich, diejenigen der Ektodermzellen hingegen länglich.
Diese physikalischen, chemischen und morphologischen Unterschiede der beiden Keimblätter, welche ihrem physiologischen Gegensatze entsprechen, sind auch insofern von hohem Interesse, als sie uns den ersten und ältesten Vorgang der Sonderung oder Differenzierung im Tierkörper vor Augen führen. Die Keimhaut (Blastoderma), welche die Wand der kugeligen Keimhautblase oder Blastula bildet, besteht bloß aus einer einzigen Schicht von gleichartigen Zellen. Diese Keimhautzellen oder Blastodermzellen sind ursprünglich sehr regelmäßig und gleichartig gebildet, von ganz gleicher Größe, Form und Beschaffenheit. Meistens sind sie durch gegenseitigen Druck abgeplattet, sehr oft regelmäßig sechseckig. Sie bilden das erste Gewebe des Metazoen-Organismus, ein einfaches Zellenpflaster oder Epithelium. Die Gleichmäßigkeit dieser Zellen verschwindet früher oder später während der Einstülpung der Keimhautblase. Die Zellen, welche den eingestülpten, inneren Teil derselben (das spätere Entoderm) zusammensetzen, nehmen gewöhnlich schon während des Einstülpungs-Vorganges selbst eine andere Beschaffenheit an als die Zellen, welche den äußeren, nicht eingestülpten Teil (das spätere Ektoderm) konstituieren. Wenn der Einstülpungs-Prozeß vollendet ist, treten die histologischen Verschiedenheiten in den Zellen der beiden primären Keimblätter meist sehr auffallend hervor.
Wir haben bisher nur diejenige Form der Eifurchung und der Gastrula ins Auge gefaßt, welche wir aus vielen und gewichtigen Gründen als die ursprüngliche, die primordiale oder palingenetische aufzufassen berechtigt sind. Wir können sie die äquale oder gleichmäßige Furchung nennen, weil die Furchungszellen zunächst gleich bleiben. Die daraus hervorgehende Gastrula bezeichnen wir als Glocken-Gastrula oder Archigastrula. In ganz gleicher Form, wie bei unserer Koralle treffen wir dieselbe auch bei den niedersten Pflanzentieren an, bei Gastrophysema (Fig. 6) und bei den einfachsten Schwämmen (Olynthus, Fig. 8); ferner bei vielen Medusen und Hydrapolypen, bei niederen Würmern verschiedener Klassen (Brachiopoden, Sagitta, Fig. 2), bei Manteltieren (Ascidia); sodann bei vielen Sterntieren (Fig. 3), niederen Gliedertieren (Fig. 4) und Weichtieren (Fig. 5); endlich ein wenig modifiziert auch beim niedersten Wirbeltiere (Amphioxus).
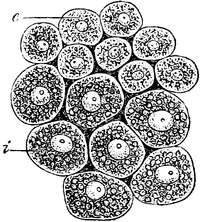
Fig. 9. Zellen aus den beiden primären Keimblättern d. Säugetieres (aus den beiden Schichten der Keimhaut). i größere dunklere Zellen der inneren Schicht, des vegetativen Keimblattes od. Entoderms. e kleinere hellere Zellen der äußeren Schicht, des animalen Keimblattes oder Ektoderms.
Die Gastrulation des Amphioxus ist deshalb von besonderem Interesse, weil dieses niederste und älteste aller Wirbeltiere die größte Bedeutung für die Phylogenie dieses Stammes, also auch für unsere Anthropogenie besitzt. Wie die vergleichende Anatomie der Wirbeltiere die verwickelten Verhältnisse im Körperbau der verschiedenen Klassen durch divergente Entwicklung aus jenem einfachsten „Urwirbeltier“ ableitet, so führt die vergleichende Ontogenie die verschiedenen sekundären Gastrulationsformen der Wirbeltiere auf die einfache, primäre Keimblätterbildung des Amphioxus zurück. Obwohl diese letztere, im Gegensatze zu den cenogenetischen Modifikationen der ersteren, im ganzen als palingenetisch zu betrachten ist, so unterscheidet sie sich doch schon in einigen Punkten von der ganz ursprünglichen Gastrulation, wie sie z. B. bei Monoxenia und bei Sagitta vorliegt. Aus der mustergültigen Darstellung von Hatschek (1881) geht hervor, daß die beiderlei Zellenarten der Keimblätter beim Amphioxus, wie bei vielen anderen Tieren, schon frühzeitig während des Furchungsprozesses ungleiche Beschaffenheit annehmen. Nur die vier ersten Furchungszellen, welche durch zwei vertikale, sich rechtwinklig schneidende Teilungsebenen getrennt werden, sind vollkommen gleich. Die dritte horizontale Furchungsebene liegt nicht im Äquator des Eies, sondern ein wenig oberhalb desselben, so daß sie jene vier Blastomeren in ungleiche Hälften teilt: vier obere kleinere und vier untere größere; jene bilden die animale, diese die vegetale Hemisphäre. Hatschek sagt daher mit Recht, daß die Eifurchung des Amphioxus keine streng äquale, sondern eine adäquale oder „fastgleiche“ sei und sich der inäqualen nähere. Auch im weiteren Verlaufe des Furchungsprozesses bleibt der Größenunterschied der beiderlei Zellgruppen bemerkbar; die kleineren, animalen Zellen der oberen Halbkugel teilen sich rascher als die größeren vegetalen Zellen der unteren Hemisphäre (Fig. 10 A, B). Daher besteht denn auch die Keimhaut, welche am Ende des Furchungsprozesses die einschichtige Wand der kugeligen Keimblase bildet, nicht aus lauter gleichartigen und gleich großen Zellen, wie bei Sagitta und Monoxenia; sondern die Zellen der oberen Blastodermhälfte sind zahlreicher und kleiner (Mutterzellen des Ektoderms), die Zellen der unteren Hälfte weniger zahlreich, aber größer (Mutterzellen des Entoderms); mithin ist auch die Furchungshöhle der Keimblase (Fig 10 C, h) nicht vollkommen kugelig, sondern ein abgeplattetes Sphäroid, mit ungleichen Polen der vertikalen Achse. Während am Vegetalpole der Achse die Blastula eingestülpt wird, nimmt der Größenunterschied der Keimhautzellen beständig zu (Fig. 10 D, E); er ist am auffallendsten, nachdem die Invagination vollendet und die Furchungshöhle verschwunden ist (Fig. 10 F). Die größeren vegetalen Zellen des Entoderms sind reicher an eingelagerten Körnern und daher trüber als die kleineren und helleren animalen Zellen des Ektoderms.
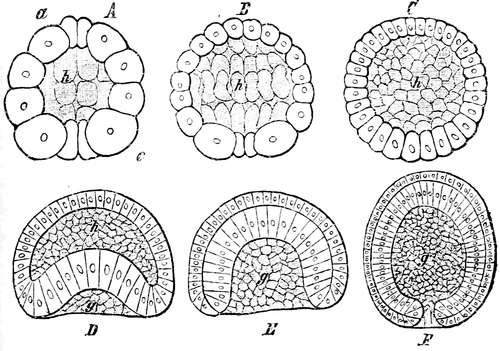
Fig. 10. Gastrulation des Amphioxus, nach Hatschek (vertikale Durchschnitte durch die Eiachse). A, B, C drei Stadien der Blastulabildung; D, E Einstülpung der Blastula; F fertige Gastrula. h Furchungshöhle. g Urdarmhöhle.
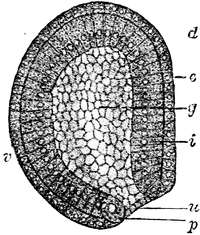
Fig. 11. Gastrula des Amphioxus in der Seitenansicht von links (optischer Medianschnitt). Nach Hatschek. g Urdarm, u Urmund, p peristomale Polzellen, i Entoderm, e Ektoderm, d Rückenseite, v Bauchseite.
Aber nicht nur durch diese frühzeitige (oder cenogenetisch vorzeitige!) Sonderung der beiderlei Keimblattzellen, sondern auch noch durch eine andere wichtige Eigentümlichkeit entfernt sich die adäquale Gastrulation des Amphioxus von der typischen äqualen Eifurchung der Sagitta, der Monoxenia und des Olynthus. Die reine Archigastrula dieser letzteren ist einachsig, ihr Querschnitt in der ganzen Länge kreisrund. Der Vegetalpol der vertikalen Achse liegt genau in der Mitte des Urmundes. Bei der Gastrula des Amphioxus ist das nicht der Fall. Schon während der Einstülpung seiner Keimblase wird die ideale Achse nach einer Seite gekrümmt, indem das Wachstum des Blastoderms (oder die Vermehrung seiner Zellen) an einer Seite lebhafter ist als an der entgegengesetzten; die rascher wachsende und daher stärker gekrümmte Seite (Fig. 11 v) ist die künftige Bauchseite, die entgegengesetzte flachere ist die Rückenseite (d). Der Urmund, welcher ursprünglich, bei der typischen Archigastrula, am Vegetalpole der Hauptachse lag, ist aus diesem auf die Rückenseite verschoben; und während seine beiden Lippen ursprünglich in einer auf der Hauptachse senkrechten Ebene lagen, sind sie jetzt so verschoben, daß diese Ebene (die Urmundebene) die Achse unter einem schiefen Winkel schneidet. Die dorsale Lippe liegt daher mehr oben und vorn, die ventrale Lippe mehr unten und hinten. In dieser letzteren, am ventralen Übergang des Entoderms in das Ektoderm, liegen nebeneinander ein paar auffallend große Zellen, eine rechte und eine linke (Fig. 11p); das sind die bedeutungsvollen Urmundpolzellen, oder die „Urzellen des Mesoderms“.
Durch diese wichtigen, schon im Laufe der Gastrulation auftretenden Sonderungen ist die ursprüngliche einachsige Grundform der Archigastrula bei Amphioxus bereits in die dreiachsige übergegangen und somit schon die zweiseitige oder „bilateralsymmetrische“ Grundform des Wirbeltieres bestimmt. Die senkrechte Mittelebene oder Sagittalebene geht zwischen den beiden Urmundpolzellen der Länge nach durch den Körper hindurch und teilt ihn in zwei gleiche Hälften, rechte und linke. Der Urmund liegt am späteren Hinterende, etwas oberhalb des Aboralpols der Längsachse. Senkrecht auf dieser Hauptachse steht in der Medianebene die Pfeilachse (Sagittalachse) oder „Dorsoventralachse“, welche die Mittellinien der flachen Rückenseite und der gewölbten Bauchseite verbindet. Die horizontale Querachse oder Lateralachse, senkrecht auf den beiden (ungleichpoligen) Achsen, ist gleichpolig und geht quer herüber von rechts nach links. Somit zeigt bereits die Gastrula des Amphioxus die charakteristische bilaterale oder zweiseitige Grundform des Wirbeltierkörpers, und diese hat sich von ihr aus auf alle anderen modifizierten Gastrulaformen dieses Stammes übertragen.
Abgesehen von dieser zweiseitigen Grundform gleicht die Gastrula des Amphioxus darin der typischen Archigastrula der niederen Tiere (Fig. 2-8), daß beide primäre Keimblätter noch aus einer einzigen einfachen Zellenschicht bestehen. Offenbar ist das die älteste und ursprünglichste Form des Metazoenkeims. Obgleich die vorhergenannten Tiere den verschiedensten Klassen angehören, so stimmen sie doch untereinander und mit vielen anderen niederen Tieren darin überein, daß sie diese von ihren ältesten gemeinsamen Vorfahren überkommene palingenetische Form der Gastrulabildung durch konservative Vererbung bis auf den heutigen Tag beibehalten haben. Bei der großen Mehrzahl der Tiere ist das aber nicht der Fall. Vielmehr ist bei diesen der ursprüngliche Vorgang der Keimung im Laufe vieler Millionen Jahre allmählich mehr oder minder abgeändert, durch Anpassung an neue Entwicklungsbedingungen gestört und modifiziert worden. Sowohl die Eifurchung als auch die darauf folgende Gastrulation haben infolgedessen ein mannigfach verschiedenes Aussehen gewonnen. Ja, die Verschiedenheiten sind im Laufe der Zeit so bedeutend geworden, daß man bei den meisten Tieren die Furchung nicht richtig gedeutet und die Gastrula überhaupt nicht erkannt hat. Erst durch ausgedehnte vergleichende Untersuchungen, welche ich in den Jahren 1866-1875 bei Tieren der verschiedensten Klassen angestellt habe, ist es mir gelungen, in jenen anscheinend so abweichenden Keimungsprozessen denselben gemeinsamen Grundvorgang nachzuweisen und alle verschiedenden Keimungsformen auf die eine, bereits beschriebene, ursprüngliche Form der Keimung zurückzuführen. Im Gegensatze zu dieser primären palingenetischen Keimungsform betrachte ich alle übrigen, davon abweichenden Formen als sekundäre, abgeänderte oder cenogenetische. Die mehr oder minder abweichende Gastrulaform, welche daraus hervorgeht, kann man allgemein als sekundäre, modifizierte Gastrula oder Metagastrula bezeichnen.
Unter den zahlreichen und mannigfaltigen cenogenetischen Formen der Eifurchung und Gastrulation unterscheide ich wieder drei verschiedene Hauptformen: 1. die ungleichmäßige Furchung; 2. die scheibenförmige Furchung und 3. die oberflächliche Furchung. Aus der ungleichmäßigen Furchung entsteht die Haubengastrula; aus der scheibenförmigen Furchung geht die Scheibengastrula hervor; aus der oberflächlichen Furchung entwickelt sich die Blasengastrula. Bei den Wirbeltieren kommt die letztere Form gar nicht vor; diese ist dagegen die gewöhnlichste bei den Gliedertieren (Krebsen, Spinnen, Insekten usw.). Die Säugetiere und Amphibien besitzen die ungleichmäßige Furchung und die Haubengastrula; ebenso die Schmelzfische (Ganoiden) und die Rundmäuler (Pricken und Inger). Hingegen finden wir bei den meisten Fischen und bei allen Reptilien und Vögeln die scheibenförmige Furchung und die Scheibengastrula.
Der weitaus wichtigste Vorgang, welcher die verschiedenen cenogenetischen Formen der Gastrulation bedingt, ist die veränderte Ernährung des Eies und die Anhäufung von Nahrungsdotter in der Eizelle. Unter diesem Begriffe fassen wir verschiedene chemische Substanzen zusammen (hauptsächlich Körner von Eiweiß- und Fettkörpern), welche ausschließlich als Reservestoff oder Nahrungsmaterial für den Keim dienen. Da der Keim der Metazoen in der ersten Zeit seiner Entwicklung noch nicht imstande ist, selbständig sich Nahrung zu verschaffen und daraus den Tierkörper aufzubauen, muß das nötige Material dazu bereits in der Eizelle aufgespeichert sein. Wir unterscheiden daher in den Eiern allgemein als zwei Hauptbestandteile den aktiven Bildungsdotter (Protoplasma) und den passiven Nahrungsdotter (Deutoplasma) auch schlechtweg „Dotter“ genannt. Bei den kleinen palingenetischen Eiern sind die Dotterkörnchen so klein und so gleichmäßig im Protoplasma der Eizelle verteilt, daß die regelmäßige wiederholte Teilung derselben dadurch nicht beeinflußt wird. Bei der großen Mehrzahl der Tiereier hingegen ist die Masse des Dottervorrats mehr oder weniger ansehnlich, und derselbe ist in einem bestimmten Teile der Eizelle angehäuft, so daß man schon am unbefruchteten Ei diese „Proviantkammer“ von dem Bildungsdotter deutlich unterscheiden kann. Gewöhnlich tritt dann eine polare Differenzierung der Eizelle in der Weise ein, daß eine Hauptachse an derselben sichtbar wird und daß der Bildungsdotter (mit dem Keimbläschen) an einem Pole, der Nahrungsdotter hingegen am entgegengesetzten Pole dieser Eiachse sich anhäuft; ersterer heißt dann der animale Pol, letzterer der vegetale Pol der vertikalen Eiachse.
Bei solchen „telolecithalen Eiern“ erfolgt dann allgemein die Gastrulation in der Weise, daß bei der wiederholten Teilung des befruchteten Eies die animale (gewöhnlich obere) Hälfte sich rascher teilt als die vegetale (untere). Die Kontraktionen des aktiven Protoplasma, welche die fortgesetzte Zellteilung bewirken, finden in der unteren vegetalen Hälfte größeren Widerstand des passiven Deutoplasma als in der oberen animalen Hälfte. Daher finden wir in der letzteren zahlreichere, aber kleinere, in der ersteren weniger zahlreiche, aber größere Zellen. Die animalen Zellen liefern das äußere, die vegetalen das innere Keimblatt.
Obgleich diese „ungleichmäßige Furchung“ der Rundmäuler, Ganoiden und Amphibien von der ursprünglichen „gleichmäßigen Furchung“ (z. B. der Monoxenia) sich auf den ersten Blick unterscheidet, haben doch beide Arten der Gastrulation das gemein, daß der Teilungsprozeß fortdauernd die ganze Eizelle betrifft. Remak nannte sie daher totale Eifurchung und die betreffenden Eier holoblastisch. Anders verhält es sich bei der zweiten Hauptgruppe der Eier, welche er jenen als meroblastische gegenüberstellte; dazu gehören die bekannten großen Eier der Vögel und Reptilien, sowie der meisten Fische. Die träge Masse des passiven Nahrungsdotters wird hier so groß, daß die Protoplasma-Kontraktionen des aktiven Bildungsdotters ihre Teilung nicht mehr zu bewältigen vermögen. Es erfolgt daher nur eine partielle Eifurchung. Während das Protoplasma im animalen Bezirk der Eizelle sich unter lebhafter Vermehrung der Kerne fortdauernd teilt, bleibt das Deutoplasma im vegetalen Bezirk mehr oder weniger ungeteilt, es wird einfach als Nahrungsmaterial von den sich bildenden Zellen aufgezehrt. Je größer die Masse des angehäuften Proviants, desto mehr erscheint der Furchungsprozeß lokal beschränkt. Jedoch kann derselbe noch lange Zeit (selbst nachdem schon die Gastrulation mehr oder weniger vollendet ist) in der Weise fortdauern, daß die im Deutoplasma verteilten vegetalen Zellkerne sich durch Teilung langsam vermehren; da jeder derselben von einer geringen Menge Protoplasma umhüllt ist, kann er sich später eine Portion des Nahrungsdotters aneignen und so eine wahre „Dotterzelle“ bilden. Wenn diese vegetale Zellbildung sich noch längere Zeit fortsetzt, nachdem bereits die beiden primären Keimblätter gesondert sind, bezeichnet man den Prozeß als Nachfurchung (Waldeyer).
Die meroblastischen Eier finden sich bloß bei größeren und höher entwickelten Tieren, und nur bei solchen, deren Embryo längerer Zeit und reichlicher Ernährung zu seiner Entwicklung innerhalb der Eihüllen bedarf. Je nachdem der Nahrungsdotter zentral im Innern der Eizelle oder exzentrisch, an einer Seite derselben, angehäuft ist, unterscheiden wir zwei Gruppen von teilfurchenden Eiern, periblastische und diskoblastische. Bei den ersteren, den periblastischen Eiern, ist der Nahrungsdotter zentral, im Innern der Eizelle eingeschlossen; der Bildungsdotter umgibt ersteren blasenförmig, und daher erfährt derselbe eine oberflächliche Furchung; eine solche findet sich im Stamme der Gliedertiere, bei den Krebsen, Spinnen, Insekten usw. Bei den diskoblastischen Eiern hingegen häuft sich der Nahrungsdotter einseitig, am vegetalen oder unteren Pole der senkrechten Eiachse an, während am oberen oder animalen Pole der Eikern und die Hauptmasse des Bildungsdotters liegt. Die Eifurchung beginnt hier am oberen Pole und führt zur Bildung einer dorsalen Keimscheibe. Das ist der Fall bei allen meroblastischen Wirbeltieren, bei den meisten Fischen, den Reptilien und Vögeln, und den eierlegenden Säugetieren (Schnabeltieren).
Die Gastrulation der diskoblastischen Eier bietet der mikroskopischen Untersuchung und der einheitlichen Erkenntnis außerordentliche Schwierigkeiten dar. Diese zu überwinden ist erst den vergleichend-ontogenetischen Untersuchungen gelungen, welche zahlreiche ausgezeichnete Beobachter während der letzten Dezennien angestellt haben; vor allen die Gebrüder Hertwig, Rabl, Kupffer, Selenka, Rückert, Goette, Rauber u. a. Diese eingehenden und sorgfältigen, mit Hilfe der vervollkommneten modernen Technik (Färbungs- und Schnittmethoden) ausgeführten Untersuchungen haben in erfreulichster Weise die Anschauungen bestätigt, welche ich zuerst 1875 in meiner Abhandlung über die „Gastrula und die Eifurchung der Tiere“ ausgeführt hatte. Da das klare Verständnis dieser phylogenetisch begründeten Anschauungen nicht allein für die Entwicklungsgeschichte im allgemeinen, sondern auch für die Anthropogenie im besonderen von fundamentaler Bedeutung ist, gestatte ich mir, dieselben hier nochmals kurz mit Beziehung auf den Wirbeltierstamm zusammenzufassen.
1. Alle Wirbeltiere, mit Inbegriff des Menschen, sind phylogenetisch verwandt, Glieder eines einzigen natürlichen Stammes. 2. Daher müssen auch die ontogenetischen Grundzüge ihrer individuellen Entwicklung phylogenetisch zusammenhängen. 3. Da die Gastrulation des Amphioxus die einfachsten Verhältnisse in der ursprünglichen palingenetischen Form zeigt, muß diejenige der übrigen Wirbeltiere sich von der ersteren ableiten lassen. 4. Die cenogenetischen Abänderungen der letzteren werden um so bedeutender, je mehr Nahrungsdotter sich im Ei ansammelt. 5. Obgleich die Masse des Nahrungsdotters in den Eiern der diskoblastischen Wirbeltiere sehr groß werden kann, geht doch in allen Fällen aus der Morula ebenso eine Keimblase oder Blastula hervor, wie bei den holoblastischen Eiern. 6. Ebenso entsteht in allen Fällen aus der Keimblase durch Einstülpung oder Invagination die Gastrula. 7. Die Höhle, welche durch diese Einstülpung im Keim entsteht, ist in allen Fällen der Urdarm und seine Öffnung der Urmund. 8. Der Nahrungsdotter, gleichviel ob groß oder klein, liegt stets in der Bauchwand des Urdarms, die Zellen, welche nachträglich (durch „Nachfurchung“) in demselben entstehen können, gehören ebenso dem inneren Keimblatt oder Endoblast an, wie die Zellen, welche die Urdarmhöhle unmittelbar einschließen. 9. Der Urmund welcher ursprünglich unten am Basalpol der vertikalen Achse liegt, wird durch das Dotterwachstum nach hinten und dann nach oben, auf die Dorsalseite des Keimes gedrängt; die vertikale Achse des Urdarms wird dadurch allmählich in horizontale Lage gedrängt. 10. Der Urmund kommt bei allen Wirbeltieren früher oder später zum Verschlusse und geht nicht in die bleibende Mundöffnung über; vielmehr entspricht der Urmundrand der späteren Aftergegend. Von dieser bedeutungsvollen Stelle geht weiterhin die Bildung des mittleren Keimblattes aus, das von hier aus zwischen die beiden primären Keimblätter hineinwächst.
Die ausgedehnten vergleichenden Untersuchungen der vorher erwähnten Forscher haben ferner ergeben, daß bei den diskoblastischen höheren Wirbeltieren (Reptilien, Vögel, Säugetiere) der lange vergeblich gesuchte „Urmund“ der Keimscheibe überall an deren Hinterende sich findet und nichts anderes ist als die längst bekannte „Primitivrinne“. Das ist eine in der hinteren Rückenfläche der scheibenförmigen Gastrula gelegene Rinne, die früher irrtümlich mit dem Hinterteil des Medullarrohrs verwechselt wurde. Allerdings steht sie mit diesem eine Zeitlang in direktem Zusammenhang; allein ursprünglich ist sie nach Anlage und Bedeutung ganz davon verschieden. Die beiden parallelen Längswülste, welche diese schmale, in der Mittellinie gelegene „Primitivrinne“ einschließen, sind die beiden Urmundlippen, rechte und linke. Der Urmund, der ursprünglich (bei den holoblastischen Wirbeltieren) eine kleine kreisrunde Öffnung ist, ändert also (infolge der wachsenden Anhäufung des Nahrungsdotters und der dadurch bedingten Ausdehnung der Bauchwand des Urdarms) nicht allein seine Lage und Richtung, sondern auch seine Gestalt und Ausdehnung. Er verwandelt sich zunächst in eine sichelförmige Querspalte („Sichelrinne“), an der wir eine untere und eine obere Urmundlippe unterscheiden. Die breite Querspalte wird aber bald schmäler und verwandelt sich in eine Längsspalte (ähnlich einer „Hasenscharte“), indem rechte und linke Hälfte der „Sichelrinne“ sich verkürzen, der Mittelteil sich nach vorn verlängert und die beiden Hälften der dorsalen Oberlippe nach vorn auswachsen. Letztere berühren sich später in der Medianlinie und bilden den wichtigen sogenannten „Primitivstreif“.
Die Gastrulation läßt sich somit bei allen Wirbeltieren auf einen und denselben Vorgang zurückführen. Ebenso lassen sich auch die verschiedenen Formen derselben bei den wirbellosen Metazoen immer auf eine von jenen vier Hauptformen der Eifurchung reduzieren. Mit Bezug auf die Unterscheidung der totalen und partiellen Eifurchung stellt sich das Verhältnis der vier Eifurchungsformen zueinander folgendermaßen:
I. Palingenetische (ursprüngliche) Furchung 1. Gleichmäßige Furchung (Glockengastrula). A. Totale Furchung (ohne selbständigen Nahrungsdotter).
II. Cenogenetische (durch Anpassung abgeänderte) Furchung. 2. Ungleichmäßige Furchung (Haubengastrula).
3. Scheibenartige Furchung (Scheibengastrula). B. Partielle Furchung (mit selbständigem Nahrungsdotter).
4. Oberflächliche Furchung (Blasengastrula).
Die niedersten Metazoen, welche wir kennen, nämlich die niederen Pflanzentiere (Schwämme, einfachste Polypen usw.), bleiben zeitlebens auf einer Bildungsstufe stehen, welche von der Gastrula nur sehr wenig verschieden ist; ihr ganzer Körper ist nur aus zwei Zellenschichten oder Blättern zusammengesetzt. Diese Tatsache ist von außerordentlicher Bedeutung. Denn wir sehen, daß der Mensch, und überhaupt jedes Wirbeltier, rasch vorübergehend ein zweiblätteriges Bildungsstadium durchläuft, welches bei jenen niedersten Pflanzentieren zeitlebens erhalten bleibt. Wenn wir hier wieder unser Biogenetisches Grundgesetz (Seite 35) anwenden, so gelangen wir sofort zu folgendem hochwichtigen Schlusse: „Der Mensch und alle anderen Tiere, welche in ihrer ersten individuellen Entwicklungsperiode eine zweiblätterige Bildungsstufe oder eine Gastrulaform durchlaufen, müssen von einer uralten einfachen Stammform abstammen, deren ganzer Körper zeitlebens (wie bei den niedersten Pflanzentieren noch heute) nur aus zwei verschiedenen Zellenschichten oder Keimblättern bestanden hat.“ Wir wollen diese bedeutungsvolle uralte Stammform Gasträa (d. h. Urdarmtier) nennen.
Nach dieser Gasträatheorie ist ein Organ bei allen vielzelligen Tieren ursprünglich von derselben morphologischen und physiologischen Bedeutung: der Urdarm, und ebenso müssen auch die beiden primären Keimblätter, welche die Wand des Urdarms bilden, überall als gleichbedeutend oder „homolog“ angesehen werden. Diese wichtige „Homologie der beiden primären Keimblätter“ wird einerseits dadurch bewiesen, daß überall die Gastrula ursprünglich auf dieselbe Weise entsteht, nämlich durch Einstülpung der Blastula; und anderseits dadurch, daß überall dieselben fundamentalen Organe aus den beiden Keimblättern hervorgehen. Überall bildet das äußere Keimblatt, das Hautblatt oder Ektoderm, die wichtigsten Organe des animalen Lebens: Hautdecke, Nervensystem, Sinnesorgane usw. Hingegen entstehen aus dem inneren Keimblatt, aus dem Darmblatt oder Entoderm, die wichtigsten Organe des vegetativen Lebens: die Organe der Ernährung, Verdauung, Blutbildung usw.
Bei denjenigen niederen Pflanzentieren, deren ganzer Körper zeitlebens auf der zweiblätterigen Bildungsstufe stehenbleibt, bei den Gasträaden, den einfachsten Schwämmen (Olynthus) und Polypen (Hydra), bleiben auch diese beiden Funktionsgruppen, animale und vegetative Leistungen, scharf auf die beiden einfachen primären Keimblätter verteilt. Zeitlebens behält hier das äußere Keimblatt die einfache Bedeutung einer umhüllenden Decke (einer Oberhaut) und vollzieht zugleich die Bewegungen und Empfindungen des Körpers. Hingegen das innere Keimblatt besitzt zeitlebens die einfache Bedeutung einer ernährenden Darmzellenschicht und liefert außerdem häufig noch die Fortpflanzungszellen.
Das bekannteste von diesen Gasträaden oder „gastrulaähnlichen Tieren“ ist der gemeine Süßwasserpolyp (Hydra). Allerdings besitzt dieses einfachste aller Nesseltiere noch einen Kranz von Tentakeln oder Fangfäden, welcher den Mund umgibt. Auch ist das äußere Keimblatt bereits etwas histologisch differenziert. Aber diese Zutaten sind erst sekundär entstanden, und das innere Keimblatt ist eine ganz einfache Zellenschicht geblieben. In der Hauptsache hat auch die Hydra den einfachen Körperbau unserer uralten Stammutter Gasträa bis auf den heutigen Tag durch zähe Vererbung getreu konserviert.
Bei allen übrigen Tieren, und namentlich bei allen Wirbeltieren, erscheint die Gastrula nur als ein rasch vorübergehender Keimzustand. Hier verwandelt sich vielmehr bald das zweiblätterige Stadium der Keimanlage zunächst in ein dreiblätteriges und dann in ein vierblätteriges Stadium. Mit dem Zustandekommen von vier übereinander liegenden Keimblättern haben wir wieder einen festen und sicheren Standpunkt gewonnen, von welchem aus wir die weiteren, viel schwierigeren und verwickelteren Vorgänge der Ausbildung beurteilen und verfolgen können.
(Aus „Anthropogenie oder Entwicklungsgeschichte des Menschen“.)