II. Schöpfungsperioden und Schöpfungsurkunden.
Reading edition
Die geschichtliche Auffassung des organischen Lebens, welche die Abstammungslehre in die biologischen Wissenschaften eingeführt hat, fördert nächst der Anthropologie keinen anderen Wissenschaftszweig so sehr, als den beschreibenden Teil der Naturgeschichte, die systematische Zoologie und Botanik. Die meisten Naturforscher, die sich bisher mit der Systematik der Tiere und Pflanzen beschäftigten, sammelten, benannten und ordneten die verschiedenen Arten dieser Naturkörper mit einem ähnlichen Interesse, wie die Altertumsforscher und Ethnographen die Waffen und Gerätschaften der verschiedenen Völker sammeln. Viele erhoben sich selbst nicht über denjenigen Grad der Wißbegierde, mit dem man Wappen, Briefmarken und ähnliche Kuriositäten zu sammeln, zu etikettieren und zu ordnen pflegt. In ähnlicher Weise wie diese Sammler an der Formenmannigfaltigkeit, Schönheit oder Seltsamkeit der Wappen, Briefmarken usw. ihre Freude finden, und dabei die erfinderische Bildungskunst des Menschen bewundern, in ähnlicher Weise ergötzten sich die meisten Naturforscher an den mannigfaltigen Formen der Tiere und Pflanzen und erstaunten über die reiche Phantasie des Schöpfers, über seine unermüdliche Schöpfungstätigkeit und über die seltsame Laune, in welcher er neben so vielen schönen und nützlichen Organismen auch eine Anzahl häßlicher und unnützer Formen gebildet habe.
Diese kindliche Behandlung der systematischen Zoologie und Botanik wird durch die Abstammungslehre gründlich vernichtet. An die Stelle des oberflächlichen und spielenden Interesses, mit welchem die meisten bisher die organischen Gestalten betrachteten, tritt das weit höhere Interesse des erkennenden Verstandes, welcher in der Formverwandtschaft der Organismen ihre wahre Stammverwandtschaft erblickt. Das natürliche System der Tiere und Pflanzen, welches man früher entweder nur als Namenregister zur übersichtlichen Ordnung der verschiedenen Formen oder als Sachregister zum kurzen Ausdruck ihres Ähnlichkeitsgrades schätzte, erhält durch die Abstammungslehre den ungleich höheren Wert eines wahren Stammbaumes der Organismen. Diese Stammtafel soll uns den genealogischen Zusammenhang der kleineren und größeren Gruppen enthüllen. Sie soll zu zeigen versuchen, in welcher Weise die verschiedenen Klassen, Ordnungen, Familien, Gattungen und Arten des Tier- und Pflanzenreichs den verschiedenen Zweigen, Ästen und Astgruppen ihres Stammbaums entsprechen. Jede weitere und höherstehende Kategorie oder Gruppenstufe des Systems (z. B. Klasse, Ordnung) umfaßt eine Anzahl von größeren und stärkeren Zweigen des Stammbaums, jede engere und tieferstehende Kategorie (z. B. Gattung, Art) nur eine kleinere und schwächere Gruppe von Ästchen. Nur wenn wir in dieser Weise das natürliche System als Stammbaum betrachten, können wir den wahren Wert desselben erkennen. Dieser genealogischen Auffassung des organischen Systems gehört ohne Zweifel allein die Zukunft.
Wie können wir uns aber den wirklichen Stammbaum der tierischen und pflanzlichen Formengruppen aus den dürftigen und fragmentarischen, bis jetzt darüber gewonnenen Erfahrungen konstruieren? Die Antwort hierauf liegt schon zum Teil in demjenigen, was wir früher über den Parallelismus der drei Entwicklungsreihen bemerkt haben, über den wichtigen ursächlichen Zusammenhang, welcher die paläontologische Entwicklung der ganzen organischen Stämme mit der embryologischen Entwicklung der Individuen und mit der systematischen Entwicklung der Gruppenstufen verbindet.
Zunächst werden wir uns zur Lösung dieser schwierigen Aufgabe an die Paläontologie oder Versteinerungskunde zu wenden haben. Denn wenn wirklich die Deszendenztheorie wahr ist, wenn wirklich die versteinerten Reste der vormals lebenden Tiere und Pflanzen von den ausgestorbenen Urahnen und Vorfahren der jetzigen Organismen herrühren, so müßte uns eigentlich ohne weiteres die Kenntnis und Vergleichung der Versteinerungen den Stammbaum der Organismen aufdecken. So einfach und einleuchtend dies nach dem theoretisch entwickelten Prinzip erscheint, so außerordentlich schwierig und verwickelt gestaltet sich die Aufgabe, wenn man sie wirklich in Angriff nimmt. Ihre praktische Lösung würde schon sehr schwierig sein, wenn die Versteinerungen einigermaßen vollständig erhalten wären. Das ist aber keineswegs der Fall. Vielmehr ist die handgreifliche Schöpfungsurkunde, welche in den Versteinerungen begraben liegt, über alle Maßen unvollständig. Daher erscheint es jetzt vor allem notwendig, diese Urkunde kritisch zu prüfen und den Wert, welchen die Versteinerungen für die Entwicklungsgeschichte der organischen Stämme besitzen, zu bestimmen.
In der Regel finden wir Versteinerungen oder Petrefakten nur in denjenigen Gesteinen eingeschlossen, welche schichtenweise als Schlamm im Wasser abgelagert wurden, und welche man deshalb neptunische, geschichtete oder sedimentäre Gesteine nennt. Die Ablagerung solcher Schichten konnte natürlich erst beginnen, nachdem im Verlaufe der Erdgeschichte die Verdichtung des Wasserdampfes zu tropfbar-flüssigem Wasser erfolgt war. Seit diesem Zeitpunkt begann nicht allein das organische Leben auf der Erde, sondern auch eine ununterbrochene und höchst wichtige Umgestaltung der erstarrten anorganischen Erdrinde. Das Wasser begann seitdem jene außerordentlich wichtige mechanische Wirksamkeit, durch welche die Erdoberfläche fortwährend, wenn auch langsam, umgestaltet wird. Ich darf wohl als bekannt voraussetzen, welchen außerordentlich bedeutenden Einfluß in dieser Beziehung noch jetzt das Wasser in jedem Augenblick ausübt. Indem es als Regen niederfällt, die obersten Schichten der Erdrinde durchsickert und von den Erhöhungen in die Vertiefungen herabfließt, löst es verschiedene mineralische Bestandteile des Bodens chemisch auf und spült mechanisch die locker zusammenhängenden Teilchen ab. An den Bergen herabfließend führt das Wasser den Schutt derselben in die Ebene und lagert ihn als Schlamm im stehenden Wasser ab. So arbeitet es beständig an einer Erniedrigung der Berge und Ausfüllung der Täler. Ebenso arbeitet die Brandung des Meeres ununterbrochen an der Zerstörung der Küsten und an der Auffüllung des Meerbodens durch die herabgeschlämmten Trümmer. So würde schon die Tätigkeit des Wassers allein, wenn sie nicht durch andere Umstände wieder aufgewogen würde, mit der Zeit die ganze Erde nivellieren. Es kann keinem Zweifel unterliegen, daß die Gebirgsmassen, welche alljährlich als Schlamm dem Meere zugeführt werden und sich auf dessen Boden absetzen, so bedeutend sind, daß im Verlauf einer längeren oder kürzeren Periode, vielleicht von wenigen Millionen Jahren, die Erdoberfläche vollkommen geebnet und von einer zusammenhängenden Wasserschale umschlossen werden würde. Daß dies nicht geschieht, verdanken wir der fortdauernden Schrumpfung und Faltung der erhärteten Erdrinde und der vulkanischen Gegenwirkung des feurigflüssigen Erdinneren. Diese Reaktion des geschmolzenen Kerns gegen die feste Rinde bedingt ununterbrochen wechselnde Hebungen und Senkungen an den verschiedensten Stellen der Erdoberfläche. Meistens geschehen dieselben sehr langsam; allein indem sie Jahrtausende hindurch fortdauern, bringen sie durch Summierung der kleinen Einzelwirkungen nicht minder großartige Resultate hervor, wie die entgegenwirkende und nivellierende Tätigkeit des Wassers.
Indem die Hebungen und Senkungen verschiedener Gegenden im Laufe von Jahrmillionen vielfach miteinander wechseln, kommt bald dieser bald jener Teil der Erdoberfläche über oder unter den Spiegel des Meeres. Es gibt vielleicht keinen Oberflächenteil der Erdrinde, der nicht infolgedessen schon wiederholt über oder unter dem Meeresspiegel gewesen wäre. Durch diesen vielfachen Wechsel erklärt sich die Mannigfaltigkeit und die verschiedenartige Zusammensetzung der zahlreichen neptunischen Gesteinschichten, welche sich an den meisten Stellen in beträchtlicher Dicke übereinander abgelagert haben. In den verschiedenen Geschichtsperioden, während deren die Ablagerung stattfand, lebte eine mannigfach verschiedene Bevölkerung von Tieren und Pflanzen. Wenn die Leichen derselben auf den Boden der Gewässer herabsanken, drückten sie ihre Körperform in dem weichen Schlamme ab, und unverwesliche Teile, harte Knochen, Zähne, Schalen usw. wurden unzerstört in demselben eingeschlossen. Sie blieben in dem Schlamm, der sich zu neptunischem Gestein verdichtete, erhalten, und dienen nun als Versteinerungen zur Charakteristik der betreffenden Schichten. Durch sorgfältige Vergleichung der verschiedenen übereinander gelagerten Schichten und der in ihnen erhaltenen Versteinerungen ist es so möglich geworden, sowohl das relative Alter der Schichten und Schichtengruppen zu bestimmen, als auch gewisse Hauptmomente der Phylogenie oder der Entwicklungsgeschichte der Tier- und Pflanzenstämme empirisch festzustellen.
Die verschiedenen übereinander abgelagerten Schichten der neptunischen Gesteine, welche in sehr mannigfaltiger Weise aus Kalk, Ton und Sand zusammengesetzt sind, haben die Geologen gruppenweise in ein ideales System zusammengestellt, welches dem ganzen Zusammenhange der organischen Erdgeschichte entspricht, d. h. desjenigen Teiles der Erdgeschichte, während dessen organisches Leben existierte. Wie die sogenannte „Weltgeschichte“ in größere oder kleinere Perioden zerfällt, welche durch den zeitweiligen Entwicklungszustand der bedeutendsten Völker charakterisiert und durch hervorragende Ereignisse voneinander abgegrenzt werden, so teilen wir auch die unendlich längere organische Erdgeschichte in eine Reihe von größeren oder kleineren Perioden ein. Jede dieser Perioden ist durch eine charakteristische Flora und Fauna, durch die besonders starke Entwicklung bestimmter Pflanzen- oder Tiergruppen ausgezeichnet, und jede ist von der vorhergehenden und folgenden Periode durch einen auffallenden teilweisen Wechsel in der Zusammensetzung der Tier- und Pflanzenbevölkerung getrennt.
Für die nachfolgende Übersicht des historischen Entwicklungsganges, den die großen Tier- und Pflanzenstämme genommen haben, ist es notwendig, zunächst hier die systematische Klassifikation der neptunischen Schichtengruppen und der denselben entsprechenden größeren und kleineren Geschichtsperioden anzugeben. Wie Sie sogleich sehen werden, sind wir imstande, die ganze Masse der übereinanderliegenden Sedimentgesteine in fünf oberste Hauptgruppen oder Terrains, jedes Terrain in mehrere untergeordnete Schichtengruppen oder Systeme, und jedes System von Schichten wiederum in noch kleinere Gruppen oder Formationen einzuteilen; endlich kann auch jede Formation wieder in Etagen oder Unterformationen, und jede von diesen wiederum in noch kleinere Lagen, Bänke usw. geschieden werden. Jedes der fünf großen Terrains wurde während eines großen Hauptabschnittes der Erdgeschichte, während eines Zeitalters, abgelagert; jedes System während einer kürzeren Periode, jede Formation während einer noch kürzeren Epoche usw. Indem wir so die Zeiträume der organischen Erdgeschichte und die während derselben abgelagerten neptunischen und versteinerungsführenden Erdschichten in ein gegliedertes System bringen, verfahren wir genau wie die Historiker, welche die Völkergeschichte in die drei Hauptabschnitte des Altertums, des Mittelalters und der Neuzeit, und jeden dieser Abschnitte wieder in untergeordnete Perioden und Epochen einteilen. Wie aber der Historiker durch diese scharfe systematische Einteilung und durch die bestimmte Abgrenzung der Perioden durch einzelne Jahreszahlen nur die Übersicht erleichtern und keineswegs den ununterbrochenen Zusammenhang der Ereignisse und der Völkerentwicklung leugnen will, so gilt ganz dasselbe auch von unserer systematischen Einteilung, Spezifikation oder Klassifikation der organischen Erdgeschichte. Auch hier geht der rote Faden der zusammenhängenden Entwicklung überall ununterbrochen hindurch. Wir verwahren uns also ausdrücklich gegen die Anschauung, als wollten wir durch unsere scharfe Abgrenzung der größeren und kleineren Schichtengruppen und der ihnen entsprechenden Zeiträume irgendwie an Cuviers irrige Lehre von den Erdrevolutionen und von den wiederholten Neuschöpfungen der organischen Bevölkerung anknüpfen.
Die fünf großen Hauptabschnitte der organischen Erdgeschichte oder der paläontologischen Entwicklungsgeschichte bezeichnen wir als primordiales, primäres, sekundäres, tertiäres und quartäres Zeitalter. Jedes ist durch die vorwiegende Entwicklung bestimmter Tier- und Pflanzengruppen in demselben bestimmt charakterisiert, und wir könnten demnach auch die fünf Zeitalter einerseits durch die natürlichen Hauptgruppen des Pflanzenreichs, andererseits durch die verschiedenen Klassen des Wirbeltierstammes anschaulich bezeichnen. Dann wäre das erste oder primordiale Zeitalter dasjenige der Tange und Schädellosen, das zweite oder primäre Zeitalter das der Farne und Fische, das dritte oder sekundäre Zeitalter das der Nadelwälder und Reptilien, das vierte oder tertiäre Zeitalter das der Laubwälder und Säugetiere, endlich das fünfte oder quartäre Zeitalter dasjenige des Menschen und seiner Kultur. Die Abschnitte oder Perioden, welche wir in jedem der fünf Zeitalter unterscheiden, werden durch die verschiedenen Systeme von Schichten bestimmt, in die jedes der fünf großen Terrains zerfällt. Lassen Sie uns jetzt noch einen flüchtigen Blick auf die Reihe dieser Systeme und zugleich auf die Bevölkerung der fünf großen Zeitalter werfen.
Den ersten und längsten Hauptabschnitt der organischen Erdgeschichte bildet die Primordialzeit oder das Zeitalter der Tangwälder, das auch das archäische, archolithische oder archozoische Zeitalter genannt wird. Es umfaßt den ungeheuren Zeitraum von der ersten Urzeugung, von der Entstehung des ersten irdischen Organismus, bis zum Ende der silurischen Schichtenbildung. Während dieses unermeßlichen Zeitraums, welcher wahrscheinlich länger war, als alle übrigen vier Zeiträume zusammengenommen, lagerten sich die drei mächtigsten von allen neptunischen Schichtensystemen ab, nämlich zu unterst das laurentische, darüber das kambrische und darüber das silurische System. Von den meisten Geologen wird das silurische System, und von vielen auch noch das kambrische System zu den paläolithischen Terrains gestellt; indessen erscheint es aus biologisch-historischen Gesichtspunkten zweckmäßiger, sie mit den archozoischen zu vereinigen. Die ungefähre Dicke oder Mächtigkeit dieser drei Systeme zusammengenommen beträgt 70000 Fuß. Davon kommen ungefähr 30000 auf das laurentische, 18000 auf das kambrische und 22000 auf das silurische System. Die durchschnittliche Mächtigkeit aller vier übrigen Terrains, des primären, sekundären, tertiären und quartären zusammengenommen, mag dagegen etwa höchstens 60000 Fuß betragen, und schon hieraus, abgesehen von vielen anderen Gründen, ergibt sich, daß die Dauer der Primordialzeit wahrscheinlich viel länger war, als die Dauer der folgenden Zeitalter bis zur Gegenwart zusammengenommen. Viele Millionen von Jahren müssen zur Ablagerung solcher Schichtenmassen erforderlich gewesen sein. Leider befindet sich der bei weitem größte Teil der primordialen Schichtengruppen in dem sogleich zu erörternden metamorphischen Zustande, und dadurch sind die in ihnen enthaltenen Versteinerungen, die ältesten und wichtigsten von allen, größtenteils zerstört und unkenntlich geworden. Nur in einem Teile der kambrischen und silurischen Schichten sind Petrefakten in größerer Menge und in kenntlichem Zustande erhalten worden.
Trotzdem die primordialen oder archozoischen Versteinerungen uns nur zum bei weitem kleinsten Teile in kenntlichem Zustande erhalten sind, besitzen dieselben dennoch den Wert unschätzbarer Dokumente für diese älteste und dunkelste Zeit der organischen Erdgeschichte. Zunächst scheint daraus hervorzugehen, daß während dieses ganzen ungeheuren Zeitraums fast nur Wasserbewohner existierten. Wenigstens sind bis jetzt unter allen archozoischen Petrefakten nur sehr wenige gefunden worden, welche man mit Sicherheit auf landbewohnende Organismen beziehen kann: die ältesten von diesen sind einige silurische Farne und Skorpione. Fast alle Pflanzenreste, die wir aus der Primordialzeit besitzen, gehören zu der niedrigsten von allen Pflanzengruppen, zu der im Wasser lebenden Klasse der Tange oder Algen. Diese bildeten in dem warmen Urmeere der Primordialzeit mächtige Wälder, von deren Formenreichtum und Dichtigkeit uns noch heutigen Tages ihre Epigonen, die Tangwälder des atlantischen Sargassomeeres, eine ungefähre Vorstellung geben mögen. Die kolossalen Tangwälder der archozoischen Zeit ersetzten damals die noch fehlende Waldvegetation des Festlandes. Gleich den Pflanzen lebten auch fast alle Tiere, von denen man Reste in den archozoischen Schichten gefunden hat, im Wasser. Von den Gliedertieren finden sich nur Krebstiere und einzelne Skorpione, noch keine Insekten. Von den Wirbeltieren sind nur sehr wenige Fischreste bekannt, welche sich in den jüngsten von allen primordialen Schichten, in der oberen Silurformation, vorfinden. Dagegen müssen wir annehmen, daß Würmer und schädellose Wirbeltiere (Akranier), die Ahnen der Fische, massenhaft während der Primordialzeit gelebt haben. Daher können wir sie sowohl nach den Schädellosen als nach den Tangen benennen.
Die Primärzeit oder das Zeitalter der Farnwälder, der zweite Hauptabschnitt der organischen Erdgeschichte, welchen man auch das paläolithische oder paläozoische Zeitalter nennt, dauerte vom Ende der silurischen Schichtenbildung bis zum Ende der permischen Schichtenbildung. Auch dieser Zeitraum war von sehr langer Dauer und zerfällt wiederum in drei Perioden, während deren sich drei mächtige Schichtensysteme ablagerten, nämlich zu unterst das devonische System oder der alte rote Sandstein, darüber das karbonische oder Steinkohlensystem, und darüber das permische System oder der neue rote Sandstein und der Zechstein. Die durchschnittliche Dicke dieser drei Systeme zusammengenommen mag etwa 42000 Fuß betragen, woraus sich schon die ungeheure Länge der für ihre Bildung erforderlichen Zeiträume ergibt. Die meisten Geologen rechnen zur Paläozoischen Ära noch die silurische und viele auch die kambrische Periode.
Die devonischen und permischen Formationen sind vorzüglich reich an Fischresten, sowohl an Urfischen als an Schmelzfischen. Aber noch fehlen in der primären Zeit gänzlich die Knochenfische. In der Steinkohle finden sich schon verschiedene Reste von landbewohnenden Tieren, und zwar sowohl Gliedertieren (Spinnen und Insekten) als Wirbeltieren (Amphibien). Im permischen System kommen zu den Amphibien noch die höher entwickelten Schleicher oder Reptilien, und zwar unseren Eidechsen nahverwandte Formen (Proterosaurus usw.). Trotzdem können wir das primäre Zeitalter das der Fische nennen, weil diese wenigen Amphibien und Reptilien ganz gegen die ungeheure Menge der paläozoischen Fische zurücktreten. Ebenso wie die Fische unter den Wirbeltieren, so herrschten unter den Pflanzen während dieses Zeitraums die Farnpflanzen oder Filicinen vor, und zwar sowohl echte Farnkräuter und Farnbäume (Laubfarne oder Filikarien) als Schaftfarne (Kalamarien) und Schuppenfarne (Selagineen). Diese landbewohnenden Farne oder Filizinen bildeten die Hauptmasse der dichten paläozoischen Inselwälder, deren fossile Reste uns in den ungeheuer mächtigen Steinkohlenlagern des karbonischen Systems und in den schwächeren Kohlenlagern des devonischen und permischen Systems erhalten sind. Sie berechtigen uns, die Primärzeit ebensowohl das Zeitalter der Farne als das der Fische zu nennen.
Der dritte große Hauptabschnitt der paläontologischen Entwicklungsgeschichte wird durch die Sekundärzeit oder das Zeitalter der Nadelwälder gebildet, welches auch das mesolithische oder mesozoische Zeitalter genannt wird. Es reicht vom Ende der permischen Schichtenbildung bis zum Ende der Kreideschichtenbildung und zerfällt abermals in drei große Perioden. Die währenddessen abgelagerten Schichtensysteme sind zu unterst das Triassystem, in der Mitte das Jurasystem und zu oberst das Kreidesystem. Die durchschnittliche Dicke dieser drei Systeme zusammengenommen bleibt schon weit hinter derjenigen der primären Systeme zurück und beträgt im ganzen nur ungefähr 15000 Fuß. Die Sekundärzeit wird demnach wahrscheinlich nicht halb so lang als die Primärzeit gewesen sein.
Wie in der Primärzeit die Fische, so herrschen in der Sekundärzeit die Schleicher oder Reptilien über alle übrigen Wirbeltiere vor. Zwar entstanden während dieses Zeitraums die ersten Vögel und Säugetiere; auch lebten damals die riesigen Labyrinthodonten; und zu den zahlreich vorhandenen Urfischen und Schmelzfischen der älteren Zeit gesellten sich die ersten echten Knochenfische. Aber die charakteristische und überwiegende Wirbeltierklasse der Sekundärzeit bildeten die höchst mannigfaltig entwickelten Reptilien. Neben solchen Schleichern, welche den heute noch lebenden Eidechsen, Krokodilen und Schildkröten nahestanden, wimmelte es in der mesozoischen Zeit überall von abenteuerlich gestalteten Drachen. Insbesondere sind die merkwürdigen fliegenden Eidechsen oder Pterosaurier, die schwimmenden Seedrachen oder Halisaurier und die kolossalen Landdrachen oder Dinosaurier der Sekundärzeit eigentümlich, da sie weder vorher noch nachher lebten. Man kann demgemäß die Sekundärzeit das Zeitalter der Schleicher oder Reptilien nennen. Andere bezeichnen sie als das Zeitalter der Nadelwälder, genauer eigentlich der Gymnospermen oder Nacktsamenpflanzen. Diese Pflanzen, vorzugsweise durch die beiden wichtigen Klassen der Nadelhölzer oder Koniferen und der Farnpalmen oder Zycadeen vertreten, setzten während der Sekundärzeit ganz überwiegend den Bestand der Wälder zusammen. Die farnartigen Pflanzen traten dagegen zurück und die Laubhölzer entwickelten sich erst gegen Ende des Zeitalters, in der Kreidezeit.
Viel kürzer und weniger eigentümlich als diese drei ersten Zeitalter war der vierte Hauptabschnitt der organischen Erdgeschichte, die Tertiärzeit oder das Zeitalter der Laubwälder. Dieser Zeitraum, welcher auch zänolithisches oder zänozoisches Zeitalter heißt, erstreckte sich vom Ende der Kreideschichtenbildung bis zum Ende der pliozänen Schichtenbildung. Die währenddessen abgelagerten Schichten erreichen nur ungefähr eine mittlere Mächtigkeit von 3000 Fuß und bleiben demnach weit hinter den drei ersten Terrains zurück. Auch sind die drei Systeme, welche man in dem tertiären Terrain unterscheidet, nur schwer voneinander zu trennen. Das älteste derselben heißt eozänes oder alttertiäres, das mittlere miozänes oder mitteltertiäres und das jüngste pliozänes oder neutertiäres System.
Die gesamte Bevölkerung der Tertiärzeit nähert sich im ganzen und im einzelnen schon viel mehr derjenigen der Gegenwart, als es in den vorhergehenden Zeitaltern der Fall war. Unter den Wirbeltieren überwiegt von nun an die Klasse der Säugetiere bei weitem alle übrigen. Ebenso herrscht in der Pflanzenwelt die formenreiche Gruppe der Decksamen-Pflanzen oder Angiospermen vor; ihre Laubhölzer bilden die charakteristischen Laubwälder der Tertiärzeit. Die Abteilung der Angiospermen besteht aus den beiden Klassen der Einkeimblättrigen oder Monokotylen und der Zweikeimblättrigen oder Dikotylen. Zwar hatten sich Angiospermen aus beiden Klassen schon in der Kreidezeit gezeigt, und Säugetiere traten schon im letzten Abschnitt der Triaszeit auf. Allein beide Gruppen, Säugetiere und Decksamenpflanzen, erreichen ihre eigentliche Entwicklung und Oberherrschaft erst in der Tertiärzeit, so daß man diese mit vollem Rechte danach benennen kann.
Den fünften und letzten Hauptabschnitt der organischen Erdgeschichte bildet die Quartärzeit oder Kulturzeit, derjenige, gegen die Länge der vier übrigen Zeitalter verschwindend kurze Zeitraum, den wir gewöhnlich in komischer Selbstüberhebung die „Weltgeschichte“ zu nennen pflegen. Da die Ausbildung des Menschen und seiner Kultur mächtiger als alle früheren Vorgänge auf die organische Welt umgestaltend einwirkte, und da sie vor allem dieses jüngste Zeitalter charakterisiert, so könnte man dasselbe auch die Menschenzeit, das anthropolithische oder anthropozoische Zeitalter nennen. Es könnte allenfalls auch das Zeitalter der Kulturwälder heißen, weil selbst auf den niederen Stufen der menschlichen Kultur ihr umgestaltender Einfluß sich bereits in der Benutzung der Wälder und ihrer Erzeugnisse, und somit auch in der Physiognomie der Landschaft bemerkbar macht. Geologisch wird der Beginn dieses Zeitalters, welches bis zur Gegenwart reicht, durch das Ende der pliozänen Schichtenablagerung begrenzt.
Die neptunischen Schichten, welche während des verhältnismäßig kurzen quartären Zeitraums abgelagert wurden, sind an den verschiedenen Stellen der Erde von sehr verschiedener, meist aber von sehr geringer Dicke. Man bringt dieselben in zwei verschiedene Systeme, von denen man das ältere als diluvial oder pleistozän, das neuere als alluvial oder rezent bezeichnet. Das Diluvialsystem zerfällt selbst wieder in zwei Formationen, in die älteren glazialen und die neueren postglazialen Bildungen. Während der älteren Diluvialzeit nämlich fand jene außerordentlich merkwürdige Erniedrigung der Erdtemperatur statt, welche zu einer ausgedehnten Vergletscherung der gemäßigten Zonen führte. Diese „Eiszeit“ oder Glazialperiode hat für die geographische und topographische Verbreitung der Organismen hohe Bedeutung gewonnen. Auch die auf die Eiszeit folgende „Nacheiszeit“, die postglaziale Periode oder die neuere Diluvialzeit, während welcher die Temperatur wiederum stieg und das Eis sich nach den Polen zurückzog, war für die gegenwärtige Gestaltung der chorologischen Verhältnisse höchst bedeutungsvoll.
Der biologische Charakter der Quartärzeit liegt wesentlich in der Entwicklung und Ausbreitung des menschlichen Organismus und seiner Kultur. Weit mehr als jeder andere Organismus hat der Mensch umgestaltend, zerstörend und neubildend auf die Tier- und Pflanzenbevölkerung der Erde eingewirkt. Aus diesem Grunde — nicht weil wir dem Menschen im übrigen eine privilegierte Ausnahmestellung in der Natur einräumen — können wir mit vollem Rechte die Ausbreitung des Menschen und seiner Kultur als Beginn eines besonderen letzten Hauptabschnitts der organischen Erdgeschichte bezeichnen. Wahrscheinlich fand allerdings die körperliche Entwicklung des Urmenschen aus menschenähnlichen Affen bereits in der jüngeren oder pliozänen, vielleicht sogar schon in der mittleren oder miozänen Tertiärzeit statt. Allein die eigentliche Entwicklung der menschlichen Sprache, welche wir als den wichtigsten Hebel für die Ausbildung der eigentümlichen Vorzüge des Menschen und seiner Herrschaft über die übrigen Organismen betrachten, fällt wahrscheinlich erst in jenen Zeitraum, welchen man aus geologischen Gründen als pleistozäne oder diluviale Zeit von der vorhergehenden Pliozänperiode trennt. Jedenfalls ist derjenige Zeitraum, welcher seit der Entwicklung der menschlichen Sprache bis zur Gegenwart verfloß, mag derselbe auch viele Jahrtausende und vielleicht Hunderttausende von Jahren in Anspruch genommen haben, verschwindend gering gegen die unermeßliche Länge der Zeiträume, welche vom Beginn des organischen Lebens auf der Erde bis zur Entstehung des Menschengeschlechts verflossen.
Die tabellarische Übersicht Seite 69 zeigt die Reihenfolge der paläontologischen Terrains, Systeme und Formationen, d. h. der größeren und kleineren neptunischen Schichtengruppen, welche Versteinerungen einschließen, von den obersten oder alluvialen bis zu den untersten oder laurentischen Ablagerungen hinab. Die Tabelle Seite 68 führt die historische Einteilung der entsprechenden Zeiträume vor, der größeren und kleineren paläontologischen Perioden, und zwar in umgekehrter Reihenfolge.
Übersicht der paläontologischen Perioden oder der größeren Zeitabschnitte der organischen Erdgeschichte.
Erster Zeitraum: Archozoisches Zeitalter. Primordial-Zeit. (Zeitalter der Schädellosen und der Tangwälder.)
1. Ältere Archolithzeit oder Laurentische Periode.
2. Mittlere Archolithzeit " Kambrische Periode.
3. Neuere Archolithzeit " Silurische Periode.
Zweiter Zeitraum: Paläozoisches Zeitalter. Primär-Zeit. (Zeitalter der Fische und Farnwälder.)
4. Ältere Paläolithzeit oder Devonische Periode.
5. Mittlere Paläolithzeit " Steinkohlen-Periode.
6. Neuere Paläolithzeit " Permische Periode.
Dritter Zeitraum: Mesozoisches Zeitalter. Sekundär-Zeit. (Zeitalter der Reptilien und der Nadelwälder.)
7. Ältere Mesolithzeit oder Trias-Periode.
8. Mittlere Mesolithzeit " Jura-Periode.
9. Neuere Mesolithzeit " Kreide-Periode.
Vierter Zeitraum: Zänozoisches Zeitalter. Tertiär-Zeit. (Zeitalter der Säugetiere und der Laubwälder.)
10. Ältere Zänolithzeit oder Eozäne Periode.
11. Mittlere Zänolithzeit " Miozäne Periode.
12. Neuere Zänolithzeit " Pliozäne Periode.
Fünfter Zeitraum: Anthropozoisches Zeitalter. Quartär-Zeit. (Zeitalter der Menschen und der Kulturwälder.)
13. Ältere Anthropolithzeit oder Eiszeit. Glaziale Periode.
14. Mittlere Anthropolithzeit " Postglaziale Periode.
15. Neuere Anthropolithzeit " Kultur-Periode.
(Die Kultur-Periode ist die historische Zeit oder die Periode der Überlieferungen.)
Übersicht der paläontologischen Formationen oder der versteinerungsführenden Schichten der Erdrinde.
Terrains Systeme Formation Synonyme der Formationen
V. Anthropolithische Terrains oder anthropozoische (quartäre) Schichtengruppen XIV. Rezent (Alluvium) 36. Präsent Oberalluviale
35. Rezent Unteralluviale
XIII. Pleistozän (Diluvium) 34. Postglazial Oberdiluviale
33. Glazial Unterdiluviale
IV. Zänolithische Terrains oder zänozoische (tertiäre) Schichtengruppen XII. Pliozän (Neutertiär) 32. Arvern Oberpliozäne
31. Subapennin Unterpliozäne
XI. Miozän (Mitteltertiär) 30. Falun Obermiozäne
29. Limburg Untermiozäne
X. Eozän (Alttertiär) 28. Gips Obereozäne
27. Grobkalk Mitteleozäne
26. Londonton Untereozäne
III. Mesolithische Terrains oder mesozoische (sekundäre) Schichtengruppen IX. Kreide 25. Weißkreide Oberkreide
24. Grünsand Mittelkreide
23. Neokom Unterkreide
22. Wealden Wälderformation
VIII. Jura 21. Portland Oberoolith
20. Oxford Mitteloolith
19. Bath Unteroolith
18. Lias Liasformation
VII. Trias 17. Keuper Obertrias
16. Muschelkalk Mitteltrias
15. Buntsand Untertrias
II. Paläolithische Terrains oder paläozoische (primäre) Schichtengruppen VI. Permisches (Dyas) 14. Zechstein Oberpermische
13. Neurotsand Unterpermische
V. Karbonisches (Steinkohle) 12. Kohlensand Oberkarbonische
11. Kohlenkalk Unterkarbonische
IV. Devonisches (Altrotsand) 10. Pilton Oberdevonische
9. Ilfracombe Mitteldevonische
8. Linton Unterdevonische
I. Archolithische Terrains oder archozoische (primordiale) Schichtengruppen III. Silurisches 7. Ludlow Obersilurische
6. Landovery Mittelsilurische
5. Landeilo Untersilurische
II. Kambrisches 4. Potsdam Oberkambrische
3. Longmynd Unterkambrische
I. Laurentisches 2. Labrador Oberlaurentische
1. Ottawa Unterlaurentische
Tabelle zur Übersicht der neptunischen versteinerungsführenden Schichten-Systeme der Erdrinde mit Bezug auf ihre verhältnismäßige durchschnittliche Dicke. (130000 Fuß zirka.)
IV. Zänozoische Schichten-Systeme. Zirka 3000 Fuß. Eozän, Miozän, Pliozän.
III. Mesozoische Schichten-Systeme. Ablagerungen der Sekundärzeit. Zirka 15000 Fuß. IX. Kreide-System.
VIII. Jura-System.
VII. Trias-System.
II. Paläozoische Schichten-Systeme. Ablagerungen der Primär-Zeit. Zirka 42000 Fuß. VI. Permisches System.
V. Steinkohlen-System.
IV. Devonisches System.
I. Archozoische Schichten-Systeme. Ablagerungen der Primordial-Zeit. Zirka 70000 Fuß. III. Silurisches System. Zirka 22000 Fuß.
II. Kambrisches System. Zirka 18000 Fuß.
I. Laurentisches System. Zirka 30000 Fuß.
Man hat viele Versuche angestellt, die Zahl der Jahrtausende, welche diese Zeiträume zusammensetzen, annähernd zu berechnen. Man verglich die Dicke der Schlammschichten, welche erfahrungsgemäß während eines Jahrhunderts sich absetzen, und welche nur wenige Linien oder Zolle betragen, mit der gesamten Dicke der geschichteten Gesteinsmassen, deren ideales System wir soeben überblickt haben. Diese Dicke mag im ganzen durchschnittlich ungefähr 130000 Fuß betragen, und hiervon kommen 70000 auf das primordiale oder archozoische, 42000 auf das primäre oder paläozoische, 15000 auf das sekundäre oder mesozoische und endlich nur 3000 auf das tertiäre oder zänozoische Terrain. Die sehr geringe und nicht annähernd bestimmbare durchschnittliche Dicke des quartären oder anthropozoischen Terrains kommt dabei gar nicht in Betracht. Man kann sie höchstens durchschnittlich auf 500-700 Fuß anschlagen. Selbstverständlich haben aber alle diese Maßangaben nur einen ganz durchschnittlichen und annähernden Wert und sollen nur dazu dienen, das relative Maßverhältnis der Schichtensysteme und der ihnen entsprechenden Zeitabschnitte ganz ungefähr zu überblicken. Auch werden die Maße sehr verschieden abgeschätzt.
Wenn man nun die gesamte Zeit der organischen Erdgeschichte, d. h. den ganzen Zeitraum seit Beginn des Lebens auf der Erde bis auf den heutigen Tag, in hundert gleiche Teile teilt, und wenn man dann, dem angegebenen durchschnittlichen Dickenverhältnis der Schichtensysteme entsprechend, die relative Zeitdauer der fünf Hauptabschnitte oder Zeitalter nach Prozenten berechnet, so ergibt sich folgendes Resultat. (Vergl. Seite 70.)
I. Archozoische oder Primordialzeit 53,6
II. Paläozoische oder Primärzeit 32,1
III. Mesozoische oder Sekundärzeit 11,5
IV. Zänozoische oder Tertiärzeit 2,3
V. Anthropozoische oder Quartärzeit 0,5
———
Summa: 100,0
Es beträgt demnach die Länge des archozoischen Zeitraums, währenddessen fast noch keine landbewohnenden Tiere und Pflanzen existierten, mehr als die Hälfte, mehr als 53 Prozent, dagegen die Länge des anthropozoischen Zeitraums, währenddessen der Mensch existierte, kaum ein halbes Prozent von der ganzen Länge der organischen Erdgeschichte. Es ist aber ganz unmöglich, die Länge dieser Zeiträume auch nur annähernd nach Jahren zu berechnen.
Die Dicke der Schlammschichten, welche während eines Jahrhunderts sich in der Gegenwart ablagern, und welche man als Basis für diese Berechnung benutzen wollte, ist an den verschiedenen Stellen der Erde unter den ganz verschiedenen Bedingungen, unter denen überall die Ablagerung stattfindet, natürlich ganz verschieden. Sie ist sehr gering auf dem Boden des hohen Meeres, in den Betten breiter Flüsse mit kurzem Laufe und in Landseen, welche sehr dürftige Zuflüsse erhalten. Sie ist verhältnismäßig bedeutend an Meeresküsten mit starker Brandung, am Ausfluß großer Ströme mit langem Lauf und in Landseen mit starken Zuflüssen. An der Mündung des Mississippi, welcher sehr bedeutende Schlammassen mit sich fortführt, würden in 100000 Jahren wohl etwa 600 Fuß abgelagert werden. Auf dem Grunde des offenen Meeres, weit von den Küsten entfernt, werden sich während dieses langen Zeitraums nur wenige Fuß Schlamm absetzen. Selbst an den Küsten, wo verhältnismäßig viel Schlamm abgelagert wird, mag die Dicke der dadurch während eines Jahrhunderts gebildeten Schichten, wenn sie nachher sich zu festem Gesteine verdichtet haben, doch nur wenige Zoll oder Linien betragen. Jedenfalls aber bleiben alle auf diese Verhältnisse gegründeten Berechnungen ganz unsicher, und wir können uns auch nicht einmal annähernd die ungeheure Länge der Zeiträume vorstellen, welche zur Bildung jener neptunischen Schichtensysteme erforderlich waren. Nur relative, nicht absolute Zeitmaße sind hier mit Vorsicht anwendbar.
Man würde übrigens auch vollkommen fehlgehen, wenn man die Mächtigkeit jener Schichtensysteme allein als Maßstab für die inzwischen wirklich verflossene Zeit der Erdgeschichte betrachten wollte. Denn Hebungen und Senkungen der Erdrinde haben beständig miteinander gewechselt, und aller Wahrscheinlichkeit nach entspricht oft der mineralogische und paläontologische Unterschied, den man zwischen je zwei aufeinander folgenden Schichtensystemen und zwischen je zwei Formationen derselben wahrnimmt, einem beträchtlichen Zwischenraum von mehreren Jahrtausenden, währenddessen die betreffende Stelle der Erdrinde über das Wasser gehoben war. Erst nach Ablauf dieser Zwischenzeit, als eine neue Senkung diese Stelle wieder unter Wasser brachte, fand die Ablagerung einer neuen Bodenschicht statt. Da aber inzwischen die anorganischen und organischen Verhältnisse an diesem Orte eine beträchtliche Umbildung erfahren hatten, mußte die neugebildete Schlammschicht aus verschiedenen Bodenbestandteilen zusammengesetzt sein und ganz verschiedene Versteinerungen einschließen.
Die auffallenden Unterschiede, die zwischen den Versteinerungen zweier übereinander liegenden Schichten so häufig stattfinden, sind einfach und leicht nur durch die Annahme zu erklären, daß derselbe Punkt der Erdoberfläche wiederholten Senkungen und Hebungen ausgesetzt wurde. Noch gegenwärtig finden solche Hebungen und Senkungen, welche man teils der Faltung der schrumpfenden Erdrinde, teils der Reaktion des feuerflüssigen Erdkerns gegen die erstarrte Rinde zuschreibt, in weiter Ausdehnung statt. So steigt z. B. die Küste von Schweden und ein Teil von der Westküste Südamerikas beständig langsam empor, während die Küste von Holland und ein Teil von der Ostküste Südamerikas allmählich untersinkt. Das Steigen wie das Sinken geschieht nur sehr langsam und beträgt im Jahrhundert bald nur einige Linien, bald einige Zoll oder höchstens einige Fuß. Wenn aber diese Bewegung Hunderte von Jahrtausenden hindurch ununterbrochen andauert, kann sie die höchsten Gebirge bilden.
Offenbar haben ähnliche Hebungen und Senkungen während des ganzen Verlaufes der organischen Erdgeschichte ununterbrochen an verschiedenen Stellen miteinander gewechselt. Das ergibt sich mit Sicherheit aus der geographischen Verbreitung der Organismen. Nun ist es aber für die Beurteilung unserer paläontologischen Schöpfungsurkunde außerordentlich wichtig, sich klarzumachen, daß bleibende Schichten sich bloß während langsamer Senkung des Bodens unter Wasser ablagern können, nicht aber während andauernder Hebung. Wenn der Boden langsam mehr und mehr unter den Meeresspiegel versinkt, so gelangen die abgelagerten Schlammschichten in immer tieferes und ruhigeres Wasser, wo sie sich ungestört zu Gestein verdichten können. Wenn sich dagegen umgekehrt der Boden langsam hebt, so kommen die soeben abgelagerten Schlammschichten, welche Reste von Pflanzen und Tieren umschließen, sogleich wieder in den Bereich des Wogenspiels und werden durch die Kraft der Brandung alsbald nebst den eingeschlossenen organischen Resten zerstört. Aus diesem einfachen, aber sehr gewichtigen Grunde können also nur während einer andauernden Senkung des Bodens sich reichlichere Schichten ablagern, in denen die organischen Reste erhalten bleiben. Wenn je zwei verschiedene übereinander liegende Formationen oder Schichten mithin zwei verschiedenen Senkungsperioden entsprechen, so müssen wir zwischen diesen letzteren einen langen Zeitraum der Hebung annehmen, von dem wir gar nichts wissen, weil uns keine fossilen Reste von den damals lebenden Tieren und Pflanzen aufbewahrt werden konnten. Offenbar verdienen aber diese spurlos dahingegangenen Hebungszeiträume nicht geringere Berücksichtigung als die damit abwechselnden Senkungszeiträume, von deren organischer Bevölkerung uns die versteinerungsführenden Schichten eine ungefähre Vorstellung geben. Wahrscheinlich waren die ersteren durchschnittlich von nicht geringerer Dauer als die letzteren; für diese Annahme sprechen viele gewichtige Gründe.
Schon hieraus ergibt sich, wie unvollständig unsere Urkunde notwendig sein muß, um so mehr, da sich theoretisch erweisen läßt, daß gerade während der Hebungszeiträume das Tier- und Pflanzenleben an Mannigfaltigkeit zunehmen mußte. Denn indem neue Strecken Landes über das Wasser gehoben werden, bilden sich neue Inseln. Jede neue Insel ist aber ein neuer Schöpfungsmittelpunkt, weil die zufällig dorthin verschlagenen Tiere und Pflanzen aus dem neuen Boden im Kampf ums Dasein reiche Gelegenheit finden, sich eigentümlich zu entwickeln und neue Arten zu bilden. Die Bildung neuer Arten hat offenbar während dieser Zwischenzeiten, aus denen uns leider keine Versteinerungen erhalten bleiben konnten, vorzugsweise stattgefunden; umgekehrt gab die langsame Senkung des Bodens eher Gelegenheit zum Aussterben zahlreicher Arten und zu einem Rückschritt in der Artenbildung. Auch die Zwischenformen zwischen den alten und den neu sich bildenden Spezies werden vorzugsweise während jener Hebungszeiträume gelebt haben und konnten daher ebenfalls keine fossilen Reste hinterlassen.
Zu den sehr bedeutenden und empfindlichen Lücken der paläontologischen Schöpfungsurkunde, welche durch die Hebungszeiträume bedingt werden, kommen nun leider noch viele andere Umstände hinzu, welche den hohen Wert derselben außerordentlich verringern. Dahin gehört vor allen der metamorphische Zustand der ältesten Schichtengruppen, gerade derjenigen, welche die Reste der ältesten Flora und Fauna, der Stammformen aller folgenden Organismen enthalten, und dadurch von ganz besonderem Interesse sein würden. Gerade diese Gesteine, und zwar der größere Teil der primordialen oder archolithischen Schichten, fast das ganze laurentische und ein großer Teil des kambrischen Systems, enthalten gar keine kenntlichen Reste mehr, und zwar aus dem einfachen Grunde, weil diese Schichten durch den Einfluß des feuerflüssigen Erdinnern nachträglich wieder verändert oder metamorphosiert wurden. Durch die Hitze des glühenden Erdkerns sind diese tiefsten neptunischen Rindenschichten in ihrer ursprünglichen Schichtenstruktur gänzlich umgewandelt und in einen kristallinischen Zustand übergeführt worden. Dabei ging aber die Form der darin eingeschlossen organischen Reste ganz verloren. Nur hier und da wurde sie durch einen glücklichen Zufall erhalten, wie es bei manchen der ältesten bekannten Petrefakten aus den untersten kambrischen Schichten der Fall ist. Jedoch können wir aus den Lagern von kristallinischer Kohle (Graphit) und kristallinischem Kalk (Marmor), welche sich in den metamorphischen Gesteinen eingelagert finden, mit Sicherheit auf die frühere Anwesenheit von versteinerten Pflanzen- und Tierresten in denselben schließen. Neuerdings sind fossile Radiolarien auch in präkambrischen Schichten entdeckt.
Außerordentlich unvollständig wird unsere Schöpfungsurkunde durch den Umstand, daß erst ein sehr kleiner Teil der Erdoberfläche genauer geologisch untersucht ist, vorzugsweise Europa und Nordamerika; auch von Südamerika und Ostindien sind einzelne Stellen der Erdrinde aufgeschlossen; der größte Teil derselben ist uns aber unbekannt. Dasselbe gilt vom größten Teil Asiens, des umfangreichsten aller Weltteile, auch von Afrika (ausgenommen das Kap der Guten Hoffnung und die Mittelmeerküste) und von Australien wissen wir nur sehr wenig. Im ganzen ist wohl kaum der hundertste Teil der gesamten Erdoberfläche gründlich paläontologisch erforscht. Wir können daher wohl hoffen, bei weiterer Ausbreitung der geologischen Untersuchungen, denen namentlich die Anlage von Eisenbahnen und Bergwerken sehr zu Hilfe kommen wird, noch einen großen Teil wichtiger Versteinerungen aufzufinden. Ein Fingerzeig dafür ist uns durch die merkwürdigen Versteinerungen gegeben, die man an den wenigen genauer untersuchten Punkten von Afrika und Asien, in den Kapgegenden und am Himalaja, sowie neuerdings in Patagonien aufgefunden hat. Eine Reihe von ganz neuen und sehr eigentümlichen Tierformen ist uns dadurch bekannt geworden. Freilich müssen wir anderseits erwägen, daß der ausgedehnte Boden der jetzigen Meere vorläufig für die paläontologischen Forschungen fast unzugänglich ist; den größten Teil der hier seit uralten Zeiten begrabenen Versteinerungen werden wir entweder niemals oder erst nach Verlauf vieler Jahrtausende kennen lernen, wenn durch allmähliche Hebungen der gegenwärtige Meeresboden mehr zutage getreten sein wird. Wenn Sie bedenken, daß die ganze Erdoberfläche zu ungefähr drei Fünfteilen aus Wasser und nur zu zwei Fünfteilen aus Festland besteht, so können Sie ermessen, daß auch in dieser Beziehung die paläontologische Urkunde eine ungeheure Lücke enthalten muß.
Nun kommen aber noch eine Reihe von Schwierigkeiten für die Paläontologie hinzu, welche in der Natur der Organismen selbst begründet sind. Vor allem ist hier hervorzuheben, daß in der Regel nur harte und feste Körperteile der Organismen auf den Boden des Meeres und der süßen Gewässer gelangen und hier in Schlamm eingeschlossen und versteinert werden können. Es sind also namentlich die Knochen und Zähne der Wirbeltiere, die Kalkschalen der Weichtiere, die Chitinskelette der Gliedertiere, die Kalkskelette der Sterntiere und Korallen, ferner die holzigen, festen Teile der Pflanzen, die einer solchen Versteinerung fähig sind. Die weichen und zarten Teile dagegen, welche bei den allermeisten Organismen den bei weitem größten Teil des Körpers bilden, gelangen nur sehr selten unter so günstigen Verhältnissen in den Schlamm, daß sie versteinern, oder daß ihre äußere Form deutlich in dem erhärteten Schlamme sich abdrückt. Nun bedenken Sie, daß ganze große Klassen von Organismen, wie z. B. die Medusen, die Platoden, die nackten Mollusken, welche keine Schale haben, ein großer Teil der Gliedertiere, die meisten Würmer und selbst die niedersten Wirbeltiere gar keine festen und harten, versteinerungsfähigen Körperteile besitzen. Ebenso sind gerade die wichtigsten Pflanzenteile, die Blüten, meistens so weich und zart, daß sie sich nicht in kenntlicher Form konservieren können. Von allen diesen wichtigen Lebensformen werden wir naturgemäß auch gar keine versteinerten Reste zu finden erwarten können. Ferner sind die Embryonen und Jugendzustände fast aller Organismen so weich und zart, daß sie gar nicht versteinerungsfähig sind. Was wir also von Versteinerungen in den neptunischen Schichtensystemen der Erdrinde vorfinden, das sind im Verhältnis zum Ganzen nur wenige Formen, und meistens nur einzelne Bruchstücke.
Sodann ist zu berücksichtigen, daß die Meerbewohner in einem viel höheren Grade Aussicht haben, ihre toten Körper in den abgelagerten Schlammschichten versteinert zu erhalten, als die Bewohner der süßen Gewässer und des Festlandes. Die das Land bewohnenden Organismen können in der Regel nur dann versteinert werden, wenn ihre Leichen zufällig ins Wasser fallen und auf dem Boden in erhärtenden Schlammschichten begraben werden, was von mancherlei Bedingungen abhängig ist. Daher kann es uns nicht wundernehmen, daß die bei weitem größte Mehrzahl der Versteinerungen Organismen angehört, die im Meere lebten, und daß von den Landbewohnern verhältnismäßig nur sehr wenige im fossilen Zustande erhalten sind. Welche Zufälligkeiten hierbei ins Spiel kommen, mag Ihnen allein der Umstand beweisen, daß man von vielen fossilen Säugetieren, insbesondere von den meisten Säugetieren der Sekundärzeit, weiter nichts kennt als den Unterkiefer. Dieser Knochen ist erstens verhältnismäßig fest und löst sich zweitens sehr leicht von dem toten Körper, der auf dem Wasser schwimmt, ab. Während die Leiche vom Wasser fortgetrieben und zerstört wird, fällt der Unterkiefer auf den Grund des Wassers hinab und wird hier vom Schlamm umschlossen. Daraus erklärt sich allein die merkwürdige Tatsache, daß in einer Kalkschicht des Jurasystems bei Oxford in England, in den Schiefern von Stonesfield, bis jetzt fast nur die Unterkiefer von zahlreichen Beuteltieren gefunden worden sind; sie gehören zu den ältesten Säugetieren, welche wir kennen. Von dem ganzen übrigen Körper derselben war auch nicht ein Knochen mehr vorhanden. Die „exakten“ Gegner der Entwicklungstheorie würden nach der bei ihnen gebräuchlichen Logik hieraus den Schluß ziehen müssen, daß der Unterkiefer der einzige Knochen im Leibe jener merkwürdigen Tiere war.
Für die kritische Würdigung der vielen unbedeutenden Zufälle, die unsere Kenntnis der Versteinerungen in der bedeutendsten Weise beeinflussen, sind ferner auch die Fußspuren sehr lehrreich, welche sich in großer Menge in verschiedenen ausgedehnten Sandsteinlagern, z. B. in dem roten Sandstein von Connecticut in Nordamerika, finden. Diese Fußtritte rühren offenbar von Wirbeltieren, wahrscheinlich von Reptilien her, von deren Körper selbst uns nicht die geringste Spur erhalten geblieben ist. Die Abdrücke, welche ihre Füße im Schlamm hinterlassen haben, verraten uns allein die vormalige Existenz von diesen uns sonst ganz unbekannten Tieren.
Welche Zufälligkeiten außerdem noch die Grenzen unserer paläontologischen Kenntnisse bestimmen, können Sie daraus ermessen, daß man von sehr vielen wichtigen Versteinerungen nur ein einziges oder nur ein paar Exemplare kennt. Im Jahre 1861 wurde im lithographischen Schiefer von Solnhofen das unvollständige Skelett des ältesten bis jetzt bekannten Vogels entdeckt; Archaeopteryx lithographica; 1877 wurde ebendaselbst ein zweites Exemplar gefunden, welches das erste in glücklichster Weise ergänzt. Die Kenntnis dieses einzigen Vogels aus dem Jurasystem besitzt für die Phylogenie der ganzen Vogelklasse die allergrößte Wichtigkeit. Alle bisher bekannten Vögel stellten eine sehr einförmig organisierte Gruppe dar, und zeigten keine auffallenden Übergangsbildungen zu anderen Wirbeltierklassen, auch nicht zu den nächstverwandten Reptilien. Jener fossile Vogel aus dem Jura dagegen besaß keinen gewöhnlichen Vogelschwanz, sondern einen Eidechsenschwanz, und bestätigte dadurch die aus anderen Gründen vermutete Abstammung der Vögel von den Eidechsen. Durch dieses Petrefakt wurde also nicht nur unsere Vorstellung von dem Alter der Vogelklasse, sondern auch von ihrer Blutsverwandtschaft mit den Reptilien wesentlich erweitert. Ebenso sind unsere Kenntnisse von anderen Tiergruppen oft durch die zufällige Entdeckung einer einzigen Versteinerung wesentlich umgestaltet worden. Da wir aber wirklich von vielen wichtigen Petrefakten nur sehr wenige Exemplare oder nur Bruchstücke kennen, so muß auch aus diesem Grunde die paläontologische Urkunde höchst unvollständig sein.
Eine weitere und sehr empfindliche Lücke derselben ist durch den Umstand bedingt, daß die Zwischenformen, welche die verschiedenen Arten verbinden, in der Regel nicht erhalten sind, und zwar aus dem einfachen Grunde, weil dieselben (nach dem Prinzip der Divergenz des Charakters) im Kampfe ums Dasein ungünstiger gestellt waren als die am meisten divergierenden Varietäten, die sich aus einer und derselben Stammform entwickelten. Die Zwischenglieder sind im ganzen immer rasch ausgestorben und haben sich nur selten vollständig erhalten. Die am stärksten divergierenden Formen dagegen konnten sich längere Zeit hindurch als selbständige Arten am Leben erhalten, sich in zahlreichen Individuen ausbreiten und demnach auch leichter versteinert werden. Dadurch ist jedoch nicht ausgeschlossen, daß nicht in vielen Fällen auch die verbindenden Zwischenformen der Arten sich so vollständig versteinert erhielten, daß sie noch gegenwärtig die systematischen Paläontologen in die größte Verlegenheit versetzen und endlose Streitigkeiten über die ganz willkürlichen Grenzen der Spezies hervorrufen.
Ein ausgezeichnetes Beispiel der Art liefert die berühmte vielgestaltige Süßwasserschnecke aus dem Stubental bei Steinheim in Württemberg, welche bald als Paludina, bald als Valvata, bald als Planorbis multiformis beschrieben worden ist. Die schneeweißen Schalen dieser kleinen Schnecke setzen mehr als die Hälfte von der ganzen Masse eines tertiären Kalkhügels zusammen und offenbaren dabei an dieser einen Lokalität eine solche wunderbare Formenmannigfaltigkeit, daß man die am meisten divergierenden Extreme als wenigstens zwanzig ganz verschiedene Arten beschreiben und diese sogar in vier ganz verschiedene Gattungen versetzen könnte. Aber alle diese extremen Formen sind durch so massenhafte verbindende Zwischenformen verknüpft, und diese liegen so gesetzmäßig über- und nebeneinander, daß Hilgendorf daraus auf das klarste den Stammbaum der ganzen Formengruppe entwickeln konnte. Ebenso finden sich bei sehr vielen anderen fossilen Arten (z. B. vielen Ammoniten, Terebrateln, Seeigeln, Seelilien usw.) die verknüpfenden Zwischenformen in solcher Masse, daß sie die „fossilen Spezieskrämer“ zur Verzweiflung bringen.
Wenn Sie nun alle vorher angeführten Verhältnisse erwägen, so werden Sie sich nicht darüber wundern, daß die paläontologische Schöpfungsurkunde ganz außerordentlich lückenhaft und unvollständig ist. Aber dennoch haben die wirklich gefundenen Versteinerungen den größten Wert. Ihre Bedeutung für die natürliche Schöpfungsgeschichte ist nicht geringer als die Bedeutung, welche die berühmte Inschrift von Rosette und das Dekret von Kanopus für die Völkergeschichte, für die Archäologie und Philologie besitzen. Wie es durch diese beiden uralten Inschriften möglich wurde, die Geschichte des alten Ägyptens außerordentlich zu erweitern und die ganze Hieroglyphenschrift zu entziffern, so genügen uns in vielen Fällen einzelne Knochen eines Tieres oder unvollständige Abdrücke einer niederen Tier- oder Pflanzenform, um die wichtigsten Anhaltspunkte für die Geschichte einer ganzen Gruppe und die Erkenntnis ihres Stammbaums zu gewinnen. Ein paar kleine Backzähne, die in der Keuperformation der Trias gefunden wurden, waren lange Zeit hindurch der einzige Beweis dafür, daß schon in der Triaszeit Säugetiere wirklich existiert haben.
Von der Unvollkommenheit des geologischen Schöpfungsberichtes sagt Darwin, in Übereinstimmung mit Lyell, dem berühmten Geologen: „Der natürliche Schöpfungsbericht, wie ihn die Paläontologie liefert, ist eine Geschichte der Erde, unvollständig erhalten und in wechselnden Dialekten geschrieben, wovon aber nur der letzte, bloß auf einige Teile der Erdoberfläche sich beziehende Band bis auf uns gekommen ist. Doch auch von diesem Bande ist nur hier und da ein kurzes Kapitel erhalten, und von jeder Seite sind nur da und dort einige Zeilen übrig. Jedes Wort der langsam wechselnden Sprache dieser Beschreibung, mehr oder weniger verschieden in der ununterbrochenen Reihenfolge der einzelnen Abschnitte, mag den anscheinend plötzlich wechselnden Lebensformen entsprechen, welche in den unmittelbar aufeinander liegenden Schichten unserer weit voneinander getrennten Formationen begraben liegen.“
Wenn Sie diese außerordentliche Unvollständigkeit der paläontologischen Urkunde sich beständig vor Augen halten, so wird es Ihnen nicht wunderbar erscheinen, daß wir noch auf so viele unsichere Hypothesen angewiesen sind, indem wir wirklich den Stammbaum der verschiedenen organischen Gruppen entwerfen wollen. Jedoch besitzen wir glücklicherweise außer den Versteinerungen auch noch andere historische Urkunden; und diese sind in vielen Fällen von nicht geringerem und in den meisten sogar von viel höherem Werte als die Petrefakten. Die bei weitem wichtigste von diesen anderen Schöpfungsurkunden ist ohne Zweifel die Ontogenie oder Keimesgeschichte; denn sie wiederholt uns kurz in großen, markigen Zügen das Bild der Stammesgeschichte oder Phylogenie.
Allerdings ist die Skizze, welche uns die Ontogenie der Organismen von ihrer Phylogenie gibt, in den meisten Fällen mehr oder weniger verwischt, und zwar um so mehr, je mehr die Anpassung im Laufe der Zeit das Übergewicht über die Vererbung erlangt hat, und je mächtiger das Gesetz der abgekürzten Vererbung und das Gesetz der wechselbezüglichen Anpassung eingewirkt haben. Allein dadurch wird der hohe Wert nicht vermindert, welchen die wirklich treu erhaltenen Züge jener Skizze besitzen. Besonders für die Erkenntnis der frühesten paläontologischen Entwicklungszustände ist die Ontogenie von ganz unschätzbaren Werte, weil gerade von den ältesten Entwicklungsstufen der Stämme und Klassen uns gar keine versteinerten Reste erhalten worden sind und auch schon wegen der weichen und zarten Körperbeschaffenheit derselben nicht erhalten bleiben konnten. Keine Versteinerung könnte uns von der unschätzbar wichtigen Tatsache berichten, welche die Ontogenie uns erzählt, daß die ältesten gemeinsamen Vorfahren aller verschiedenen Tier- und Pflanzenarten ganz einfache Zellen, gleich den Eiern waren. Keine Versteinerung könnte uns die unendlich wertvolle, durch die Ontogenie festgestellte Tatsache beweisen, daß durch einfache Vermehrung, Gemeindebildung und Arbeitsteilung jener Zellen die unendlich mannigfaltigen Körperformen der vielzelligen Organismen entstanden. Allein schon die Gastrulation ist eine der wichtigsten Stammesurkunden. So hilft uns die Ontogenie über viele und große Lücken der Paläontologie hinweg.
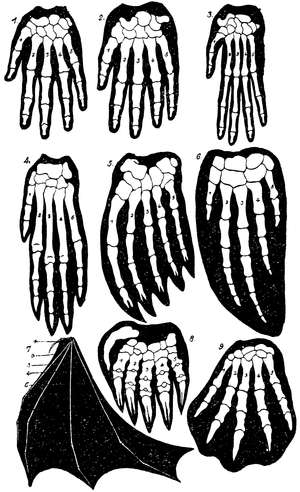
Hand von neun verschiedenen Säugetieren. 1. Mensch. 2. Gorilla. 3. Orang. 4. Hund. 5. Seehund. 6. Delphin. 7. Fledermaus. 8. Maulwurf. 9. Schnabeltier.
Zu den unschätzbaren Schöpfungsurkunden der Paläontologie und Ontogenie gesellen sich nun drittens die nicht minder wichtigen Zeugnisse für die Blutsverwandtschaft der Organismen, welche uns die vergleichende Anatomie liefert. Wenn äußerlich sehr verschiedene Organismen in ihrem inneren Bau nahezu übereinstimmen, so können wir daraus mit voller Sicherheit schließen, daß diese Übereinstimmung ihren Grund in der Vererbung, jene Ungleichheit dagegen ihren Grund in der Anpassung hat. Betrachten Sie z. B. vergleichend die Hände oder Vorderpfoten der neun verschiedenen Säugetiere, welche auf Seite 87 abgebildet sind, und bei denen das knöcherne Skelettgerüst im Innern der Hand und der fünf Finger sichtbar ist. Überall finden sich bei der verschiedensten äußeren Form dieselben Knochen in derselben Zahl, Lagerung und Verbindung wieder. Daß die Hand des Menschen (Fig. 1) von derjenigen seiner nächsten Verwandten, des Gorilla (Fig. 2) und des Orang (Fig. 3), sehr wenig verschieden ist, wird vielleicht sehr natürlich erscheinen. Wenn aber auch die Vorderpfote des Hundes (Fig. 4), sowie die Brustflosse (die Hand) des Seehundes (Fig. 5) und des Delphins (Fig. 6) ganz denselben wesentlichen Bau zeigt, so wird dies schon mehr überraschen. Und noch wunderbarer wird es Ihnen vorkommen, daß auch der Flügel der Fledermaus (Fig. 7), die Grabschaufel des Maulwurfs (Fig. 8) und der Vorderfuß des unvollkommensten aller Säugetiere, des Schnabeltieres (Fig. 9) ganz aus denselben Knochen zusammengesetzt ist. Nur die Größe und Form der Knochen ist vielfach geändert. Die Zahl und die Art ihrer Anordnung und Verbindung ist dieselbe geblieben. Es ist ganz undenkbar, daß irgendeine andere Ursache als die gemeinschaftliche Vererbung von gemeinsamen Stammeltern diese wunderbare Homologie oder Gleichheit im wesentlichen inneren Bau bei so verschiedener äußerer Form verursacht habe. Und wenn Sie nun im System von den Säugetieren weiter hinuntersteigen und finden, daß sogar bei den Vögeln die Flügel, bei den Reptilien und Amphibien die Vorderfüße wesentlich in derselben Weise aus denselben Knochen zusammengesetzt sind, wie die Arme des Menschen und die Vorderbeine der übrigen Säugetiere, so können Sie schon daraus auf die gemeinsame Abstammung aller dieser Wirbeltiere mit voller Sicherheit schließen. Der Grad der inneren Formverwandtschaft enthüllt Ihnen hier, wie überall, den Grad der wahren Stammverwandtschaft.
(Aus „Natürliche Schöpfungsgeschichte“.)