Erster Abschnitt. (continued 2)
Reading edition
Sichten wir das heute über Idiovariationen bekannte Tatsachenmaterial streng kritisch, so ergibt sich etwa folgendes Bild: Bei jeder bisher genügend daraufhin beobachteten Organismenart treten aus meist ganz unbekannten Ursachen und in sehr ungleicher Häufigkeit einzelne Idiovariationen auf. Die große Mehrzahl davon beruht darauf, daß ein neuer mendelnder Grundunterschied entsteht. Meistens zeigt bei Kreuzung der neuen Idiovariante mit der Stammrasse die Eigenschaftsausbildung der Stammrasse mehr oder weniger ausgesprochene Dominanz über die neu aufgetretene Eigenschaftsausbildung. Aber man kennt auch eine große Zahl von einwandsfreien Idiovarianten, die bei Kreuzung mit der Stammrasse dominieren. Sehr viel seltener sind bisher Idiovariationen gefunden worden, deren Unterschiede gegenüber der Stammrasse nicht „mendeln“, sondern in anderer Weise vererbt werden. Dieser Befund steht gut in Einklang damit, daß, wie wir ja gehört haben, die große Mehrzahl aller Rassenunterschiede mendelt, und daß Vererbung von Rassenunterschieden nach anderen Gesetzen nur selten gefunden wird.
Bestimmte Angaben über die Häufigkeit von Idiovariationen können heute noch nicht gemacht werden. Wenn nicht eine ganz besondere Versuchsanordnung getroffen wird, kann stets nur ein kleiner Teil der überhaupt vorkommenden Fälle von Idiovariationen wirklich auch gefunden und erkannt werden. Man kann nur sagen, daß bei den Organismen, die bisher daraufhin einigermaßen durchgearbeitet worden sind — das ist nur Drosophila und Antirrhinum — wohl mindestens unter je 1000 Nachkommen eines Elternpaares ein Individuum eine Idiovariation zeigt. Idiovariationen sind also doch häufiger als man lange Zeit geglaubt hat.
Wann und wo in einem Organismus die Idiovariation erfolgt, wo die ihr zugrunde liegende Veränderung des Idioplasmas vor sich geht, ist bei den sich nur geschlechtlich fortpflanzenden höheren Organismen kaum je mit Sicherheit zu entscheiden. Es spricht aber vieles dafür, daß die Idiovariation in jedem beliebigen Entwicklungsstadium erfolgen kann und daß dementsprechend bei den höheren Organismen die große Mehrzahl aller Idiovariationen in den diploiden Zellen sich abspielt. Dabei ist von größtem theoretischem Interesse, daß, soweit es sich um mendelnde Idiovariationen handelt, wohl sicher die beiden Chromosomensätze einer diploiden Zelle ganz unabhängig voneinander sind. Eine Idiovariation betrifft also nur den einen Chromosomensatz.
Durch Idiovariationen entstehen dauernd teils wirklich neue Rassenunterschiede, teils auch Rassenunterschiede, die es anderweitig schon gibt.
In letzter Linie bilden die Idiovariationen die Grundlage jeder Stammesentwicklung, ohne sie wäre eine Herausbildung neuer Sippen und Rassen und weiterhin Arten nicht möglich.
Über die Ursachen der Idiovariationen wissen wir fast nichts. Die große Mehrzahl aller in einwandfreien Versuchen beobachteter Fälle ist „spontan“ erfolgt, d. h. aber natürlich nur, daß man nichts über die Ursache weiß. Man kann aber doch sagen, daß es wahrscheinlich möglich ist, durch ganz verschiedenartige Eingriffe — hohe Temperaturen, Einwirkungen von Chemikalien, von Radium- und Röntgenstrahlen usw. — Idiovariationen auszulösen.
Ein Umstand, der nach allen bisher vorliegenden Beobachtungen bei den sich geschlechtlich fortpfanzenden Organismen sehr wahrscheinlich die Häufigkeiten von Idiovariationen vermehrt, ist starke Inzucht. Eine weitere auslösende Ursache von Idiovariationen ist ferner vielleicht in Kreuzungen sehr stark verschiedener Sippen zu suchen, wobei der ganze Mechanismus der Kern- und Zellteilung und vor allem der Reduktionsteilung gestört ist und die beiden verschiedenen Kernanteile nicht recht zusammenpassen. Nur ist es gerade bei Idiovariationen dieser letzten Kategorie meist sehr schwierig zu entscheiden, ob eine Idiovariation oder eine unregelmäßige Spaltung vorliegt. Genau besehen ist es auch theoretisch kaum möglich, hier eine reinliche Scheidung von Idiovariationen und Mixovariationen durchzuführen. Die beiden Kategorien von Variationen gehen hier ineinander über. Idiovariationen dieser letzten Art, also gewissermaßen Zwischenformen von Idiovariationen und Mixovariationen stellen die viel besprochenen de Vries’schen Mutationen von Oenothera — wenigstens in ihrer großen Mehrzahl — dar.
Die Neigung, bestimmte Idiovariationen häufig entstehen zu lassen, wird sehr wahrscheinlich als Sippencharakter vererbt, sehr wahrscheinlich vererbt sich diese Veranlagung nach den Spaltungsgesetzen. Das könnte man sich so vorstellen, daß gewisse Chromosomen einen besonders labilen Bau hätten und deshalb besonders leicht Idiovariationen entstehen lassen.
Von einem großen Interesse für die menschliche Pathologie sind Versuche, die man darüber angestellt hat, ob und wie starke Vergiftung die erbliche Beschaffenheit der Nachkommen ändert, d. h. Idiovariationen auslöst. Aus den Befunden am Menschen selbst kann man sehr schwer sichere Schlüsse ziehen. Denn wenn wir z. B. finden, daß die Kinder eines chronischen Säufers irgendwie minderwertig sind, so kann das darauf beruhen, daß auch der Vater nur deshalb ein Säufer geworden ist, weil er selbst schon psychisch minderwertig war, er hätte dann nur seine selbst schon ererbte Veranlagung weitervererbt. Oder die Kinder eines Säufers können deshalb minderwertig sein, weil sie unter hygienisch und sozial sehr viel ungünstigeren Verhältnissen aufwachsen, als Kinder gesunder Eltern. Hier zeigt nun der Tierversuch, daß chronische Alkoholvergiftung gesunder Tiere tatsächlich eine starke Schädigung der Nachkommen bedingt, die sich in sehr vielen Totgeburten und in schwächlichen und zum Teil mißbildeten Jungen äußert. Es handelt sich anscheinend dabei nicht bloß um eine „Nachwirkung“ (vgl. S. 9), sondern doch wohl um eine dauernde Schädigung des Idioplasmas, denn auch noch die Enkelgeneration (die F2-Tiere) von den alkoholisierten Tieren (den P1-Tieren) zeigt alle diese Schädigungen, auch wenn die F1-Tiere nicht mit Alkohol behandelt wurden. Damit, daß starke Vergiftungen und wohl auch andere Schädigungen, das Idioplasma zu beeinflussen, erbliche Schäden hervorzurufen imstande sind, muß doch wohl gerechnet werden. Dabei ist freilich im Auge zu behalten, daß für diese Tierversuche Alkoholvergiftungen angewendet wurden, wie sie auch bei den stärksten Säufern kaum je vorkommen.
Der weitaus größte Teil aller spontan auftretenden und aller künstlich ausgelösten Idiovariationen stellt, wenn man ein Werturteil darüber abgeben will, Mißbildungen dar, wäre also im Kampf ums Dasein nicht erhaltungsfähig.
Bei Menschen ist über einwandfreie Fälle von Idiovariationen nichts bekannt, es ist aber ohne weiteres anzunehmen, daß auch hier Idiovariationen ebenso häufig vorkommen, wie bei allen übrigen Organismen.
Bei Organismen, die sich, wie der Mensch, geschlechtlich und durch freie Paarung „panmiktisch“ fortpflanzen, spielen sich dauernd die geschilderten drei Kategorien von Variationserscheinungen nebeneinander und durcheinander ab. Die Beurteilung, ob ein Unterschied zwischen zwei Menschen auf Paravariation, auf Mixovariation oder auf Idiovariation beruht, ist meist sehr schwierig, viel schwieriger als der Laie zunächst wohl glaubt. Was vorliegt, kann — wenn überhaupt — meist erst durch ein sehr gründliches Studium entschieden werden. Es scheint notwendig, das am Schlusse dieses Kapitels noch ganz besonders zu betonen.
3. Der Einfluß der Variationserscheinungen auf die Zusammensetzung eines Volkes, die Wirkung von Auslesevorgängen.
Was wir heute als ein Volk bezeichnen, ist, biologisch betrachtet, ein ungeheuer bunt zusammengesetztes Gemisch. Wenn wir ein Paar Schakalfamilien aus Kleinasien (Canis aureus), ein Paar Schakalfamilien aus Nordafrika (Canis lupaster) und ein Paar Wolfsfamilien (Canis lupus) sich irgendwo in freier gegenseitiger Paarung unter möglichst günstigen Verhältnissen vermehren lassen, so daß alle Mixovarianten sich erhalten und auch viele Idiovarianten, etwa Dackelbeinigkeit, Mopsform, Windhundtyp, Langhaarigkeit usw. nicht durch eine natürliche Zuchtwahl ausgemerzt werden, dann würde so ein Hundevolk entstehen, das in seiner bunten Zusammensetzung etwa dem Rassenmischmasch eines heutigen Menschenvolkes entspräche.[4]
Es kann nicht scharf genug betont werden, daß das, was einem Volk, etwa den Deutschen oder den Engländern oder den Franzosen usw. gemeinsam ist und sie als Volk eint, nicht eigentlich die „Rasse“, sondern in erster Linie die gemeinsame Sprache und Kultur ist. Rassenunterschiede, etwa die Unterschiede zwischen den genannten Völkern, sind immer nur relative Unterschiede insofern, als die Mengenverhältnisse des Gemisches bei den verschiedenen Völkern etwas verschieden sind, in dem einen Volke sind diese, in dem andern jene Rassenbestandteile zahlreicher. Aber auch anthropologische Volksgrenzen in diesem Sinne fallen durchaus nicht mit den Sprachgrenzen zusammen.
Wenn wir finden, daß in einem großen nach vielen Millionen zählenden Volke so gut wie nie auch nur zwei Individuen einander gleich sind, daß vielmehr in allen Eigenschaften eine große „Variabilität“ besteht, so beruht das zu einem Teile darauf, daß die Einzelindividuen ungleich paravariiert sind (S. 7), zum Teil auch darauf, daß ab und zu einzelne neue Idiovariationen erfolgen, in der Hauptsache aber beruht dieses Verschiedensein der Einzelmenschen darauf, daß in einem solchen Mischvolke bei jeder Fortpflanzung immer wieder andere Kombinationen von mendelnden und nicht mendelnden Rassenunterschieden entstehen. Da Paravariationen nicht erblich sind, wird durch sie die erbliche Zusammensetzung eines Volkes nicht verändert, so groß auch der Einfluß der Ernährungsweise, der ganzen Lebenshaltung usw. auf den Einzelmenschen sein mag.
Sehr wesentlich wird dagegen durch Idiovariationen und unter gewissen Voraussetzungen (Auslesevorgänge!) auch durch Mixovariationen ein Volk in seiner erblichen Beschaffenheit verändert.
Wenn bestimmte Idiovariationen, etwa das Auftreten von erblicher Veranlagung zu Diabetes (Zuckerkrankheit), auch nur ab und zu auftreten — etwa auf 10000 Geburten einmal als heterozygotische Idiovariation — und es würden die Diabetiker nicht durch einen scharfen Auslesevorgang ausgemerzt, d. h. vermehrten sie sich ebenso stark wie der Volksdurchschnitt, dann würde der Prozentsatz der Diabetiker dauernd zunehmen, es müßte früher oder später eine Zeit kommen, zu der das ganze Volk fast nur noch aus Diabetikern besteht. Schon die Verhinderung einer natürlichen Ausmerzung, d. h. der zu weitgehende hygienische und soziale Schutz geistig oder körperlich minderwertiger Idiovarianten, kann zur Entartung eines Volkes führen, wenn nicht, in irgendeiner Weise dafür gesorgt wird, daß die Fortpflanzung der Minderwertigen unterbleibt, oder doch schwächer ist, als beim Volksdurchschnitt.
In der Hauptsache beruht die erbliche Variation aber nicht auf Idiovariation, sondern auf Mixovariation, d. h. auf dem wechselvollen Entstehen und Vergehen von immer wieder anderen Kombinationen. Zum größten Teil handelt es sich wohl dabei um Kombinationen nach den mendelschen Regeln.
Es ist nun die Frage, was wird aus einer solchen Bastardpopulation im Laufe der Zeit, wie ist sie nach einer längeren Reihe von Generationen zusammengesetzt? Wir wollen diese Frage an einem einfachen Beispiel besprechen und einmal annehmen, wir hätten eine Anzahl F1-Bastarde zwischen einer schwarzen (AA) und einer weißen (aa) Kaninchenrasse. Ein Pärchen von diesen Bastarden (Aa) stecken wir in einen großen Käfig und lassen sie sich unter möglichst günstigen Bedingungen vermehren. Das soll bei ganz unbeschränkter Paarung eine Reihe von Generationen so weiter gehen, wir wollen also auf diese Weise ein großes Volk von Kaninchen heranziehen, und die Frage ist, wie wird ein solches Kaninchenvolk zusammengesetzt sein. Die Antwort lautet: Es werden immer ziemlich genau ¼ aller Tiere weiß und ¾ schwarz sein. Wir hatten ein weibliches und ein männliches F1-Tier in den großen Käfig gesteckt. Deren Nachkommenschaft, d. h. die F2-Generation, müßte aus ¾ schwarzen und ¼ weißen Tieren zusammengesetzt sein. Nehmen wir etwa an, diese Generation bestehe aus im ganzen acht Tieren und zwar aus:
einem homozygotischen schwarzen Männchen AA, weiterhin als Männchen I,
zwei heterozygotischen schwarzen Männchen Aa, weiterhin als Männchen II und III,
einem homozygotischen weißen Männchen aa, weiterhin als Männchen IV,
einem homozygotischen schwarzen Weibchen AA, weiterhin als Weibchen α,
zwei heterozygotischen schwarzen Weibchen Aa, weiterhin als Weibchen β und γ,
einem homozygotischen weißen Weibchen aa, weiterhin als Weibchen δ
bezeichnet.
Zwischen diesen Tieren sind 16 verschiedene Paarungen möglich und gleich wahrscheinlich, können daher als gleich oft vorkommend in Rechnung gestellt werden, nämlich:
Weibchen α × Männchen I wird ergeben 4⁄4 n AA-Tiere
„ α × „ II „ „ 2⁄4 n AA-, 2⁄4 n Aa-Tiere
„ α × „ III „ „ 2⁄4 n AA-, 2⁄4 n Aa-Tiere
„ α × „ IV „ „ 4⁄4 n Aa-Tiere
„ β × „ I „ „ 2⁄4 n AA-, 2⁄4 n Aa-Tiere
„ β × „ II „ „ 1⁄4 n AA-, 2⁄4 n Aa-, 1⁄4 n aa-Tiere
„ β × „ III „ „ 1⁄4 n AA-, 2⁄4 n Aa-, 1⁄4 n aa-Tiere
„ β × „ IV „ „ 2⁄4 n Aa-, 2⁄4 n aa-Tiere
„ γ × „ I „ „ 2⁄4 n AA-, 2⁄4 n Aa-Tiere
„ γ × „ II „ „ 1⁄4 n AA-, 2⁄4 n Aa-, 1⁄4 n aa-Tiere
„ γ × „ III „ „ 1⁄4 n AA-, 2⁄4 n Aa-, 1⁄4 n aa-Tiere
„ γ × „ IV „ „ 2⁄4 n Aa-, 2⁄4 n aa-Tiere
„ δ × „ I „ „ 4⁄4 n Aa-Tiere
„ δ × „ II „ „ 2⁄4 n Aa-, 2⁄4 n aa-Tiere
„ δ × „ III „ „ 2⁄4 n Aa-, 2⁄4 n aa-Tiere
„ δ × „ IV „ „ 4⁄4 n aa-Tiere
Sa. 16⁄4 n AA-, 32⁄4 n Aa-, 16⁄4 n aa-Tiere d. h. 4 n AA- : 8 n Aa- : 4 n aa-Tiere
Die Ergebnisse aller dieser 16 einzelnen möglichen, in gleicher Häufigkeit zu erwartenden Paarungen sind in dieser Tabelle gleich mit angegeben. Es ist ferner in der Tabelle ausgerechnet, was alle 16 möglichen Paarungen zusammen ergeben müssen, und das Ergebnis ist, daß die Nachkommenschaft einer solchen durch freie Paarung sich vermehrenden F2-Generation von 1 Teil AA-, 2 Teilen Aa-, und 1 Teil aa-Kaninchen wieder ebenfalls aus 1 Teil AA-: 2 Teilen Aa-: 1 Teil aa-Kaninchen bestehen wird, d. h. eine auf diese Weise entstandene F2-Generation wird genau die gleiche Zusammensetzung zeigen, wie die F2-Generation. Das gleiche gilt auch für die nächsten Generationen, und gilt auch, wenn sich nicht bloß die Tiere einer Generation untereinander paaren, sondern auch, wenn die Individuen der verschiedenen Generationen sich paaren, was ja tatsächlich in einem solchen Versuche der Fall sein wird. Die gleiche Berechnung läßt sich auch anstellen, wenn die F1-Bastarde sich in mehreren Merkmalen unterscheiden und verwickelter, etwa nach 9 : 3 : 3 : 1 oder 27 : 9 : 9 : 9 : 3 : 3 : 3 : 1 aufspalten; auch dann werden die folgenden Generationen immer ungefähr die gleiche Zusammensetzung zeigen, wie die F2-Generation. Wenn also eine in freier Paarung sich vermehrende Bevölkerung aus einer F2-Generation nach einer Kreuzung hervorgeht, dann wird diese Population immer die Zusammensetzung zeigen, welche die ursprüngliche F2-Generation schon aufwies, vorausgesetzt, daß keinerlei Auslese vor sich geht.
Der Fall, daß eine ganze Population — etwa die sämtlichen Kaninchen einer Insel — nur von einer einzigen, einheitlichen F2-Generation abstammt, wird nun freilich in der Natur selten vorkommen, aber dieses Gesetz gilt auch noch viel weiter.
Wir können z. B. den eben beschriebenen Versuch etwas ändern, und wir wollen einmal in den großen Vermehrungskäfig als Stammtiere für das neue Kaninchenvolk folgende Tiere nehmen: zwei homozygotisch schwarze AA-Männchen (I und II genannt), zwei homozygotisch schwarze AA-Weibchen (α und β genannt), ein heterozygotisches schwarzes Aa-Männchen (III genannt) und ein heterozygotisches schwarzes Aa-Weibchen (γ genannt). Wenn wir diese sechs Tiere sich beliebig oft ganz regellos paaren lassen, dann bekommen wir eine nächste Generation, die aus homozygotisch schwarzen, heterozygotisch schwarzen und weißen Tieren besteht im Verhältnis 25 : 10 : 1.
Die Berechnung gibt die folgende Tabelle:
Das Weibchen α kann sich paaren mit dem Männchen I und wird geben:
4⁄4 n schwarze AA-Tiere.
Das Weibchen α kann sich paaren mit dem Männchen II und wird geben:
4⁄4 n schwarze AA-Tiere.
Das Weibchen α kann sich paaren mit dem Männchen III und wird geben:
2⁄4 n schwarze AA-, 2⁄4 n schwarze Aa-Tiere.
Das Weibchen β kann sich paaren mit dem Männchen I und wird geben:
4⁄4 n schwarze AA-Tiere.
Das Weibchen β kann sich paaren mit dem Männchen II und wird geben:
4⁄4 n schwarze AA-Tiere.
Das Weibchen β kann sich paaren mit dem Männchen III und wird geben:
2⁄4 n schwarze AA-, 2⁄4 n schwarze Aa-Tiere.
Das Weibchen γ kann sich paaren mit dem Männchen I und wird geben:
2⁄4 n schwarze AA-, 2⁄4 n schwarze Aa-Tiere.
Das Weibchen γ kann sich paaren mit dem Männchen II und wird geben:
2⁄4 n schwarze AA-, 2⁄4 n schwarze Aa-Tiere.
Das Weibchen γ kann sich paaren mit dem Männchen III und wird geben:
1⁄4 n schwarze AA-, 2⁄4 n schwarze Aa-, 1⁄4 n weiße aa-Tiere.
Das Ergebnis aller möglichen Paarungen: 25⁄4 n schwarze AA, 10⁄4 n schwarze Aa, 1⁄4 n weiße aa-Tiere.
Da alle Paarungen die gleiche Wahrscheinlichkeit haben, wird sich als Ergebnis einer sehr großen Anzahl derartiger Paarungen eine Population ergeben müssen, in der die Kategorien AA, Aa und aa im Verhältnis von 25 : 10 : 1 stehen, d. h. in dem gleichen Verhältnis, das schon in der F1-Generation vorlag.
Überlassen wir eine solche Population noch weiter einer freien regellosen Vermehrung, so werden auch alle folgenden Generationen das gleiche Zahlenverhältnis zwischen den weißen und den beiden Sorten von schwarzen Tieren aufweisen. Man kann so leicht für jede beliebige Ausgangsgeneration errechnen, welche Zusammensetzung eine daraus hervorgehende Population aufweisen wird.
Voraussetzung ist dabei, daß keine „Zufuhr von fremdem Blut“ stattfindet, und daß die verschiedenen Kategorien gleich lebens- und fortpflanzungsfähig sind, so daß also kein Auslesevorgang eingreift.
Wie wird die Sachlage nun aber, wenn dauernd einzelne bestimmte Kombinationen ausgemerzt werden oder sich unterdurchschnittlich vermehren? Wählen wir auch hier wieder ein einfaches schematisches Beispiel: Wir bringen auf eine Insel zwei weibliche blaue Angorakaninchen von der Formel AA XX BB CC dd gg vv (vgl. wegen der Formel S. 36) und zwei männliche kurzhaarige wildfarbige von der Formel AA XX BB CC DD GG VV. Die F1-Generation besteht dann aus —[5] Dd Gg Vv-Tieren, die alle kurzhaarig und wildfarbig sind, und die F2-Generation besteht aus den nachstehenden Kategorien in dem in Klammern beigefügten Häufigkeitsverhältnissen:
— DGV wildfarbig kurzhaarig 27
— DGv „ Angora 9
— DgV schwarz kurzhaarig 9
— Dgv „ Angora 3
— dGV blau-wildfarbig kurzhaarig 9
— dGv „ „ Angora 3
— dgV blau kurzhaarig 3
— dgv „ Angora 1
Ohne Auslese wird sich, wie gesagt, das so entstandene Kaninchenvolk in dieser bunten Zusammensetzung dauernd erhalten. Nehmen wir nun einmal an, es würden bestimmte Kategorien, etwa alle blau-wildfarbigen Angora-Tiere, d. h. alle Tiere von den Formeln — dd GG vv und — dd Gg vv vor der Fortpflanzung ausgemerzt. Auch wenn diese Vernichtung der blau-wildfarbigen Angora-Tiere ganz streng durchgeführt wird, wenn nie ein Tier dieser Art zur Fortpflanzung kommt, so würden dennoch immer wieder Tiere dieser Art in unserem Kaninchenvolke geboren werden, weil Tiere dieser Erbformel und dieser Körperbeschaffenheit in einer solchen Zucht auch von ganz anders aussehenden Eltern erzeugt werden! Aber es wird die Zahl der blau-wildfarbigen Angora-Tiere in der nächsten Generation schon geringer sein. Die nachstehende Tabelle gibt die Wirkung einer solchen Ausmerzung der blau-wildfarbigen Angora-Tiere wieder.
Ohne Auslese müßte F3-Generation die nachfolgenden Kategorien aufweisen im Verhält- nis in % ausgedrückt die Ausmerzung aller blau-wild- farbigen Angora- Tiere gibt das Verhältnis (auch in % aus- gedrückt) d. h. Zunahme oder Abnahme in %
wildfarbig kurzhaarig 27 42,18 44,44 + 2,26
„ Angora 9 14,06 13,82 – 0,24
schwarz kurzhaarig 9 14,06 14,67 + 0,61
„ Angora 3 4,69 4,46 – 0,23
blau-wildfarbig kurzhaarig 9 14,06 13,82 – 0,24
„ Angora 3 4,69 3,19 – 1,50
blau kurzhaarig 3 4,69 4,46 – 0,23
„ Angora 1 1,56 1,12 – 0,44
Wie ein Blick auf die Tabelle zeigt, ergibt die — etwas umständliche und deshalb nicht ausführlich wiedergegebene — Berechnung der Zusammensetzung der F3-Generation nach einer solchen Auslese, daß nicht bloß die Häufigkeit der blau-wildfarbigen Angora-Tiere abgenommen hat, sondern daß sich auch im Verhältnis der übrigen Kategorien untereinander beträchtliche Verschiebungen ergeben haben.
Wird eine solche Auslese eine lange Reihe von Generationen hindurch vorgenommen, so wird die ausgemerzte Sorte immer seltener werden und es wird auch sonst die Zusammensetzung des Kaninchenvolkes sehr stark verändert.
Im einzelnen ist diese Wirkung sehr verschieden je nachdem, ob dominante oder rezessive Typen ausgemerzt werden, ob nur eine Kombination oder ob gleichzeitig viele Kombinationen ausgemerzt werden usw. Es würde zu weit führen, hier auf alle Einzelheiten einzugehen. Uns interessiert, daß es zwar zu einem völligen Verschwinden bestimmter Kombinationen bei einem solchen Auslesevorgang zunächst nicht kommt, daß aber die ausgemerzten Typen seltener werden und daß auch sonst die Zusammensetzung des Volkes sich verändert.
Das hat, wie an anderer Stelle ausgeführt wird, für die Beurteilung der Auslesevorgänge beim Menschen eine große Tragweite. Wenn in einem Kulturvolk dauernd die bestveranlagten Individuen und Familien, d. h. die Verkörperung ganz bestimmter Eigenschaftskombinationen, sich schwächer vermehren als der Durchschnitt der Bevölkerung, so wird das für das Volksganze eine verhängnisvolle Wirkung haben: hochveranlagte Individuen werden zwar immer wieder aus der großen Masse des Volkes heraus entstehen, aber wenn eine lange Reihe von Generationen hindurch immer und immer wieder diese bestveranlagten Menschen sich weniger stark fortpfanzen als der Volksdurchschnitt, so werden diese Menschen immer seltener, und schließlich wird dann ein solches Volk nicht mehr so viele „führende Köpfe“ hervorbringen, wie nötig sind, um das Gerippe des Staates zu bilden und um das Volk auf seiner Kulturhöhe zu erhalten, ein solches Volk wird „entarten“.
4. Die Wirkung von Inzucht.
Wenn bei einem Organismus, der sich gewöhnlich durch Fremdbefruchtung fortpflanzt, Inzucht getrieben wird, so bringt das fast stets Nachteile mit sich. Diese Erkenntnis von der Schädlichkeit der Inzucht ist uralt, ein großer Teil der Ehegesetzgebung schon der ältesten Kulturvölker geht mehr oder weniger darauf zurück.
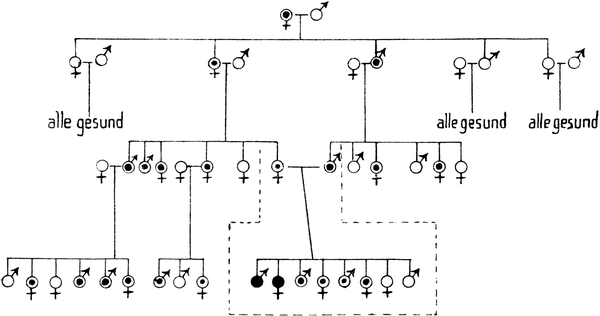
Fig. 13. Schematischer Stammbaum einer Familie mit einer als rezessives Merkmal mendelnden erblichen Mißbildung (etwa Albinismus) — homozygotisch gesunde Personen weiß, heterozygotische (äußerlich ebenfalls gesunde) weiß mit schwarzem Punkte, homozygotisch kranke Personen schwarz dargestellt. Der eine dargestellte Fall von Verwandtenehe (durch gestrichelte Linie eingerahmt) ermöglicht die Entstehung von homozygotisch kranken Kindern.
Die Schädigung durch Inzucht beruht auf zwei ganz verschiedenen Dingen. Zunächst befördert jede Inzucht und jede Verwandschaftszucht das Herausmendeln rezessiver Mißbildungen. Das zeigt wohl am besten der in Figur 13 abgebildete Stammbaum. Albinismus vererbt sich beim Menschen als einfach rezessives Merkmal. Heterozygotisch albinotische Menschen sind äußerlich völlig normal. Heiraten die Angehörigen einer solchen mit Albinismus erblich belasteten Familie immer wieder in andere nicht damit belastete Familien, so wird zwar immer ein Teil der Nachkommen die Anlage heterozygotisch, also latent enthalten sein, aber Albinos werden nicht geboren. Homozygotische Albinos kommen hier nur zustande, wenn zwei solche heterozygotische Individuen sich heiraten. Die Wahrscheinlichkeit, daß ein solcher Fall eintritt, ist nun aber bei einer Verwandtenehe innerhalb einer solchen Familie sehr groß, es wird also das Auftreten von Albinismus in dieser Familie durch Verwandtenehe begünstigt. Eine erbliche Belastung mit rezessiven Erbübeln haben sehr viele Familien, meist ohne daß den Familienangehörigen davon etwas bekannt ist. In der einen Familie steckt dieses, in der anderen jenes Übel. Heiraten außerhalb der Familie lassen die erbliche krankhafte Anlage nicht homozygotisch heraustreten, Heiraten in der Familie begünstigen das Auftreten. Hierin liegt eine Ursache der Inzuchtschädigungen, aber nicht die einzige.
Eine zweite Art von Inzuchtschädigung beruht darauf, daß aus unbekannten Gründen jede Inzucht — je enger die Inzucht, desto rascher — eine Schwächung der Nachkommen und eine Verringerung der Fortpflanzungsfähigkeit bewirkt. Diese Schwächung geht wohl stets bis zu einem früher oder später erreichtem Mindestmaß, d. h. bei Inzucht während mehrerer Generationen nimmt zunächst die Lebenstüchtigkeit der Nachkommen sehr stark, in den späteren Generationen langsamer ab, und schließlich wird eine Art Dauerzustand erreicht, wo weitere Inzucht nicht mehr schädigt. Es gibt also wohl eine Art von Mindestmaß der Lebenstüchtigkeit, das durch engste Inzucht früher oder später erreicht wird. Dieses Mindestmaß liegt bei den verschiedenen Organismen sehr ungleich hoch.
Für den Menschen ist über diese Wirkung dauernder engster Inzucht nichts Zuverlässiges bekannt. Auch für die höheren Tiere weiß man hierüber nur wenig. Es genügt deshalb wohl, hier wenigstens darauf hinzuweisen, daß es außer der beim Menschen besser untersuchten ersten Art von Inzuchtserscheinungen noch eine solche zweite gibt.
Ob die gelegentlich gemachte Beobachtung, daß Kinder aus Inzestzucht (Kinder von Bruder und Schwester, von Vater und Tochter usw.) häufig geistig und körperlich minderwertig sind, auf „Inzuchtwirkung“ beruht, ist sehr zweifelhaft. Inzest wird eben im allgemeinen doch wohl nur bei selbst schon stark minderwertigen Menschen vorkommen.