Zwanzigstes Capitel. Die normale und pathologische Neubildung. Geschichte des Knochens.
Reading edition
Die Theorie der continuirlichen Entwickelung im Gegensatze zu der Blastem- und Exsudattheorie. Das Bindegewebe, seine Aequivalente und seine Adnexen als gemeinster Keimstock der Neubildungen. Die Uebereinstimmung der embryonalen und pathologischen Neubildung. Die Bedeutung der farblosen Blutkörperchen. Die Zellentheilung als gewöhnlicher Anfang der Neubildungen.
Endogene Bildung. Physaliden. Bruträume. Furchung.
Wachsthumähnliche und zeugungsähnliche Neubildung. Pflanzliche Analogie.
Verschiedene Richtung der Neubildung. Hyperplasie, directe und indirecte. Heteroplasie. Die pathologischen Bildungszellen: Granulation. Verschiedene Grösse und Bildungsdauer derselben.
Darstellung der Knochenentwickelung als einer Musterbildung. Unterschied von Formation, Transformation und Wachsthum. Das appositionelle und das interstitielle Wachsthum. Die Blastemtheorie. Der frische und wachsende Knochen im Gegensatze zu dem macerirten. Natur des Markes. — Längenwachsthum der Röhrenknochen: Knorpelwucherung. Markbildung als Gewebstransformation: rothes, gelbes und gallertiges, normales, entzündliches und atrophisches Mark. Tela ossea, verkalkter Knorpel, osteoides Gewebe. Rachitis. Ossification des Markes. — Dickenwachsthum der Röhrenknochen. Struktur und Wucherung der Periostes. Weiches Osteom der Kiefer. Callusbildung nach Fractur. Knochenterritorien: Caries, degenerative Ostitis. Knochengranulation. Knocheneiterung. Maturation des Eiters.
Die Granulation als Analogon des Knochenmarkes und als Ausgangspunkt heteroplastischer Entwickelung.
Es wird nunmehr nothwendig sein, zur genaueren Erläuterung der formativen Reizung zu schreiten und die wesentlichsten Züge aus der Geschichte der pathologischen Neubildungen zu schildern. Denn schon aus dem Früheren wird hervorgegangen sein, dass formative Vorgänge nicht etwa bloss die Grundlage für Geschwulstbildungen im engeren Sinne des Wortes, sondern auch für viele einfach entzündliche Reizungsprozesse bilden.
Dass ich die Doctrin vom Blastem in ihren ursprünglichen Grundzügen gegenwärtig vollständig zurückweise, habe ich wiederholt ausgesprochen. An ihre Stelle tritt die sehr einfache Lehre von der continuirlichen Entwickelung der Gewebselemente aus einander. Es handelt sich also für die einzelnen Fälle vielmehr darum, den besonderen Modus zu erkennen, nach welchem die verschiedenartigen Gewebe entstehen, und an bestimmten Beispielen die einzelnen Möglichkeiten kennen zu lernen, welche in Beziehung auf die Richtung dieser Entwickelung überhaupt bestehen.
Meine ersten Erfahrungen, auf Grund deren ich anfing, die herrschende Doctrin vom Blastem und Exsudat in Beziehung auf daraus hervorgehende Neubildungen zu bezweifeln, datiren von Untersuchungen über die Tuberkeln[246]. Ich fand nehmlich, dass die jungen Tuberkel in verschiedenen Organen, insbesondere in Lymphdrüsen, in den Hirnhäuten und in den Lungen zu keiner Zeit ein erkennbares Exsudat, sondern zu jeder Zeit während ihrer Bildung organisirte Elemente enthalten, ohne dass je an ihnen oder vor ihnen ein Stadium des Amorphen, Gestaltlosen zu beobachten ist. Insbesondere erkannte ich, dass die Entwickelung in den Lymphdrüsen bei den bekannten scrofulösen Anschwellungen mit einer Neubildung beginnt und dass die ersten Zustände, welche man antrifft, vollkommen mit denjenigen übereinstimmen, welche man sonst mit dem Namen der Hypertrophie bezeichnete: Kerne und Zellen finden sich in reicher Masse, zerfallen späterhin und geben das Material zu der endlichen Anhäufung käsiger Substanz. Eine solche Erfahrung, wonach ein hypertrophirendes (genauer gesagt: hyperplastisches) Gewebe in seiner späteren Zeit ein vollkommen abweichendes, krankhaftes Product liefert, erschien um so bedeutungsvoller, als ich eine ganz ähnliche Reihe von Entwickelungen gleichzeitig bei der Untersuchung einer ganz differenten Bildung erkannte, nehmlich bei der sogenannten Typhusmasse[247]. Damals herrschte ganz allgemein die Ansicht der Wiener Schule, dass bei den Abdominaltyphen ein eiweissartiges Exsudat von weicher Beschaffenheit in die Darmwand abgesetzt würde, und dass dadurch Schwellungen von markigem, medullärem Aussehen entständen. Ich fand dagegen, dass, gleichviel ob ich die Typhusmasse in den Lymphdrüsen des Gekröses oder an den Follikeln der Peyerschen Haufen untersuchte, zu keiner Zeit irgend ein bildungsfähiges Exsudat vorhanden war, sondern stets eine unmittelbare Fortbildung von den präexistirenden zelligen Elementen der Drüsen, der Follikel und des Bindegewebes zu der typhösen Substanz stattfinde.
Diese Erfahrungen berechtigten natürlich noch nicht, eine allgemeine Umänderung der bestehenden Doctrin vorzunehmen, denn organische Elemente entstehen an zahllosen Punkten, an denen damals wenigstens zellige Elemente als normale Bestandtheile überhaupt ganz unbekannt waren, und es schien daher kaum eine andere Möglichkeit übrig zu bleiben, als die, dass durch eine Art von Generatio aequivoca aus Blastemmasse neue Keime gebildet würden. Die einzigen Orte, wo mit einiger Wahrscheinlichkeit ausser den Drüsen eine Entwickelung neuer Elemente von den alten Elementen aus hätte erschlossen werden können, waren die Oberflächen des Körpers mit ihren Epithelial-Formationen. So geschah es, dass meine Untersuchung über die Natur der Bindegewebs-Substanzen, auf welche ich früher wiederholt eingegangen bin, eine entscheidende wurde. Von dem Augenblicke an, wo ich behaupten konnte, dass es fast keinen Theil des Körpers gibt, welcher nicht zellige Elemente besitzt, wo ich zeigen konnte, dass die Knochenkörperchen wirkliche Zellen sind, dass das Bindegewebe an verschiedenen Orten eine bald grössere, bald geringere Zahl wirklich zelliger Elemente führe[248], da waren auch überall Keime erkannt für eine mögliche Entwickelung neuer Gewebe. Thatsächliche Nachweise für eine solche Entwickelung brachte ich alsbald in meinen Arbeiten über parenchymatöse Entzündung[249] und über ein cystoides Enchondrom[250], denen später eine ganze Reihe weiterer Special-Untersuchungen sich angeschlossen hat. Je mehr die Zahl der Beobachter wuchs, um so häufiger hat es sich bestätigt, dass eine grosse Zahl der verschiedensten Neubildungen, welche im Körper entstehen, aus dem Bindegewebe und seinen Aequivalenten hervorgeht. Daran schloss sich unmittelbar das Gebiet der lymphatischen Gebilde und der mit ihnen zusammenhängenden farblosen Blutkörperchen, deren Bedeutung für die Neubildung von Manchen sehr hoch veranschlagt wird. Endlich sind zu erwähnen jene pathologischen Neubildungen, welche den Epithelformationen angehören, sowie diejenigen, welche mit den höher organisirten thierischen Geweben, z. B. den Gefässen, den Nerven, zusammenhängen. Erwägt man, dass die lymphatischen Einrichtungen ihrerseits mit dem Bindegewebe nahe Beziehungen haben, so wird man noch jetzt nicht fehlgehen, wenn man mit geringen Einschränkungen an die Stelle der plastischen Lymphe, des Blastems der Früheren, des Exsudates der Späteren das Bindegewebe mit seinen Aequivalenten und Adnexen als den hauptsächlichen Keimstock des Körpers setzt, und davon die Entwickelung der meisten neugebildeten Theile ableitet[251].
Wenn wir ein bestimmtes inneres Organ nehmen, z. B. das Gehirn oder die Leber, so konnte, so lange als man innerhalb des Gehirnes nichts weiter als Nervenmasse sah, in der Leber nichts weiter als Gefässe und Leberzellen zuliess, eine Neubildung ohne Dazwischenkommen eines besonderen Bildungsstoffes kaum gedacht werden. Denn davon war es ja leicht, sich zu überzeugen, dass in der Regel in der Leber die Neubildungen nicht von den Leberzellen oder den Gefässen ausgehen. Dass in der Hirnsubstanz die Nerven nicht als solche die Neubildungen hervorbringen, und dass die Markschwämme nicht wuchernde Nervenmasse sind, sondern aus zelligen Elementen anderer Art bestehen, das hätte man wissen sollen seit dem Augenblicke, wo das Mikroskop auf die Untersuchung der Gewebe angewendet worden ist. Aber ich habe erst nachweisen müssen, dass es Bindegewebszellen in der Leber und interstitielle Gliazellen im Gehirne gibt, welche Aequivalente der gewöhnlichen Bindegewebskörperchen sind. In der That erscheint uns, wie zuerst Reichert hervorgehoben hat, der Grundstock des Körpers zusammengesetzt aus einer mehr oder weniger continuirlichen Masse von bindegewebsartigen Bestandtheilen, an und in welche an gewissen Punkten andere Dinge, wie Epithel, Muskeln, Gefässe und Nerven, eingesetzt sind. Innerhalb dieses mehr oder weniger zusammenhängenden Gerüstes ist es, wo nach meinen Untersuchungen die Mehrzahl der Neubildungen vor sich geht, und zwar nach demselben Gesetze, nach welchem die embryonale Entwickelung geschieht.
Das Gesetz von der Uebereinstimmung der embryonalen und pathologischen Entwickelung ist, wie bekannt, schon von Johannes Müller, der auf den Untersuchungen von Schwann fortbaute, formulirt worden. Allein damals setzte man den Inhalt eines Ovulums (Fig. 7) dem Blasteme gleich; man dachte nicht daran, dass alle Entwickelung im Ei innerhalb der gegebenen Grenzen der Zelle geschieht, sondern man schloss einfach, dass im Eichen eine gewisse Menge von bildungsfähigem Stoffe gegeben sei, welcher vermöge einer ihm innewohnenden Eigenthümlichkeit, vermöge einer organisatorischen Kraft oder, vom Standpunkte der „höheren“ Anschauung aus, durch eine organisatorische Idee getrieben, sich in diese oder jene besondere Form umgestalte. Wenn es auch nicht richtig ist, was am schärfsten von Remak behauptet worden ist, dass auch die Dotterfurchung und die daraus hervorgehende Bildung der Primordialzellen auf dem Hineinwachsen und Verschmelzen von Membranscheidewänden in das Innere des Eies beruht, so handelt es sich doch auch innerhalb der Dottermasse nicht um eine freie organisatorische Bewegung, sondern um fortgehende Theilungsacte eines ursprünglich einfachen Elementes. Es folgt daraus, dass eine Vergleichung der freien plastischen Exsudate oder des pathologischen Blastems mit den Inhalts- oder Protoplasmamassen des Eies an sich unzulässig ist. Wo wir beim Embryo wirklich geformte Elemente, Zellen, finden, da sind diese auch von einem präexistirenden Elemente, einer Zelle ausgegangen. Eine Uebereinstimmung der embryonalen und der pathologischen Neubildung kann daher nur dann behauptet werden, wenn auch in der Pathologie jede neue Entwickelung auf vorhandene Zellen als Ausgangspunkte zurückgeführt werden kann.
Der in der neuesten Zeit vielfach behauptete Punkt, in wie weit ausgewanderte farblose Blutkörperchen oder Lymphkörperchen die Keime für allerlei Neubildungen werden können, ändert in diesen Anschauungen nichts Wesentliches. Beim Frosche, an welchem die Mehrzahl der diese Auswanderung betreffenden Untersuchungen angestellt worden sind, müssen die Lymphkörperchen bei dem Fehlen der Lymphdrüsen direkt aus dem Bindegewebe abgeleitet werden, und wenn sie später der Ausgangspunkt für Neubildungen werden, so unterscheidet sich diese Neubildung von der früher von mir gelehrten nur dadurch, dass sie nicht an Ort und Stelle, sondern an einer mehr oder weniger von dem Entstehungsorte dieser Keimzellen entfernten Orte stattfindet. Beim Menschen und den höheren Wirbelthieren, welche ausgebildete Lymphdrüsen besitzen, wäre in diesen eine permanente Brutstätte neuer Keimzellen anzunehmen, indess gehen auch die Lymphdrüsen, so weit wir wissen, embryologisch aus proliferirendem Bindegewebe hervor. Es kann sich daher im Principe nur darum handeln, festzustellen, auf welche Weise die Bildung der neuen Elemente in dem Keimgewebe stattfindet.
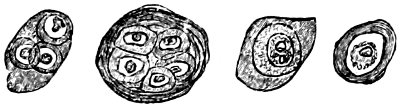
Fig. 132. Zellen aus der mittleren Substanz des Intervertebralknorpels eines Erwachsenen. Intracapsuläre Zellenvermehrung. Vergr. 300.
Der Modus dieser Neubildung ist, so viel bekannt, ein doppelter. In der Regel handelt es sich um einfache Theilung, wie wir sie schon bei Gelegenheit der Reizung besprochen haben (S. 386). Wir sehen dann die ganze Reihe von Veränderungen von der Theilung des Kernkörperchens und des Kernes bis zur endlichen Theilung der ganzen Zelle. Wenn ein epitheliales Element zwei Kerne bekommt, sich darauf theilt, und dieses sich wiederholt, so kann daraus durch fortgehende Wiederholung eine grosse Zahl neuer Elemente hervorgehen. Bekommt Jemand durch fortgesetzte Reibung der Haut eine Reizung, und wird der Reiz bis zu einem gewissen Grade gesteigert, so wird sich das Epithel verdicken, und wenn die Wucherung sehr stark ist, so kann sie zu grossen, geschwulstartigen Bildungen sich erheben. Dies geschieht durch fortschreitende Zelltheilung. Denselben Modus der Entwickelung, welchen Epithelialschichten darbieten, treffen wir auch im Inneren der Organe. Im Knorpel, wo das einfache zellige Element in eine Kapsel eingeschlossen ist, tritt endlich an die Stelle desselben eine Anhäufung zahlreicher Elemente, von denen jedes wiederum eingeschlossen wird in eine besondere, neugebildete Kapsel, während die ganze Gruppe von der vergrösserten, ursprünglichen Kapsel (der früher fälschlich sogenannten Mutterzelle) umgeben ist. Am Bindegewebe kann jede neue Zelle, welche aus der Theilung hervorgegangen ist, sofort eine neue Schicht Intercellularsubstanz bilden. Das ist also ein an sich sehr einfacher Modus, der jedoch, da er an verschiedenartigen Geweben vorkommt, sehr verschiedene Resultate bringen kann.
Es gibt aber noch eine andere Reihe von Neubildungen im Körper, welche freilich viel weniger gut gekannt sind, und deren Vorgang sich bis jetzt nicht mit eben so grosser Sicherheit übersehen lässt. Es sind das Vorgänge, wo im Inneren von präexistirenden Zellen endogene Neubildungen eintreten.
Eine dieser Veränderungen ist folgende: In einer einfachen Zelle bildet sich ein blasiger Raum, der gegenüber dem etwas trüben, gewöhnlich leicht körnigen Inhalte der Zelle ein sehr klares, helles, homogenes Aussehen darbietet. Derselbe unterscheidet sich von einer blossen Vacuole (S. 357) dadurch, dass er eine besondere Hülle besitzt und nicht einen einfachen Tropfen darstellt[252]. Auf welche Weise diese Räume, welche ich unter dem Namen der Physaliden[253] zusammenfasse, entstehen, ist noch nicht ganz sicher. Die grösste Wahrscheinlichkeit ist dafür, dass bei gewissen Formen gleichfalls Kerne der Ausgangspunkt dieser Bildungen sind. Man sieht nehmlich neben den physaliphoren Zellen andere mit 2 Kernen, manche, wo der eine Kern schon etwas grösser und heller erscheint, aber doch immer noch mit kernartiger Beschaffenheit. Weiterhin wird dieser helle Kern zu einer Blase von solcher Grösse, dass die Zelle allmählich fast ganz davon erfüllt wird und ihr alter Inhalt mit dem andern Kerne nur noch wie ein kleiner Anhang an der Blase erscheint[254]. So weit ist der Vorgang ziemlich einfach. Allein neben diesen zunehmenden und die Zelle erfüllenden Blasen trifft man andere, wo im Inneren der Blasen wieder Elemente zelliger Art eingeschlossen sind. So ist es ziemlich häufig in Krebsgeschwülsten, aber auch in normalen Theilen, z. B. in der Thymusdrüse[255]. Diese Form scheint nur so gedeutet werden zu können, dass in besonderen blasigen Räumen, die ich deshalb Bruträume genannt habe[256], im Inneren von zelligen Elementen neue Elemente ähnlicher Art sich entwickeln. Obwohl ich ähnliche Formen auch bei entzündlichen Zuständen z. B. in dem Epithel des Herzbeutels bei Pericarditis gesehen habe[257], und obwohl manche neuere Beobachtungen sich dem anzureihen scheinen, so ist dies doch ein für die Gesammtfrage der Neubildung untergeordnetes Verhältniss, welches mehr für einzelne Fälle Werth hat.
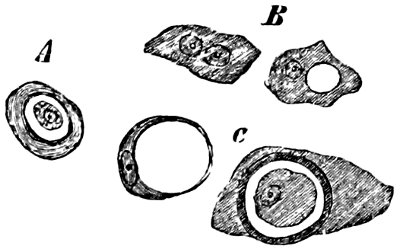
Fig. 133. Endogene Neubildung: blasentragende Zellen (Physaliphoren). A Aus der Thymusdrüse eines Neugebornen neben epithelioiden Zellen: im Innern einer Blase mit doppeltem Contour, die ihrerseits noch von einem zellenartigen Saume umgeben ist, liegt eine vollständige Kernzelle. B C Krebszellen (vergl. Archiv f. path. Anat. Bd. I. Taf. II. und Bd. III. Taf. II.) B eine mit doppeltem Kerne, eine zweite mit Kern und kleiner Physalide; C eine mit einer fast die ganze Zelle füllenden Physalide und eine andere, wo die Physalide (der Brutraum) noch wieder eine vollständige Kernzelle umschliesst. Vergr. 300.
Ausser dieser endogenen Neubildung in besonderen, physaliphoren Zellen finden sich nicht selten Erscheinungen, welche sich mehr den gewöhnlichen Furchungserscheinungen des Eies anzuschliessen scheinen[258], deren Grenzen aber gegen die aus blosser Theilung oder aus Physaliden hervorgegangenen Neubildungen sich nur schwer feststellen lassen. Denn sehr häufig sieht man in demselben Objecte diese verschiedenen Dinge neben einander. Am deutlichsten erkennt man solche Neubildungen an sehr vergrösserten Zellen, deren Kerne sich zuerst in prodigiöser Weise vermehren (S. 383), und an denen sich später um jeden Kern eine besondere Abtheilung des Zelleninhaltes besonders abgegrenzt zeigt. Namentlich geschieht das an der Oberfläche von Riesenzellen, während im Inneren manchmal keine Zellenbildung, manchmal wieder solide oder blasige Gebilde zu bemerken sind. Bei den Krebsen sind Beobachtungen der Art schon ziemlich alt[259], indess waren sie wenig genau. Bestimmtere Untersuchungen über den Gang der Neubildung habe ich zuerst an den Perlgeschwülsten (Cholesteatomen) des Menschen[260] und an der Franzosenkrankheit (Perlsucht) des Rindviehes[261] gemacht. Hier erhält sich in der That die alte Zellmembran noch längere Zeit, so dass die Bildung als eine wirklich endogene erscheint. Andermal dagegen geht die äussere Membran des Muttergebildes früh verloren, und es entsteht sofort eine grosse Gruppe einfach zusammenliegender, noch die Form der Mutterzelle bewahrender Tochterzellen, wo also die ursprüngliche Membran entweder sich auflösen oder zur Bildung der secundären Membranen der Tochterzellen verbraucht werden muss. In diesen Fällen ist es schwer, eine Grenze zwischen endogener Neubildung und Theilung zu ziehen, und man kann eben so wohl den ursprünglich endogenen Anfang des Prozesses, als die verspätete Theilung für die Bezeichnung massgebend sein lassen. Unzweifelhaft endogen ist der Vorgang nur dann, wenn das schon fertige neue Element (Tochterzelle) in die Substanz des alten (Mutterzelle) eingeschlossen ist.
Dieser Fall ist in der neueren Zeit von einer Reihe von Beobachtern beschrieben worden, insbesondere hat man im Inneren kernhaltiger Zellen neben dem Kerne das Vorkommen neuer Furchungselemente und wirklicher Zellen angeführt. So ist namentlich die Bildung von Schleim- und Eiterkörperchen im Inneren von noch existirenden Epithelialzellen von Remak, Buhl, Eberth und Rindfleisch geschildert worden. Hier würde also nicht die ganze Mutterzelle in Tochterzellen übergehen, sondern nur ein Theil ihres Inhaltes, und zwar nach Einigen, nachdem eine Kerntheilung voraufgegangen, nach Anderen ohne dieselbe, unmittelbar. Die so gebildeten Zellen würden dann durch Eröffnung der Mutterzelle (Dehiscenz) austreten und frei werden können. Auch hier ist die Entscheidung sehr schwer, da manche Beobachtungen zugleich die Bildung von Bruträumen schildern, andere an die Geschichte der sogenannten Blutkörperchen-haltenden Zellen (S. 361) erinnern, von denen man auch früher annahm, dass die Blutkörperchen in ihnen entständen, während ich vielmehr ein späteres Eintreten der Blutkörperchen in präexistirende Zellen nachgewiesen habe[262].
Ist es demnach nothwendig, vor Feststellung bestimmterer Formeln noch weitere und mehr ausgedehnte Beobachtungen abzuwarten, so kann es doch nicht zweifelhaft sein, dass neue Elemente aus alten nur auf zwei Weisen entstehen können: entweder fissipar, oder endogen. Auch in dieser Beziehung ist es erfreulich, dass sich die pathologische Entwickelungsgeschichte sowohl mit der physiologischen, als auch mit der botanischen in Einklang befindet. Gerade in der Botanik sind diese zwei Weisen längst anerkannt. Theilung entspricht bei den Pflanzen am gewöhnlichsten dem Wachsthume, endogene Bildung oder Neubildung im engsten Sinne entspricht der Zeugung, der geschlechtlichen Fortpflanzung. Und so liessen sich auch in der Pathologie sehr wohl zwei gesonderte Typen der Neoplasie unterscheiden: der Wachsthumstypus und der Zeugungstypus.
Der wesentliche Unterschied in den einzelnen zelligen Entwickelungen in Beziehung auf das Resultat ist der, dass in einer Reihe von Neubildungen die Theilungen mit einer gewissen Regelmässigkeit vor sich gehen, so dass die Producte der Theilung von Anfang an eine völlige Uebereinstimmung mit den Muttergebilden zeigen und die jungen Gebilde zu keiner Zeit erheblich von den Mutterelementen abweichen. Solche Vorgänge bezeichnet man im gewöhnlichen Leben meistentheils als Hypertrophien; ich hatte zur genaueren Bezeichnung den Namen der Hyperplasien dafür vorgeschlagen, da es sich dabei nicht um eine Zunahme der Ernährung bestehender Theile, sondern um die Bildung wirklich neuer Elemente handelt (S. 90), demnach kein trophischer (nutritiver), sondern ein plastischer (formativer) Vorgang vorliegt.
In einer anderen Reihe macht sich die Entwickelung so, dass allerdings auch Theilungen stattfinden, dass aber diese sich sehr schnell wiederholen und immer kleinerere Elemente hervorbringen. Diese werden zuweilen am Ende so klein, dass sie an die Grenze der Zellen überhaupt herangehen (Granulation). Die Vermehrung der Zellen kann an diesem Punkte aufhören. Die einzelnen neuen Elemente fangen dann an, wieder zu wachsen, sich zu vergrössern, und unter Umständen kann auch hier wieder ein analoges Gebilde erzeugt werden, wie das, von welchem die Entwickelung ausgegangen war. Dies ist eine Hyperplasie, die auf einem Umwege, per secundam intentionem, zu Stande kommt (S. 98). In diese Kategorie würden auch diejenigen Neubildungen zu setzen sein, welche aus ausgewanderten farblosen Blutkörperchen oder mobilisirten Bindegewebskörperchen (S. 359) hervorgehen.
Sehr häufig schlagen jedoch die jungen, kleinen Elemente einen anderen Gang der Entwickelung ein und es beginnt eine heterologe Entwickelung[263].
An den jungen Elementen können dabei wiederum Theilungen eintreten, doch ist es sehr gewöhnlich, dass zunächst, während die Zellen wachsen, nur die Kerne sich sehr vermehren, immer zahlreicher und mit fortschreitender Theilung immer kleiner werden. Das sieht man am besten bei farblosen Blut- und Eiterkörperchen, wo sehr schnell eine Theilung der Kerne stattfindet, gewöhnlich so, dass die ursprünglich einfachen Kerne sofort in eine grössere Zahl kleinerer zerlegt werden, welche Anfangs noch zusammenhalten. Bei den farblosen Blutkörperchen innerhalb des Blutes ist es sehr unwahrscheinlich, beim Eiter nach den Untersuchungen von Stricker allerdings wahrscheinlich, dass der Kerntheilung eine wirkliche Zellentheilung folgt; in anderen Neubildungen tritt dieser Fall gewöhnlich ein. Nur lässt, wie schon erwähnt, die vollständige Theilung, oder wenn man will, die Furchung der Elemente oft lange auf sich warten, und das Zwischenstadium der blossen Kerntheilung besteht daher häufig überwiegend lange und mit einer gewissen Selbständigkeit.
Bei der endogenen Neubildung endlich tritt die Heterologie meist von Anfang an hervor, indem die in der Mutterzelle erzeugten Elemente in der Regel klein, scheinbar indifferent und zu abweichender Entwickelung geneigt sind. Bei den Perlgeschwülsten habe ich besonders dargethan, wie aus Bindegewebskörperchen Perlen und Zapfen von epidermoidalen Zellen entstehen[264].
Abgesehen von denjenigen Neubildungen, welche durch regelmässige Theilung der Elemente unmittelbar zur Hyperplasie führen, wird also der normale Zustand zunächst unterbrochen durch einen Zwischenzustand, wo das Gewebe wesentlich verändert erscheint, ohne dass man sofort im Anfange des Prozesses erkennen kann, ob daraus eine gut- oder bösartige, eine homologe oder heterologe Entwickelung hervorgehen wird. Es ist dies ein Stadium scheinbar absoluter Indifferenz[265], welches ich als Granulationsstadium bezeichne. In demselben kann man es den einzelnen Elementen durchaus nicht ansehen, welcher Bedeutung sie eigentlich sind; sie verhalten sich, wie die sogenannten Bildungszellen des Embryo, welche auch im Anfange ganz gleich aussehen, gleichviel ob ein Muskel- oder ein Nervenelement oder was sonst daraus hervorgehen wird. Nichtsdestoweniger halte ich es für wahrscheinlich, dass feinere innere Verschiedenheiten wirklich bestehen, die schon im Voraus die späteren Umbildungen bis zu einem gewissen Maasse bedingen, nicht Verschiedenheiten, welche bloss Potentia in der Bildungszelle vorhanden wären, sondern wirklich materielle Verschiedenheiten, welche aber so fein sind, dass wir sie bis jetzt nicht darthun können.
Nur bei der embryonalen Entwickelung kennt man seit Jahren eine Erscheinung, welche bestimmt darauf hindeutet, dass solche Verschiedenheiten der Bildungszellen bestehen: die verschiedenen Abtheilungen des Eies machen verschieden schnell ihre Bildung durch, und namentlich diejenigen Theile, welche zu den höheren Organen bestimmt sind, durchlaufen mit viel grösserer Schnelligkeit die einzelnen Stadien, als diejenigen, welche für die niedrigeren Gewebe angelegt werden. Auch in der Grösse der Elemente scheinen Verschiedenheiten zu bestehen. In ähnlicher Weise sieht man häufig auch bei pathologischen Bildungen Verschiedenheiten in Beziehung auf die Zeitdauer. Jedesmal, wenn die Entwickelung der Elemente schnell erfolgt, muss man eine mehr oder weniger heterologe Entwickelung fürchten. Eine homologe, direct-hyperplastische Bildung setzt immer eine gewisse Langsamkeit der Vorgänge voraus; in der Regel bleiben die Elemente dabei grösser, und die Theilungen schreiten nicht bis zur Entstehung ganz kleiner Formen vor.
So überaus einfach ist diese Entwickelungsgeschichte in der Natur und in der Doctrin, aber allerdings schwierig ist sie in der Demonstration an den einzelnen Orten. Diejenigen Theile, welche scheinbar für die Untersuchung am allerbequemsten liegen sollten, und bei denen in der That schon vor ein Paar Decennien Henle ganz nahe an die Entdeckung einer solchen Entwickelung herangestreift war, sind die Epithelien. Hier, wo an der Oberfläche einer Haut eine oft so reichliche Entwickelung stattfindet, sollte man meinen, müsste es überaus leicht sein, dieselbe an den einzelnen Elementen genau zu verfolgen. Henle hat bekanntlich zu zeigen gesucht, dass die Schleimkörperchen, ja manche Formen, welche schon dem Eiter angehören, an der Oberfläche der Schleimhäute neben dem Epithel in der Art producirt werden, dass zwischen den Anlagen beider Reihen keine eigentliche Differenz zu erkennen ist, dass also gewissermaassen die Schleimkörperchen als verirrte oder nicht zu Stande gekommene Epithelialzellen, als missrathene Söhne erscheinen, welche durch eine frühe Störung in ihrer weiteren Entwickelung gehindert wurden, aber eigentlich angelegt waren, um Epithelialelemente zu werden. Unglücklicherweise hatte man damals und noch lange nachher die Vorstellung, dass die normale Entwickelung des Epithels eben auch aus einem Blastem erfolge. Man stellte sich vor, dass an der Oberfläche jeder Schleimhaut, ja an der Oberfläche der Cutis aus den Gefässen, die an die Oberfläche treten, zuerst eine plastische Substanz transsudire, in und aus welcher sich die Elemente bildeten. Man blieb nach dem Vorgange von Schwann bei dem Schema von Schleiden (S. 11) stehen, dass sich zuerst Kerne (Cytoblasten) in einer Flüssigkeit bilden und erst später Membranen an dieselben sich anlegen. Gegenwärtig, so viel auch die verschiedenen Oberflächen der Haut, der Schleimhäute und der serösen Häute untersucht sind, hat man sich überall unzweifelhaft überzeugt, dass die epithelialen Elemente mindestens bis unmittelbar an die Oberfläche des Bindegewebes reichen und nirgends eine Stelle ist, wo zwischen Bindegewebe und Epithel freie Kerne, Blastem oder Flüssigkeit existirte, dass vielmehr an vielen Orten gerade die tiefsten Schichten diejenigen sind, welche die am dichtesten gedrängten Zellen enthalten. Hätte man damals, als Henle seine Untersuchungen machte, gewusst, dass hier normal kein Blastem existirt, keine Entwickelung de novo geschieht, sondern dass die vorhandenen Epithelzellen von alten Epithelialzellen oder vom Bindegewebe darunter oder von ausgewanderten Zellen sich entwickeln müssen, so würde er gewiss zu dem Schlusse gekommen sein, dass die Schleim- und Eiterkörperchen, welche nicht von einer ulcerirenden Oberfläche abgesondert werden, aus präexistirenden Elementen hergeleitet werden müssen.
So nahe war man damals schon der richtigen Erfahrung. Allein die Blastemtheorie beherrschte die Geister, und wir Alle standen unter ihrer Einwirkung. Auch erschien es unmöglich, überall im Inneren der Gewebe die erforderlichen Vorgebilde aufzuweisen. Erst durch den Nachweis zelliger Elemente im Bindegewebe wurde ein überall vorhandenes Keimgewebe aufgewiesen, von dem an den verschiedensten Organen gleichartige Entwickelungen ausgehen können. Jetzt, wo wir wissen, dass Bindegewebe oder demselben äquivalente Gewebe im Gehirne, in der Leber, in den Nieren, im Muskelfleische, im Knorpel, der Haut u. s. f. existiren, jetzt hat es natürlich keine Schwierigkeit mehr, zu begreifen, dass in allen diesen scheinbar so verschiedenartigen Organen dasselbe pathologische Product entstehen kann. Man braucht dazu keineswegs irgend ein specifisches Blastem, welches in alle diese Theile abgelagert wird, sondern nur einen gleichartigen Reiz für das Bindegewebe verschiedener Orte.
Was nun das Specielle dieser Lehre anbetrifft, so will ich zunächst ein concretes Beispiel der normalen Entwickelung vorführen, welches vielleicht am besten geeignet sein wird, ein Bild der oft so verwickelten Vorgänge zu geben, um welche es sich bei dieser Gewebs-Formation und Transformation handelt. Ich wähle dasjenige, an welchem an sich der Gang der Entwickelung am besten bekannt ist, und welches zugleich seiner besonderen Einrichtung wegen am wenigsten Missdeutungen zulässt, nehmlich die Bildung und das Wachsthum der Knochen. Diese Organe sind zu hart und dicht, als dass man noch von Blastem und Exsudat in ihrem eigentlichen Parenchyme oder, wie man nach dem Vorgange von Clopton Havers lange Zeit gethan hat, von einer Zwischenlagerung des Ernährungssaftes zwischen die Theilchen des Knochens reden könnte. Das Wachsthum der Knochen bietet uns zugleich unmittelbar Vergleichungen für alle die verschiedenen Neubildungen, welche innerhalb der Knochen unter krankhaften Verhältnissen vor sich gehen können, denn jede Art von Neubildung findet in der normalen Entwickelung des Knochens gewisse Paradigmen vor.
Bekanntlich wächst jeder grössere Knochen in zwei Richtungen. Am einfachsten ist dies bei den Röhrenknochen, welche allmählich sowohl länger als dicker werden. Das Längenwachsthum erfolgt hier zu einem grossen Theile aus Knorpel, das Dickenwachsthum aus Periost (Bindegewebe). Allein auch ein platter Knochen z. B. am Schädel ist einerseits durch knorpelartige Theile (Synchondrosen) oder deren Aequivalente (Nähte), andererseits durch Häute, welche mit dem Perioste übereinstimmen (Pericranium, Dura mater oder Endocranium), bekleidet. Man kann daher Knorpel- und Periost-Wachsthum an jedem Knochen unterscheiden. Danach ergibt sich das Schema der Entwickelung des Röhrenknochens, wie es schon bei Havers sich findet, dass die neuen Knochenschichten die alten incapsuliren, und dass jede jüngere Schicht nicht bloss weiter, sondern auch länger ist, als die nächst ältere. Denn das Periostwachsthum rückt immer mehr gegen die Enden vor, insofern sich immer neue Abschnitte von Perichondrium in Periost verwandeln, je weiter die Ossification gegen die Enden fortschreitet; der mittlere Theil des Diaphysenknorpels wird schon sehr frühzeitig ganz in Knochen umgewandelt, und hört damit im Allgemeinen auf, aus sich selbst fortzuwachsen. Die Enden des Diaphysenknorpels und die noch ganz knorpelige Epiphyse dagegen wachsen immer noch in die Dicke. Während hier Theile, welche vorher entweder Bindegewebe oder Knorpel waren, in Knochen umgesetzt werden, geht innerhalb des Knochens die Entwickelung des Markes vor sich. Der ursprüngliche Knochen ist ganz dicht, eine sehr feste, relativ compacte Masse. Späterhin schwindet die Knochenmasse immer mehr, ein Theil nach dem anderen von ihr löst sich in Mark auf, und es entsteht endlich die Markhöhle, welche sich nicht etwa darauf beschränkt, so gross zu werden, wie die ursprüngliche Knochen-Anlage war, sondern welche diese Anlage bedeutend überschreitet und in die später apponirten, aus Knorpel und Periost entstandenen Schichten übergreift. Demnach besteht die Bildung des Knochens, ganz im Groben aufgefasst, nicht bloss in der allmählichen Apposition von immer neuen Knochenlagen vom Perioste und Knorpel her, sondern auch in der fortwährenden Ersetzung der innersten Lagen des Knochengewebes durch Markmassen.
Es ist für die vorliegende Darstellung gleichgültig, ob die Bildungsvorgänge am Knochen auch zugleich für das Wachsthum desselben entscheidend sind oder nicht. Indess verknüpfen sich beide Fragen in sehr inniger Weise und gerade in diesem Augenblicke hat die Verknüpfung beider eine erhebliche praktische Bedeutung gewonnen durch den Streit über das sogenannte interstitielle Wachsthum. Dieser Streit ist hauptsächlich hervorgerufen worden durch die einseitige Formulirung, welche namentlich Flourens der Lehre von der Knochenbildung gegeben hatte, wonach ausser durch Apposition und Juxtaposition nirgends eine Zunahme an Knochen stattfinden sollte. So sehr ich in der Hauptsache mit dieser Formulirung übereinstimmte, so habe ich doch vor der Einseitigkeit gewarnt und darauf hingewiesen, dass man damit nicht auskomme, und dass namentlich für gewisse Knochen, z. B. für den Unterkiefer, die Appositionslehre ausser Stande sei, eine ausreichende Erklärung zu bieten[266]. Hier wird man im Gegensatze zu der bloss äusserlichen Anbildung der neuen Substanz zu der Annahme eines inneren Wachsthumes des alten Gewebes genöthigt. Seitdem hat diese Auffassung durch Strassmann, Rich. Volkmann und Hüter weitere thatsächliche Unterlagen gewonnen, und Julius Wolff hat sie allmählich bis zu einer vollständigen Negation der Appositionsdoctrin ausgebildet.
Meiner Meinung nach ist dies eine eben so grosse Einseitigkeit, wie die frühere, und namentlich für die pathologische Auffassung der Knochenbildung hat sie schon jetzt zu wirklichen Irrungen geführt. Aber auch für die physiologische Bildungsgeschichte hat die neue Lehre nicht einen so grossen Werth, wie ihr Wolff zuschreibt. Nichtsdestoweniger sind wichtige Theile des Knochenwachsthumes ohne sie gänzlich unverständlich. Es war dies die Veranlassung, weshalb die Berliner medicinische Fakultät im Jahre 1868 die Preisfrage stellte, auf welche Weise das interstitielle Wachsthum sich vollziehe und namentlich, ob dasselbe mehr von der Zunahme der Knochenkörperchen oder mehr von der Zunahme der Intercellularsubstanz oder beider abhängig sei. Carl Ruge[267] hat diese Frage durch sehr mühsame Versuche mit Zählung und Messung der Knochenkörperchen und ihrer Entfernungen von einander dahin entschieden, dass es sich hauptsächlich um Zunahme der Intercellularsubstanz handelt, welche allerdings im Laufe des Lebens eine merkliche Grösse erreicht, dass dagegen Form und Grösse der Knochenkörperchen sich nur wenig ändert, und dass nur in den ersten Zeiten des Lebens mit Wahrscheinlichkeit eine Vermehrung der Knochenkörperchen durch Theilung angenommen werden könne. Es wird nunmehr erst für jeden einzelnen Knochen empirisch festgestellt werden müssen, wie viel zu seiner Gesammtausbildung das appositionelle und wie viel das interstitielle Wachsthum beiträgt. Jedenfalls schafft das erstere die eigentlichen Grundlagen des Knochens, innerhalb deren sich erst die weiteren Prozesse vollziehen. Diese letzteren werden jedoch durch das interstitielle Wachsthum keinesweges gedeckt; vielmehr bilden die von mir in bestimmter Weise dargelegten Vorgänge der Metaplasie oder Transformation ein ebenso grosses als wichtiges Gebiet.
Bei der Deutung der Knochengeschichte war lange Zeit die Blastemtheorie entscheidend. Schon Havers und Duhamel, welche im 17. und 18. Jahrhunderte vortreffliche Untersuchungen über die Knochenbildung gemacht haben, gingen von der Voraussetzung aus, dass ein eigenthümlicher Succus nutritius abgesondert werde, aus welchem die neuen Massen entständen. Die Mark-Entwickelung dachte man sich als eine durch Resorption erfolgende Bildung von Höhlen, in welche erst ein klebriger Saft und dann eine fettige Masse secernirt werde, Höhlen, welche von der Markhaut umkleidet würden, und deren Inhalt dem Alter des Individuums nach verschiedenartig sei. Wie ich indess schon früher hervorgehoben habe, so finden sich in den Räumen des Knochens keine Säcke, sondern ein continuirliches Gewebe, das Mark (Medulla), welches die Markräume und Markhöhlen ganz und gar ausfüllt, wie der Glaskörper die Höhle des Augapfels, und welches zur Bindesubstanz gehört, obwohl es vom gewöhnlichen Bindegewebe erheblich verschieden ist. Es handelt sich also, wie man aus dieser einfachen Thatsache ersieht, in der ganzen Bildungsgeschiche des Knochens um Substitutionen von Geweben. Wie Knochengewebe aus Periost und Knorpel gebildet wird, so entsteht Mark aus Knochengewebe und Knorpel, und die Entwickelung eines Knochens besteht nicht bloss in der Bildung von Knochengewebe, sondern sie setzt voraus, dass die Reihe der Transformationen über das Stadium des Knöchernen hinausgehe, und dass Mark entstehe. Das Mark würde also als das physiologische Ende der Knochenorgan-Bildung zu betrachten sein, wenn nicht auch der Fall vorkäme, dass aus Mark wieder Knochengewebe erzeugt wird.
So einfach diese Auffassung ist, so gibt sie doch ein anderes Bild für das Wachsthum und die Geschichte des Knochens, als das hergebrachte. Früher ist man fast immer auf dem Standpunkte des reinen Osteologen stehen geblieben; man hat den macerirten Knochen genommen, ihn frei von allen Weichtheilen betrachtet und danach die Prozesse construirt. Es ist aber nothwendig, dass man diese an dem feuchten, lebendigen, sei es gesunden, sei es kranken Knochen verfolge, und dass man das Knochengewebe nicht bloss aussen aus den wuchernden Schichten des Knorpels und Periostes, sondern auch innerhalb der Marksubstanz sich gestalten lässt, als das äussere Entwickelungsprodukt in dieser Reihe, wenn auch nicht als das edelste. Als den wichtigsten und eigentlich entscheidenden Gesichtspunkt, durch den die ganze Knochenangelegenheit eine andere Gestaltung annimmt, betrachte ich dabei eben den, dass das Knochengewebe bei der Markbildung nicht einfach aufgelöst wird und an seine Stelle ein beliebiges Exsudat oder Blastem tritt, sondern dass auch die Auflösung der Knochensubstanz eine Transformation von Gewebe (Metaplasie S. 70) ist und dadurch erfolgt, dass Knochengewebe sich in eine Gewebsmasse (Mark) umbildet, die nicht mehr im Stande ist, die Kalksalze zurückzuhalten[268].
Fragt man nun, wo kommen die neuen Gewebs-Elemente her, welche mitten in der Tela ossea entstehen? wie kann in der Mitte der compacten Rinde des Knochens ein Krebsknoten sich bilden oder ein Eiterheerd? so antworte ich ganz einfach: sie entstehen ebenso, wie in der natürlichen, normalen Entwickelung des Knochens das Mark entsteht. Es gibt keine Stelle, wo zuerst Knochengewebe sich auflöst, dann ein Exsudat erfolgt, dann eine Neubildung geschieht, sondern es geht das vorhandene Gewebe unmittelbar in das kommende über. Das vorhandene Knochen- oder Markgewebe ist die Matrix für das nachfolgende Krebsgewebe, die Zellen des Krebses sind unmittelbare Abkömmlinge von den Zellen des Knochens oder des Markes.
Betrachten wir den Gang der Knochenbildung etwas specieller, so zeigt sich, dass, wie wir dies zum Theil schon früher erörtert haben, der Knorpel sich in der Weise zur Ossification anschickt, dass die Knorpelelemente anfangs grösser werden, dass sie sich dann theilen, und zwar zuerst die Kerne, nachher die Zellen selbst, dass diese Theilungen sehr schnell weiter gehen, so dass immer grössere Gruppen von Zellen entstehen, und dass in einer verhältnissmässig kurzen Zeit an die Stelle jeder einzelnen Zelle eine im Verhältnisse sehr grosse Zellengruppe (Fig. 113, I.) tritt. Schon im ersten Capitel (S. 8) hatte ich erwähnt, wie die Knorpelzelle sich von den meisten anderen Zellen dadurch unterscheidet, dass sie eine besondere Kapselmembran erzeugt, in welcher sie eingeschlossen ist. Diese Kapselmembran bildet bei der Theilung ihrer Inhaltszellen innere Scheidewände zwischen denselben[269], neue Umhüllungen der jungen Elemente, so jedoch, dass auch die colossalen Gruppen von Zellen, welche aus je einer ursprünglichen Zelle hervorgehen, noch von der sehr vergrösserten Mutterkapsel eingeschlossen sind (Fig. 132).
Es versteht sich von selbst, dass, je mehr Zellen diese Umwandelung durchmachen, um so mehr der Knorpel sich vergrössern wird, und dass das Maass von Längenwachsthum, welches das einzelne Individuum erreicht, abgesehen von dem schon erwähnten interstitiellen Wachsthume, wesentlich von der Massenzunahme abhängt, welche in den einzelnen Knorpelgruppen stattfindet. Ob wir gross oder klein bleiben, ist so zu sagen in die Willkür dieser Elemente gestellt. — Hat die Knorpelwucherung dieses Stadium erreicht, so stehen die zelligen Theile ganz dicht zusammen; zwischen ihnen liegt nur eine verhältnissmässig geringe Quantität von Zwischensubstanz (Fig. 113, I.). Je weiter die Entwickelung fortschreitet, um so mehr ändert sich der Habitus des Knorpels: er sieht fast aus, wie dichtzelliges Pflanzengewebe. Die Zellen selbst sind aber äusserst empfindlich, sie schrumpfen unter der Einwirkung der mildesten Flüssigkeiten leicht zusammen und erscheinen dann wie eckige und zackige Körperchen, fast den Knochenkörperchen analog, mit denen sie jedoch zunächst nichts zu schaffen haben.
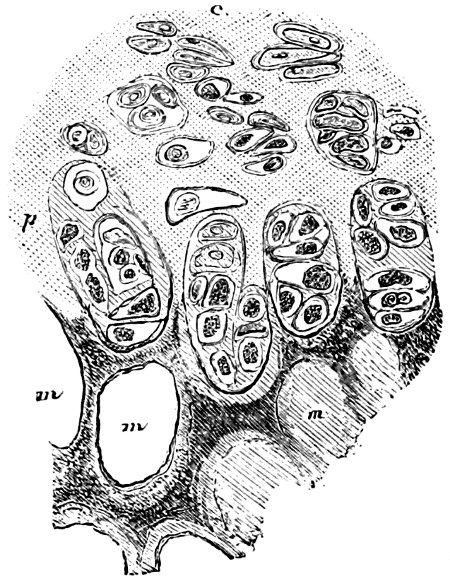
Fig. 134. Verticaldurchschnitt durch den Ossificationsrand eines wachsenden Astragalus. c Der Knorpel mit kleineren Zellengruppen, p die Schicht der stärksten Wucherung und Vergrößerung an der Verkalkungslinie. In den Knorpelhöhlen sieht man theils vollständige Kernzellen, theils geschrumpfte, eckige und körnig erscheinende Körper (künstlich veränderte Zellen). Die dunkle, in die Zwischensubstanz vorrückende Masse stellt die Kalkablagerung dar, hinter welcher hier ungewöhnlich schnell die Bildung von Markräumen (m, m, m) und Knochenbalken beginnt. Das Mark ist entfernt; an den am meisten zurückliegenden Räumen sind die Balken von einem helleren Saume jungen Knochengewebes (aus Mark entstanden) umgeben. Vergr. 300.
Die Zellen, welche aus diesen Wucherungen der ursprünglich einfachen Knorpelzellen hervorgegangen sind, bilden die Muttergebilde für Alles, was nachher in der Längsaxe des Knochens entsteht, insbesondere für Knochen- und Markgewebe. Es kann sein, dass durch eine unmittelbare Umwandelung Knorpelzellen in Markzellen übergehen und als solche fortbestehen; es kann sein, dass sie zunächst in Knochenkörperchen und dann in Markzellen übergehen, und es kann sein, dass sie zuerst in Mark- und dann in Knochenkörperchen übergehen. So wechselvoll sind die Permutationen dieser an sich so verwandten und doch ihrer äusseren Erscheinung nach so vollständig aus einander gehenden Gewebe. Geschieht eine directe Umänderung des Knorpels in Mark[270], so fängt zunächst die alte Zwischensubstanz des Knorpels an der Grenze gegen den Knochen an, weich zu werden; gewöhnlich geht dann auch sehr bald ein Theil der anstossenden Kapseln dieselbe Veränderung ein, so dass die zelligen Elemente mehr oder weniger frei in eine weichere Grundsubstanz zu liegen kommen. Mit dem Eintritte einer solchen Erweichung ist auch schon die chemische Reaction des Gewebes verändert: es zeigt immer deutliche Mucinreaction. Zugleich beginnen die zelligen Elemente sich zu theilen, und zwar nicht, wie sie das bisher gethan hatten, indem sie sich gleich in zwei analoge Zellen zerlegen (Hyperplasie), sondern vielmehr so, dass in ihnen eine Reihe von kleinen Kernen entsteht (physiologische Heteroplasie, Granulation). Weiterhin, in dem Maasse als dieser Umbildungsprozess immer höher und höher in den Knorpel hinein fortschreitet, als immer neue Theile der Intercellularsubstanz in weiche schleimige Masse verwandelt werden, theilen sich in der Regel die Zellen, und es entsteht eine Reihe von kleineren Elementen, die, im Verhältnisse zu den grossen Knorpelzellen, aus denen sie hervorgegangen sind, sehr geringfügige Bildungen darstellen. Sie besitzen entweder einen einzigen Kern mit Kernkörperchen oder auch wohl, wie Eiterkörperchen, mehrere Kerne[271]. So entsteht nach und nach ein äusserst zellenreiches Schleimgewebe, das junge, rothe Mark, wie wir es in der Regel in den Knochen der Neugebornen finden. Steht der Prozess hier still, so bezeichnet die Grösse der transformirten Stelle zugleich die Stelle des späteren Markraumes. Später können diese kleinen Zellen Fett in sich aufnehmen, anfangs in feinen Körnern, allmählich in grossen Tropfen, endlich so, dass sie ganz und gar davon erfüllt werden. Dadurch verwandelt sich das ursprüngliche Schleimgewebe in Fettgewebe[272]; das Fett ist aber immer im Inneren der Zellen enthalten, wie in den Zellen des Panniculus. Allein dies gelbe, fetthaltige Mark kommt nicht in allen Knochen vor. In den Wirbelkörpern finden wir fast immer die kleinen Elemente. In den Röhrenknochen des Erwachsenen dagegen kommt normal immer fetthaltiges Mark vor. Allein dies kann unter pathologischen Verhältnissen sehr schnell sein Fett abgeben, die Elemente können sich theilen, und dann bekommen wir wieder rothes, aber entzündliches Mark. Bei allgemeiner Atrophie und Osteomalacie wird das Fett resorbirt und das gesammte Mark geht in gallertartiges Schleimgewebe über, welches die grösste Aehnlichkeit, auch in der Consistenz, mit dem Glaskörper besitzt, aber sich von ihm dadurch unterscheidet, dass es stets Gefässe enthält.
In dieser ganzen Reihe von der ersten Entwickelung des Markes aus Knorpel bis zu der entzündlichen Störung, wie wir sie bei einer Amputation entstehen sehen (Osteomyelitis), und bis zu dem Gallertzustande bei Osteomalacie existirt zu keiner Zeit eine amorphe Substanz, ein Blastem oder Exsudat; immer können wir eine Zelle von der anderen ableiten: jede hat eine unmittelbare Entwickelung aus einer früheren und, so lange der Wucherungsgang fortschreitet, eine unmittelbare Nachkommenschaft von Zellen. Dabei kann gleichzeitig die Intercellularsubstanz bald reichlich, bald spärlich, bald fester, bald weicher sein, und auch darnach ist die äussere Beschaffenheit des Gewebes sehr veränderlich. —
Die zweite Reihe von Umbildungen in der Längsaxe des Röhrenknochens betrifft das eigentliche Knochengewebe, die Tela ossea, welche hier hervorgehen kann aus Mark oder aus Knorpel. In dem einen Falle werden die Mark-, in dem anderen die Knorpelzellen zu Knochenzellen (Knochenkörperchen). Dieser Act der eigentlichen Ossification, die Entstehung der Tela ossea ist überaus schwierig zu beobachten, hauptsächlich aus dem Grunde, weil das Erste, was bei diesen Vorgängen erfolgt, nicht die Erzeugung von wirklicher Tela ossea ist, sondern nur die Ablagerung von Kalksalzen. In der Regel nehmlich geschieht zuerst in der nächsten Nähe des Knochenrandes eine Verkalkung des Knorpels[273], welche allmählich höher hinauf schreitet, zuerst an den Rändern der grösseren Zellengruppen, sodann um die einzelnen Zellen, immer der Substanz der Kapseln folgend so dass jede einzelne Knorpelzelle von einem Ringe von Kalksubstanz umgeben wird. Aber das ist noch kein Knochen, sondern nichts weiter als verkalkter Knorpel, denn wenn wir die Kalksalze auflösen, so ist wieder der alte Knorpel da, der in keiner anderen Beziehung eine Analogie mit dem Knochen darbietet, als durch die Anwesenheit der Kalksalze (S. 454).
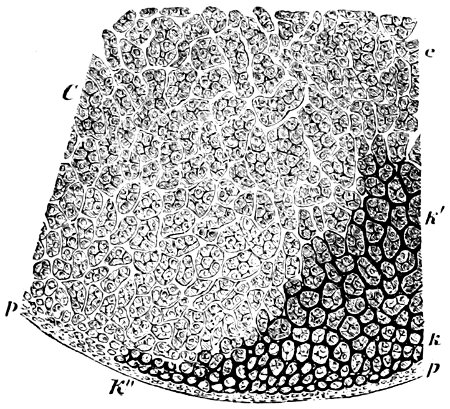
Fig. 135. Horizontalschnitt durch den wachsenden Diaphysenknorpel der Tibia von einem 7monatlichen Fötus. C c der Knorpel mit den Gruppen der gewucherten und vergrösserten Zellen, p p Perichondrium. k Der verkalkte Knorpel, wo die einzelnen Zellgruppen und Zellen in Kalkringe eingeschlossen sind; bei k' grössere Ringe, bei k″ Fortschreiten der Verkalkung am Perichondrium. Vergr. 150.
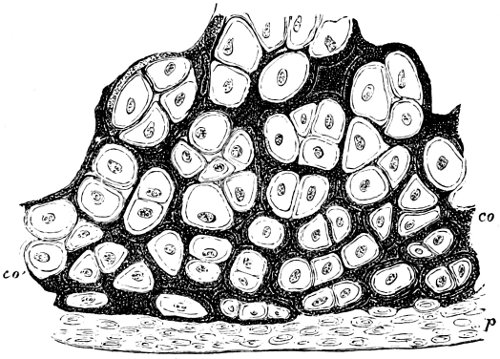
Fig. 136. Stärkere Vergrößerung der rechten Ecke von Fig. 135. co verkalkter Knorpel, co' Beginn der Verkalkung, p Perichondrium. Vergr. 350.
Damit nun aus diesem verkalkten Knorpel wirklicher Knochen werde, ist es nöthig, dass die Höhle, in welcher je eine Knorpelzelle lag, sich in die bekannte strahlige, zackige Höhle des Knochenkörperchens verwandele. Dieser Vorgang ist deshalb so überaus schwierig zu beobachten, weil beim Schneiden die Kalkmassen allerlei kleine Einbrüche bekommen und Trümmer liefern, innerhalb deren man nicht mehr ersehen kann, was eigentlich vorhanden war. Aus diesem Umstände ist es zu erklären, dass bis jetzt immer noch über die Entstehung der Knochenkörper gestritten ist und wahrscheinlich auch noch ferner gestritten werden wird. Ich halte die Ansicht für richtig, dass Knochenkörperchen an gewissen Stellen direct aus den Knorpelkörperchen entstehen[274], und zwar auf die Weise, dass zunächst die Kapsel, welche die Knorpelzelle einschliesst, enger wird, offenbar indem neue Kapselmasse innen abgelagert wird. Allein in dem Maasse als dies geschieht, beginnt die innere Begrenzung der Kapselhöhlung ein deutlich gekerbtes Aussehen anzunehmen (Fig. 137, c'); der Raum für die ursprüngliche Zelle wird dadurch bedeutend verkleinert. In seltenen Fällen gelingt es noch, Gebilde anzutreffen, wo die spätere Form des Knochenkörperchens als letzter Rest der Höhle erscheint, in welcher das zellige Element mit dem Kerne steckt. Dann aber verschwindet die Grenze, welche ursprünglich zwischen den Knorpelkapseln und der Grundsubstanz bestand; die Kapselsubstanz wird selbst Intercellularsubstanz und wir treffen in einer scheinbar ganz gleichmässigen Grundmasse zackige Elemente, mit anderen Worten, ein noch weiches Gewebe mit knochenartigem Bau (osteoides Gewebe Fig. 137, o). Gewöhnlich wird dieser Vorgang durch die frühzeitige Verkalkung des Knorpels verdeckt und nur gewisse Prozesse geben uns Gelegenheit, die osteoide Umbildung auch innerhalb der schon verkalkenden Theile noch in derselben Weise zu übersehen.
Eine besonders günstige Gelegenheit, manche Vorgänge des Knochen-Wachsthumes zu sehen, die sonst durch die Anwesenheit von Kalksalzen verdeckt werden, gewährt uns die Rachitis[275], auf deren Besprechung ich um so lieber einen Augenblick eingehe, weil diese merkwürdige Krankheit noch jetzt meist missverstanden wird.
Die rachitische Störung erweist sich bei genauerer Untersuchung nicht als ein Erweichungsprozess des Knochengewebes, wie man sie früher gewöhnlich betrachtete, sondern als ein Nichtfestwerden neuwuchernder Schichten, welche erst zu Knochengewebe werden sollten, also genau genommen, als eine Krankheit der Knorpel und des Periostes. Indem die alten Schichten von Knochengewebe durch die normal fortschreitende Markraumbildung verzehrt werden, die neuen aber weich bleiben, wird der Knochen brüchig. — Neben diesem wesentlichen Acte der nicht geschehenden Verkalkung der Theile ergibt sich aber zugleich eine gewisse Unregelmässigkeit im Wachsthume, so dass Stadien der Knochenentwickelung, welche in der normalen Bildung spät eintreten sollten, schon sehr frühzeitig eintreten. Bei dem normalen Wachsthume bilden an der Verkalkungsgrenze (Fig. 134) die Zacken, mit welchen die Kalksalze in den Knorpel hinaufgreifen, eine so vollständig gerade Linie oder genauer gesagt, eine so vollständige Ebene, dass sie fast als mathematisch regelmässig zu bezeichnen ist. Dieses Verhältniss hört bei der Rachitis auf, um so mehr, je intensiver der Fall ist; es finden Unterbrechungen der Verkalkungsebene statt in der Weise, dass an einzelnen Stellen der Knorpel noch tief herunterreicht, während die Verkalkung schon hoch hinaufschreitet. Jene einzelnen Stellen werden bisweilen so vollständig von den übrigen isolirt, dass sie als Knorpelinseln, mitten in dem Knochen, ringsum von demselben umgeben, liegen bleiben, dass also Knorpel noch an Punkten sich findet, wo der Knochen schon längst in Markgewebe umgewandelt sein sollte. Je weiter der rachitische Prozess vorschreitet, um so mehr finden sich aber auch isolirte, zersprengte Kalkmassen in dem Knorpel, manchmal so, dass der ganze Knorpel auf dem Durchschnitte weiss punktirt erscheint. — Weiter zeigt sich die Unregelmässigkeit darin, dass, während im normalen Gange der Dinge die Markräume erst eine kleine Strecke hinter dem Verkalkungsrande (Fig. 134) beginnen, dieselben hier darüber hinaustreten und manchmal bis weit über die Verkalkungsgrenze hinaus eine Reihe von zusammenhängenden Höhlen sich fortzieht, welche mit einem weicheren, leicht faserigen Gewebe erfüllt sind und in welche auch Gefässe aufsteigen (Fig. 137, m). Markräume und Gefässe liegen also da, wo normal eigentlich keine einzige Markzelle, kaum ein einziges Gefäss sich befinden sollte.
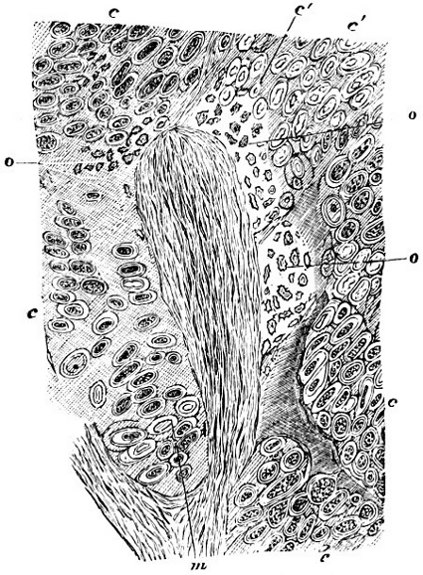
Fig. 137. Verticalschnitt aus dem Diaphysenknorpel einer rachitischen wachsenden Tibia vom 2jährigen Kinde. Ein grosser, nach links einen Seitenast absendender Markzapfen erstreckt sich von m aus in den Knorpel herauf: er besteht aus faseriger Grundsubstanz mit spindelförmigen Zellen. Im Umfange bei c, c, c der gewucherte Knorpel mit grossen Zellen und Zellengruppen; bei c', c' beginnende Verdickung und innere Einkerbung der Knorpelkapseln, welche bei o, o verschmelzen und osteoides Gewebe bilden. Vergr. 300.
Auf diese Weise kann an den Stellen, wo der Prozess seine Höhe erreicht hat, in derselben Ebene neben einander eine ganze Reihe von verschiedenartigen Gewebszuständen gefunden werden. Während wir sonst in einer bestimmten Zone Knorpel, in einer anderen Verkalkung, in einer dritten Knochengewebe und Mark finden, so liegt hier Alles durcheinander: Vorsprünge von Mark, darüber osteoides Gewebe oder wirklicher Knochen, daneben verkalkter Knorpel, darunter vielleicht noch erhaltener Knorpel. Die ganze rachitische Schicht des Diaphysenknorpels, welche sich beträchtlich weit erstrecken kann, gewinnt natürlich keine rechte Festigkeit, und das ist einer der Hauptgründe für die Verschiebbarkeit, welche die rachitischen Knochen zeigen, nicht innerhalb der Continuität der Diaphysen, sondern an den Enden. Diese ist in manchen Fällen überaus bedeutend, und bedingt manche Difformität, z. B. am Thorax (Pectus carinatum) einzig und allein. Die stärkeren Biegungen in der Continuität der Knochen sind immer Infractionen, die der Epiphysen gehören der Knorpelwucherung an und stellen einfache Inflexionen dar; hier ist es leicht zu begreifen, wie ein seiner regelmässigen Entwickelung so vollkommen beraubter Theil, welcher eigentlich dicht mit Kalksalzen erfüllt sein sollte, eine grosse Beweglichkeit bewahren muss.
Die Vergrösserung und Vermehrung der einzelnen Zellen geschieht bei der Rachitis in derselben Weise, wie wir sie früher beschrieben haben; indem aber weiterhin in dem Knorpel einzelne Theile nicht verkalken, die eigentlich schon Knochen sein sollten, indem namentlich die Markraumbildung oft weit bis über die Verkalkungsgrenze herauf erfolgt, so liegt an manchen solchen Stellen häufig die ganze Entwickelungsgeschichte des Knochens im Zusammenhange klar zu Tage. Man sieht grosse, oft sehr gefässreiche Zapfen von faserigem Mark (Fig. 137, m) sich vom Knochen her in den Knorpel herauferstrecken und kann sehr deutlich erkennen, dass nicht etwa diese Zapfen sich in den Knorpel hineinschieben, sondern dass sie durch eine strichweise Umbildung der Knorpelsubstanz selbst und Sprossenbildung der Gefässe entstehen. Hauptsächlich in ihrem Umfange ist es, wo sich auch die osteoide Umbildung der Knorpel am besten sehen lässt, wo man insbesondere sehr deutlich wahrnehmen kann, wie ein Knorpelkörperchen sich nach und nach in ein Knochenkörperchen umwandelt. Aus dem Knorpelkörperchen, dass eine mässig dicke Kapselmembran hat, geht nehmlich ein mit immer dickerer Kapsel versehenes Gebilde hervor, innerhalb dessen der Raum für die Zelle immer kleiner wird, und das auf einer gewissen Höhe der Ausbildung nach innen hin Einkerbungen bekommt, ähnlich den sogenannten Tüpfelkanälen der Pflanzenzellen. So ist schon die erste Erscheinung des Knochenkörperchens angelegt, worauf sehr gewöhnlich eine Verschmelzung der Kapseln mit der Grundsubstanz erfolgt und mit der Herstellung anastomosirender Höhlenfortsätze die Bildung des Knochenkörperchens abgeschlossen wird. Zuweilen verkalken einzelne osteoide Knorpelkörper für sich, ohne dass die Verschmelzung erfolgt ist; während ringsum noch die gewöhnliche Knorpel-Intercellularsubstanz liegt, erfüllt sich die Kapsel des osteoiden Körperchens schon vollständig mit Kalksalzen. An anderen Stellen dagegen erfolgt die Verschmelzung der Kapseln mit der Grundsubstanz sehr frühzeitig (Fig. 137, o), und man sieht innerhalb einer glänzend erscheinenden Masse, welche sich um manche Zellgruppen anhäuft, schon überall die zackigen Knochenkörperchen. Da ist aber keine scharfe Grenze im Gewebe, sondern die verdichtete und glänzende Substanz, welche die zackigen Körper umgibt, geht unmittelbar in die durchscheinende Substanz über, welche den gewöhnlichen Knorpel zusammenhält. Im Wesentlichen ist es derselbe Bau.
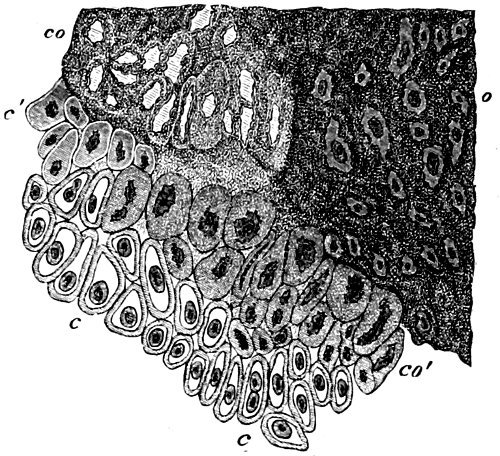
Fig. 138. Inselförmige Ossification in rachitischem Diaphysenknorpel. c, c der gewöhnliche wachsende (wuchernde) Knorpel, c' zunehmende Verdickung der Kapseln mit Bildung zackiger Höhlen (osteoide Knorpelzellen), co' Verkalkung solcher, noch isolirter Knorpelzellen, co beginnende Verschmelzung der Kapseln verkalkter Knorpelzellen, o Knochensubstanz. Vergr. 300. (Vergl. Archiv für pathologische Anatomie. Bd. XIV. Taf. I.)
Am wichtigsten für die cellulare Theorie überhaupt ist offenbar die isolirte Umbildung einzelner Knorpelzellen zu Knochenkörperchen. In einem Objecte (Fig. 138) übersieht man bei der Rachitis zuweilen die ganze Reihe dieser Vorgänge. Da, wo das vollständig knöcherne Stück, in welchem die Knochenkörperchen ganz regelmässig entwickelt sind, an den Knorpel stösst, findet sich eine Zone, wo man den Uebergang der Knorpelkörperchen in vollkommene Knochenkörperchen in ganz kurzen Strecken überblickt. An der Uebergangsstelle findet sich eine Reihe von Körperchen dicht an einander gelagert, wie Haselnüsse, die durch ihre dunkeln Contouren, ihr hartes Aussehen, ihren ungewöhnlich starken Glanz sich von den gewöhnlichen Knorpelkörperchen unterscheiden, und die in einer kleinen zackigen Höhle eine kleine Zelle umschliessen: das sind die noch isolirten Knochenkörperchen mit verkalkten Kapseln, welche ihnen noch von ihrer früheren Zeit als Knorpelkörperchen anhaften. Es ist desshalb besonders wichtig, diese Körper in ihrer Isolirung in loco zu sehen, weil man ohne ihre Kenntniss jene anderen Prozesse nicht begreift, bei welchen innerhalb des Knochens diese Territorien wieder ausfallen (Fig. 143).
Auf alle Fälle, wenn man ein Object dieser Art einmal genau verfolgt hat, kann man darüber nicht mehr in Zweifel kommen, dass aus Knorpelkörperchen Knochenkörperchen werden können, und ich begreife nicht, wie noch bis in die allerletzte Zeit sorgfältige Untersucher die Frage aufwerfen konnten, ob nicht das Knochenkörperchen jedesmal eine auf Umwegen gewonnene Bildung sei, welche mit dem Knorpelkörperchen keinen unmittelbaren Zusammenhang habe. Allerdings ist es richtig, dass bei dem normalen Längenwachsthum der Knochen die meisten Knochenkörperchen nicht direct aus Knorpelzellen, sondern zunächst aus Markzellen hervorgehen und nur mittelbar von Knorpelzellen abstammen, aber ebenso richtig ist es, dass auch die Knorpelzelle geraden Weges in ein Knochenkörperchen sich umbilden kann. Schon vor langer Zeit habe ich auf einen Punkt besonders aufmerksam gemacht, wo man die Umbildung des Knorpels zu osteoidem Gewebe sehr deutlich übersehen kann, nehmlich die Uebergangsstellen vom Knorpel zum Perichondrium in der Nähe der Verkalkungsgrenze. Hier verwischen sich die Grenzen der Gewebsformen vollständig, und man sieht alle Uebergänge zwischen runden (knorpeligen), spindel- oder linsenförmigen (bindegewebigen) und zackigen (osteoiden) Zellen[276].
Gerade so, wie aus dem Knorpelkörperchen ein Knochenkörperchen werden kann, so kann auch aus der Markzelle ein Knochenkörperchen werden. In den Markräumen des Knochens nehmen in der Regel diejenigen Markzellen, welche am Umfange liegen, späterhin eine mehr längliche Beschaffenheit an, richten sich parallel der inneren Oberfläche der Markräume, und das Mark selbst erlangt hier eine mehr faserige Intercellularsubstanz, weshalb man es eben als Markhaut betrachtet hat. Aber diese sogenannte Haut ist nicht von den centralen Theilen zu trennen; sie stellt nur die festeste und zugleich äusserste Schicht des Markgewebes dar. Sobald nun Tela ossea entstehen soll, so ändert sich die Beschaffenheit der Grundsubstanz. Dieselbe wird fester, sklerotisch, knorpelartig, die einzelnen Zellen scheinen in Lücken der Grund- oder Intercellularsubstanz zu liegen. Schon früh werden sie zackig, indem sie kleine Ausläufer treiben, und nun ist weiter nichts mehr nöthig, als dass sich in die dichte Grundsubstanz Kalksalze ablagern; dann ist der Knochen schon fertig. So bildet sich auch hier wieder durch eine ganz directe Transformation (Metaplasie) das Knochengewebe, und indem sich eine solche osteoide Schicht nach der anderen aus dem Marke ablagert, so entsteht dadurch compacte Knochensubstanz, welche jedesmal bezeichnet ist durch die lamellöse Ablagerung von Tela ossea im früheren Markraume (Fig. 38 u. 39). Der ursprüngliche Knochen ist immer bimsteinartig, porös; seine Höhlungen erfüllen sich, indem aus Marklamellen Lagen von Knochensubstanz bis zu dem Punkte nachwachsen, wo das Gefäss allein übrig bleibt, welches die Ossification nicht zulässt. —
Was nun die Entwickelung der Knochen in der Dicke d. h. aus dem Perioste[277] anbetrifft, so ist diese an sich viel einfacher, aber sie ist auch viel schwieriger zu sehen, weil die Ossification hier sehr schnell vor sich geht und die wuchernde Periostschicht so dünn und so zart ist, dass eine überaus grosse Sorgfalt dazu gehört, sie überhaupt nur wahrzunehmen. Im Pathologischen haben wir für ihr Studium ungleich bessere Gelegenheit, als im Physiologischen. Denn es ist ganz gleich, ob der Knochen in der Dicke physiologisch oder (durch eine Periostitis) pathologisch wächst; dies ist nur eine quantitative und zeitliche Differenz (Heterometrie, Heterochronie).
Im entwickelten Zustande besteht das Periost dem grössten Theile nach aus sehr dichtem Bindegewebe mit einer überaus grossen Masse von elastischen Fasern, innerhalb dessen sich Gefässe ausbreiten, um von da in die Rinde des Knochens selbst hineinzugehen. Wenn nun das Wachsthum des Knochens in der Dicke beginnt, so nimmt die innerste, gefässreiche Schicht des Periostes an Dicke zu und schwillt an; dann sagt man, es sei ein Exsudat geschehen, indem man als ausgemacht annimmt, dass die Schwellung ein Exsudat voraussetze, und dass hier das Exsudat zwischen Periost und Knochen liege. Nimmt man aber die Masse vor und analysirt sie, so zeigt sie keinerlei Aehnlichkeit mit irgend einer bekannten Art von einfachem Exsudate; die geschwollene Stelle erscheint vielmehr durch ihre ganze Dicke von aussen bis nach innen organisirt und zwar am deutlichsten gerade am Knochen, während man nach aussen gegen die Periost-Oberfläche hin die Structurverhältnisse weniger leicht entwirren kann. Diese Verdickungen können unter Umständen sehr bedeutend zunehmen. Bei einer Periostitis sehen wir ja, dass förmliche Knoten gebildet werden. Man denke nur an die mehr physiologische Geschichte des Callus nach Fractur. Nach einem Exsudate sucht man hier vergeblich. Verfolgt man die verdickten Lagen in der Richtung zu dem noch unverdickten Perioste hin, so kann man sehr deutlich sehen, was Duhamel schon sehr schön zeigte, was aber immer wieder vergessen wird, dass die Verdickungsschichten endlich alle in die Schichten des Periostes continuirlich sich fortsetzen. So wenig als das Periost unorganisirt ist, so wenig sind die Verdickungsschichten ohne Organisation. Die mikroskopische Untersuchung zeigt in der Nähe der Knochenoberfläche eine leicht streifige Grundsubstanz und darin kleine zellige Elemente; je weiter man sich vom Knochen entfernt, um so mehr finden sich Theilungen der Elemente und endlich die einfachen, aber sehr kleinen Bindegewebskörperchen des Periostes. Der Gang der Theilung ist derselbe, wie am Knorpel, nur dass der Wucherungsact an sehr feinen Elementen geschieht. Je grösser der Reiz, um so grösser wird auch die Wucherung, um so stärker die Anschwellung der wachsenden Stelle.
Diese aus der wuchernden Vermehrung der Periostkörperchen hervorgegangenen Elemente geben die Knochenkörperchen genau in derselben Weise, wie ich es beim Marke beschrieben habe. In der Nähe der Knochenoberfläche verdichtet sich die Grundsubstanz und wird fast knorpelartig, die Elemente wachsen aus, werden sternförmig und endlich erfolgt die Verkalkung der Grundsubstanz. Ist der Reiz sehr gross, wachsen die Elemente sehr bedeutend, dann entsteht hier wirklicher Knorpel; die Elemente vergrössern sich so, dass sie bis zu grossen, ovalen oder runden Zellen anwachsen und die einzelnen Zellen um sich herum eine kapsuläre Abscheidung bilden. Auf diese Weise kann auch im Periost durch eine directe Umbildung des wuchernden Periostes Knorpel entstehen, aber es ist keinesweges nothwendig, dass wirklicher, eigentlicher Knorpel entsteht; in der Regel erfolgt nur die osteoide Umbildung, wobei die Grundsubstanz sklerotisch wird und sofort verkalkt.
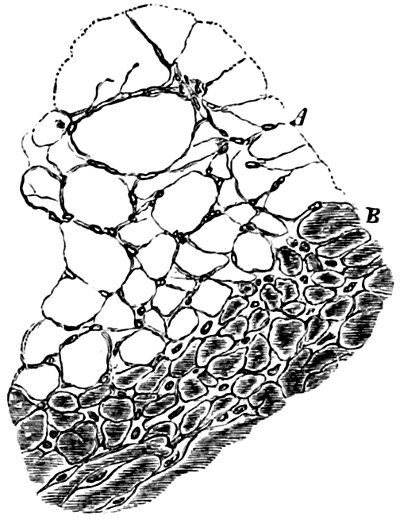
Fig. 139. Verticaldurchschnitt durch die Periostfläche eines Os parietale vom Kinde. A Die Wucherungsschicht des Periostes mit anastomosirenden Zellennetzen und Kerntheilung. B Bildung der osteoiden Schicht durch Sklerose der Intercellularsubstanz. Vergr. 300.
So geschieht es, dass an der Oberfläche jedes wachsenden Knochens, wie insbesondere Flourens nachgewiesen hat, der neue Knochen sich immer Schicht auf Schicht ansetzt, und dass die neuen Schichten den alten Knochen so umwachsen, dass ein Ring, den man um den Knochen legt, nach einiger Zeit innerhalb desselben liegt, umschlossen von jungen Schichten, welche sich aussen herum gebildet haben. Letztere stehen mit dem alten Knochen durch kleine Säulchen in Verbindung, welche dem Ganzen ein bimsteinartiges Aussehen geben, und auch hier erfolgt die spätere Verdichtung zu Rindensubstanz dadurch, dass sich in den einzelnen, durch die Säulchen umgrenzten Räumen concentrische Lamellen von Knochensubstanz aus dem periostealen Marke bilden[278].
Nirgends jedoch sieht man die Uebergänge des periostealen Bindegewebes in die eigentlich osteoide Substanz mit einer so überzeugenden Deutlichkeit, als an manchen Knochengeschwülsten, namentlich den Osteoidchondromen. Solche finden sich besonders an den Kiefern von Ziegen[279], und da auch hier die Verkalkung der schon Knochenstructur besitzenden Theile in grossen Abschnitten nicht erfolgt, so leisten sie für die Darstellung der Uebergänge des Bindegewebes in osteoide Substanz etwa dasselbe, was uns für die Umbildung der Knorpel die Geschichte der Rachitis gelehrt hat. Wobei ich übrigens bemerke, dass die Thierärzte, ich weiss nicht mit wie viel Recht, solche Zustände auch als Rachitis bezeichnen. Die Geschwulst, welche oft Ober- und Unterkiefer, aber jeden für sich befällt, ist so wenig dicht, dass man sie ganz bequem schneiden kann; nur an einzelnen Stellen findet das Messer einen stärkeren Widerstand. Macht man feinere Durchschnitte, so sieht man schon vom blossen Auge, dass dichtere und weniger dichte Stellen mit einander abwechseln, dass das Ganze ein maschiges Aussehen hat. Bringt man es bei schwacher Vergrößerung unter das Mikroskop, so bemerkt man sofort, dass die ganze Anlage vollkommen die eines neugebildeten Knochens ist; eine Art von Markhöhlen und ein Balkennetz wechseln mit einander ab, genau so, wie wenn man die Markhöhlen und Balken eines spongiösen Knochens vor sich hätte. Die Substanz, welche das Balkennetz bildet, ist im Ganzen dicht und erscheint dadurch schon bei schwacher Vergrösserung leicht von der zarteren Substanz, welche dazwischen liegt und die Maschenräume füllt, verschieden. Letztere bietet, wenn man sie stärker vergrössert, ein fein streifiges, faseriges Aussehen dar. Die Faserzüge laufen zum Theil parallel den Rändern der Balken. Innerhalb der letzteren sieht man bei starker Vergrösserung ähnliche Gebilde, wie sie das Knochengewebe darbietet, zackige Körperchen, ganz regelmässig verbreitet.
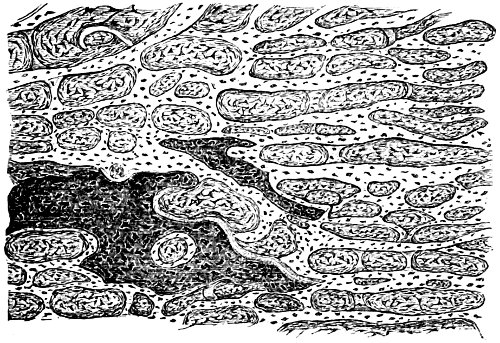
Fig. 140. Schnitt aus einem Osteoidchondrom vom Kiefer einer Ziege: Habitus der Periost-Ossification. Osteoide Balkennetze mit zackigen Zellen umschliessen primäre Markräume, mit faserigem Bindegewebe gefüllt. Die dunkeln Stellen verkalkt und fertiges Knochengewebe darstellend. Vergr. 150.
Dieser Habitus entspricht vollständig dem, was bei der Entwickelung des Knochens vom Periost aus geschieht[280]; es ist, kurz gesagt, das Schema des Dickenwachsthums des Knochens. Ueberall, wo man junge Periost-Auflagerungen untersucht, findet man innerhalb des maschigen Netzes, welches die osteoide Substanz bildet, faseriges Mark, nicht zelliges, wie in der späteren Zeit. Es sind die Reste des gewucherten Periostes selbst, welche noch nicht einer weiteren Metaplasie unterlegen haben. Die osteoide Umbildung erfolgt in die Periostwucherung hinein ursprünglich immer in der Weise, dass sich von der Knochenoberfläche aus das Fasergewebe in gewissen Richtungen verdichtet; dadurch entstehen härtere, zuerst senkrecht und säulenartig auf dem Knochen aufsitzende Zapfen, welche sich durch quere, der Knochenoberfläche parallele Züge oder Bogen verbinden und so jenes Maschenwerk herstellen. Lässt man Essigsäure auf diese Theile einwirken, so sieht man alsbald, dass die ganze fibröse Masse, welche die Alveolen erfüllt, die wundervollsten Bindegewebs-Elemente enthält, und zwar in der Anordnung, dass dieselben am Umfange der Balken mehr spindel- oder linsenförmig sind und in concentrischen Streifen liegen, während sie in der Mitte der Maschenräume sternförmig sind und unter einander anastomosiren. Dass um die Alveolen herum aber wirklich schon Knochenbalken vorhanden sind, davon kann man sich an den Stellen sehr schön überzeugen, wo Kalksalze darin abgelagert sind. Während die Peripherie solcher verkalkten Balken (Fig. 140) ein glänzendes, fast knorpelartiges Aussehen hat, tritt mehr nach innen in denselben schon eine trübe, feinkörnige, in Säuren lösliche Masse auf, welche die Intercellularsubstanz durchsetzt und gegen die Mitte der Balken hin in eine fast gleichmässige, kalkige Schicht übergeht, in der von Strecke zu Strecke die Knochenkörperchen hervortreten. Hier haben wir also schon ein vollständiges Knochennetz, zugleich das regelrechte Bild für das Dickenwachsthum des Knochens.
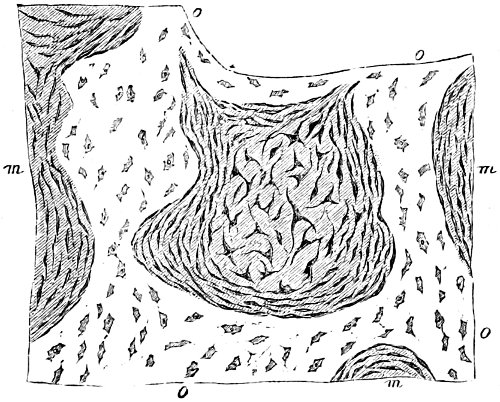
Fig. 141. Ein Stück aus Fig. 140, stärker vergrössert, nach Einwirkung von Essigsäure. o, o die osteoiden Balken; m, m, m die primären Markräume mit Spindel- und Netzzellen. Vergröss. 300.
Betrachtet man aber recht sorgfältig die Stellen, wo der Rand dieser Balken und Knochenzüge mit der fibrösen Substanz der Maschenräume zusammenstösst, so sieht man hier keine vollkommen scharfe Grenze; im Gegentheil, die osteoide Substanz verstreicht nach und nach in das fibröse Gewebe, so dass hier und da einzelne der Bindegewebselemente des fibrösen Gewebes schon in die sklerotische Substanz der Balken miteingeschlossen werden. Daraus kann man abnehmen, dass die Bildung der eigentlichen Knochensubstanz wesentlich erfolgt durch die allmähliche Veränderung von Intercellularsubstanz, und zwar so, dass diese aus ihrem ursprünglich faserigen Bindegewebs-Zustande in eine dichte, glänzende, sklerotische, knorpelartige Masse übergeht, welche sich jedoch sowohl durch Structur, als durch Mischung von Knorpel unterscheidet. Hier ist nie ein Stadium, welches den bekannten Formen des gewöhnlichen Knorpels entspräche, sondern es geht direkt aus Bindegewebe die osteoide Form hervor, dieselbe Form, welche auch im Knorpel und Mark erst entsteht, wenn aus ihnen Knochen wird. Es ist diese Erfahrung insofern sehr wesentlich, als man durch sie die Ueberzeugung gewinnt, dass es falsch ist, von Knochenknorpel in dem Sinne zu sprechen, als ob gewöhnlicher Knorpel die organische Grundlage des Knochengewebes bilde. Der Knorpel als solcher kann nur verkalken; wenn er Knochen werden soll, so muss eine Umsetzung seines Gewebes stattfinden: es muss sich die chondrinhaltige Grundsubstanz verdichten und, wenigstens zum grössten Theile, in eine leimgebende Intercellular-Masse umwandeln (S. 453).
Die Ossification aus Bindegewebe ist die Regel für die pathologische Neubildung von Knochen, insbesondere für die Callusbildung nach Fractur, über welche ich noch ein Paar Worte hinzufügen will, da es ein viel discutirter und chirurgisch sehr wichtiger Prozess ist.
Schon aus meiner bisherigen Darstellung ist leicht ersichtlich, dass der Wege der Neubildung von Knochengewebe mehrere sind, und dass die alte Voraussetzung, als müsse ein Modus als der allein gültige betrachtet werden, nicht richtig ist. Eine Präexistenz von eigentlichem Knorpel vor der Knochenbildung ist durchaus nicht nothwendig, vielmehr bildet sich viel häufiger durch eine direkte Sklerose der Intercellularsubstanz aus Bindegewebe osteoides Gewebe und aus diesem Knochengewebe; ja die Ossification kommt so eigentlich leichter und einfacher zu Stande, als aus gewöhnlichem Knorpel. Gerade in der Geschichte der Callustheorien hat es sich auf das Deutlichste gezeigt, dass das Bestreben, eine einfache Formel aufzufinden, das grösste Hinderniss für die Erkenntniss der Callusbildung gewesen ist, und dass, trotz der grossen Verschiedenheit der Meinungen, eigentlich Alle Recht gehabt haben, indem in der That der neue Knochen sich aus dem verschiedensten Material aufbaut.
Unzweifelhaft werden, wenn der Fall günstig ist, die bequemsten Wege für die Neubildung betreten, und der allerbequemste Weg ist der, dass das Periost den übergrossen Theil des Callus hervorbringt. Es geschieht dies in der Weise, dass das Periost gegen den Rand des Bruches hin sich verdickt und hier unter fortschreitender Proliferation nach und nach anschwillt, so zwar, dass man nachher ziemlich deutlich einzelne sich übereinander schiebende Lagen oder Schichten (Lamellen) daran unterscheiden kann. Diese werden immer dicker und zahlreicher, indem fortwährend die innersten Theile des Periostes wuchern und durch Vermehrung ihrer Elemente neue Lagen bilden, welche sich zwischen dem Knochen und den noch relativ normalen äusseren Theilen des Periostes aufhäufen. Diese Lagen können zu wirklichem Knorpel werden, aber es ist dies nicht nothwendig und nicht die Regel. Ja es findet sich sogar, dass bei den meisten Fracturen, wo Knorpel entsteht, nicht die ganze Masse des Periostcallus aus Knorpel hervorgeht, sondern ein mehr oder weniger grosser Theil sich immer aus Bindegewebe bildet. Die Knorpelschichten liegen gewöhnlich dem Knochen zunächst; je weiter man nach aussen kommt, um so mehr herrscht die direkte Umbildung des Bindegewebes vor.
Die Neubildung von Knochengewebe beschränkt sich aber bei Fracturen keineswegs auf das Periost; sehr häufig geht sie nach aussen über dasselbe hinaus, und nicht selten reicht sie in Form von Stacheln, Knoten und Höckern sehr weit in die benachbarten Weichtheile hinein. Es versteht sich von selbst, dass hier keinesweges eine nach aussen gehende Wucherung des Periostes stattfindet, sondern dass aus dem Bindegewebe der benachbarten Theile ossificationsfähiges Gewebe hervorgeht. Man kann sich davon leicht überzeugen, da man in solche Massen die Ansätze von Muskeln verfolgen kann. Ja, nicht selten findet man an den äusseren Theilen Stellen, wo subcutanes Fettgewebe mit in die Ossification eingeschlossen worden ist. Man kann also nicht sagen, dass die Callusbildung im Umfange der Fracturstücke nur eine periosteale Bildung sei; jedesmal, wenn sie eine gewisse Reichlichkeit gewinnt, überschreitet sie die Grenzen des Periostes und geht in das Bindegewebe der umliegenden Weichtheile hinein. Diesen Theil des äusseren Callus nenne ich parosteal.
Vollständig verschieden von dieser äusseren Callusbildung ist diejenige, welche mitten im Knochen aus dem Mark erfolgt: die medulläre oder besser myelogene.
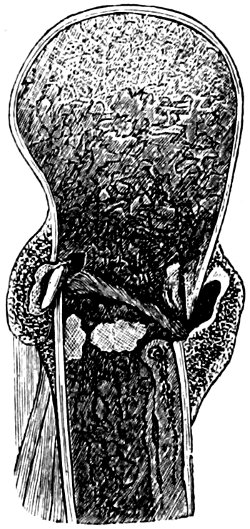
Fig. 142. Querbruch des Humerus mit Callusbildung, etwa 14 Tage alt. Man sieht aussen die poröse Kapsel des aus Periost und Weichtheilen hervorgegangenen Callus, dessen innerste Lage rechts noch knorpelig ist. Links liegt frei ein abgesplittertes Stück der Knochenrinde. Die beiden Bruchenden sind durch eine (dunkelrothe) hämorrhagisch-fibröse Schicht verbunden, das Mark beiderseits (durch Hyperämie und Extravasat) sehr dunkel, im unteren Bruchstücke mehrere poröse Callusinseln, aus der Ossification des Markes hervorgegangen.
In dem Augenblicke, wo der Knochen bei dem Bruche zertrümmert wird, werden natürlich viele kleine Markräume oder gar die grosse centrale Markhöhle eröffnet. In der Nähe der Bruchstelle füllen sich nun fast constant bei regelmässigem Verlaufe die noch unversehrten Markräume mit Callus, indem sich an die innere Fläche der sie umgrenzenden Knochenbalken neue Knochenlamellen aus dem Marke ansetzen, wie bei dem gewöhnlichen Dickenwachsthum des Knochens die ursprünglich bimsteinartigen äusseren Lagen durch die Einlagerung concentrischer Lamellen compact werden. Auf diese Weise geschieht es, dass nach einiger Zeit eine mehr oder weniger grosse neue Knochen-Schichte sich findet, welche continuirlich durch die Markhöhle hindurchzieht und eine Abschliessung derselben zu Stande bringt. Diese innere Callusbildung hat mit der äusseren in Beziehung auf die Ausgangspunkte gar nichts gemeinschaftlich; sie geht von einem ganz anderen Gewebe aus und liefert auch im Groben ein anderes Resultat, insofern sie innerhalb der Grenzen des alten Knochens eine Verdichtung desselben an der Bruchstelle hervorbringt. Selbst in dem Falle, dass die Knochenenden vollständig aufeinander passen, gestaltet sich in beiden Markhöhlen eine solche innere Knochenbildung, welche für eine gewisse Zeit eine Unterbrechung der Markhöhle erzeugt.
Diese beiden Arten der Callusbildung sind die gewöhnlichen und normalen. Im Umfange der beiden Bruchenden geschieht die Anschwellung, im Innern die Verdichtung. Allmählich treten die neugebildeten Massen sich näher, ringsherum bildet sich aus der Ossification der Weichtheile eine brücken- oder capselartige Verbindung. Die übrige Vereinigung der getrennten Knochentheile geschieht endlich aus dem alten Knochengewebe selbst, welches an gewissen Theilen in weiches Gewebe übergeht, proliferirt, verschmilzt und von Neuem ossificirt. Es ist also wenig Grund zu fragen, ob der Callus aus einer freien Exsudat- oder Extravasatmasse hervorgehe. Allerdings erfolgt anfänglich eine Extravasation in den Raum zwischen die Bruchenden, allein das ausgetretene Blut wird in der Regel ziemlich vollständig absorbirt, und es trägt für die Constituirung der Verbindungsmassen verhältnissmässig sehr wenig bei. Ist viel Blut zwischen den Bruchenden, so bildet es eher ein Hinderniss, als eine Begünstigung für die Consolidation. —
Ergibt sich demnach die Ossification aus Knorpel als ein verhältnissmässig seltener Fall, so bleibt doch die Erfahrung von der Umwandlung einzelner Knorpelkörperchen in Knochenkörperchen überaus lehrreich. Denn das Knorpelkörperchen steht dem Bindegewebskörperchen parallel und seine Kapsel repräsentirt die zuletzt von ihm hervorgebrachte Intercellularsubstanz, deren Grenze sich in dem Bindegewebe sofort verwischt. Aber sicherlich ist sie vorhanden und für die Ernährungsverhältnisse von bestimmender Wichtigkeit. Ja wir müssen sagen, dass die alte Grenze immerfort den Bezirk bezeichnet, welcher von dem Knochenkörperchen beherrscht wird, und, wie ich das schon am Eingange (S. 18) gerade für diesen Punkt hervorgehoben habe, unter pathologischen Verhältnissen tritt dieser Bezirk (Territorium) nicht nur wieder in Kraft, sondern auch in's Gesicht. In diesem Kreise macht das Knochenkörperchen seine besonderen Schicksale durch. Wird ein Knochen auf irgend eine Weise zu neuen Transformationen oder Productionen bestimmt, so geht ein Knochenkörperchen nach dem anderen innerhalb seiner Gebietsgrenzen in die Veränderung ein. Bildet sich im Umfange nekrotischer Stücke eine Demarcationslinie (reactive Entzündung), so bekommt die Oberfläche des Knochens, vom Rande her gesehen, Ausbuchtungen, deren Umfang den alten Zellterritorien entspricht[281]. Auf der Fläche bemerkt man Lücken, welche hier und da zusammenfliessen und Gruben darstellen. Das Knochenkörperchen, welches früher an der Stelle der Grube lag, hat in dem Maasse, als es sich selbst veränderte, auch die umgebende Intercellularsubstanz bestimmt, in die Veränderung einzugehen.
Fig. 143. Demarkationsrand eines nekrotischen Knochenstückes bei Paedarthrocace. a, a, a der nekrotische Knochen mit sehr vergrösserten Knochenkörperchen und Knochenkanälchen; hier und da Andeutungen von Gruben auf der Fläche. b, b die Lacunen, welche an die Stelle der Zellenterritorien des Knochens (vgl. Fig. 138) getreten sind, im seitlichen Abfalle des etwas dicken Präparates gesehen; hier und da noch vergrößerte Knochenkörperchen durchscheinend. c, c die vollständig leeren Lücken. Vergr. 300.
Von dieser, den lebenden Knochen treffenden Veränderung ist eine andere, der äusseren Erscheinung nach oft sehr ähnliche wohl zu unterscheiden, welche auch an todten (nekrotischen) Knochen vorkommt. Viele Jahre hindurch ist es streitig gewesen, ob todte Knochen durch den Eiter angegriffen werden. Zahlreiche Versuche mit fast regelmässig negativem Ergebniss hatten zuletzt die Ueberzeugung allgemein gemacht, dass der todte Knochen inmitten des Eiters unverändert bleibe. Erst Erfahrungen, welche Herr von Langenbeck an Elfenbeinstücken machte, die in lebende menschliche Knochen eingesenkt wurden, haben dargethan, dass, wenn auch nicht der Eiter als solcher, so doch die Granulationen das todte Gewebe „anfressen“. Ich habe mich durch eigene Untersuchung an solchen Stiften überzeugt, dass sowohl kleine, als ganz grosse Gruben an der Oberfläche früher ganz glatter Stifte entstehen, und es kann hier um so weniger zweifelhaft sein, dass diese Gruben mit Zellenterritorien nichts zu thun haben, als das Elfenbein solche Territorien gar nicht besitzt. Nicht alle Gruben und Löcher am Knochen sind also durch Einschmelzung von Zellenterritorien entstanden; das Gesagte gilt nur von solchen Gruben, welche wirklich der Form und Grösse nach den Zellenterritorien entsprechen. Solche kann man sowohl an der compacten Knochenrinde, als auch an den Bälkchen des Markes wahrnehmen.
Das sind Vorgänge, ohne deren Verständniss man die Geschichte der Caries gar nicht begreifen kann. Die Caries beruht eben darin, dass der Knochen sich in seine Territorien auflöst, dass die einzelnen Elemente, und zwar sowohl die des Knochengewebes, als auch die des Markes, in neue Entwickelung gerathen, und dass die Reste von alter Grundsubstanz als kleine, dünne Scherben in der weichen Substanz liegen bleiben. Ich habe dies wiederholt an Amputationsstümpfen verfolgt, an denen sich bald nach der Operation eine Periostitis mit leichter Eiterung, der Anfang von Caries peripherica, fand. Wenn man in einem solchen Falle das verdickte Periost abzieht, so sieht man in dem Moment, wo das Periost sich von der Oberfläche entfernt und die Gefässe sich aus der Knochenrinde hervorziehen, nicht, wie bei einem normalen Knochen, einfache Fäden, sondern einen kleinen Zapfen, eine dickere Masse; hat man sie ganz herausgezogen, so bleibt ein unverhältnissmässig grosses Loch zurück, viel umfangreicher, als unter normalen Verhältnissen. Untersucht man den Zapfen, so findet man, dass um das Gefäss herum eine gewisse Quantität von weichem Gewebe liegt, dessen zellige Elemente sich in fettiger Degeneration oder in zelliger Wucherung befinden. An den Stellen, wo das Gefäss herausgezogen ist, erscheint die Oberfläche nicht eben, wie beim normalen Knochen, sondern rauh und porös, und wenn man dieselben unter das Mikroskop bringt, so bemerkt man jene Ausbuchtungen, jene eigenthümlichen Löcher, welche den einschmelzenden Zellenterritorien zugehören. Fragt man also, auf welche Weise der Knochen im Anfange der Caries porös wird, so kann man sagen, dass es sicherlich nicht so geschieht, dass sich Exsudate bilden, denn dazu ist kein Raum vorhanden, da die Gefässe innerhalb der Markkanäle (Fig. 38, 39, 41) unmittelbar die Tela ossea berühren. Vielmehr bilden sich Lücken, welche sofort gefüllt sind mit einer weichen Substanz, die ein leicht streifiges Bindegewebe mit fettig degenerirten oder gewucherten Zellen darstellt. Schmilzt im Umfange eines Markkanals ein Knochenkörperchen nach dem anderen ein, so wird man nach einiger Zeit den Markkanal von einer lacunären Bildung umgrenzt finden. Mitten darin steckt immer noch das Gefäss, welches das Blut führt, aber die Substanz herum ist nicht Knochen oder Exsudat, sondern degenerirtes Gewebe, in welches möglicherweise aus den Gefässen ausgewanderte farblose Blutkörperchen eindringen. Der ganze Vorgang ist eine degenerative Ostitis, wobei die Tela ossea ihre chemische und morphologische Haltung einbüsst, und an ihre Stelle ein weiches, nicht mehr kalkführendes Gewebe tritt. Dieses kann je nach Umständen sehr verschieden sein, einmal eine fettig degenerirende, zerfallende Masse, in einem anderen Falle ein zellenreiches Gewebe mit zahlreichen jungen Elementen. Die neu entstehende Substanz verhält sich wieder, wie Mark. Unter Umständen kann sie so wachsen, dass, wenn wir das Beispiel wiederum von der Oberfläche des Knochens nehmen, wo sich ein Gefäss hineinsenkt, die junge Markmasse neben dem Gefässe herauswuchert und als ein Knöpfchen erscheint, welches eine Grube der Oberfläche erfüllt und unter Umständen sogar über sie hervorragt. Das nennen wir eine Granulation.
Untersucht man Granulationen im Vergleiche mit rothem Mark, so ergibt sich, dass keine zwei Arten von Gewebe mehr mit einander übereinstimmen. Das Knochenmark eines Neugebornen könnte man jeden Augenblick chemisch und mikroskopisch für eine Granulation ausgeben. Die Granulation ist nichts weiter, als junges, weiches, schleimhaltiges Gewebe, analog dem Mark. Es gibt eine entzündliche Osteoporose, welche nur darin beruht, dass eine vermehrte Markraumbildung eintritt und der Prozess, welcher an der Markhöhle ganz normal ist, sich auch aussen in der compacten Rinde findet. Diese Osteoporose (Osteomalacie) unterscheidet sich von der granulirenden Caries peripherica nur durch ihren Sitz. Geht man einen Schritt weiter und lässt man die Zellen, welche bei der Osteoporose in mässiger Menge vorhanden sind, reichlicher und reichlicher werden, während die Grundsubstanz dazwischen immer weicher und spärlicher wird, so haben wir Eiter. Dieser entsteht nicht aus einem Blastem durch einen besonderen Act, nicht durch eine Schöpfung de novo, sondern er entwickelt sich regelrecht von Generation zu Generation nach vollkommen legitimer Art, gleichviel, ob seine Elemente aus den Elementen des früheren Gewebes hervorgehen[282], oder ob sie direkt aus dem Blute in das Gewebe einwandern.
Es liegt also in der Geschichte des kranken Knochens eine ganze Reihe von Gewebs-Umbildungen vor uns: der zuerst entstandene, aus Knorpel oder Bindegewebe hervorgehende Knochen kann Umbildungen erfahren zu Mark, dann zu Granulations-Gewebe, und endlich zu fast reinem Eiter. Die Uebergänge sind hier so allmählich, dass bekanntlich derjenige Eiter, welcher zunächst auf die Granulation folgt, eine mehr schleimige, fadenziehende, zähe, cohärente Masse darstellt, welche auch wirklich Schleimstoff enthält, analog dem Granulations-Gewebe, und welche erst, je weiter man nach aussen kommt, die Eigenschaften des vollendeten Eiters zeigt. Der fertige rahmige Eiter der Oberfläche geht gegen die Tiefe hin nach und nach über in das Pus crudum, den schleimigen, zähen, nicht maturirten Eiter der tieferen Lagen, und was wir Maturation nennen, beruht nur darauf, dass die schleimige Grundsubstanz des ursprünglich zähen Eiters, welcher sich seiner Structur nach der Granulation anschliesst, allmählich in die vollkommen flüssige, albuminöse Zwischensubstanz des reinen Eiters übergeht. Der Schleim löst sich auf und die rahmige Flüssigkeit entsteht. Die Reifung ist also im Wesentlichen eine Erweichung und Verflüssigung der Intercellularsubstanz. So unmittelbar hängen Entwickelung und Rückbildung, physiologische und pathologische Zustände zusammen.
Das ist ein Theil der normalen und pathologischen Vorgänge, welche wir bei der Bildung und Umbildung von Knochen erkennen. Man muss daraus entnehmen, dass es sich hier um eine Reihe von Permutationen oder Transformationen oder Substitutionen handelt, welche ein Fortschreiten bald zu einer höheren, bald zu einer niederen Form der Bildung darstellen, welche aber immerfort continuirlich mit einander zusammenhängen und welche je nach den Bedingungen, welche auf die Theile wirken, sich bald so, bald anders gestalten. Wir haben es in der Hand, ob wir einzelne Theile des Knorpels oder des Periostes bestimmen wollen, zu ossificiren oder sich in ein weiches Gewebe umzubilden. In dieser ganzen Reihe steht allein das rothe Mark als der Typus der heterologen Formen dar, indem es die kleinsten und am wenigsten charakteristischen Zellen enthält. Das junge Markgewebe entspricht seiner Erscheinung nach am meisten jenen jungen Entwickelungen, mit welchen alle heterologen, per secundam intentionem entstehenden Gewebe beginnen, und da es, wie ich vorhin schon berührte, zugleich den eigentlichen Typus für alle Granulationen darstellt[283], so kann man sagen, dass, wo immer Neubildungen in massenhafter Weise entstehen sollen, auch eine dem Typus des jungen Markes analoge Substitution (Granulation) erfolgt, und dass, gleichviel, welche Festigkeit das alte Gewebe haben mag, doch immer eine Proliferation stattfinden kann, welche die Keime für die späteren Elemente legt.
Fußnoten: