DAS PROTISTENREICH.
Reading edition
Eine populäre Uebersicht
über das
Formengebiet der niedersten Lebewesen.
Mit einem wissenschaftlichen Anhange:
SYSTEM DER PROTISTEN.
Von
E. HÆCKEL.
Mit zahlreichen Holzschnitten.
Leipzig.
Ernst Günther’s Verlag.
1878.
Alle Rechte vorbehalten.
Für das tiefere Verständniss unserer heutigen Entwicklungslehre und der darauf gegründeten einheitlichen Weltanschauung dürften wenige Zweige der Naturwissenschaft von so fundamentaler Bedeutung sein, wie die Naturgeschichte der niedersten Lebewesen, der sogenannten Protisten. Denn die urwüchsige Einfachheit im Körperbau und in den Lebens-Erscheinungen dieser unvollkommnen »Urwesen« öffnet uns erst den wahren Weg für das Verständniss der viel entwickelteren und schwierigeren Erscheinungen, welche uns die Anatomie und Physiologie der höheren und vollkommneren Organismen, der echten Thiere und Pflanzen darbietet. Dennoch ist die Bekanntschaft mit den Protisten bisher fast nur auf die gelehrten Fachkreise beschränkt geblieben und erst sehr wenig in weitere Kreise eingedrungen. Das ist auch leicht erklärlich. Denn die grosse Mehrzahl jener einfachsten Lebensformen, die wir im »Protistenreich« zusammenfassen, ist dem unbewaffneten Auge völlig verborgen. Erst durch das Mikroskop können wir sie erkennen, und meistens erst mit Hülfe starker Vergrösserungen ihre Form-Verhältnisse genau erforschen. Aber auch dann ist diese Erforschung noch mit vielen Schwierigkeiten und Hindernissen verknüpft. Denn die allgemeinen Anschauungen vom lebendigen Organismus, die gewöhnlichen Begriffe von den Organen und Functionen der Lebewesen, welche wir aus der alltäglichen Anschauung des höheren Thier- und Pflanzen-Lebens uns gebildet haben, passen nur wenig oder gar nicht auf jene niedersten Lebensformen. Ausserdem ist aber auch die gründliche wissenschaftliche Forschung der letzteren kaum vierzig Jahre alt; und erst die sehr ausgedehnten und sorgfältigen Untersuchungen der letzten zwanzig Jahre haben ihre Kenntniss auf eine solche Höhe gebracht, dass wir gegenwärtig wenigstens eine befriedigende Vorstellung von der Eigenthümlichkeit und eine klare Einsicht in die Bedeutung des Protisten-Reiches gewonnen haben.
Wenn wir nun hier den Versuch wagen, in allgemein-verständlicher Form eine kurze Uebersicht über das ganze grosse Protistenreich zu geben, und seine hohe Bedeutung für die Entwicklungslehre dem Verständniss der gebildeten Kreise näher zu bringen, so sind wir uns der grossen damit verknüpften Schwierigkeiten wohl bewusst. Wir glauben aber denselben am besten zu begegnen, wenn wir uns auf die gedrungene Zusammenfassung des Wichtigsten beschränken, und die Bekanntschaft mit dem höchst mannigfaltigen und interessanten Detail dieses unendlich reichen Forschungs-Gebietes dem Studium der Special-Werke überantworten. Zunächst wird sicher für unsere moderne Entwicklungslehre und weiterhin auch für unsere damit verknüpfte monistische Weltauffassung schon viel gewonnen sein, wenn eine allgemeine Anschauung von dem weiten Umfang des mikroskopischen Lebensreiches, von der Einfachheit und elementaren Bedeutung des »kleinsten Lebens« sich einen Platz im Bewusstsein unserer gebildeten Kreise erobert hat.
Die niedersten Lebewesen, die wir hier als Protisten, d. h. »Erstlinge« oder »Urwesen« zusammenfassen, werden in weiteren Kreisen auch heute noch sehr oft mit den unpassenden Namen Infusorien oder Infusionsthierchen (im weiteren Sinne!) bezeichnet. In den systematischen Lehrbüchern der Naturgeschichte werden sie meistens als Urthiere (oder »Protozoa«) aufgeführt. Die beste deutsche Bezeichnung für die ganze grosse Gruppe wäre vielleicht: Zellinge oder Zellwesen; denn es würde dadurch die wesentlichste Eigenthümlichkeit ihrer Organisation, die autonome Selbständigkeit und permanente Individualität ihres einfachen Zellen-Leibes in präcisester Weise ausgedrückt.
Obgleich Viele von der Existenz der meisten mikroskopischen Protisten keine Ahnung haben, so kommt dennoch jeder Mensch unendlich oft mit ihnen in Berührung. Jeder hat beim Wassertrinken, beim Essen von Früchten, Austern und anderen rohen Speisen schon Tausende und Millionen von lebenden Protisten verschluckt, ohne sich dessen bewusst geworden zu sein. Denn obgleich diese merkwürdigen Geschöpfe von dem unbewaffneten Auge des Menschen zum grössten Theile gar nicht erkannt oder höchstens als ganz kleine Pünktchen wahrgenommen werden, sind sie dennoch in zahllosen, höchst mannigfaltigen und interessanten Formen allenthalben über unseren Erdball verbreitet. Unsere Mikroskope weisen uns dieselben überall im süssen und salzigen Wasser nach. Alle Bäche und Flüsse, alle Teiche und Seen, alle Tümpel und Gräben enthalten solche Urthierchen, oft in unglaublicher Masse. Man kann keinen Stein, keine Pflanze aus dem Wasser heben, ohne in dem daran haftenden schleimigen Ueberzug wenigstens einzelne Infusorien zu finden. Ebenso ist das Meer überall von ihnen belebt. Der weiche Schlamm, der den Meeresgrund bedeckt, besteht zum grossen Theil aus dergleichen Protozoen. Der feine schlammige Ueberzug, der bei ruhigem Wetter den klaren Meeresspiegel überzieht, ist aus Milliarden schwimmender Infusorien zusammengesetzt. Aber auch der Staub unserer Strassen, der Sand unserer Dachrinnen, die Humus-Erde unserer Felder und Wälder, enthält Millionen kleinster Infusorien-Keime, sowie eingetrocknete, aber noch lebensfähige Körper derselben. Wir brauchen bloss diesen Staub und Sand in einem Glase mit etwas Wasser zu übergiessen und diesen Aufguss einige Zeit in der Sonne stehen zu lassen, um durch unser Mikroskop Massen von beweglichen Infusorien wahrzunehmen; theils haben sie sich in kürzester Zeit aus jenen Keimen entwickelt, theils sind sie unter dem belebenden Einflusse des Wassers aus ihrem Trockenschlafe zu neuem Leben erwacht. Ist es ja doch gerade diese Erscheinung, die zu der Benennung: Infusoria oder Infusionsthierchen, d. h. »Aufgussthierchen« Veranlassung gab.
Es sind jetzt kaum zweihundert Jahre verflossen, seitdem die mikroskopischen Infusorien durch den holländischen Naturforscher Anton van Leeuwenhoek zuerst in einem Topfe voll stehenden Regenwassers entdeckt wurden. Die Holländer haben die zweihundertjährige Jubelfeier dieser Entdeckung, die damals das grösste Aufsehen erregte, vor wenigen Jahren (1875) feierlichst begangen; und sie thaten Recht daran. Denn die wissenschaftliche Tragweite derselben ist in der That unermesslich, und je mehr wir mit unseren vervollkommneten Mikroskopen in die tiefsten Geheimnisse des Lebens eindringen, desto mehr werden wir uns ihrer Bedeutung bewusst.
Unsere ganze Anschauung vom Wesen des Lebens und von der Entwicklung der organischen Gestalten ist durch die genauere Erkenntniss dieser Urthierchen oder Infusionsthierchen unendlich erweitert und gefördert worden. Anatomie und Physiologie, Entwickelungsgeschichte und Systematik verdanken ihr die wichtigsten Aufschlüsse. Selbst für die Geologie haben sie eine ausserordentliche Bedeutung erlangt. Denn diese kleinsten Lebensformen haben keinen geringeren Einfluss auf die Bildung der mächtigsten Gebirgsmassen und auf die ganze Gestaltung unserer Erdrinde ausgeübt, als alle die zahlreichen grossen Thiere und Pflanzen, die unsern Planeten seit Millionen von Jahren belebt haben. Die mikroskopischen Kalkschalen und Kieselgehäuse, welche sich die meisten Urthiere bilden, bleiben nach dem Tode ihrer Bewohner unverändert übrig. Sie häufen sich auf dem Grunde der Gewässer massenhaft an, bilden hier mächtige Schlammschichten und werden im Laufe der Jahrtausende zu festem Gesteine verdichtet. So sind z. B. die Kreide-Gebirge von England und von der Insel Rügen, sowie die über der Kreideformation abgelagerten eocänen Tertiärschichten zum grössten Theile, oft fast ausschliesslich, aus den zierlichen Kalkschalen der Polythalamien zusammengesetzt. Andere Gesteine, wie z. B. die tertiären Felsmassen von Barbados und von den Nikobaren-Inseln, zeigen sich zum grössten Theile aus den reizenden Kieselpanzern der Radiolarien gebildet. Viele von den Gesteinen, welche solchen Urthierchen ihre Entstehung verdanken, liefern ein vorzügliches Baumaterial; und manche unserer grössten Städte sind vorzugsweise aus dergleichen Steinen erbaut, so z. B. Wien und Paris.
Die berühmten Tiefsee-Forschungen der neuesten Zeit, zu denen die erste Legung des atlantischen Telegraphen-Kabels den Anstoss gab, haben jene felsbildende Macht des kleinsten Lebens in das hellste Licht gestellt. Sie haben uns gezeigt, wie noch heute in den tiefsten Abgründen des Meeres unaufhörlich kreideartiges Gestein aus feinstem Meeresschlamm entsteht, und wie dieser Schlamm fast ausschliesslich aus den Kalkschalen und Kieselpanzern unglaublicher Massen von Urthierchen gebildet wird. Vor Allem sind es hier die unvergleichlichen Entdeckungen der bewunderungswürdigen britischen Challenger-Expedition, welche uns mit einer Fülle neuer und überraschender Anschauungen über die »Mikrogeologie«, über das reiche, räthselvolle, mikroskopische Leben der Tiefsee-Thäler bereichert haben.
Wie nun die eifrigen Forschungen des letzten halben Jahrhunderts unsere Kenntniss vom Leben und Weben der Urthiere, von ihrer Gestaltung und Entwickelung ungemein gefördert haben, so haben sie auch unsere Ansichten von ihrer Stellung in der Natur und von ihrer systematischen Gruppirung sehr wesentlich verändert. Das System der organischen Formen ist ja immer mehr oder weniger der Ausdruck der Anschauungen, welche wir von ihrer natürlichen Verwandtschaft besitzen, und so zeigen uns denn auch die grossen Veränderungen, welche das System der Urthiere im Verlauf der letzten Jahrzehnte erlitten hat, am klarsten den gewaltigen Umschwung unserer bezüglichen Vorstellungen. Nachdem vor neunzig Jahren (1786) Otto Friedrich Müller den ersten umfassenden Entwurf eines Systems der Infusionsthierchen gegeben hatte, erschien vor vierzig Jahren das grosse Prachtwerk des berühmten (1876 verstorbenen) Naturforschers Ehrenberg: »Die Infusionsthierchen als vollkommene Organismen. Ein Blick in das tiefere organische Leben der Natur.« Das war im Jahre 1838, in demselben für die Naturwissenschaft Epoche machenden Jahre, in welchem der geniale Botaniker Schleiden in Jena zuerst den Grund zu der höchst fruchtbaren Zellen-Theorie legte. In der That ein merkwürdiger Zufall; eine seltsame Ironie des Schicksals. Denn Ehrenberg war in seinem grossen Hauptwerke vor Allem bemüht, das ihm eigene »Princip überall gleich vollendeter Entwicklung« zur Geltung zu bringen. Er suchte bei den Infusorien eine eben so vollkommene Organisation nachzuweisen, wie bei den höheren Thieren und beim Menschen. Er glaubte überall Nerven und Muskeln, Darm und Blutgefässe, männliche und weibliche Organe unterscheiden zu können. Gerade dieses Prinzip war grundfalsch; vielmehr sind die Infusorien höchst einfache Organismen: die meisten haben nur die Bedeutung und den Werth einer einzigen einfachen Zelle; und ihr wahres Verständniss wird uns erst durch die Zellentheorie gegeben.
Der alte Name »Infusionsthierchen« wird heute nur noch auf einen kleinen Theil der mikroskopischen Wesen angewendet, welche Ehrenberg in seinem grossen Werke als solche beschrieb. Nur die Wimperthierchen oder Ciliaten und die Borstenthierchen oder Acineten, oft auch die Geisselschwärmer oder Flagellaten werden heute noch in wissenschaftlichen Werken »Infusorien« genannt; die formenreichen Kieselzellen oder Diatomeen werden dagegen meist von den Botanikern zu den Algen gerechnet. Die Räderthierchen (Rotatoria), die für Ehrenberg gerade den Typus der Infusoria bildeten, sind Würmer, also Thiere von viel höherer Organisation. Dagegen bilden die Amoeben und ihre Verwandten heute eine besondere wichtige Protisten-Classe, die wir Lappenthierchen oder Lobosa nennen. Neben diesen aber hat die fortgeschrittene mikroskopische Forschung uns andere Classen von Urthierchen kennen gelehrt, die viel zahlreichere, merkwürdigere und mannigfaltigere Formen enthalten, als jene älteren Infusionsthierchen: vor allen die wunderbare Classe der Wurzelfüssler oder Rhizopoden; die Sonnenthierchen oder Heliozoen, die kalkschaligen Thalamophoren und kieselschaligen Radiolarien. Diesen schliessen sich eng die sonderbaren Schleimpilze oder Myxomyceten an, welche die Botaniker früher zu den echten Pilzen (Fungi) stellten. Aber auch die Stellung dieser letzteren im Pflanzenreiche ist ganz zweifelhaft geworden und es bestehen gewichtige Gründe dafür, sie aus letzterem in das Protistenreich zu versetzen. Als eine besondere, interessante, wenn auch nur sehr kleine Protisten-Classe dürfen wir die Catallacten betrachten. Endlich finden wir unten auf der tiefsten Stufe jener höchst einfachen, wunderbaren Wesen, mit denen das organische Leben in denkbar einfachster Gestalt beginnt, die Moneren.
Schon beim ersten Blick auf die wunderbare Formenwelt, welche uns hier das Mikroskop entschleiert, wird sich jedem Unbefangenen zunächst die Frage aufdrängen: »Sind denn diese sogenannten Urthiere oder Infusionsthiere wirkliche, echte Thiere und warum werden sie von den Naturforschern in das Thierreich gestellt?« Diese Frage ist vollständig berechtigt; sie gehört zu jenen schwierigen Grundfragen der allgemeinen Biologie, deren Lösung durch unsere fortschreitende Kenntniss eher erschwert als erleichert wird. Wenn wir nämlich althergebrachter Maassen die ganze organische Natur in die beiden grossen Hälften: Thierreich und Pflanzenreich eintheilen, und wenn wir damit glauben den natürlichen Gegensatz zwischen zwei völlig getrennten Hauptgebieten auszusprechen, so ist diese Unterscheidung zwar durch die festgewurzelte Anschauung und den Sprachgebrauch von Jahrtausenden geheiligt; aber logisch begründbar und wirklich naturgemäss ist sie nicht. Vielmehr lehren uns gerade unsere Urthierchen das Gegentheil. Je genauer wir deren Formen und Lebenserscheinungen studiert haben, je vollständiger uns ihre ganze Entwicklungsgeschichte bekannt geworden ist, desto klarer hat sich herausgestellt, dass sie eine ununterbrochene Verbindungsbrücke zwischen den tiefsten Stufen des Thierreichs und des Pflanzenreichs herstellen. So leicht und sicher wir die höheren und vollkommneren Stufen der beiden grossen Reiche von einander unterscheiden können, so schwer, ja so unmöglich wird diese Trennung auf den niedrigsten und unvollkommensten Stufen. Denn hier sind beide Reiche durch eine zusammenhängende Kette von einfachen Uebergangsformen untrennbar verbunden.
Die Erkenntniss dieser wichtigen Thatsache, welche heute unzweifelhaft festgestellt ist, hat zu den lebhaftesten Streitigkeiten über die Grenze zwischen Thierreich und Pflanzenreich Veranlassung gegeben. Sie hat zugleich die abweichendsten Anschauungen über das Wesen der zweifelhaften Infusorien hervorgerufen, die mitten zwischen den beiden grossen Reichen der organischen Natur ein neutrales Grenzgebiet für sich in Anspruch nehmen.
Während nämlich viele Infusorien von den Zoologen für Thiere, von den Botanikern dagegen für Pflanzen erklärt, und demnach von Beiden annectirt wurden, hatten Andere gerade das entgegengesetzte Schicksal: sie wurden von Beiden verschmäht; bei einer dritten Gruppe von Infusorien schien sogar nur die Annahme übrig zu bleiben, dass sie abwechselnd als Thiere und Pflanzen lebten. Der daraus entspringende Streit über ihre wahre Natur scheint am einfachsten dadurch entschieden zu werden, dass man den Begriff von Thier und Pflanze scharf umschreibt, und diese unzweideutige Begriffsbestimmung auf jene zweifelhaften Mittelwesen anwendet. Aber diese gesuchte Begriffsbestimmung selbst ist ein unlösbares Problem; je mehr Mühe man darauf verwendet hat, desto klarer hat sich herausgestellt, dass es überhaupt auf einer falschen Fragestellung beruht, und dass die Begriffe von Thier und Pflanze nicht in der Natur begründet sind.
Um nun den so entstandenen Schwierigkeiten zu entgehen, und um zu einer vernünftigen Classification der organischen Wesen zu gelangen, ist schliesslich nur ein Ausweg übrig geblieben: nämlich die Aufstellung eines dritten, selbständigen Reiches von elementaren Organismen: Das ist unser Reich der Protisten oder Zellinge, das Reich der neutralen Urwesen. Wir fassen demnach die ganze organische Natur, die Gesammtheit aller lebenden Wesen unsers Erdballs, als ein grosses einheitliches Ganze auf; und dieses umfassende Universalreich theilen wir in drei Reiche: das Thierreich einerseits, das Pflanzenreich andrerseits, mitten zwischen Beiden das neutrale Reich der Protisten.
Um nun die Aufstellung unseres Protistenreich zu rechtfertigen, wollen wir einen flüchtigen Blick auf die verschiedenen Character-Seiten des Thier- und Pflanzenreichs werfen. Es wird sich dabei von selbst ergeben, dass unsere Protisten weder dem einen, noch dem anderen vollständig entsprechen. Verweilen wir zunächst einen Augenblick bei der äusseren Gesammterscheinung. So characteristisch uns da einerseits das höhere Thier mit der Gliederung seines Leibes und seiner Gliedmaassen, anderseits die höhere Pflanze mit ihrem Stengel und ihren Blättern entgegentritt, so wenig reicht diese äussere Gliederung hin, um die niederen Formen beider Reiche zu unterscheiden. Viele unzweifelhafte Thiere, wie z. B. die Korallen, die Schwämme, ahmen so vollkommen die Gestalt echter Pflanzen nach, dass man sie früher allgemein für solche gehalten hat. Umgekehrt giebt es viele unzweifelhafte Pflanzen, wie z. B. viele Orchideen und andere Schmarotzer, welche die Gestalt echter Thiere nachahmen. Und was sollen wir nun vollends zu den unendlich mannigfaltigen Figuren unserer Protisten sagen? Da treffen wir allein schon in der einen Classe der kieselschaligen Radiolarien alle möglichen Grundformen verkörpert an, die überhaupt in der Natur vorkommen können; und in welcher zierlichen und wundervollen Ausführung! Da finden wir in einem einzigen Tropfen Meerwasser nebeneinander Kugeln, Kreuze, Körbchen, Schrauben, Sterne, Schachfiguren, Hörner, Hauben, Helme, u. s. w.; kurz eine Fülle der mannigfaltigsten und merkwürdigsten Gestalten. Gewiss wird Jedermann, der diese Formen zum ersten Male sieht, sie für Kunstproducte halten, oder vielleicht für abgelöste Theile von grösseren Organismen. Und doch sind es vollkommen entwickelte und selbständige Lebewesen! Aber Niemand wird geneigt sein, sie für echte Thiere oder echte Pflanzen zu erklären. Ebenso wenig können wir aus der äusseren Körperform der meisten anderen Protisten einen sicheren Schluss auf ihre wahre Natur ziehen. Sehr Viele bewahren zeitlebens die einfache Kugelgestalt. Andere zeigen beständig die einfache Form eines Cylinders, einer Scheibe, eines Kegels, einer Pyramide u. s. w. Noch Andere endlich haben überhaupt gar keine bestimmte Gestalt, so namentlich die Moneren und die Amoeben. Der ganze Körper dieser höchst einfachen Urwesen besteht aus einem lebenden mikroskopischen Schleimklümpchen, das in unablässigem Wechsel seine Gestalt beständig ändert: daher der passende Name »Aenderling«, den Oken diesen Amoeben beilegte.
Doch verlassen wir die äussere Körperform! Denn dass diese ganz unzureichend ist, um den Unterschied zwischen Thier und Pflanze zu begründen, das ist längst allgemein anerkannt. Fragen wir uns lieber, was denn eigentlich in der naiven Anschauung des täglichen Lebens diese Unterscheidung begründet, und was dieselbe seit Jahrtausenden in der Sprache und im Begriffsleben der Menschheit gerechtfertigt hat. Unzweifelhaft sind es die Lebenserscheinungen der Empfindung und Bewegung, welche uns hier zunächst entgegentreten. Empfindung und Bewegung sind es, welche in der allgemeinen Anschauung das Thier gegenüber der Pflanze auszeichnen, und aus denen wir auf ein »Seelenleben« des Thieres schliessen, ein Seelenleben, das wir der Pflanze absprechen. Wie verschieden auch die psychologischen Vorstellungen sind, und wie weit auch die Ansichten über das eigentliche Wesen der Seele aus einander gehen, darüber sind wir doch Alle einig, dass mindestens den höheren Thieren eine Art Seelenleben zukommt. Denn die Hausthiere, die wir täglich um uns sehen, bewegen sich zweifellos ebenso willkürlich, wie wir selbst. Sie empfinden die Eindrücke der Lust und Unlust, der Freude und des Schmerzes zweifellos ähnlich, wie wir selbst. Auch lehrt uns ja sofort jede anatomisch-physiologische Untersuchung, dass das Nervensystem, das Organ dieser Seelenthätigkeiten, bei den höheren Wirbelthieren im Wesentlichen eine ähnliche Einrichtung besitzt, wie bei uns selbst.
Von diesen augenfälligen Seelenthätigkeiten der höheren Thiere ausgehend, schliessen nun die Zoologen, dass dieselben auch allen anderen Thieren zukommen, und demgemäss werden seit alter Zeit Empfindung und willkürliche Bewegung als charakteristische Eigenschaften des Thieres betrachtet. Schon Linné sagt: »Die Pflanzen leben, die Thiere leben und empfinden.« Und doch ist gerade diese, allgemein angenommene Unterscheidung völlig unhaltbar. Wir brauchen nur an den gewöhnlichen Badeschwamm zu denken, um uns davon zu überzeugen. Dieser Badeschwamm, mit dem sich der Kulturmensch täglich zu waschen pflegt, ist das todte Skelet, das innere Gerüst eines unzweifelhaften Thieres. Im Leben stellt dieses Thier einen fleischigen, schwarzen, formlosen Klumpen dar, der unbeweglich auf dem Meeresboden festgewachsen ist. Aehnliche Seegewächse aus der Klasse der Schwämme oder Spongien sitzen massenhaft auf dem Boden aller Meere, hunderte von verschiedenen Arten. Die meisten zeigen keine Spur von Bewegung und Empfindung; sie galten daher auch früher allgemein für Pflanzen. Erst die genauesten Untersuchungen über ihre Entwickelungsgeschichte haben uns in den letzten Jahren darüber belehrt, dass wir sie als echte, unzweifelhafte Thiere betrachten müssen.
Aehnliche echte Thiere, welche in vollkommen reifem und ausgebildetem Zustande der Empfindung und Bewegung entbehren, kennen wir jetzt in Menge. Die meisten leben festgewachsen auf dem tiefen Grunde des Meeres. Sie gehören sehr verschiedenen Classen an: Würmern, Ascidien, Mollusken u. s. w. Viele von ihnen werden auf italienischen Fischmärkten unter den Namen »Seefrüchte« (Frutti di mare) feil geboten, und sowohl der Fischer, der sie verkauft, wie der Fremde, der sie mit Appetit verspeist, hält sie für die Früchte von Seegewächsen.
Sogar unter den höheren Thierklassen, z. B. unter den Schnecken und Krebsen, giebt es einzelne Arten, die in vollkommen reifem Zustande einen formlosen runden Klumpen, ohne jede Spur von Bewegung und von Empfindung, darstellen. In diesen Fällen ist es die schmarotzende Lebensweise, durch welche das Thier seine »Seele« verloren hat. Das gilt z. B. von der berühmten Wunderschnecke (Entoconcha mirabilis) und von dem merkwürdigen Säckchenkrebse (Sacculina). Erstere lebt als Parasit im Innern von Seegurken oder Holothurien: letzterer sitzt schmarotzend auf andern Krebsen fest. Beide Thiere haben die Gestalt eines einachen länglichen, runden Schlauches: und dieser Schlauch enthält nichts weiter als Eier. Keine Spur von einem Kopfe und von Sinnesorganen: keine Spur von Fühlhörnern und Beinen: keine Spur von Empfindung und willkürlicher Bewegung. Gewiss würde kein Mensch in diesen beiden seelenlosen Eierschläuchen wahre Thiere vermuthen, und doch stellt die Entwickelungsgeschichte unzweifelhaft fest, dass das eine eine Schnecke und das andere ein Krebs ist.
Als Gegenstück zu diesen »seelenlosen Thieren« treffen wir auf der anderen Seite »seelenvolle Pflanzen«, die uns noch mehr überraschen. Wir betreten einen tropischen Urwald und wollen uns ein zierlich gefiedertes Mimosenblatt abpflücken. Aber kaum berühren wir den zarten Zweig der schamhaften Sinnpflanze (Mimosa pudica), so klappen alle Blätter ihre zierlichen Fieder-Reihen zusammen und die Blattstiele sinken wie gelähmt herab. Ja manche dieser akazienartigen Bäume sind so reizbar, so empfindlich, dass schon die Erschütterung des Bodens durch den Tritt des herannahenden Wanderers hinreicht, sämmtliche Blätter zum Schliessen zu bringen. Nicht minder empfindlich sind neben vielen Anderen die durch Darwin berühmt gewordenen »insektenfressenden Pflanzen«. Sobald eine unvorsichtige Fliege sich auf das Blatt einer »Fliegenfalle« (Dionaea) setzt, klappt das reizbare Blatt zusammen, und die mörderische Pflanze verzehrt das erfasste Insect mit offenbarem Wohlbehagen. Wollten wir diesen hochorganisirten Pflanzen eine Seele absprechen, so müssten wir sie ganz ebenso auch bei den empfindlichen, aber festgewachsenen, pflanzenähnlichen Korallen leugnen; denn diese geben keine anderen Aeusserungen ihres Seelenlebens.
Aber nicht allein solche hohe Empfindlichkeit, solche lebhafte Beweglichkeit einzelner Körpertheile treffen wir vielfach bei echten Pflanzen an. Nein, auch selbständige, freie Ortsbewegung, auch die Willensthätigkeit, auf die wir aus der scheinbar willkürlichen Bewegung schliessen, findet sich bei unzweifelhaften Pflanzen vor. Viele Algen, z. B. viele von unsern einheimischen grünen Wasserfäden oder Conferven, schwimmen in ihrer Jugend frei und lebhaft im Wasser umher. Die jungen Pflänzchen bewegen sich dabei, ebenso wie viele junge Thiere, durch zarte, haarförmige, schwingende Fäden, Geisseln oder Wimpern. Bei dieser Schwimmbewegung äussern sie eben so viel Lebhaftigkeit, eben so viel Ausdauer, eben so viel scheinbaren Willen, wie die ganz ähnlichen, flimmernden Jugendformen vieler Thiere, z. B. die Gastrula. Auf den Wiener Botaniker Unger, der zuerst vor 35 Jahren (im Jahre 1843) diese frei beweglichen Jugendformen von Algen entdeckte, machten dieselben einen so tiefen Eindruck, dass er seine bezügliche Mittheilung betitelte: »Die Pflanze im Momente der Thierwerdung.«
Schon aus diesen wenigen Thatsachen, die wir noch durch Aufzählung vieler ähnlicher Erscheinungen beträchtlich vermehren könnten, geht unzweifelhaft hervor, dass die höheren Seelenthätigkeiten der bewussten Empfindung und der willkürlichen Bewegung weder allen Thieren eigenthümlich sind, noch allen Pflanzen fehlen. Sie können daher nicht mehr in der üblichen Weise zur Unterscheidung von Thier- und Pflanzenreich benutzt werden; und ebenso wenig sind sie von systematischer Bedeutung für unser Protistenreich. Für die Beurtheilung dieses letzteren ist es gleichgültig, ob sich die Protisten sehr lebhaft bewegen und sehr fein empfinden, wie die meisten Wimper-Infusorien; oder ob sie nur stumpfe Empfindung und träge Bewegung besitzen, wie die meisten Wurzelfüssler. Viele Protisten treten uns in zwei abwechselnden und ganz verschiedenen Zuständen entgegen: einem unbeweglichen und unempfindlichen Ruhezustande, in welchem sie uns als Pflanzen erscheinen; und einem frei beweglichen und sehr empfindlichen Zustande, in welchem sie Thieren gleichen. Wir dürfen von diesen merkwürdigen Urwesen geradezu sagen: sie sind abwechselnd Thier und Pflanze. Und so sind sie auch wirklich früher beurtheilt worden. So sind z. B. von manchen Flagellaten und Myxomyceten die vegetativen Ruhezustände als Pflanzen, die animalen Bewegungszustände als Thiere beschrieben worden, und erst viel später wurde entdeckt, dass Beide nur verschiedene Lebens-Zustände eines und desselben Protisten sind.
Wollen wir nun aber vom Standpunkte der vergleichenden Psychologie zu einem Schlusse über das Seelenleben aller dieser Geschöpfe kommen, so kann dieser Schluss nur lauten: »Alle lebenden Wesen sind beseelt, die Pflanzen so gut wie die Thiere, und die Protisten so gut wie die Pflanzen.« Innere Bewegungs-Erscheinungen, die scheinbar ohne äussere Ursachen entstehen und auf Ortsveränderungen kleinster Theile beruhen, insbesondere Protoplasma-Störungen, sind allen Organismen gemeinsam, und insofern ist jedes lebende Wesen beseelt, jedes ist zugleich reizbar, im gewissen Sinne empfindlich. Stufenweise erhebt sich die Seelenthätigkeit, von den unscheinbarsten und niedrigsten Anfängen ausgehend, zu immer höheren und vollkommneren Leistungen. Während die niedrigsten Thiere sich in dieser Beziehung nicht von den meisten Pflanzen und Protisten unterscheiden, steigt das Seelenleben der höheren Thiere, das Wollen und Empfinden, Vorstellen und Denken, zu einer ähnlichen Stufe wie beim Menschen empor.
Gleich der Seelenthätigkeit haben sich auch alle anderen Eigenschaften, durch welche man Thiere und Pflanzen hat unterscheiden wollen, als unzureichende Merkmale erwiesen. Unzweifelhaft der wichtigste Unterschied zwischen Beiden beruht auf den entgegengesetzten physiologisch-chemischen Verhältnissen ihrer Ernährung. Der gesammte Stoffwechsel in beiden Reichen, im Grossen und Ganzen betrachtet, ist grundverschieden. Die Pflanzen allein besitzen das Vermögen, aus den einfachen chemischen Verbindungen der leblosen anorganischen Natur, aus Wasser, Kohlensäure und Ammoniak, jene verwickelten und höchst zusammengesetzten, eiweissartigen Kohlenstoff-Verbindungen herzustellen, welche als die wahren Träger aller eigentlichen Lebens-Erscheinungen gelten, vor allen das Protoplasma oder den Bildungsstoff (»Plasson«). Das können die Thiere nicht. Sie nehmen die Eiweisskörper, die sie beständig verbrauchen und zersetzen, direct oder indirect aus dem Pflanzenreich auf. Zur Aufnahme und Verdauung ihrer Nahrung bedürfen sie einer Magenhöhle und einer Mundöffnung; und das sind die am meisten characteristischen Organe des Thierkörpers, welche dem Pflanzenorganismus stets fehlen.
Mit diesem fundamentalen Gegensatze in der Ernährung hängen auch noch andere wichtige Unterschiede beider Reiche zusammen. Die Pflanzen athmen für gewöhnlich Kohlensäure ein und hauchen Sauerstoff aus; die Thiere gerade umgekehrt. Die meisten Pflanzen bilden massenhaft jenen eigenthümlichen grünen Farbstoff, das Chlorophyll oder Blattgrün, dem unsere Erde den grünen Schmuck ihrer Vegetationsdecke verdankt. Die meisten Thiere hingegen bilden kein Chlorophyll. Ebenso erzeugen die meisten Pflanzen Massen von Stärkemehl (Amylum) und von Cellulose; von jener wichtigen stickstofflosen Verbindung, welche die Grundlage des Holzes bildet. Die meisten Thiere produciren kein Amylum und keine Cellulose. Und so könnten wir noch eine ganze Anzahl anderer chemischer Verbindungen anführen, welche den Gegensatz im Stoffwechsel des Thier- und Pflanzenreichs bezeichnen.
Unzweifelhaft ist dieser Gegensatz von der grössten Bedeutung. Denn auf ihm beruht das beständige Gleichgewicht in der Oekonomie der organischen Natur. Was das eine der beiden grossen Lebensreiche ausgiebt, das nimmt das andere wieder ein. Was das eine als unbrauchbar ausscheidet, das verzehrt das andere. Aber so bedeutungsvoll auch diese Wechselwirkung jedenfalls ist, so wenig ist der damit verknüpfte Gegensatz durchgreifend und zu einer beständigen Grenzmarke geeignet. Denn zahlreiche Ausnahmen finden sich in jeglicher Beziehung.
Als solche wichtige Ausnahmen sind vor allen die zahlreichen Schmarotzerpflanzen zu nennen: z. B. viele Orchideen, Orobanchen, Lathraeen u. s. w. Diese Parasiten, deren nahe Verwandtschaft zu echten hochentwickelten Pflanzen feststeht, haben durch Anpassung an schmarotzende Lebensweise ihren Stoffwechsel gänzlich geändert. Statt gleich anderen Pflanzen mühsam Eiweisskörper zu produciren, finden sie es bequemer, gleich den Thieren diese wichtigsten Lebenstoffe aus anderen Pflanzen aufzunehmen. Damit ändert sich aber ihre gesammte Ernährung. Sie bilden kein Blattgrün mehr, sie athmen Sauerstoff ein und Kohlensäure aus; sie bilden Verbindungen, die sonst nur im Thierkörper erzeugt werden.
Umgekehrt finden wir nun wieder im Thierreiche merkwürdige Schmarotzer, welche gleichfalls durch Anpassung an parasitische Lebensweise ihre ganze Ernährung völlig geändert haben. Ausser den schon angeführten Wunderschnecken und Säckchenkrebsen sind da besonders jene Würmer (Bandwürmer, Kratzwürmer u. s. w.) hervorzuheben, welche im Innern anderer Thiere leben und deren Säfte durch ihre Haut aufsaugen. Mund und Magen sind dadurch überflüssig geworden und im Laufe der Jahrtausende allmählich verloren gegangen. Die nächsten Verwandten dieser darmlosen Parasiten besitzen einen wohl entwickelten Mund und Darmkanal. Aber auch andere echte Thiere bieten in ihrem Stoffwechsel beträchtliche Abweichungen dar, und einige produciren Verbindungen, die sonst nur die Pflanzen erzeugen. So bilden sich z. B. die Ascidien einen Mantel aus Cellulose; die grünen Süsswasserpolypen und einige grüne Würmer erzeugen in ihrer Haut echtes Blattgrün oder Chlorophyll u. s. w.
Angesichts dieser zahlreichen Ausnahmen kann uns denn auch der Stoffwechsel unserer Protisten keinen Aufschluss über ihre wahre Natur geben. Wenn viele von ihnen Chlorophyll, Cellulose und Stärkemehl erzeugen, so beweist das ebensowenig für ihre Pflanzen-Natur, als die Bildung von Kalkschalen bei vielen Anderen für ihre Thier-Natur Zeugniss ablegt. Vielmehr sprechen auch die Verhältnisse der Ernährung und des Stoffwechsels, im Grossen und Ganzen betrachtet, für die neutrale Natur der Protisten. Allerdings wissen wir von den physiologisch-chemischen Vorgängen ihres Stoffwechsels im Ganzen noch sehr wenig. Aber dies Wenige reicht doch hin, um uns auch hierin ganz eigenthümliche Verhältnisse erkennen zu lassen. So nehmen z. B. die formlosen Amoeben und die formenreichen Wurzelfüssler zwar ihre Nahrung ähnlich den Thieren auf, aber ohne Mund und Magen. An jeder Stelle der nackten Körperoberfläche können die Nahrungsbissen in’s Innere dringen. Auch die thierähnlichsten Protisten, die Wimperthierchen, besitzen keinen wahren Darm, keinen wahren Mund und Magen. Dieser fehlt vielmehr allen Protisten.
Wir sehen also, dass keine der verschiedenen Lebenserscheinungen genügt, um uns über das Verhältniss der Protisten zu den Thieren und Pflanzen vollkommen aufzuklären. Da nun auch die äussere Gestaltung uns darüber keinerlei Aufschluss giebt, so bleiben uns nur noch diejenigen Verhältnisse übrig, welche uns das Mikroskop im feineren Bau und in der Entwicklungsgeschichte enthüllt. Ohne die genaueste Kenntniss dieser Verhältnisse können wir uns ja überhaupt kein vollständiges Bild von der Natur der Organismen machen. Alles nun, was wir bisher davon erkannt haben, findet seinen umfassendsten Ausdruck in der berühmten Zellentheorie, die seit 40 Jahren das wichtigste Fundament aller biologischen Forschungen geworden ist.
Bekanntlich lehrt uns diese Zellentheorie, dass alle die tausendfach verschiedenen Formbestandtheile, die wir im Körper sämmtlicher Thiere und Pflanzen mittelst des Mikroskopes unterscheiden, lediglich verschiedene Abarten und Umbildungen eines einzigen Grundorganes, eines einzigen ursprünglichen Form-Elementes sind. Dieses Form-Element ist die Zelle, ein kleines, für das blosse Auge meist unsichtbares Körperchen, welches bis zu einem gewissen Grade ein selbständiges Leben führt. So unendlich mannigfaltig die Form der Zelle auch ist, so ist sie doch immer aus zwei verschiedenen Bestandtheilen zusammengesetzt: aus einem Stückchen weicher, eiweissartiger Substanz, dem Bildungsstoff oder Protoplasma, und aus einem festeren, davon umschlossenen Körperchen, dem Kern oder Nucleus. Die ursprüngliche Selbständigkeit der Zelle ist so vollkommen, dass man sie mit Recht als den Elementar-Organismus, als das Individuum erster Ordnung bezeichnet hat. Da die Zellen jede organische Form bilden, können wir sie auch die »Bildnerinnen« oder Plastiden nennen. Der ganze Körper der meisten Thiere und Pflanzen ist aus Milliarden solcher Zellen zusammengesetzt: und was dieses Thier, was diese Pflanze leistet, das ist in Wahrheit die Leistung ihrer zahllosen Zellen. Auch unser eigener menschlicher Leib besteht aus Milliarden derartiger Zellen, und alle unsere Lebensverrichtungen sind das höchst verwickelte Resultat aus der Thätigkeit dieser mikroskopischen Wesen. Jedes Härchen besteht aus vielen Millionen Zellen. Ein kleinstes Blutströpfchen von einem Cubik-Millimeter Rauminhalt umschliesst schon fünf Millionen Blutzellen.
Für die richtige Auffassung der Zellentheorie, von der das ganze Verständniss des Lebens abhängt, ist Nichts lehrreicher, als der oft angewendete Vergleich des vielzelligen Organismus mit einem wohlorganisirten menschlichen Staate. Die Existenz jeder geordneten staatlichen Organisation, gleichviel ob wir Monarchie oder Republik betrachten, beruht bekanntlich darauf, dass die einzelnen Staatsbürger einen Theil ihrer persönlichen Freiheit aufgeben, sich den Gesetzen des Staats unterwerfen und in die Arbeit des Lebens theilen. Ebenso geniessen auch die Zellen in jedem vielzelligen Organismus zwar bis zu einem gewissen Grade ihr selbständiges Leben; aber sie sind doch zugleich den Gesetzen des Ganzen untergeordnet und durch die Arbeitstheilung von einander abhängig. Wir können diesen politischen Vergleich auch noch weiter ausdehnen, indem wir den Pflanzen-Organismus als eine Zellen-Republik, den Thier-Organismus dagegen als eine Zellen-Monarchie betrachten. Denn die Pflanzenzellen sind durchweg selbständiger, gleichartiger, unabhängiger von einander und vom Ganzen. Die Thierzellen hingegen sind in Folge der vorgeschrittenen Arbeitstheilung ungleichartiger, mehr von einander abhängig und zugleich in Folge der stärkeren Centralisation der »Staatsidee« in höherem Maasse unterworfen.
Nun lehrt uns aber ferner die Entwickelungsgeschichte, dass jedes Thier und jede Pflanze im Beginne der individuellen Existenz eine einzige einfache Zelle ist. Das Ei, aus dem sich jedes Thier wie jede Pflanze entwickelt, ist weiter nichts als eine Zelle. Das ist eine der bedeutungsvollsten Thatsachen. Denn das ganze Problem der individuellen Entwickelung löst sich demnach in die Frage auf: Wie kann der vielzellige Organismus mit allen seinen verschiedenen Organen aus einer einzigen Zelle entstehen? Und die Antwort hierauf lautet höchst einfach: Durch wiederholte Theilung entsteht aus der einfachen Zelle eine Zell-Gemeinde oder Association, eine Gesellschaft von zahlreichen gleichartigen Zellen; diese werden durch Arbeitstheilung ungleichartig und ordnen sich nach den Gesetzen der Vererbung und Anpassung zu einer centralisirten Einheit.
Wie verhalten sich nun unsere kleinen Protisten zu diesen höchst wichtigen Thatsachen und zu der darauf gegründeten Zellentheorie? Ist auch ihr winziger Leib aus vielen und ungleichartig entwickelten Zellen zusammengesetzt? Findet sich auch in ihrem Organismus jene Arbeitstheilung der associirten Zellen, durch welche die verschiedenen Gewebe und Organe entstehen? Das Mikroskop antwortet uns: Nein! Vielmehr ist bei den meisten Protisten der ganze Körper zeitlebens nur eine einzige Zelle. Aber auch bei jenen Protisten, welche in entwickeltem Zustande vielzellig sind, finden wir niemals wahre Gewebe und Organe, niemals jene eigenthümliche Arbeitstheilung und Anordnung der Zellen, welche den wahren Thierkörper und den wahren Pflanzenkörper auszeichnet. Denn hier beherrscht immer die Gesammtform des Körpers die ganze Anordnung und Bildung der Zellen, ihre Verbindung zu den Geweben und Organen, aus denen er zusammengesetzt ist. Bei den vielzelligen Protisten hingegen bewahren die gesellig verbunden Zellen stets mehr oder weniger ihre Selbständigkeit; sie bilden immer nur sehr lockere Gesellschaften, sociale Verbände ohne Arbeitstheilung, die nicht als centralisirte Staaten anerkannt werden können. Wenn wir vorher den einzelnen Organismus des Thieres wie der Pflanze einem wohlorganisirten Culturstaate verglichen, so können wir dagegen die lockeren Zellenhaufen der vielzelligen Protisten höchstens mit den rohen Horden der uncultivirten Naturvölker vergleichen. Die meisten Protisten bringen es aber, wie gesagt, nicht einmal zur Bildung solcher Zellen-Horden, zu dieser niedersten Stufe der Association; sie ziehen es vor, als Einsiedler für sich zu leben und ihre volle Selbständigkeit in jeder Beziehung zu bewahren. Die meisten Protisten bleiben zeitlebens einfache, isolirte Zellen, sie leben als Zellen-Einsiedler.
Wenn man die hohe Bedeutung der Protisten für die monistische Entwicklungslehre richtig verstehen will, wenn man sich von der selbständigen Stellung des Protistenreichs zwischen dem Thierreiche einerseits und dem Pflanzenreiche anderseits überzeugen will, so muss man vor Allem den autonomen, unabhängigen Zellen-Charakter ihres Organismus gehörig würdigen. Bei allen einzelligen Protisten, die ihr ganzes Leben als »Zellen-Einsiedler« zubringen, versteht sich das von selbst. Aber auch bei den vielzelligen Protisten, bei den »Zellenhorden« finden wir immer die Individualität der locker verbundenen Zellen gewahrt und vermissen jene Abhängigkeit derselben von einander und vom Ganzen, welche wir in dem wohlorganisirten Zellenstaate des Thier- und Pflanzenorganismus antreffen.
In dieser Auffassung des Protisten-Organismus liegt nach unserer Ansicht der Schwerpunkt seines Verständnisses. Es wird daher zunächst erforderlich sein, den Begriff der organischen Zelle überhaupt festzustellen. Dieser Begriff hat seit der Begründung der Zellentheorie mancherlei Wandlungen erfahren. Gegenwärtig nimmt man fast allgemein an, dass zum Begriff der Zelle zwei verschiedene Bestandtheile gehören. Erstens: der eigentliche Zellenleib, ein lebendiges Stückchen von weichem, eiweissartigen Bildungsstoff oder Protoplasma; und zweitens ein davon umschlossener Zellkern oder Nucleus; ein kleinerer, meist festerer Körper, der ebenfalls aus einer eiweissartigen, aber vom Protoplasma etwas verschiedenen Materie besteht. Als dritter Hauptbestandtheil kommt dazu bei vielen Zellen noch eine äussere Umhüllungshaut oder Schale, die Zellhaut oder Membran. Die meisten Pflanzenzellen sind von einer solchen Kapsel oder Membran umschlossen: Schlauchzellen. Hingegen sind die meisten Thierzellen hautlos und nackt: Urzellen. Die meisten Protisten zeichnen sich durch die Bildung ganz eigenthümlicher Kapseln oder Schalen aus, welche ihrem Zellenleibe eine sehr characteristische und mannigfaltige Gestalt geben.
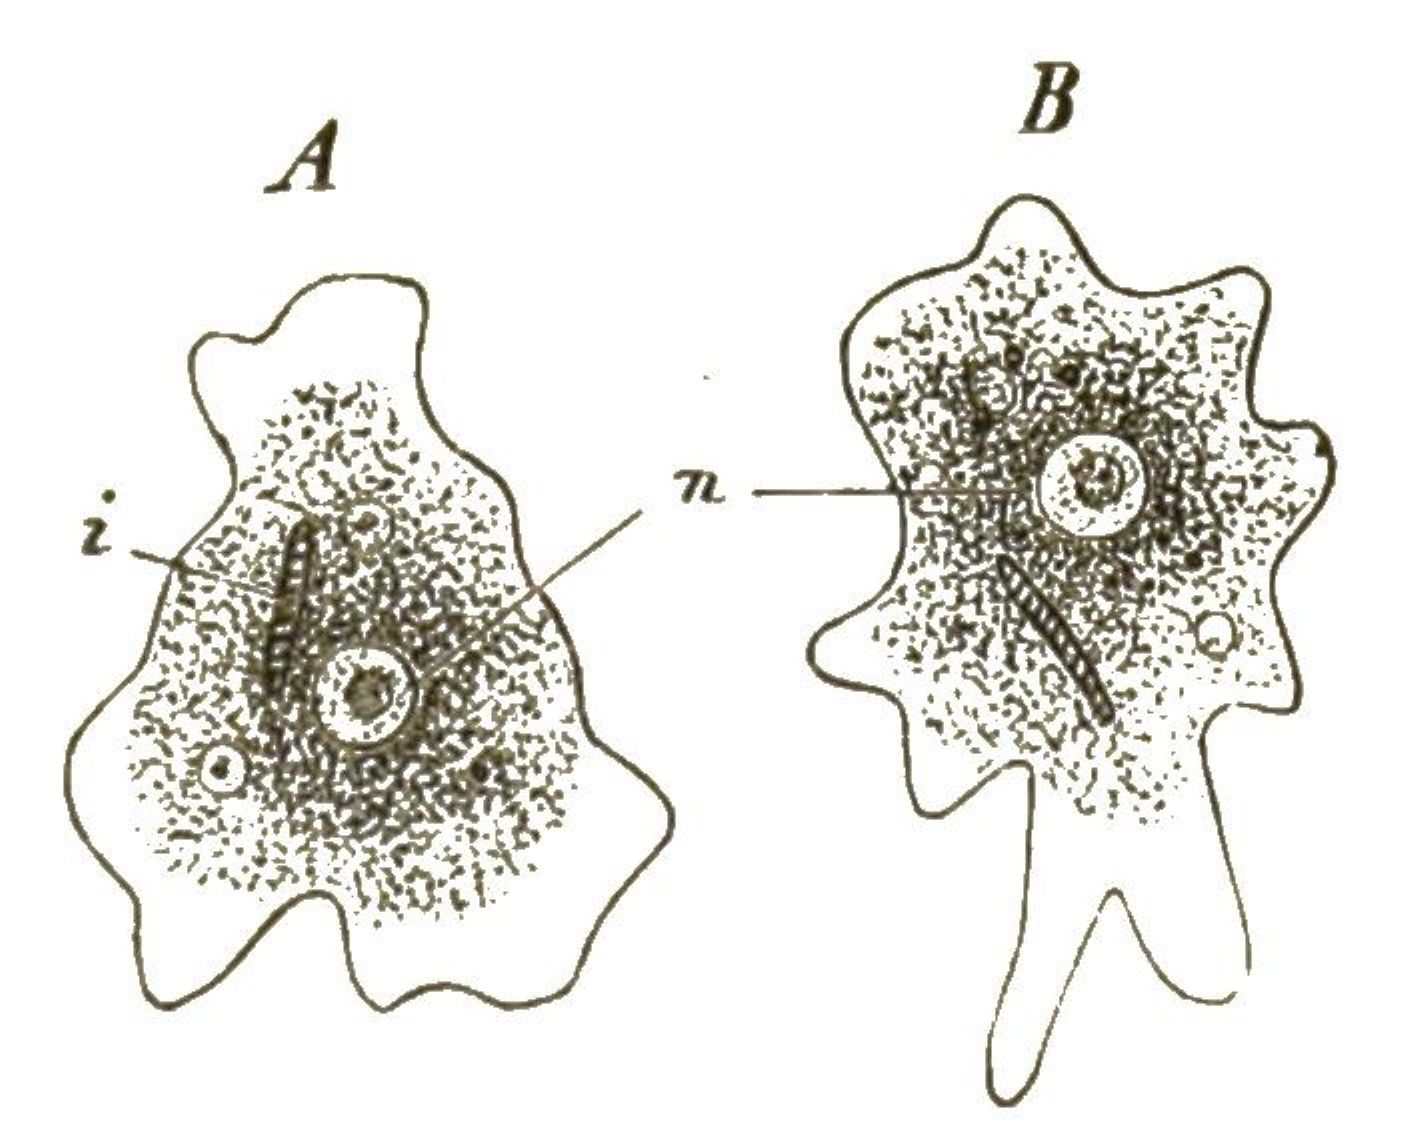
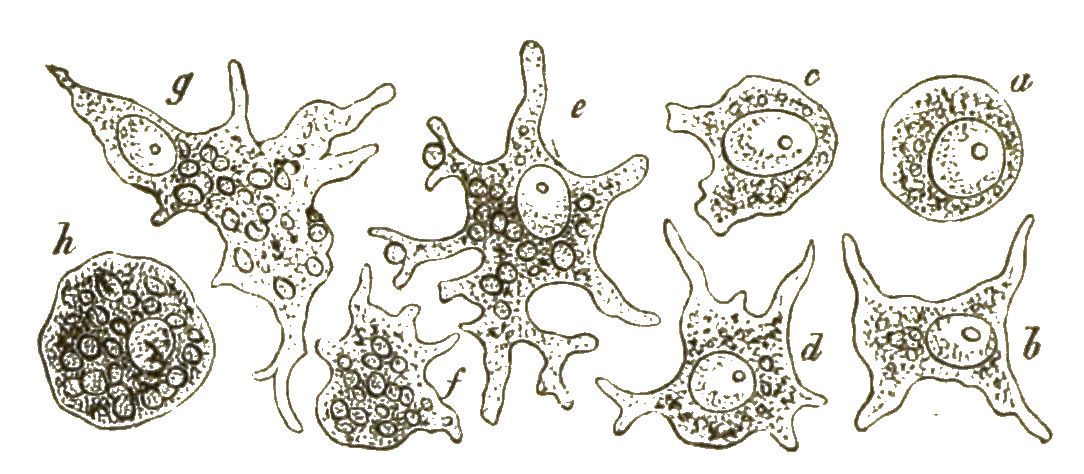
Wenn wir nun zunächst unter unsern Protisten diejenige Gattung aufsuchen, welche uns auf der Höhe ihrer Entwickelung die einfachste Form eines solchen einzelligen Organismus, gewissermassen das Ideal der Zelle, darstellt, so treten uns vor allen Andern die berühmten Amoeben entgegen. (Fig. 1). Weit verbreitet in unsern süssen und salzigen Gewässern, sind dieselben wegen ihrer höchst einfachen Bildung und ihrer bedeutsamen Beziehungen zu anderen Zellen von ganz besonderer Wichtigkeit. Die Amoeben sind nackte Zellen ohne Hülle und ohne bestimmte Form. Ihr weicher Körper, der nur einen einfachen Zellkern enthält, bewegt sich langsam kriechend im Wasser umher. Dies geschieht dadurch, dass eine wechselnde Anzahl von veränderlichen, lappenförmigen oder fingerförmigen Fortsätzen aus beliebigen Stellen der Oberfläche vorgestreckt und wieder eingezogen werden. So ändern die kriechenden Amoeben immerfort ihre unbestimmte Gestalt. Kommen sie zufällig mit kleinen Körperchen in Berührung, die zur Nahrung dienen können, so drücken sie dieselben mittelst der Bewegungen ihrer Fortsätze an einer beliebigen Stelle ihrer Körper-Oberfläche in diesen hinein. Auch kleinste Wassertröpfchen werden so verschluckt. Die einzellige Amoebe kann also essen und trinken, ohne dass sie Mund und Magen besässe. Nachdem die Amoebe durch fortdauerndes Wachsthum eine gewisse Grösse erreicht hat, zerfällt ihr einfacher Zellenleib durch Theilung in zwei Zellen. Zuerst theilt sich dabei der Kern, darauf das Protoplasma. Auf dieselbe Weise vermehren sich auch die Zellen, die unsern eigenen Körper zusammensetzen, und von denen viele beständig verbraucht und durch neue Zellen ersetzt werden. Die grösste Aehnlichkeit mit den Amoeben haben die farblosen Blutzellen, die milliardenweise in unserem Blute kreisen. Auch diese bewegen sich nach Amoeben-Art, indem sie ihre unbestimmte Form ändern. Auch diese können fremde Körperchen in ihr Inneres aufnehmen; wir können sie unter dem Mikroskop z. B. mit Carminkörnchen füttern, mit denen sie sich in kurzer Zeit anfüllen. (Fig. 2).
Fig. 1. Eine gewöhnliche Amoebe (Amoeba vulgaris) in zwei aufeinander folgenden Zuständen der Bewegung dargestellt; in A sind mehrere kurze, in B mehrere längere Fortsätze oder Lappenfüsschen vorgestreckt. Im Protoplasma der nackten Zelle liegt der Kern (n) und ausserdem einige fremde, als Nahrung aufgenommene Körperchen (i). Fig. 2. Fressende, Amoeben ähnliche, farblose Blutzellen aus dem Blute einer nackten Seeschnecke (Thetis leporina). Die Blutzellen führen in der Blutflüssigkeit lebhafte Bewegungen, gleich echten Amoeben aus; und gleich Letzteren verzehren sie feste Farbstoffkörnchen.
Von besonderer Wichtigkeit für die Entwickelungsgeschichte ist die interessante Thatsache, dass auch die Eier der Thiere in ihrer frühesten Jugend nackte, formlose Zellen sind, welche Amoeben zum Verwechseln ähnlich sehen und gleich diesen langsame, unbestimmte Bewegungen ausführen, wobei sie ihre Form beliebig verändern (Fig. 3). Bei den Schwämmen oder Spongien unternehmen diese amoebenähnlichen Eizellen, langsam fortkriechend, oft weite Wanderungen durch den Körper des Schwammes und sind daher früher als »parasitische Amoeben« beschrieben worden, welche als fremde Eindringlinge im Schwammkörper schmarotzend leben sollten (Fig. 4).
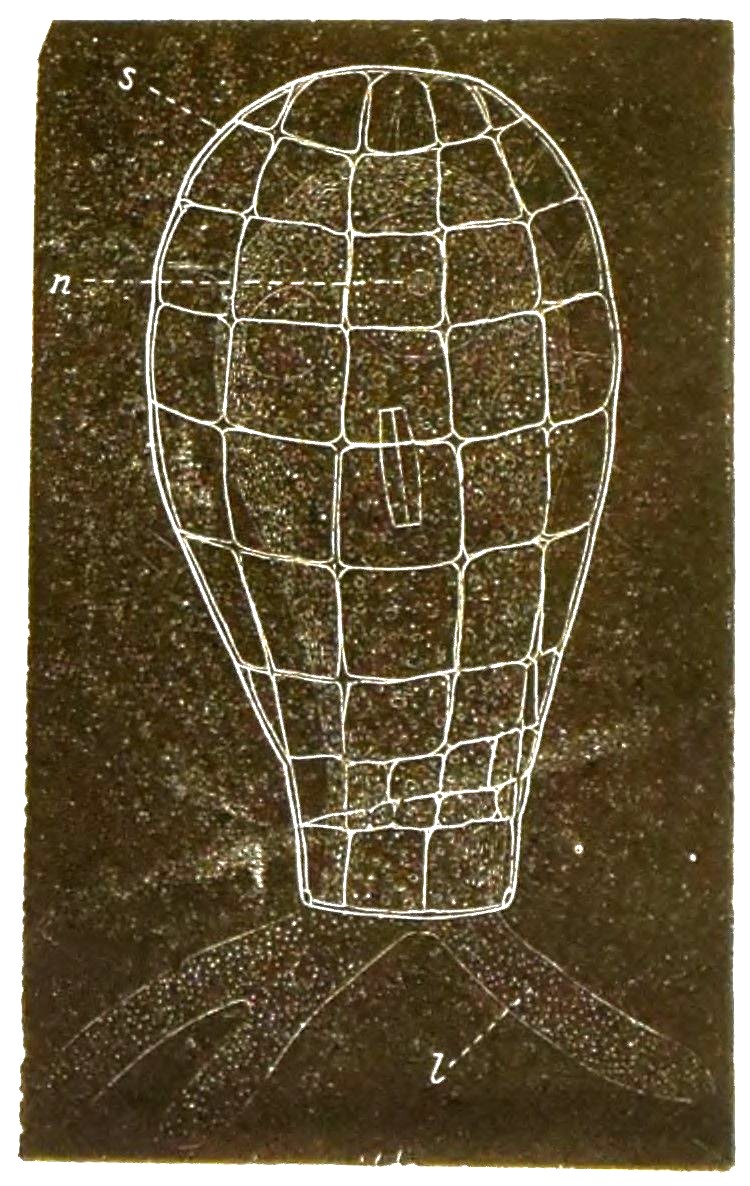
Es giebt auch Amoeben, welche ihren nackten Zellenleib theilweise mit einer schützenden Schale umgeben, und diese bilden die Gruppe der Arcellinen oder Thekolobosen. Bald schwitzen diese gepanzerten Amoeben eine schleimige Masse aus, welche sofort erhärtet und mit Sandkörnchen und anderen fremden Körperchen zu einer festen Kruste zusammenbackt (Difflugia, Fig. 5). Bald wird die ganze Masse der erhärteten Hülle blos von ausgeschwitzter organischer Substanz gebildet, und diese zeigt oft eine sehr zierliche Structur, indem sie aus sechseckigen oder viereckigen Täfelchen zusammengesetzt erscheint (Arcella, Quadrula, Fig. 6).
Fig. 3. Jugendliche Eizellen verschiedener Thiere, amoebenähnliche nackte Zellen, welche unter langsamer Formveränderung, gleich echten Amoeben, Bewegungen ausführen. In dem dunkeln feinkörnigen Protoplasma liegt ein heller, bläschenförmiger Kern, und in diesem ein dunkles Kernkörperchen. — A 1–4. Eizelle eines Kalkschwammes (Leucon) in vier verschiedenen, auf einander folgenden Bewegungs-Zuständen. — B 1–8. Eizelle eines Schmarotzerkrebses (Chondracanthus) in acht verschiedenen, auf einander folgenden Bewegungs-Zuständen. — C 1–5. Eizellen der Katze, in verschiedenen Bewegungs-Zuständen. — D. Junge Eizelle der Forelle. — E. Junge Eizelle des Huhnes. — F. Junge Eizelle des Menschen. Alle diese amoebenähnlichen Eizellen befinden sich noch in der ersten Jugend: später nehmen sie sehr verschiedene Beschaffenheit an.
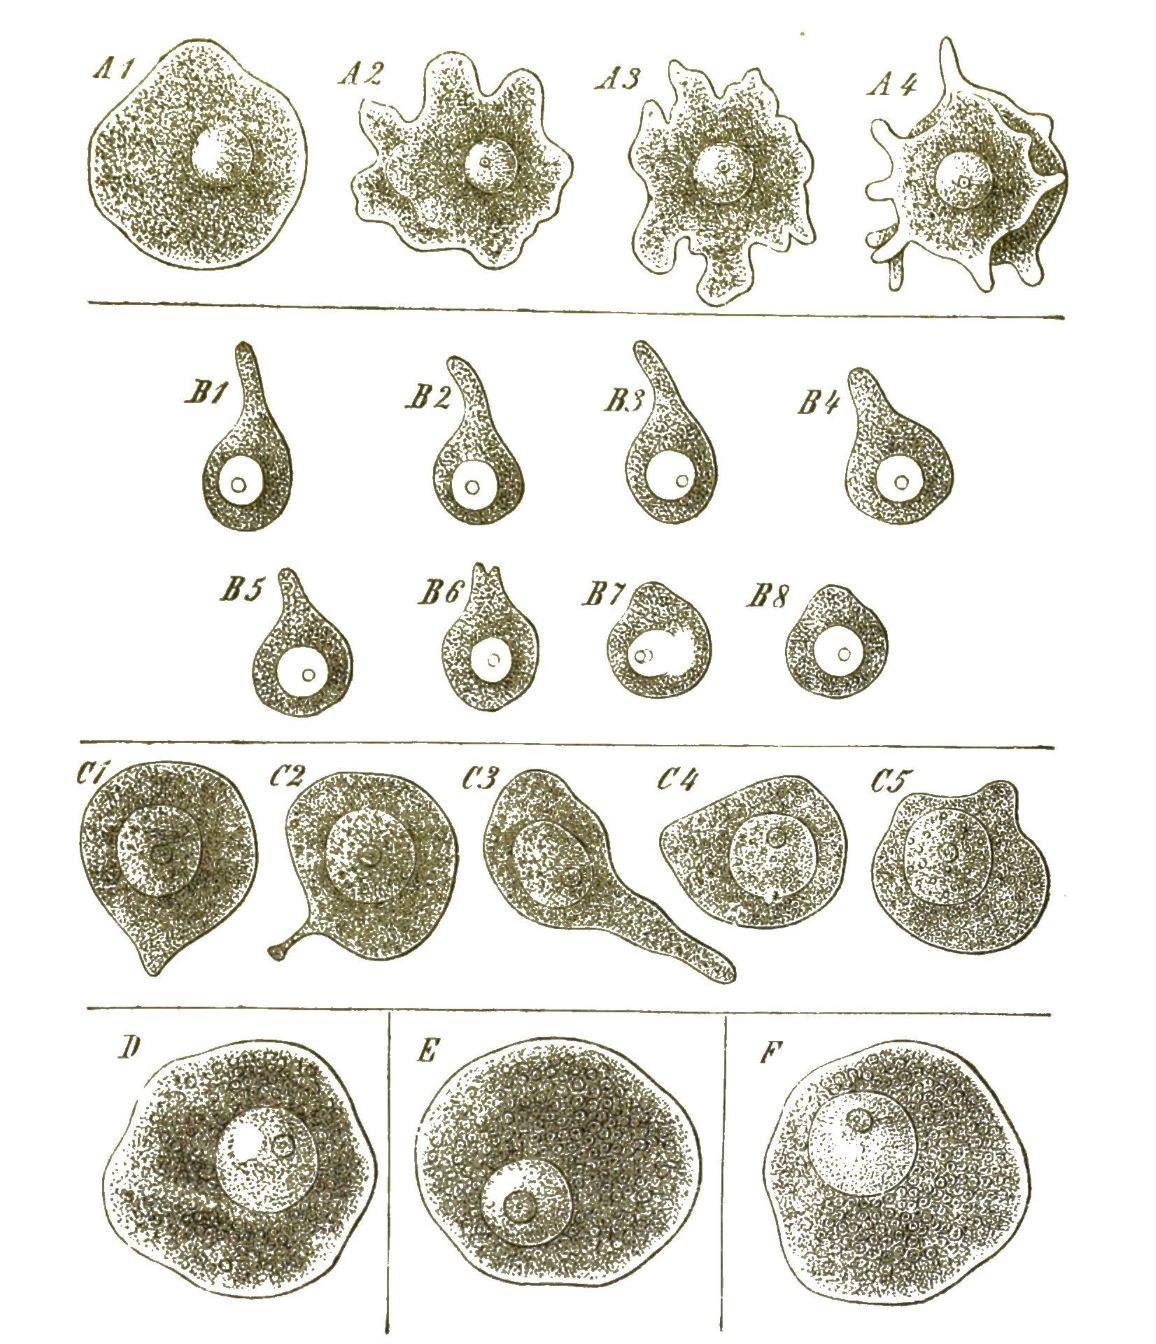
Fig. 4. Amoebenähnliche Eizelle eines Kalkschwammes (Olynthus),weite Strecken im Körper des Letzteren fortkriechend. Fig. 5. Difflugia (oblonga), eine gepanzerte Amoebe, welche ihre länglich-eiförmige Schale (a) aus feinsten Sandkörnchen zusammenklebt. Aus der einfachen Mündung des Gehäuses (oder der incrustirten Zellmembran) tritt der vordere Theil des weichen Zellenleibes (b) mit seinen wechselnden Lappenfüsschen vor (c). Im hinteren Theile ist ein heller kugeliger Kern mit zahlreichen Kernkörperchen sichtbar (d).
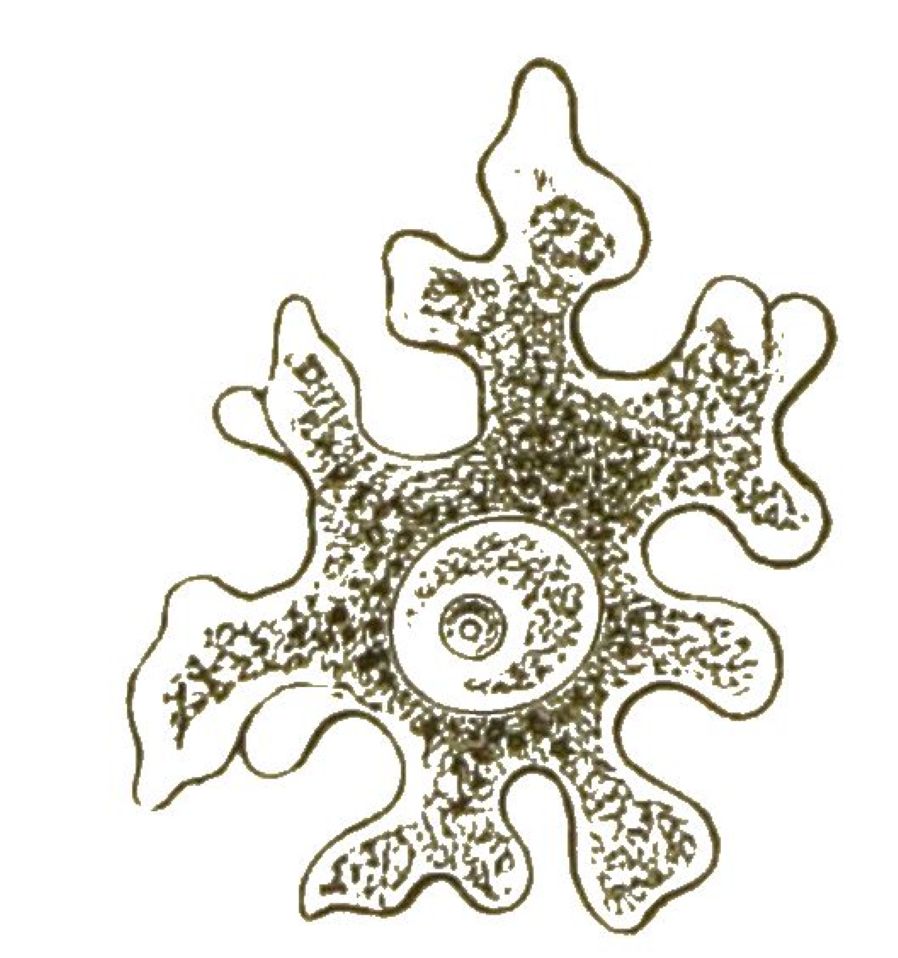
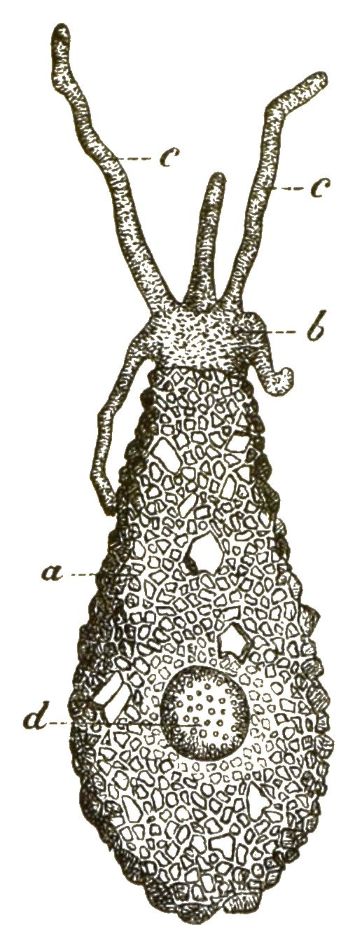
Fig. 6. Quadrula (symmetrica). Eine gepanzerte Amoebe, deren Schale aus quadratischen Plättchen zierlich zusammengesetzt ist. Oben liegt ein kugeliger Zellkern (n) im Protoplasma, unten treten mehrere Lappenfüsschen vor (l). Fig. 7. Monocystis (agilis), eine schmarotzende Gregarine aus der Leibeshöhle des Regenwurmes. Der langgestreckte, wurmförmig sich bewegende Körper ist eine einfache Zelle mit fester Haut (a), Protoplasma (b)und Kern (c).
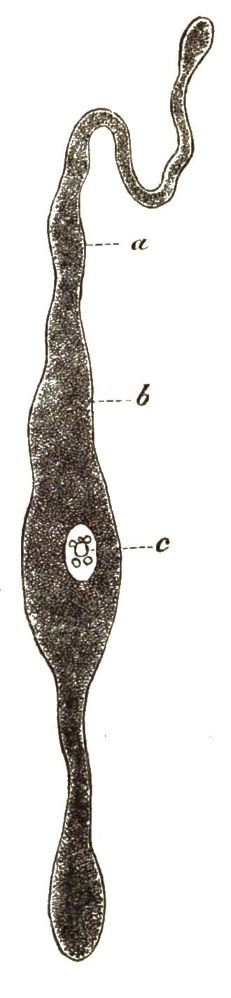
Alle diese amoebenartigen Wesen, die echten, nackten Amoeben und die gepanzerten zierlichen Arcellinen, können wir als besondere Classe unter dem Namen Lappinge oder Lappenfüssler (Lobosa) zusammenfassen, weil der auszeichnende Character dieser einzelligen Urthiere die Bildung lappenförmiger Wechselfüsschen ist. An sie schliessen sich aber ganz eng die sonderbaren Wesen an, welche die besondere Gruppe der Gregarinen bilden. Alle Gregarinen leben als Schmarotzer oder Parasiten im Innern anderer Thiere und sind gewissen niederen Würmern so ähnlich, dass man sie früher selbst als Eingeweide-Würmer beschrieben hat; auch stimmen die wurmförmigen Bewegungen ihres kriechenden Körpers ganz mit denjenigen gewisser Würmer überein. Trotzdem ist ihr ganzer, ziemlich grosser, oft mehrere Millimeter langer Körper nichts Anderes, als eine einfache Zelle. Der trübe, mit feinen Körnchen erfüllte Protoplasma-Leib (b) umschliesst einen Zellkern (c) und ist von einer festen, homogenen, structurlosen Hülle umgeben (a). Die flüssige Nahrung schwitzt aus den umgebenden Säften des bewohnten Thieres durch diese Hülle oder Zellmembran hindurch und dringt so in die Gregarine ein. Man kann die Gregarinen als Amoeben betrachten, welche in das Innere von anderen Thieren eingedrungen sind, sich hier an parasitische Lebensweise gewöhnt und durch Anpassung mit einer schützenden Hülle umgeben haben.
Eine ganz andere Bewegungsform, als die langsam kriechenden Amoeben und Gregarinen, zeigen uns die schwimmenden Flagellaten, die Geissler oder Geisselschwärmer. Diese interessanten Protisten haben bis auf den heutigen Tag unter einem ganz eigenthümlichen Schicksal zu leiden. Wenn sie nämlich das Glück haben, grün gefärbt zu sein, werden sie von vielen Naturforschern unbedenklich als echte Pflanzen betrachtet. Wenn sie dagegen unglücklicherweise eine gelbe oder braune Farbe tragen, so werden sie für echte Thiere erklärt; gewiss ein schlagendes Beispiel von der Willkür der üblichen Classification. Zahlreiche Formen dieser Geissler, die auch oft mit dem vieldeutigen Namen der Monaden belegt werden, bevölkern das Süsswasser, wie das Meer, oft in unglaublichen Massen. Wenn im Frühjahr zuweilen plötzlich unsere Teiche sich mit einer grünen Schleimdecke überziehen, so beruht das gewöhnlich auf der Entstehung zahlloser grüner Euglenen. Ebenso ist die seltener auftretende blutrothe Färbung der Gewässer, die zur Sage vom Blutregen, sowie zu vielen abergläubischen Vorstellungen und Hexen-Processen Veranlassung gegeben hat, durch Milliarden rother Euglenen bedingt. Durch verwandte rothe Protococcus-Formen wird auch der rothe Schnee gebildet, der die Eisberge sowohl in den Polarmeeren, wie auf unseren Alpenhöhen bisweilen in weiter Ausdehnung blutroth färbt.
Fig. 8. Phacus (longicauda). Ein Geisselschwärmer mit einer langen schwingenden Geissel am vorderen, einem fadenförmigen Anhang am hinteren Ende; hinter ersterem ein rother Augenfleck. Fig. 9. Peridinium (tripus). Ein Wimpergeissler, dessen dreihörnige Kieselschale aus zwei Hälften zusammengesetzt ist.
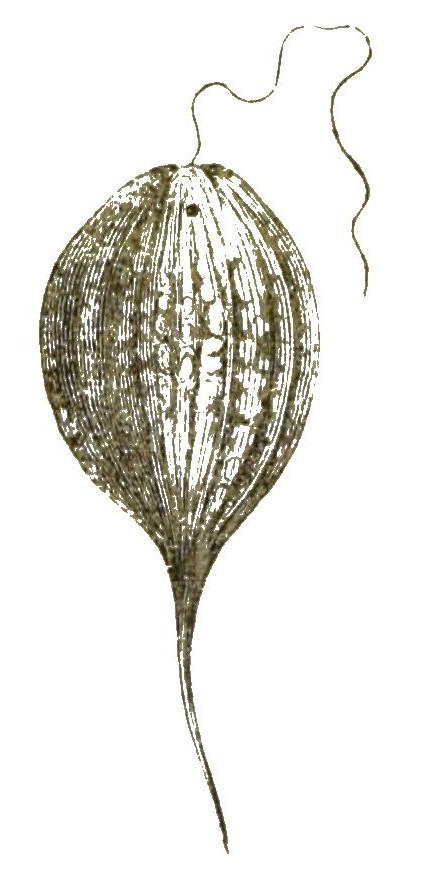
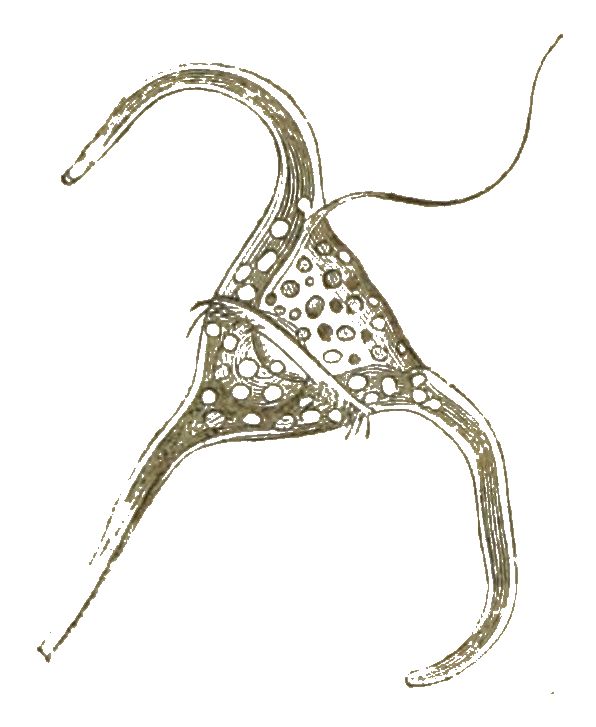
Diese Protococcen und Euglenen sind Einsiedler-Zellen, während andere Flagellaten sich zu kleinen Gesellschaften zusammenthun. Sie schwimmen im Wasser umher mittelst eines feinen fadenförmigen Fortsatzes, der wie eine Geissel oder Peitsche hin und her geschwungen wird (Fig. 8). Manche setzen sich auch fest auf dünnen Stielen. Ausser der Geissel, ihrem Haupt-Bewegungsorgan, besitzen manche Geisselschwärmer noch einen Kranz von feinen Wimpern mitten um den Zellenleib; diese heissen Wimpergeissler (Peridinia, Fig. 9). Von letzteren bilden sich viele eine Kieselschale, die aus zwei ungleichen Hälften besteht; die grössere Hälfte trägt zwei lange Hörner, die kleinere ein Horn; zwischen beiden Hälften tritt der Wimperkranz und die Geissel hervor. Durch die Schwingungen der Geissel werden kleine Nahrungskörnchen dem Zellenleibe der Flagellaten zugeführt und an deren Basis durch eine Art Zellenmund aufgenommen. Ihre Vermehrung geschieht meistens durch einfache Theilung. Bei vielen finden wir abwechselnd einen frei beweglichen und einen Ruhezustand. Während des letzteren kapseln sie sich ein und zerfallen innerhalb der Hülle in vier oder acht Zellen. Diese treten später aus der Kapsel aus und schwimmen frei umher.
Fig. 10. Ein Kugelthierchen (Volvox globator). Die netzförmige Zeichnung an der Oberfläche der Gallertkugel entsteht dadurch, dass die kleinen grünen, in den Knotenpunkten des Netzes befindlichen Geisselzellen sich durch feine Fortsätze unter einander verbinden. Im Innern der Kugel sind 6 Tochterkugeln (junge Colonien) sichtbar.
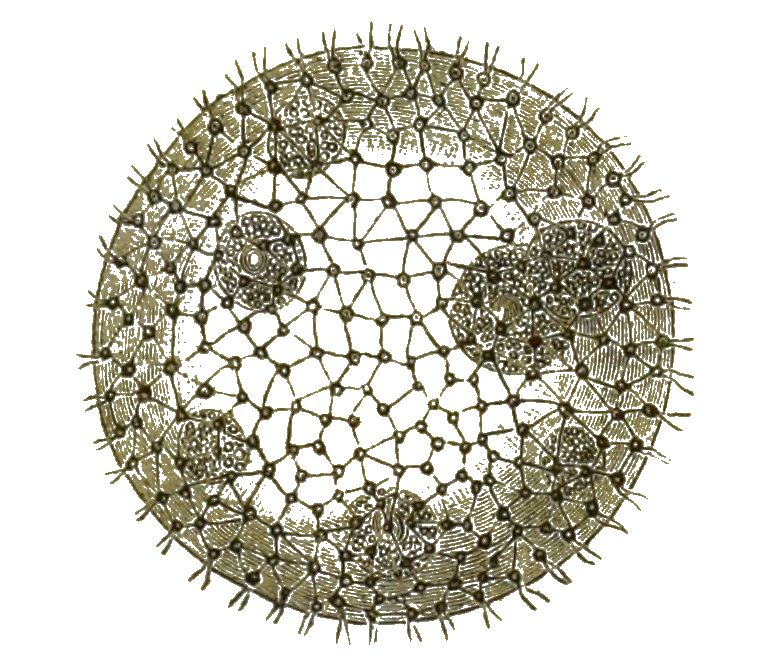
Nahe Verwandte dieser einzelligen Flagellaten sind auch die grünen sogenannten Kugelthierchen oder Volvocinen (Fig. 10); grüne Gallertkügelchen, welche die Grösse eines Stecknadelknopfes erreichen. In jedem Kügelchen sind zahlreiche grüne einzellige Flagellaten zu einer Gesellschaft vereinigt; und durch die gemeinsamen Schwingungen ihrer Geisseln wird die ganze Kugel umherbewegt. Im Innern der Gallertkugeln entstehen neue Tochterkugeln. Ausserdem vermehren sich die Volvocinen aber auch geschlechtlich, wie durch Cohns’ sorgfältige Untersuchungen dargethan worden ist; ihre Befruchtung geschieht in ähnlicher Weise wie bei vielen Algen; sie schliessen sich dadurch schon enger an das Pflanzenreich an.
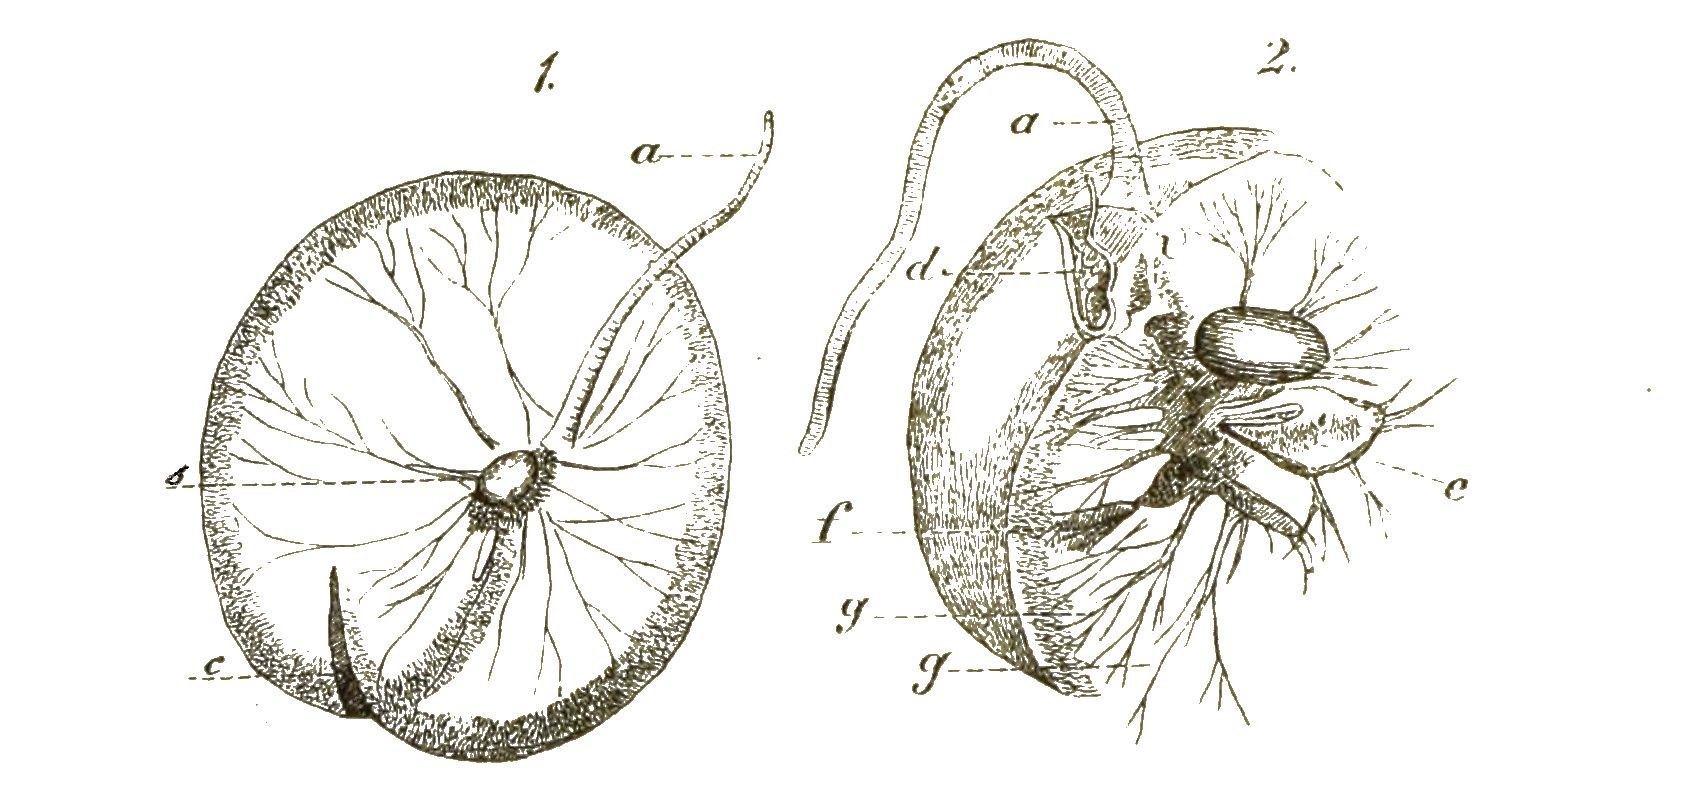
Eine sehr eigenthümliche Protistengruppe, die man auch noch zu den Flagellaten rechnet, sind die grossen blasenförmigen Noctiluken oder Meerleuchten. (Fig. 11). Sie bedecken oft die Meeresoberfläche in unglaublichen Massen, strahlen im Dunkeln ein helles Licht aus und spielen eine Hauptrolle bei dem wundervollen Phänomen des Meerleuchtens. Die gewöhnlichen Noctiluken sind colossale rundliche Zellen, welche ½-1 Millimeter Durchmesser erreichen und die Gestalt einer Pfirsiche besitzen (Fig. 11). Der Hohlraum der blasenförmigen Zelle ist mit wässeriger Flüssigkeit erfüllt, in welcher sich verästelte Stromfäden (g) des Protoplasma bewegen, ausgehend von der Wandschicht des letztern, welche innen an der Zellhaut anliegt. Der Kern ist eiförmig (b). An einer Stelle ist die Zellhaut von einer Oeffnung, einem Zellmund (Cystostoma), durchbrochen, und hier wird Nahrung direct in das Innere aufgenommen. Hier befindet sich auch neben der zarten Geissel ein grosser peitschenförmiger quergestreifter Anhang (a), sowie ein zahnförmiger Fortsatz (d). Die Fortpflanzung erfolgt theils durch einfache Theilung, theils durch eine eigenthümliche Form der Sporenbildung.
Fig. 11. Eine Meerleuchte (Noctiluca miliaris). 1. Die ganze Geisselzelle von oben. 2. Im optischen Durchschnitt: a Peitschenförmiger Anhang, b Kern, c Furche der Oberfläche, d zahnförmiger Fortsatz, daneben die zarte Geissel; e, f grössere Protoplasma-Ansammlung um den Kern herum; g, g verzweigte Stromfäden des Protoplasma.
Neuerdings ist eine Noctiluken-Form entdeckt worden, welche zum Verwechseln einer kleinen schirmförmigen Meduse ähnlich ist, und gleich einer solchen sich durch Zusammenklappen des zarten concaven Schirmes schwimmend bewegt (Leptodiscus medusoides).
Während über die einzellige Natur der Geisselschwärmer und der Amoeben heutzutage kein Zweifel mehr besteht, so ist diese dagegen bis vor Kurzem streitig gewesen bei denjenigen Protisten, die man heute vielfach als Infusionsthierchen im engeren Sinne bezeichnet. Dazu gehören die beiden Klassen der Wimperthierchen oder Ciliaten (Fig. 12–15) und der Starrthierchen oder Acineten (Fig. 16, 17). Massenhaft bevölkern sie alle stehenden und fliessenden Gewässer und sind auch in allen Infusionen zu finden.
Fig. 12. Ein Trompetenthierchen (Stentor polymorphus). Oben ist der grosse, den Mund umgebende Wimperkranz sichtbar, links darunter der lange, rosenkranzförmige Kern. Rechts neben dem Stentor sind zwei kleine, bewimperte Zellen sichtbar, die aus dem Innern desselben ausgeschwärmt sind, entweder Junge oder Parasiten (Acineten-Schwärmer). Fig. 13. Ein Maiglocken-Thierchen (Vorticella microstoma). Der einzellige Leib ist auf einem dünnen Stiele befestigt, der sich korkzieherartig zusammenziehen kann. a Wimperkranz um den Mund: v contractile Blase: n Zellkern; k, p, zwei Knospen, die sich ablösen.
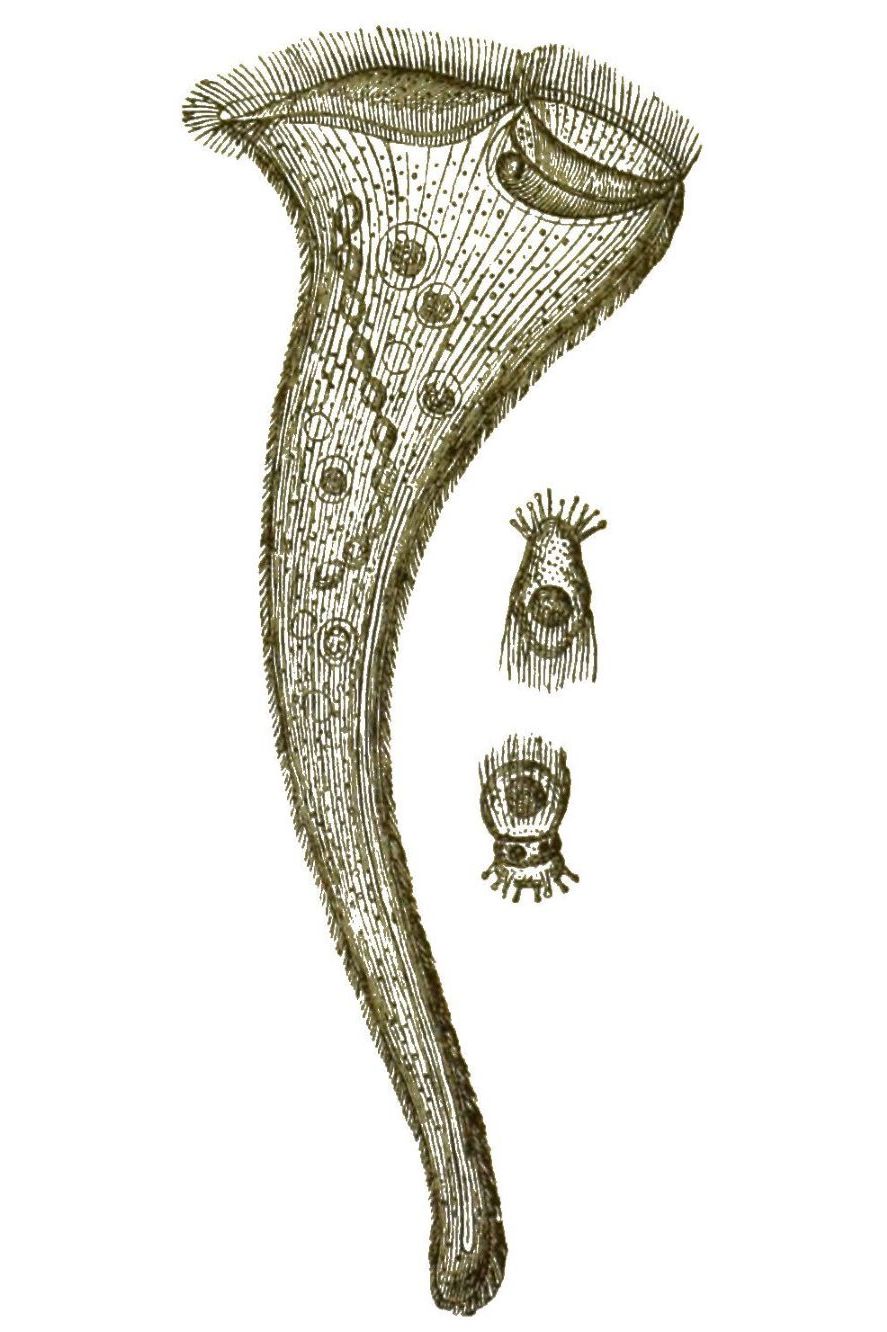
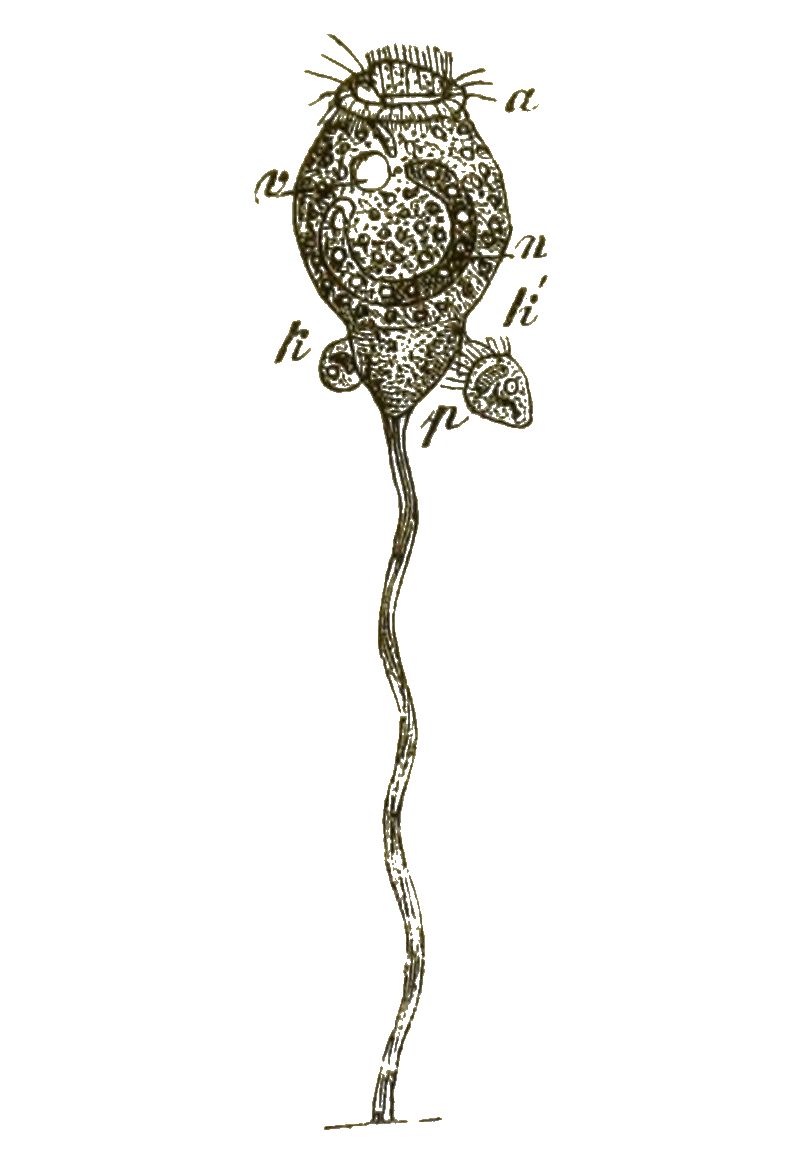
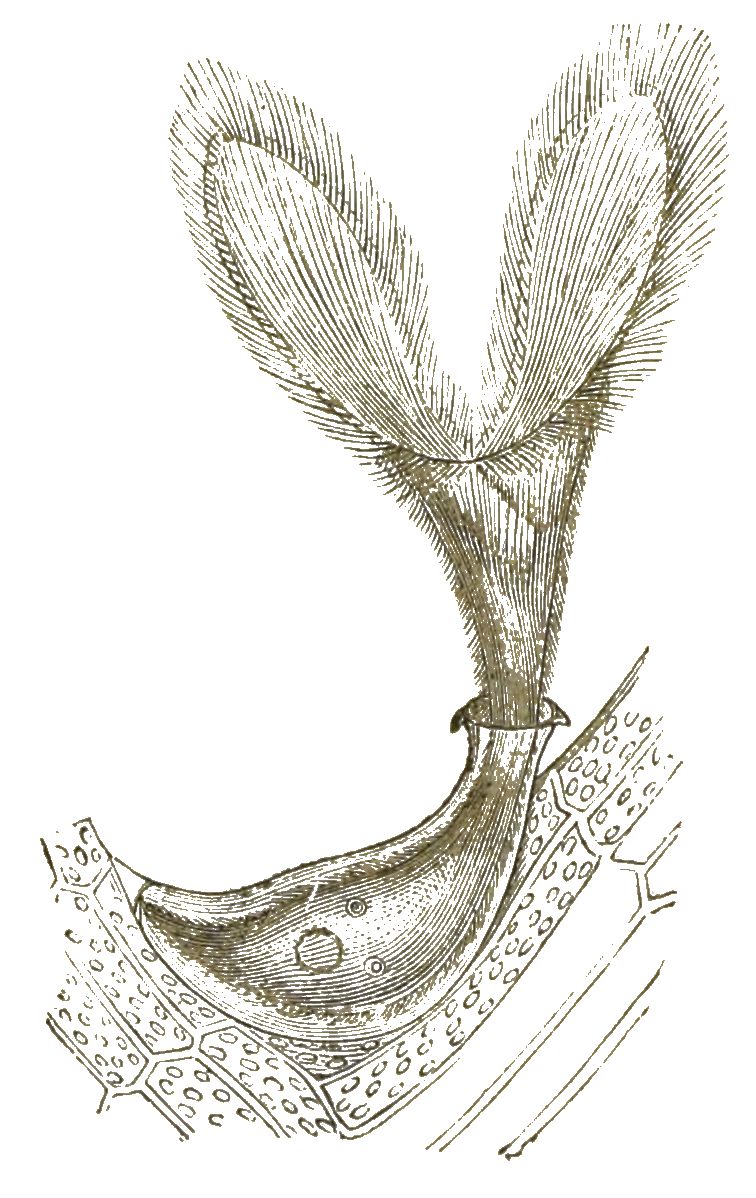
Besonders die Ciliaten, die Wimperlinge oder Wimperthierchen, erscheinen in einer Fülle von niedlichen Formen; und durch die Anmuth ihrer lebhaften Bewegungen fesseln sie uns stundenlang an das Mikroskop. Nur einzelne Ciliaten sind schon mit blossem Auge sichtbar, so z. B. das grosse Trompetenthierchen (Stentor, Fig. 12); die meisten sind erst durch das Mikroskop erkennbar. Zahlreiche kurze Wimperhärchen sind über den Körper zerstreut und werden willkürlich schlagend bewegt. Wie die Geisseln der Flagellaten, so sind auch diese Wimpern der Ciliaten directe Fortsätze vom Protoplasma des einzelligen Körpers. Die meisten Wimperthierchen bewegen sich frei schwimmend oder laufend mittelst dieser Wimpern umher. Es giebt aber auch festsitzende Ciliaten, wozu die niedlichen Vorticellen (Fig. 13) und Freia (Fig. 14) gehören.
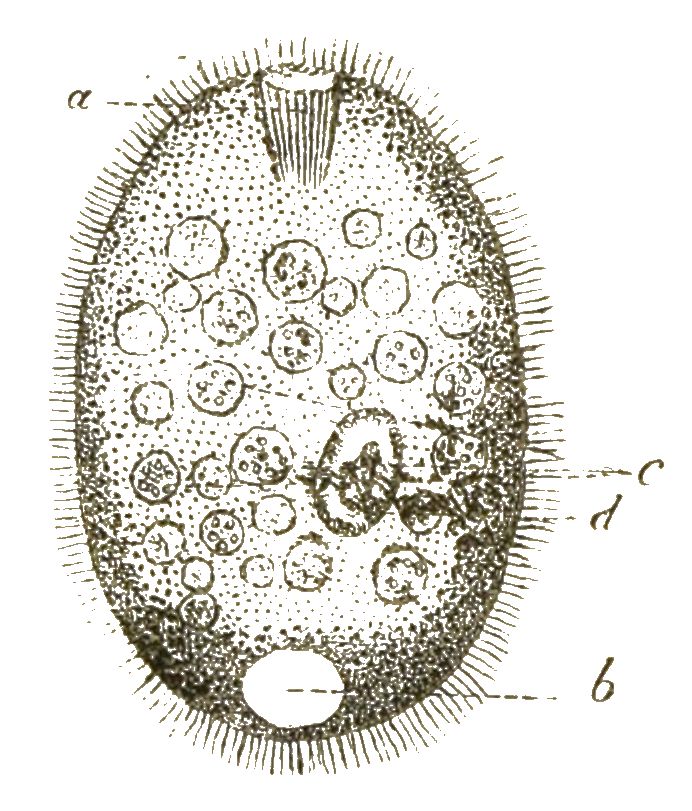
Fig. 14. Ein Lappenthierchen. (Freia elegans). Der einzellige Körper ist in eine ovale, auf Wasserpflanzen (unten) befestigte Hülle eingeschlossen, aus deren Oeffnung der Vordertheil der Zelle mit der Mundöffnung und zwei grossen Wimperlappen vortritt. Fig. 15. Ein Reusenthierchen (Prorodon teres). a Mundöffnung (mit fischreusenähnlichem Schlundtrichter). b Contractile Blase. c Verschluckte Nahrungsballen. d Zellkern (mit Kernkörperchen).
Bei diesen Ciliaten dient der durch die Wimpern erzeugte Strudel dazu, frisches Wasser und Nahrung der Zelle zuzuführen.
Das Protoplasma des Ciliaten-Körpers ist in eine festere Rindenschicht (Exoplasma) und eine weichere Markschicht (Endoplasma), gesondert. In der ersteren befindet sich eine beständige Oeffnung, eine Art Zellenmund (Cytostoma), durch welchen sowohl feste Bissen als Wassertropfen verschluckt und in die weichere Markmasse hineingedrückt werden. Bisweilen ist diese Mundöffnung zu einem besonderen gefalteten Schlundtrichter erweitert, so z. B. bei dem Fischreusen-Thierchen (Fig. 15 a). In dem weichen Protoplasma des Inneren ballt sich die verschluckte Nahrung in Bissen (Fig. 15 c), welche allmählig verdaut und aufgelöst werden; Ehrenberg beschrieb diese Nahrungsballen als besondere Magensäcke und benannte deshalb die Ciliaten »Vielmagenthierchen« (Polygastrica). Unsere magenlosen Wimperthierchen können also essen und trinken, obwohl sie einfache Zellen sind. Was aber noch mehr überrascht, das ist die Munterkeit und die offenbare Willkür ihrer Bewegungen, der zarte und seelenvolle Character ihrer Empfindungen. Gerade wegen dieser Eigenschaften werden sie gewöhnlich als echte Thiere betrachtet. Dass sie das nicht sind, geht aus ihrem feineren Bau und ihrer Entwickelung deutlich hervor. Zeitlebens umschliesst ihr einfacher Zellenleib nur einen einzigen Kern. Bald ist dieser Nucleus rundlich (Fig. 15 d), bald wurstförmig (Fig. 13 n), bald langgestreckt, stabförmig oder rosenkranzförmig (Fig. 12). Die Ciliaten sind also wirklich einzellig, wie zuerst der um die Kenntniss der Protisten hochverdiente Zoologe Siebold dargethan hat. Die Vermehrung der Ciliaten geschieht durch einfache Theilung; und wie bei jeder gewöhnlichen Zellentheilung zerfällt zuerst der Kern, und darauf das Protoplasma in zwei gleiche Hälften. Aber auch Fortpflanzung durch Knospenbildung ist bei vielen Ciliaten zu finden, so z. B. bei den Vorticellen (Fig. 13). Ausserdem scheinen sich Viele durch Sporen zu vermehren, d. h. durch junge Zellen, welche sich im Inneren der Mutterzelle bilden und wobei der Kern betheiligt ist (Fig. 12).
Das Interessanteste an den Wimperthierchen, und diejenige Eigenschaft, durch welche sie alle anderen Protisten übertreffen, ist der hohe Grad von Empfindlichkeit und von Willens-Energie, den sie bei ihren lebhaften Bewegungen kundgeben. Wer lange und eingehend Ciliaten beobachtet hat, kann nicht zweifeln, dass sie eine Seele so gut wie die höheren Thiere besitzen. Denn die Seelenthätigkeiten der Empfindung und der willkürlichen Bewegung üben sie eben so aus, wie die höheren Thiere; und an diesen Thätigkeiten allein ist ja die Seele zu erkennen. Da nun der ganze Leib der Ciliaten bloss eine einfache Zelle ist, so gewinnen sie die höchste Bedeutung für die Theorie von der Zellseele, für die Annahme, dass jede organische Zelle ihre eigene individuelle »Seele« besitzt — oder vielmehr, richtiger ausgedrückt: dass Seelenleben eine Thätigkeit aller Zellen ist.
Fig. 16. Eine Acineta, auf einem kurzen Stiele (unten) befestigt. p Saugröhren der Zelle. v Contractile Blasen im Protoplasma. e eine Spore. n Zellkern.
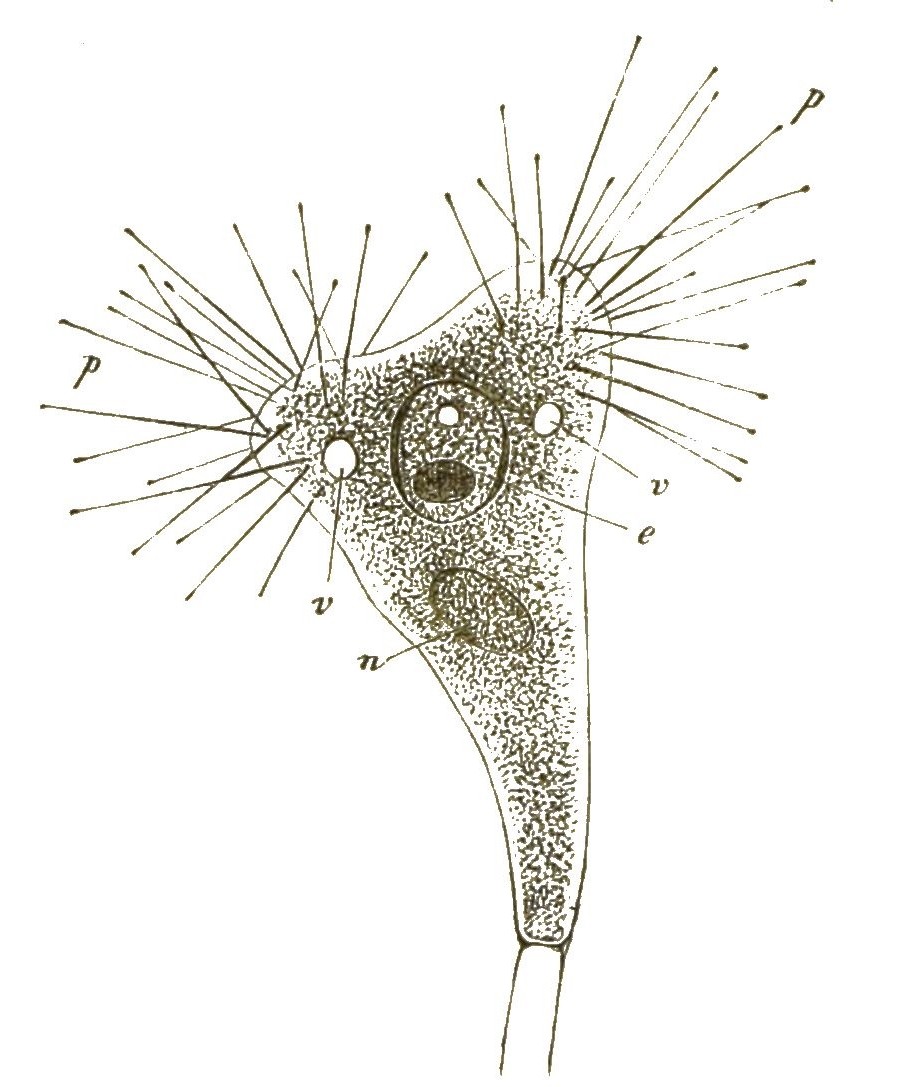
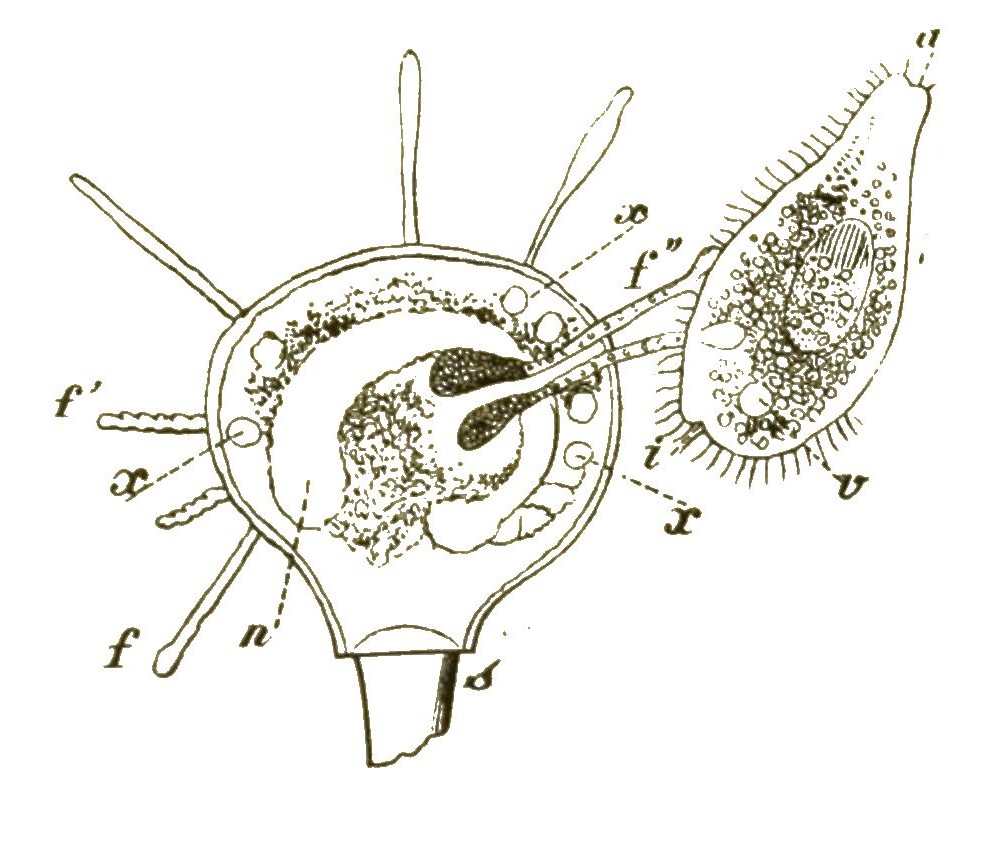
An die formenreiche Klasse der Wimperthierchen schliesst sich die kleine Gruppe der naheverwandten Starrthierchen oder Acineten an (Fig. 16, 17). Im Gegensatze zu ersteren zeigen diese letzteren nur sehr wenig Beweglichkeit; sie sitzen meistens zeitlebens auf einem Stiele fest. Statt der Wimperhärchen treten aus ihrem starren, von einer Hülle umschlossenen Zellenkörper zahlreiche feine, oft büschelförmig gruppirte Fortsätze hervor (Fig. 16 p). Dies sind sehr feine Saugröhrchen, die am Ende mit einem Saugknöpfchen versehen sind. Wenn ein schwimmendes Wimperthierchen unvorsichtig in die Nähe einer solchen Acinete geräth, wird sie von den steif ausgestreckten Saugröhren der letzteren festgehalten und ausgesaugt (Fig. 17). Das Protoplasma des gefangenen Ciliaten (a) wandert langsam durch die Saugröhren (f’’) in das Innere der Acinete hinein. Dass auch sie nur eine einfache Zelle ist, beweist ihr Zellkern (n); im Protoplasma sind, wie bei den Ciliaten, oft eine oder mehrere »contractile Blasen« oder Vacuolen sichtbar, wassererfüllte kugelige Hohlräume, die sich langsam zusammenziehen und wieder ausdehnen (Fig. 16v,Fig. 17x).
Fig. 17. Eine Acineta, welche mit ihren Saugröhren (f) ein Wimperthierchen (Euchelys a) ergriffen hat und dasselbe aussaugt. x, v Contractile Blasen. n Zellkern.
Die anhaltende Beobachtung der Acineten gewährt ebenso wie diejenige der Ciliaten das höchste Interesse. An diesen Infusionsthierchen zeigt uns die organische Zelle deutlich, wie weit sie es in ihrem idealen Streben nach thierischer Vollkommenheit für sich allein bringen kann. Wir können sagen: Die Wimperthierchen sind der gelungenste Versuch der einzelnen Zelle, sich zu einem wirklichen Thiere zu entwickeln. Aber zu einem echten Thiere gehören ja mindestens zwei Keimblätter, deren jedes aus zahlreichen Zellen zusammengesetzt ist. Also können wir doch die Ciliaten und Acineten nicht als wirkliche Thiere gelten lassen.
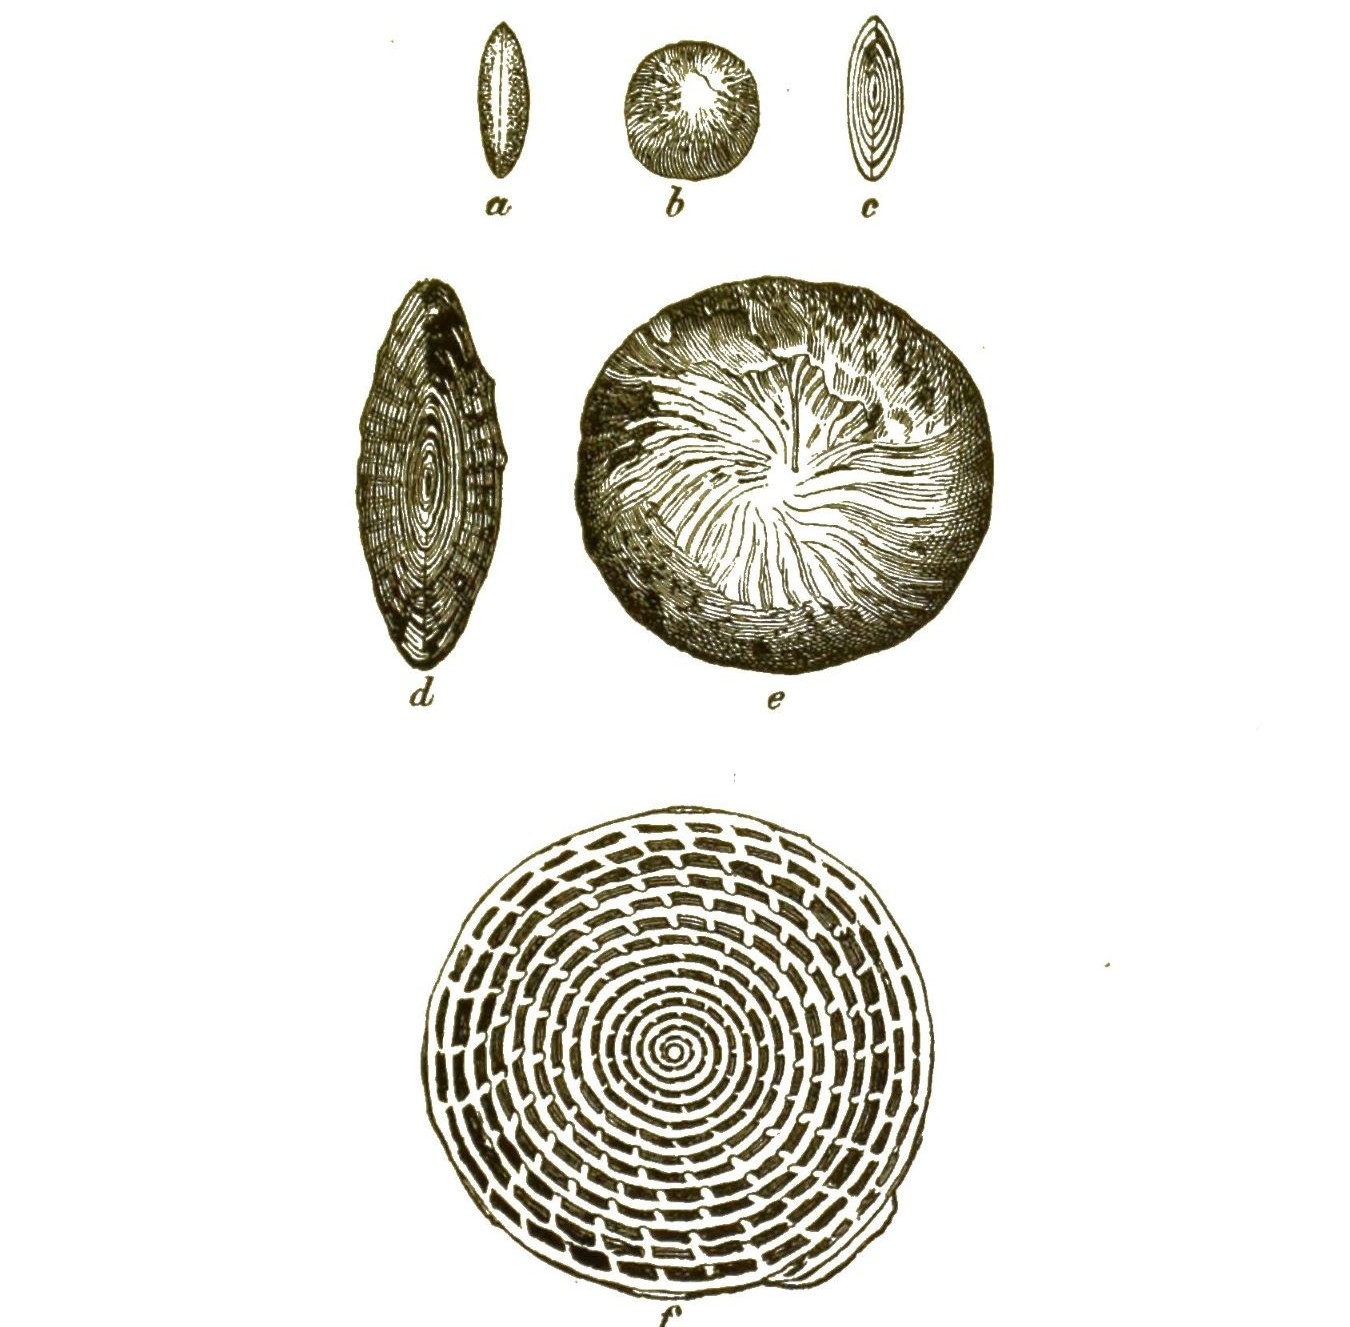
Unter allen Protistenklassen die formenreichste und in geologischer Beziehung die wichtigste ist die wunderbare Klasse der Wurzelfüssler oder Rhizopoden. Ausser mehreren kleineren Gruppen gehören dahin die kalkschaligen Thalamophoren und die kieselschaligen Radiolarien. Beide Abtheilungen sind in zahllosen, höchst phantastisch geformten Arten in allen Meeren verbreitet. Die Thalamophoren leben zum grössten Theile kriechend auf dem Grunde des Meeres, besonders auf Seetang; die Radiolarien hingegen schwimmen in dichtgedrängten Schaaren an der glatten Oberfläche des Meeres oder schweben in verschiedenen Tiefen desselben. Die bekanntesten und geologisch wichtigsten Rhizopoden sind die Thalamophoren, Kammerlinge oder Kammerthierchen; ausgezeichnet durch eine feste, meistens kalkige Schale, in welche sich diese Urthierchen, wie die Schnecke in ihr Haus, zurückziehen können. Bald enthält diese Kalkschale nur eine einzige Kammer (Einkammerige, Monothalamia, Monostegia); bald mehrere, durch Thüren mit einander verbundene Kammern (Vielkammerige, Polythalamia, Polystegia). Solche zierlich geformte, oft einem Schneckenhaus ähnliche Kalkschalen haben sich seit vielen Millionen Jahren in ungeheuren Massen auf dem Meeresboden angehäuft und an der Gebirgsbildung unserer Erde den wichtigsten Antheil genommen. Schon die ältesten, aus dem Meere abgesetzten Flötzgesteine, die laurentischen, cambrischen und silurischen Schichten, enthalten dergleichen Polythalamien-Schalen und sind wahrscheinlich zum grossen Theile aus ihnen gebildet. Das älteste von Allen ist das berühmte Eozoon canadense aus den unteren laurentischen Schichten, dessen Polythalamien-Natur mit Unrecht in Zweifel gezogen wurde. Die mächtigste Entwickelung erreichen diese Rhizopoden jedoch erst viel später, während der Kreide-Periode und der älteren Tertiär-Periode. Jedes kleinste Körnchen unserer weissen Schreibkreide lässt uns unter dem Mikroskope zahlreiche solcher zierlichen Kalkschalen erkennen. Der Grobkalk von Paris, aus dem viele Paläste dieser Weltstadt erbaut sind, besteht ebenfalls zum grössten Theile aus solchen Kammerschalen. Ein Kubikcentimeter des Kalkes aus den Steinbrüchen von Gentilly enthält ungefähr 20,000, ein Kubikmeter demnach gegen 20 Millionen Schalen. Die grössten Polythalamien aber lebten während der ältesten Tertiärzeit, während der Eocaen-Periode. Unter ihnen sind die Riesen des Protisten-Reiches, die gigantischen Nummuliten (Fig. 18), deren scheibenförmige Kalkschalen die Grösse eines Zweithalerstückes erreichen. Der von ihnen erzeugte Nummuliten-Kalk, aus dem unter Anderen die egyptischen Pyramiden gebaut sind, bildet die ungeheuren Gebirgsmassen des Nummulitensystems. Dies ist eins der gewaltigsten Gebirgssysteme unserer Erde, das von Spanien und Marokko bis nach Indien und China hinüberreicht, und an der Bildung der Pyrenäen und Alpen, des Libanon und Kaukasus, des Altai und Himalaya den bedeutendsten Antheil nimmt.
Fig. 18. Nummulites (reticulatus). a, b, c in natürlicher Grösse; d, e, f schwach vergrössert. Die linsenförmige Scheibe ist in a vom Rande aus gesehen, in b und e von der Fläche, c und d im Längsschnitt (Dickenschnitt).
In welchen ungeheuren Massen die Polythalamien auch gegenwärtig noch unsere Meere bevölkern, geht daraus hervor, dass z. B. der Sand der Mittelmeerküsten an vielen Stellen zur grösseren Hälfte aus den Schalen lebender Polythalamien-Arten besteht. Schon einer ihrer ersten Beobachter, Bianchi, zählte im Jahre 1739 in einem einzigen Esslöffel Seesand von Rimini 6000 Individuen; und derjenige Naturforscher, dem wir die genauesten Untersuchungen über ihre Naturgeschichte verdanken, der berühmte Anatom Max Schultze, berechnete ihre Menge in einem Esslöffel Seesand von Gaeta auf mehr als Hunderttausend.
Der weiche lebendige Körper der Kammerthierchen, welcher diese wunderbaren Schalen- und Panzer-Bildungen erzeugt, ist stets von höchst einfacher Bildung: ein Stück formloses Protoplasma, das zahlreiche Zellenkerne einschliesst. Von der Oberfläche des weichen Protoplasma-Leibes strahlen hunderte, oft tausende von äusserst feinen Fäden aus. Diese Schleimfädchen, die den Namen Scheinfüsschen oder Pseudopodien führen, sind sehr empfindlich und beweglich. Sie können sich verästeln, mit einander verschmelzen, Netze bilden und wieder in die gemeinsame Centralmasse des Körpers zurückgezogen werden. Durch die Zusammenziehungen dieser Fäden bewirken die Wurzelfüssler ihre kriechende oder schwimmende Ortsbewegung. Wenn ein anderer Protist, z. B. ein Wimperthierchen oder eine Bacillarie, in den Bereich dieser Fäden gelangt, so wird es von ihnen erfasst, umschlungen und in das Innere des Protoplasmakörpers hineingezogen, wo es einer höchst einfachen Verdauung unterliegt. Wie bei den Amoeben kann jede Stelle der Körperoberfläche dergestalt die Aufgabe eines Mundes und Magens übernehmen. Auch die Vermehrung der Wurzelfüssler ist höchst einfach. Der weiche Protoplasma-Leib des Kammerthierchens zerfällt in zahlreiche kleine Stückchen. Jedes Stückchen erhält einen Zellkern, bildet also eine echte Zelle, und diese nackte Zelle schwitzt alsbald wieder eine Kalkschale aus.
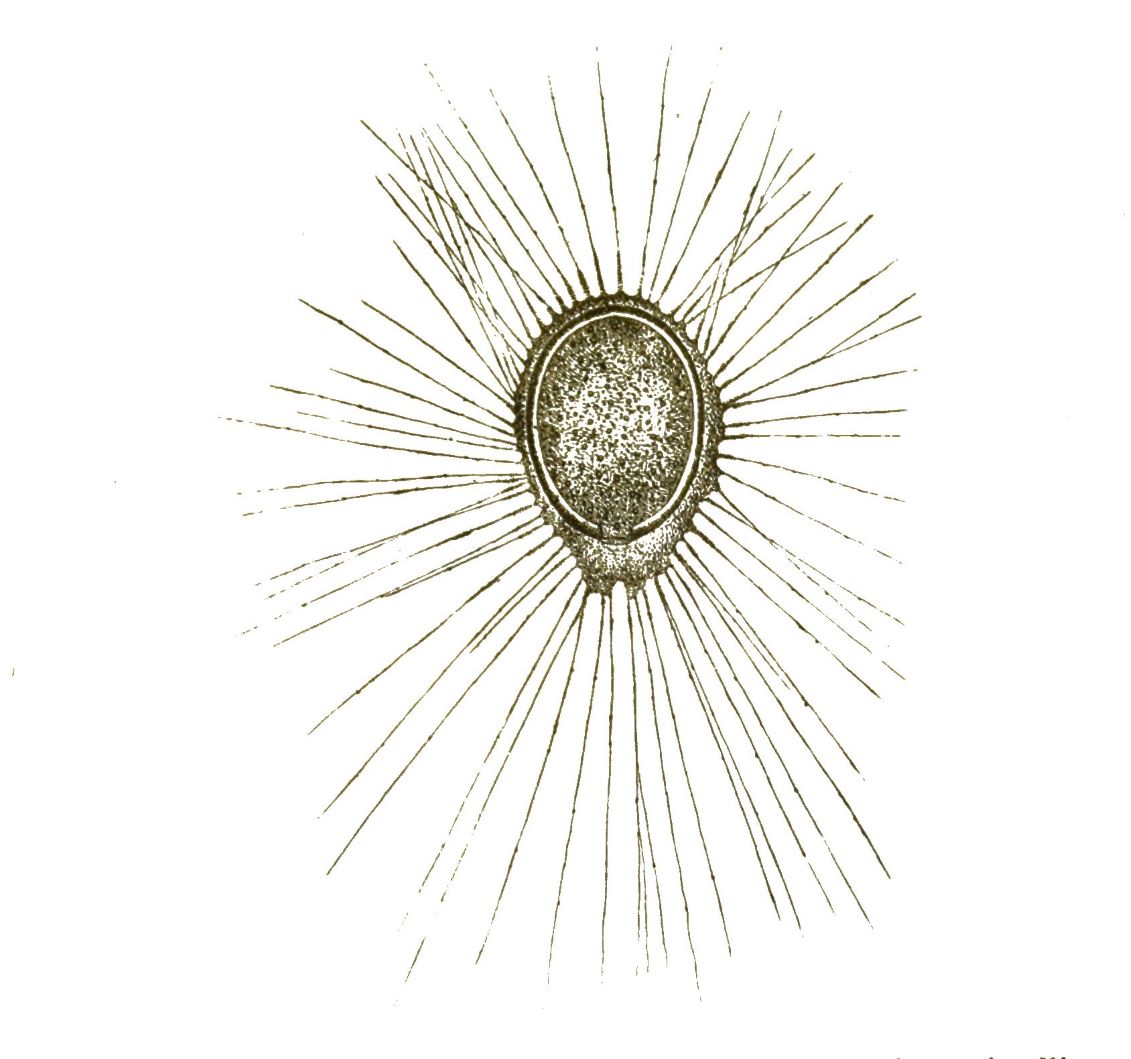
Die vielgestaltige Schale des Acyttarien-Körpers besteht meistens aus kohlensaurem Kalk, seltener aus einer erhärteten organischen Substanz, die mit Sandkörnchen u. dergl. verkittet ist. Bald besitzt die Schale nur eine grössere Mündung, ist aber übrigens undurchlöchert (Imperforata); bald ist die Schale überall von sehr zahlreichen kleinen Löchern durchbrochen (Foraminifera). Mit Bezug auf die Schalenform unterscheidet man bei den zwei Hauptgruppen: Einkammerige und Vielkammerige. Die Einkammerigen (Monothalamia) sind verhältnissmässig wenig formenreich. Einer ihrer bekanntesten, häufigsten und grössten Vertreter ist die Gromia (Fig. 19). Sie besitzt eine eiförmige Schale, mit dunkelbraunem Protoplasma erfüllt, und erreicht die Grösse eines Stecknadelknopfes. Die Netze der Scheinfüsschen, welche davon ausstrahlen, kann man schon mit blossem Auge deutlich erkennen.
Fig. 19. Gromia (oviformis). Die Hauptmasse des eiförmigen einzelligen Körpers ist von einer biegsamen Schale eingeschlossen. Durch die Oeffnung derselben tritt (unten) fliessendes Protoplasma heraus, welches die ganze Schale umhüllt und von dem nach allen Richtungen bewegliche Fäden ausstrahlen.
Die Vielkammerigen (Polythalamia) bilden die Hauptmasse der Acyttarien. Die einzelnen Kammern, welche ihre Schale zusammensetzen, sind durch unvollständige Scheidewände getrennt, oft sehr zahlreich. Meistens sind dieselben mehr oder weniger in Spiralen geordnet. So entstehen Gehäuse, welche die grösste Aehnlichkeit mit denjenigen gewisser Mollusken, namentlich Cephalopoden, besitzen (Fig. 20). Daher wurden diese Rhizopoden von ihren ersten Entdeckern wirklich für echte, mikroskopische Cephalopoden gehalten und auch später noch ihre Organisation als solche beschrieben.
Erst vor 40 Jahren lernte man, zuerst durch Dujardin, ihre wahre Natur kennen, und überzeugte sich, dass ganz ähnlich geformte Schalen das eine Mal von einem höchst vollkommen organisirten Weichthiere (Nautilus), das andere Mal von einem höchst einfach gebauten Wurzelfüssler (Polystomella) gebildet werden.
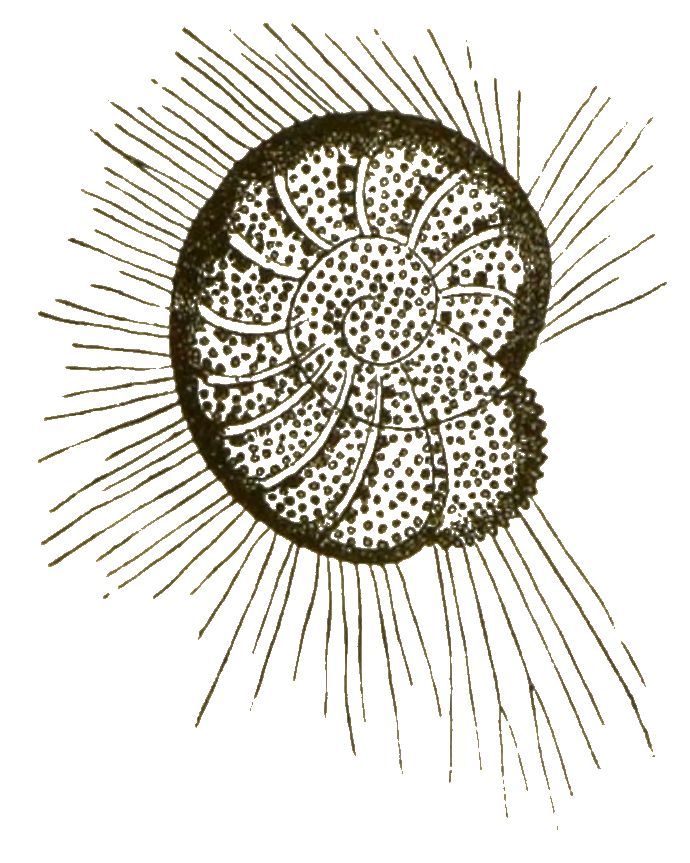
Fig. 20. Polystomella (venusta), ein Polythalam, dessen Kammern in einer Spirale aufgerollt sind, ganz ähnlich wie bei Nautilus. Aus den feinen Löchern der Schale treten überall bewegliche fadenförmige Scheinfüsschen hervor. Fig. 21. Alveolina (Quoyi). Mehrere Reihen von Kammern laufen in einer Spirale neben einander hin. Die durchschnittenen Wände der Kammern sind weiss gezeichnet; die Verbindungsöffnungen mit den darüber liegenden schwarz.
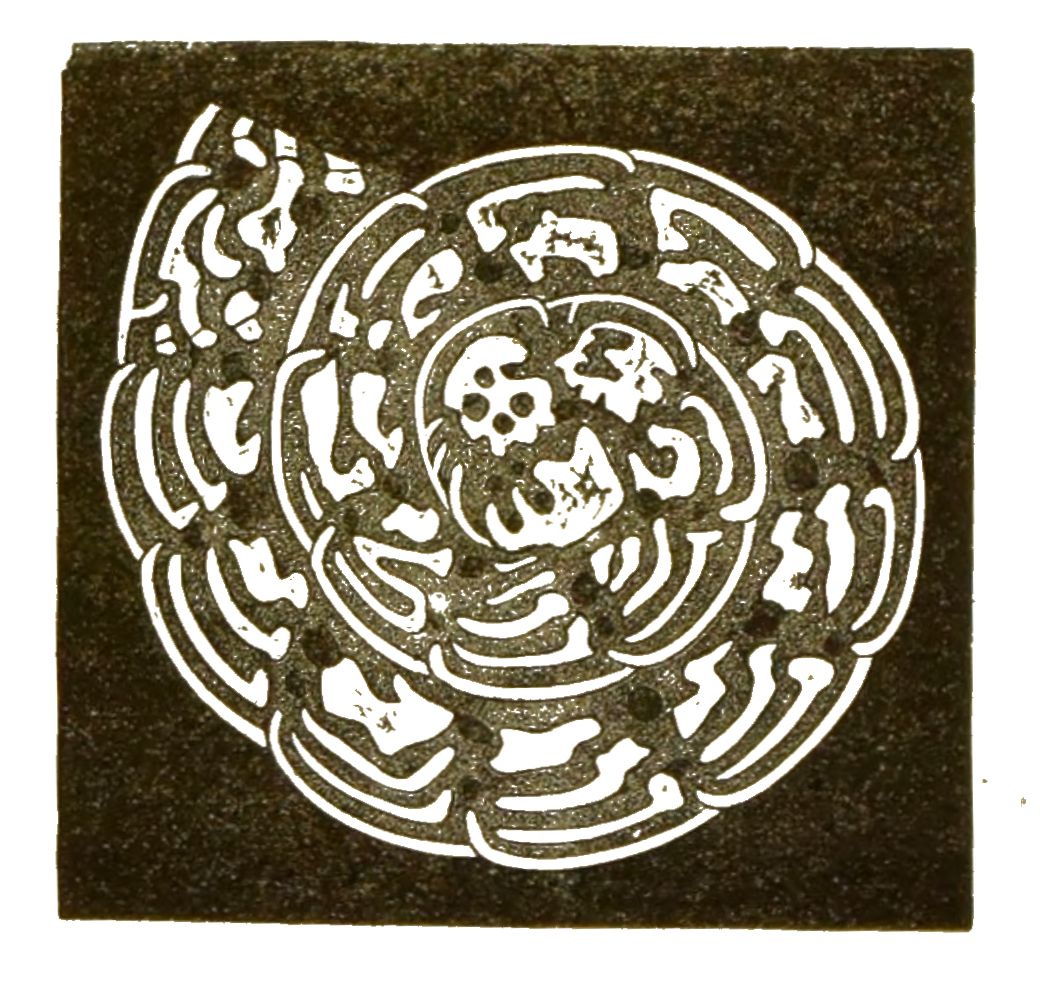
Bei manchen Polythalamien laufen mehrere Spiralen neben einander im Gehäuse hin, indem innerhalb der Kammern sich wieder parallele Scheidewände bilden (Fig. 21). Bei den grossen Orbituliten und Nummuliten liegen solche Kammerreihen sogar in mehreren Stockwerken übereinander. Die Kammerreihen sind hier bald in zusammenhängenden Spirallinien, wie bei den Nummuliten (Fig. 18) geordnet, bald in concentrischen Ringen, wie bei dem gigantischen Cycloclypeus (Fig. 22).
Die Gehäuse dieser letzteren sind runde Scheiben, welche sich am besten mit einem Palaste vergleichen lassen, dessen Umfassungsmauern nach dem Plane eines römischen Amphitheaters gebaut sind.
Fig. 22. Cycloclypeus, ein colossales Polythalam von 3 Centimeter Durchmesser, in grossen Tiefen des Sunda-Meeres lebend. Man sieht die eine Hälfte der in der Mitte durchschnittenen Schale, von der links noch ein Stück der oberen Schicht abgeschnitten ist, um in die Kammern hineinzublicken.
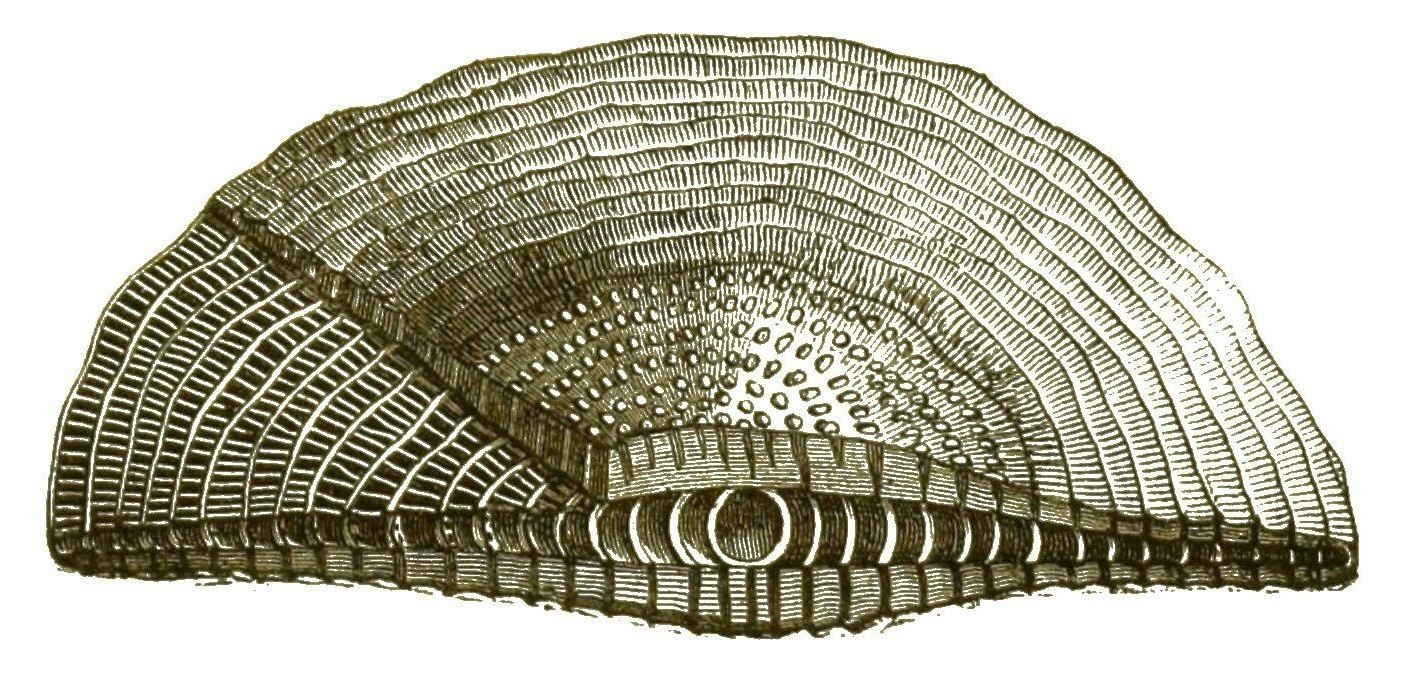
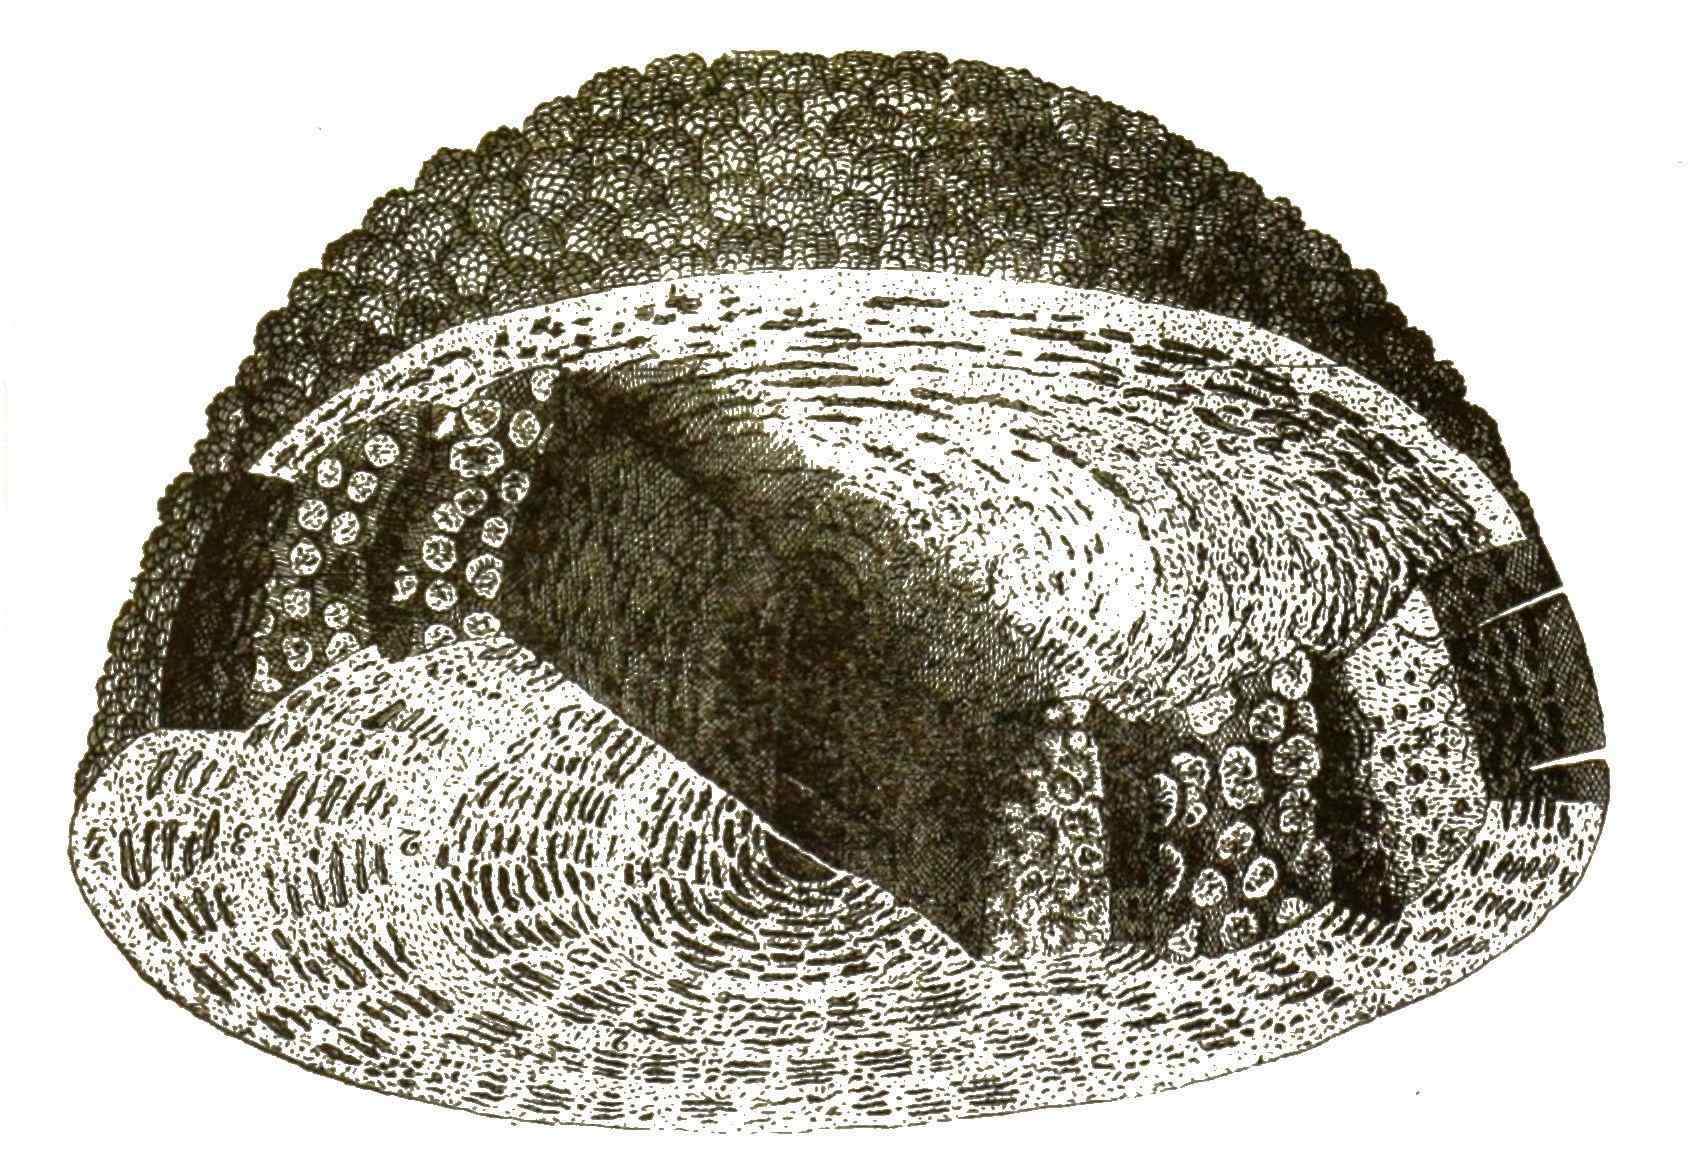
Fig. 23. Parkeria, ein colossales Polythalam von 3 Centimeter Durchmesser. Man sieht blos ein Stück der eiförmigen Schale, so durchschnitten, dass man nach allen Richtungen hin die Zusammensetzung des Gehäuses aus zahllosen kleinen Kammern erkennen kann.
Mehrere Stockwerke liegen übereinander, in jedem eine centrale Hauptkammer, umgeben von vielen ringförmigen Corridoren, und jeder Corridor durch viele Scheidewände in Kammern getheilt: alle diese zahlreichen Stockwerke, Corridore und Kammern stehen durch Thüren mit einander in Verbindung und kleine Fenster in der äusseren Schalenfläche vermitteln die Verbindung mit der Aussenwelt, indem sie die feinen Schwimmfüsschen durchtreten lassen.
Zu den grössten und am meisten zusammengesetzten Polythalamien gehören die Parkerien, deren Gehäuse grösstentheils aus Sandkörnchen zusammengesetzt sind (Fig. 23).
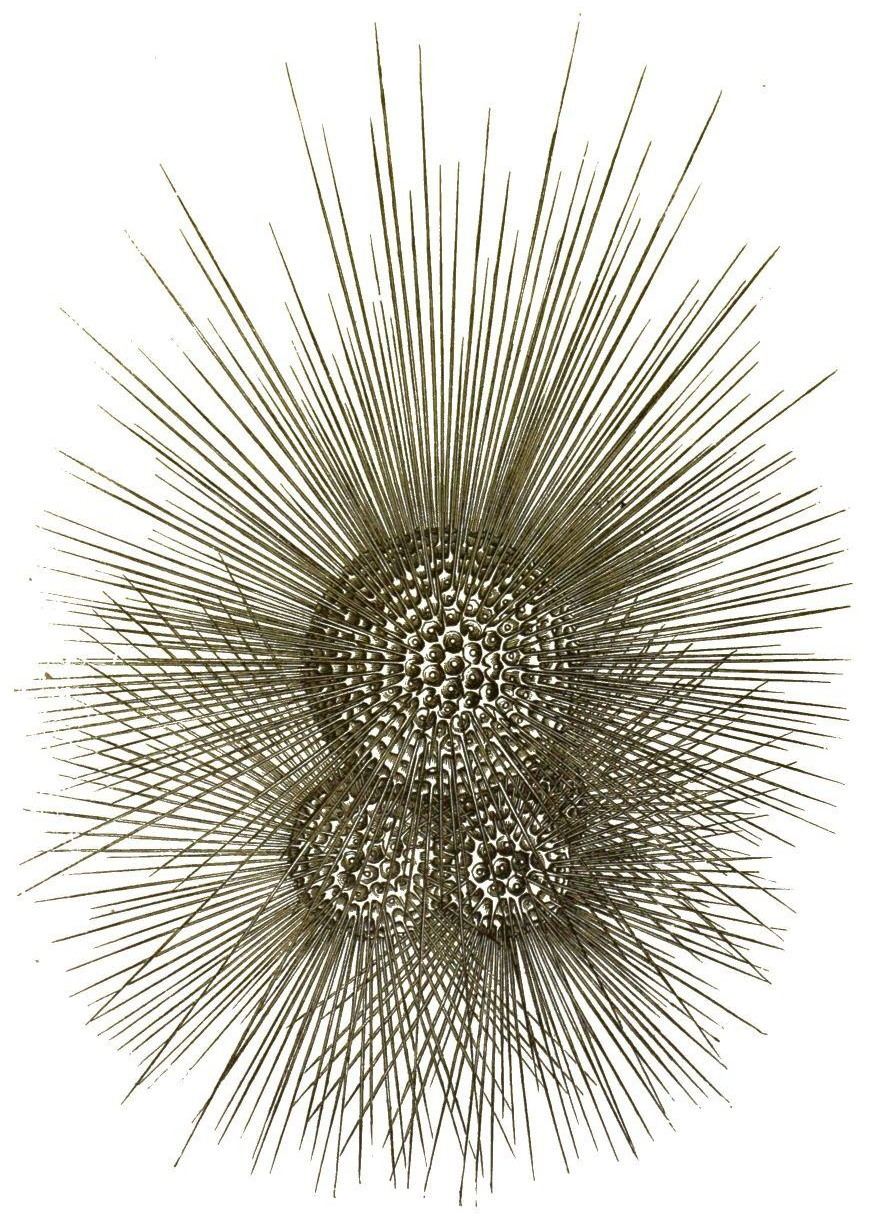
Während die grosse Mehrzahl der Thalamophoren auf dem Meeresboden kriechend lebt, giebt es auch einige Arten, die an der Oberfläche des Meeres schwimmen, und zwar oft in grossen Massen, mit Radiolarien gemischt. Dahin gehören auch die merkwürdigen Pulvinulinen, Globigerinen und Hastigerinen, letztere durch ihre sehr langen borstenförmigen Kalkstacheln ausgezeichnet (Fig. 24).
Wenn schon bei diesen merkwürdigen Polythalamien die formbildende Kunst des formlosen Protoplasma unsere höchste Bewunderung erregt, so wird dieselbe noch gesteigert, wenn wir die nahe verwandten Radiolarien, die »Gitterthiere« oder Strahlinge betrachten. Bei diesen höchst interessanten Wurzelfüsslern treffen wir die grösste Mannigfaltigkeit von zierlichen und sonderbaren Formen an, die überhaupt in der organischen Welt zu finden ist. Ja, alle möglichen Grundformen, welche man nur in einem promorphologischen Systeme aufstellen kann, finden sich hier wirklich verkörpert vor. Das Material aber, aus welchem das formlose Protoplasma hier die unendlich mannigfaltigen Skelettheile bildet, ist nicht Kalkerde, wie bei den Polythalamien, sondern Kieselerde.
Der weiche lebendige Leib der Radiolarien ist übrigens etwas höher organisirt, als derjenige der Polythalamien. Denn im Innern des formlosen weichen Protoplasma-Körpers findet sich hier eine besondere Kapsel, welche von einer festen Membran umschlossen ist, die Centralkapsel (Fig. 25).
In dieser bilden sich Massen von kleinen Zellen, welche eine bewegliche Geissel erhalten, später die Kapsel durchbrechen und ausschwärmen.
Fig. 24. Hastigerina Murrayi. Ein Polythalam, dessen Kalkschalen überall mit haarfeinen, sehr langen Kalkstacheln bewaffnet ist.
Da der ganze Inhalt der Centralkapsel zur Bildung dieser Keime, welche gleich Flagellaten umherschwimmen und sich dann zu Radiolarien entwickeln, verwendet wird, so kann man die Centralkapsel auch als Sporenbehälter (Sporangium) der Radiolarien betrachten.
Fig. 25. Heliosphaera (inermis). Ein Radiolar, dessen kugelige Gitterschale aus sechseckigen Maschen zusammengesetzt ist. Im Innern schwebt eine kugelige Centralkapsel, welche einen dunkeln Kern einschliesst, umgeben von kleinen gelben Zellen. Zahlreiche fadenförmige Scheinfüsschen strahlen allenthalben aus, halten sich an der Gitterschale fest und treten durch deren Löcher aus.
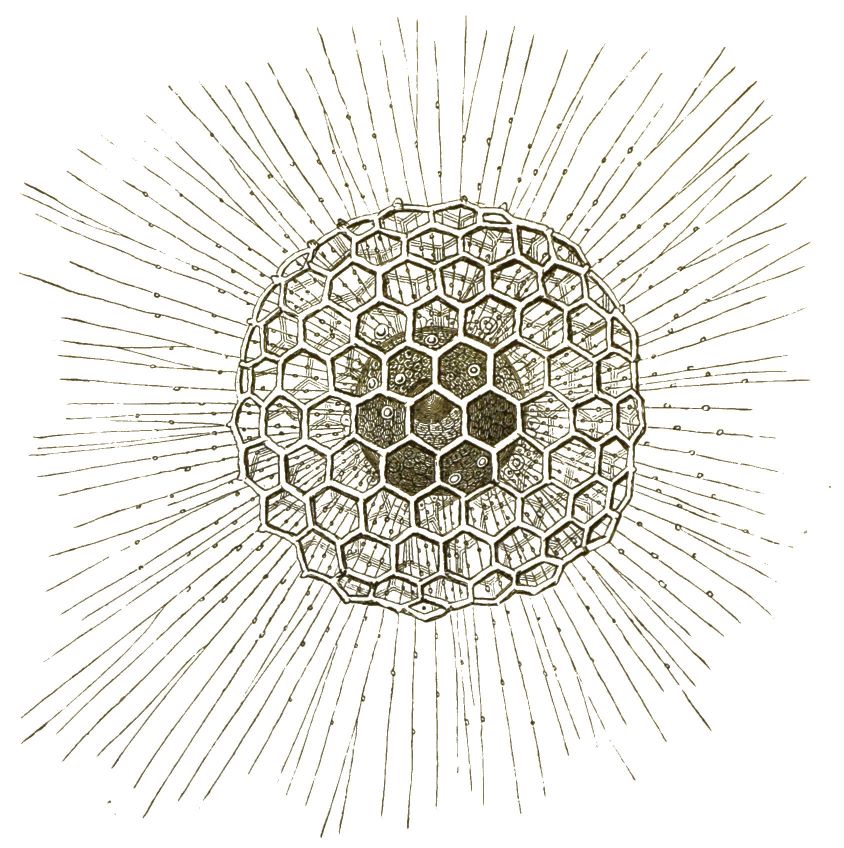
Sie ist umschlossen von einer Schicht Protoplasma, von welchem nach allen Richtungen zahllose, äusserst feine Scheinfüsschen ausstrahlen. Diese verhalten sich im Uebrigen ebenso wie bei den Polythalamien.
Gewöhnlich finden sich im Protoplasma der Radiolarien ausserhalb der Centralkapsel noch zahlreiche gelbe Zellen von unbekannter Bedeutung; sie enthalten Stärkemehl.
Ausserdem bilden sich bei einigen Radiolarien rings um die Centralkapsel grosse helle Wasser-Blasen aus (Vacuolen), welche von einer sehr dünnen Gallerte umschlossen sind, so namentlich bei den erbsengrossen Thalassicollen (Fig. 26).
Fig. 26. Thalassicolla (pelagica). Ein grosses nacktes Radiolar (ohne Schale). Die innere kugelige Centralkapsel ist von einem Mantel grosser Wasserblasen umgeben. An der Oberfläche strahlen tausende von feinen Schleimfäden aus.
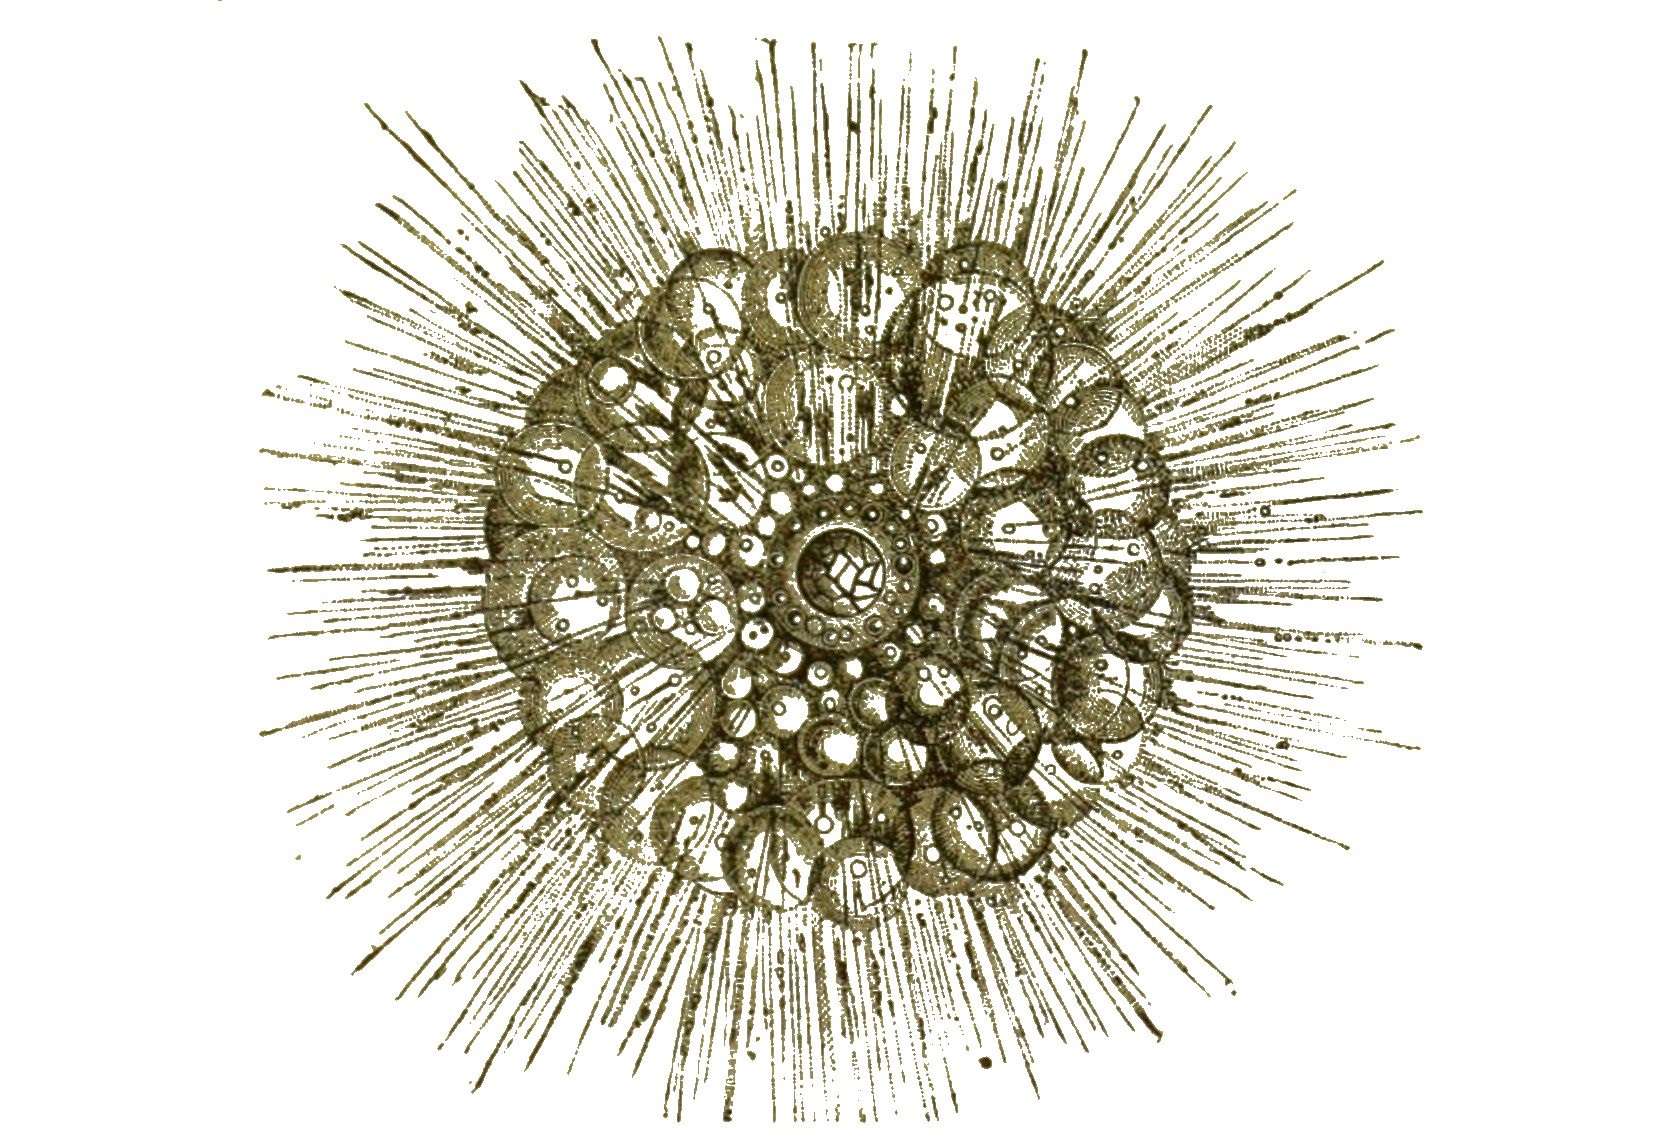
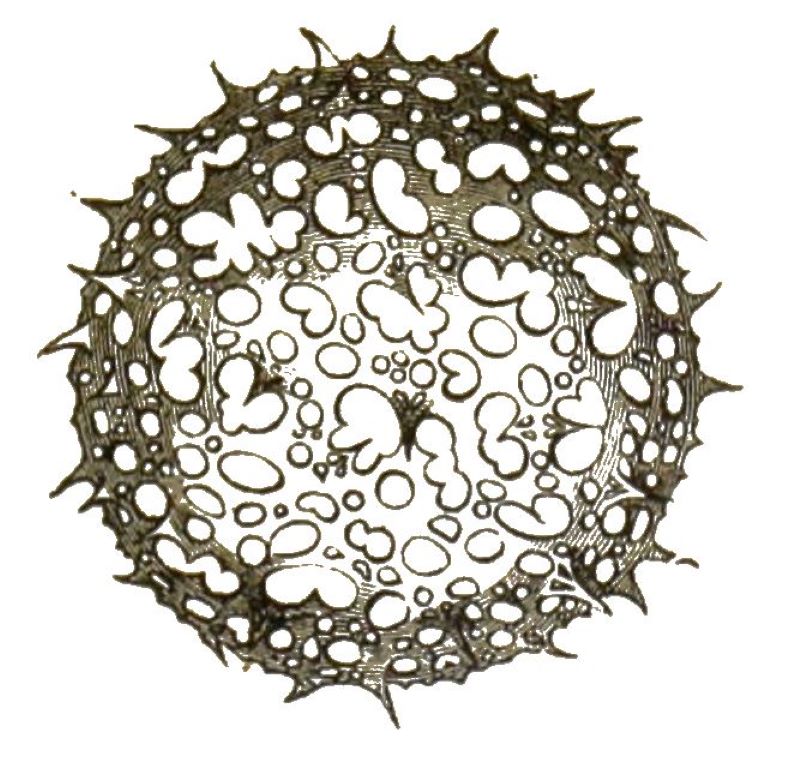
Es giebt auch zusammengesetzte Radiolarien (Polycyttarien). Diese bilden grössere Gallertklumpen von cylindrischer oder kugeliger Form, von 1 bis 3 Centimeter Durchmesser. Die Gallerte besteht grösstentheils aus solchen Wasserblasen, und in der Oberfläche sind ältere, im Innern dagegen jüngere Centralkapseln vertheilt (Fig.27; s. folg. S.). Jede der letzteren ist oft von einer gegitterten Kieselschale umschlossen (Fig. 28).
Bei sehr vielen Radiolarien ist die Kieselschale eine Gitterkugel (Fig. 25, 28, 29, 31); oft gehen lange, regelmässig vertheilte Stacheln davon ab (Fig. 29). Bei den Ommatiden (Fig. 30, 31) finden wir mehrere solcher Gitterkugeln concentrisch in einander geschachtelt und durch radiale Stäbe verbunden, ganz ähnlich dem bekannten zierlichen Spielzeug, das die Chinesen aus Elfenbein anfertigen.
Fig. 27. Collosphaera (Huxleyi). Ein zusammengesetztes Radiolar mit vielen Centralkapseln; die inneren kleineren ohne, die äusseren grösseren mit Kieselschale. Zwischen den ausstrahlenden Fäden sind zahlreiche kleine gelbe Zellen zerstreut. Im Centrum der Colonie ist eine grosse Wasserblase sichtbar umgeben von einem Protoplasma-Netz.
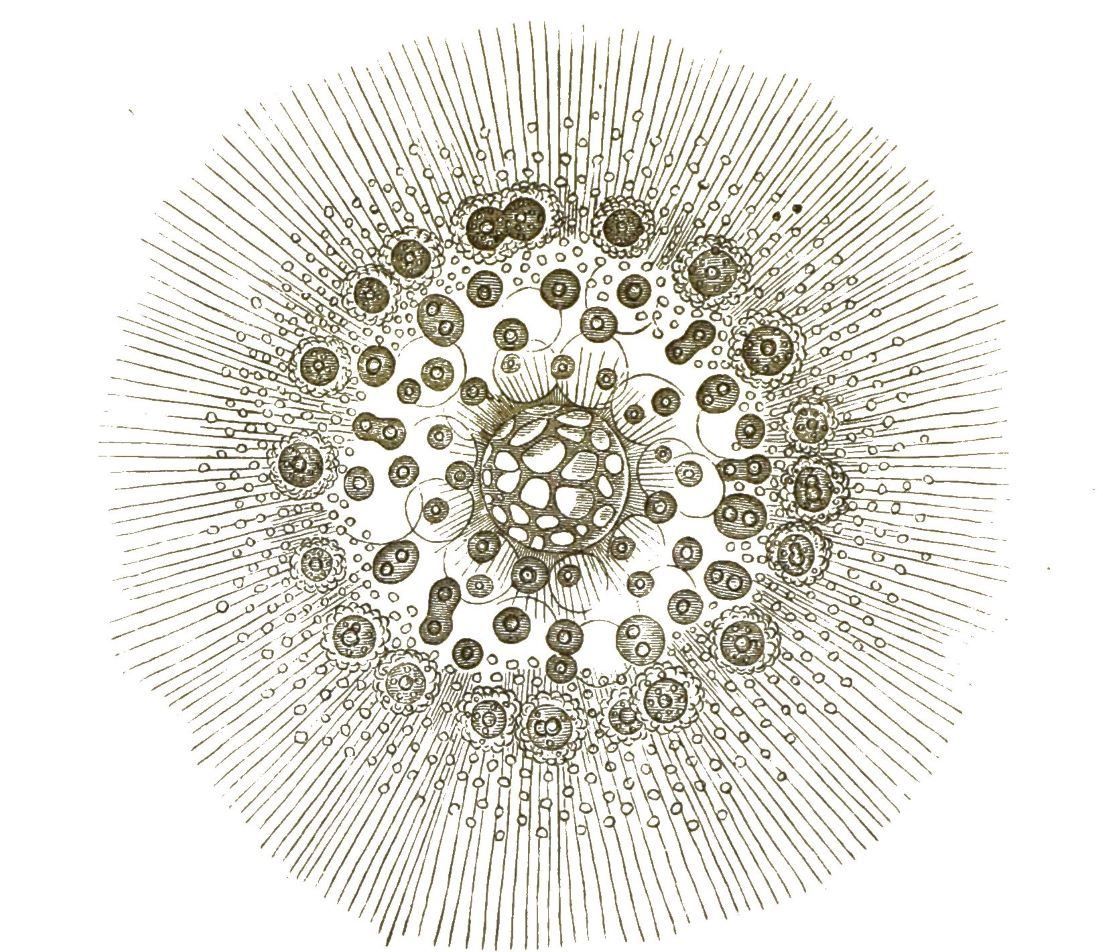
Fig. 28. Eine einzelne Kieselschale (stachelige Gitterkugel) von Collosphaera (spinosa).
Es giebt solche Gitterkugeln, die aus zwanzig im Centrum in einander gestemmten Stacheln zusammengesetzt sind; verästelte Querfortsätze der Stacheln, die in gleichem Abstande vom Centrum abgehen, setzen die Gitterschale zusammen (Dorataspis, Fig. 32). Den letzteren nahe verwandt sind die merkwürdigen Acanthometren (Fig. 33), ebenfalls mit 20 Stacheln, die nach einem bestimmten mathematischen Gesetze regelmässig vertheilt sind.
Fig. 29. Heliosphaera (actinota). Von der Gitterkugel strahlen zwischen den Pseudopodien zahlreiche Kieselstacheln aus; im Innern der Schale die Centralkapsel.
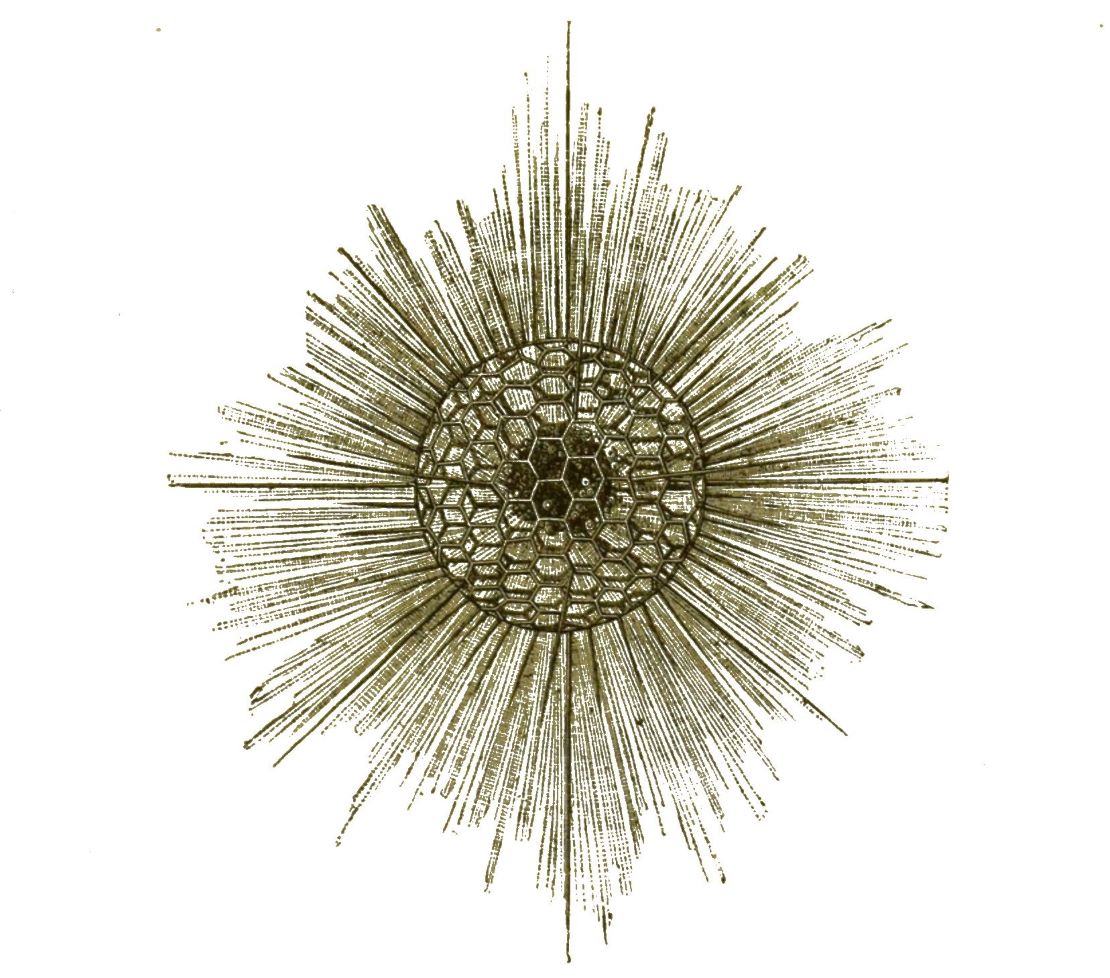
Fig. 30. Actinomma (asteracanthion). Die Kieselschale besteht aus drei concentrischen Gitterkugeln, welche durch sechs radiale Stäbe mit einander verbunden sind. Die äusseren Enden der letzteren bilden starke dreikantige Stacheln, und dazwischen stehen auf der Oberfläche zahlreiche, sehr feine borstenförmige Kieselstacheln.
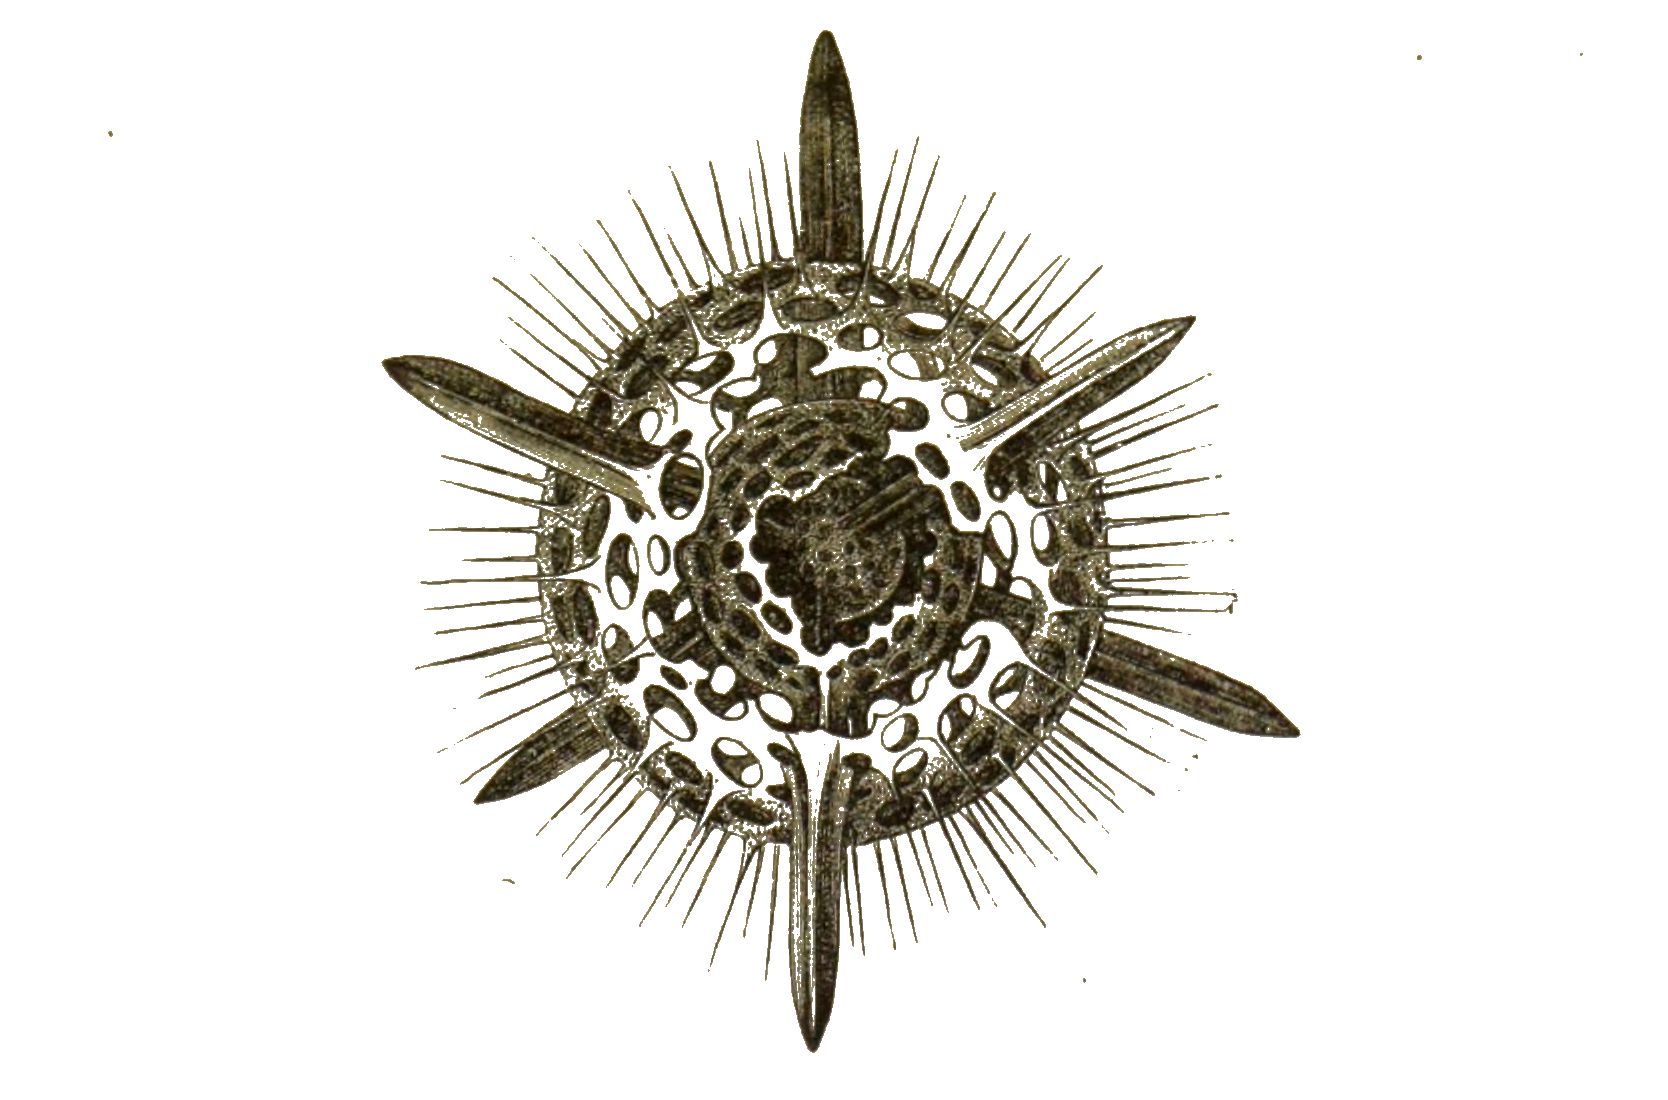
Fig. 31. Haliomma (Wyvillei). Die Kieselschale besteht aus zwei concentrischen Gitterkugeln, die durch zahlreiche radiale Stacheln verbunden sind. Zwischen beiden Schalen findet sich die Membran der Centralkapsel, so dass die eine innerhalb, die andere ausserhalb der letzteren liegt.
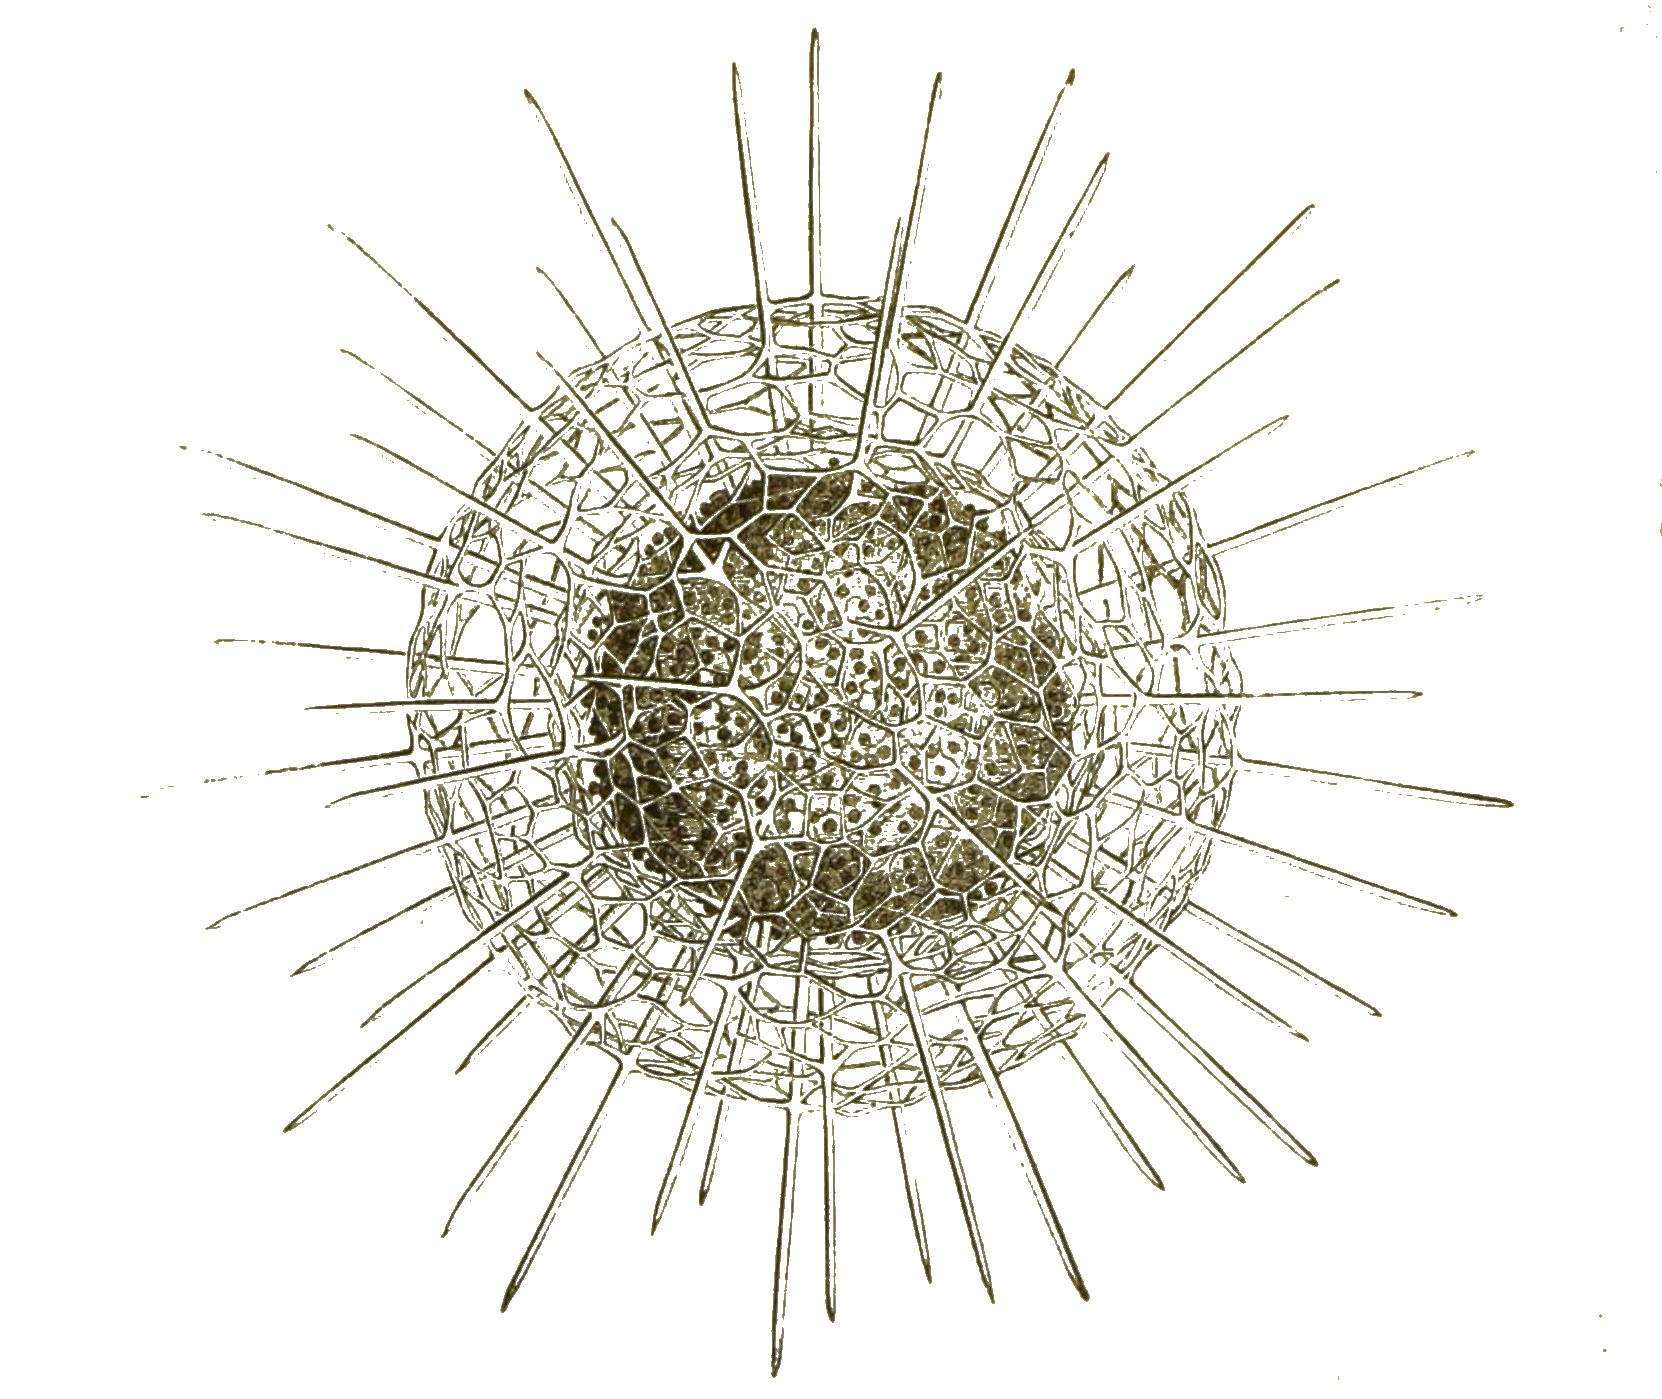
Fig. 32. Dorataspis (bipennis). Die Kieselschale wird durch die gabelförmigen Querfortsätze von zwanzig, regelmässig vertheilten Stacheln zusammengesetzt.
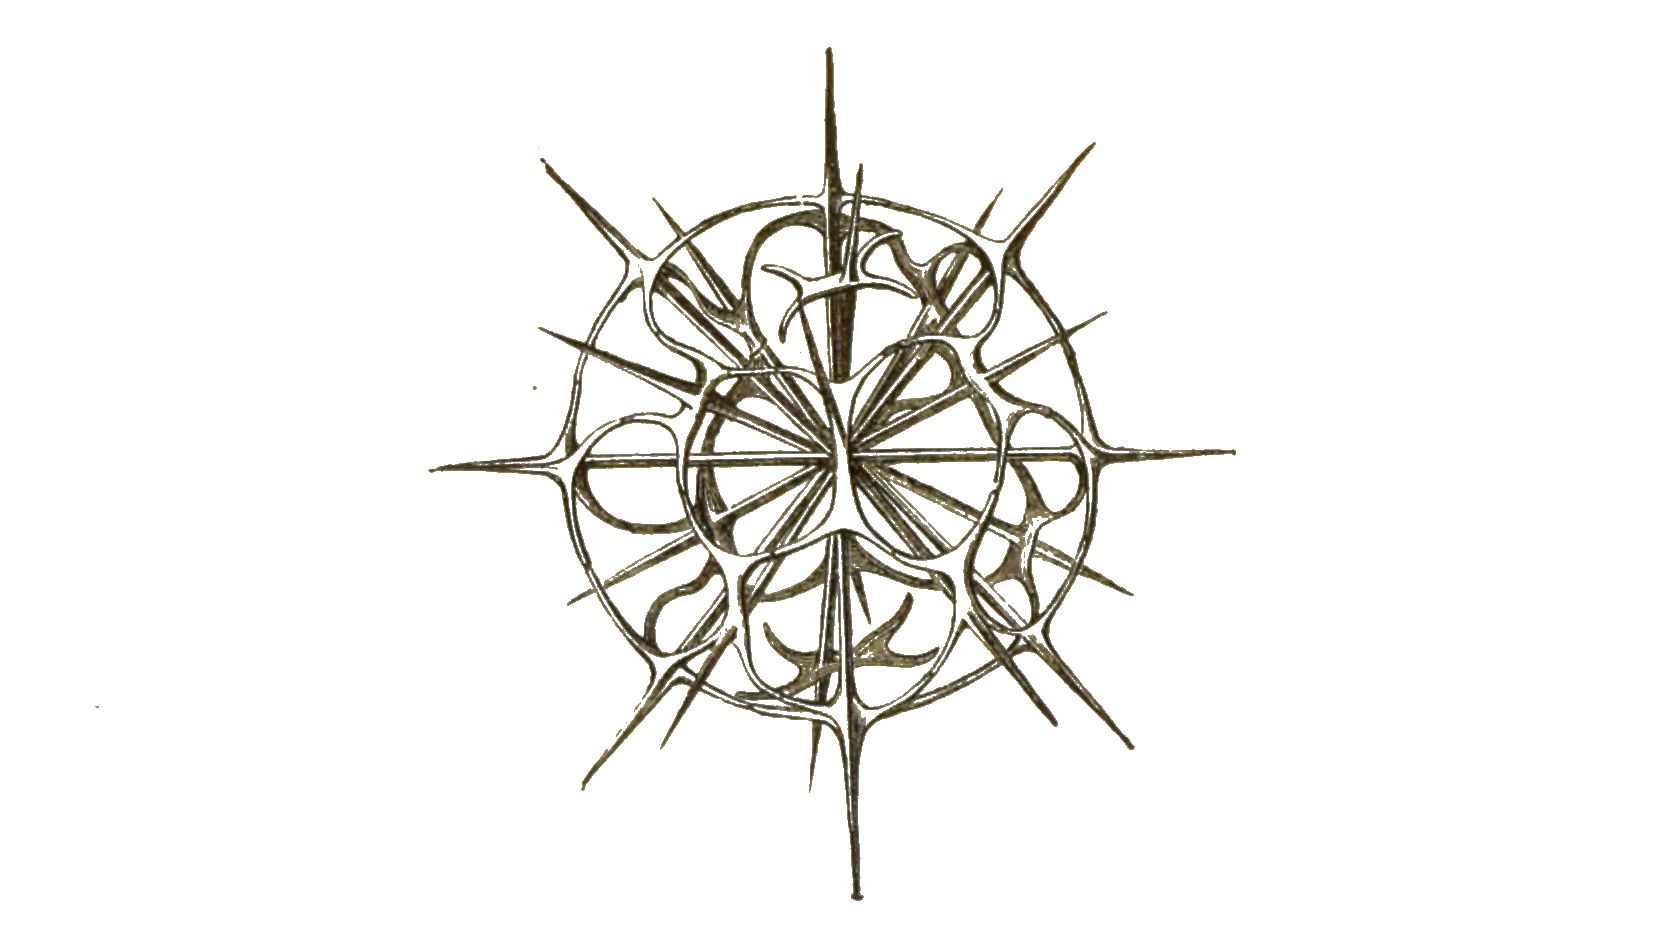
Fig. 33. Xiphacantha (Murrayana). Eine Acanthometra, deren 20 Stacheln kreuzförmige Querfortsätze tragen. Die Stacheln bilden 5 parallele Zonen von je 4 Stacheln, die gleichweit von einander abstehen.
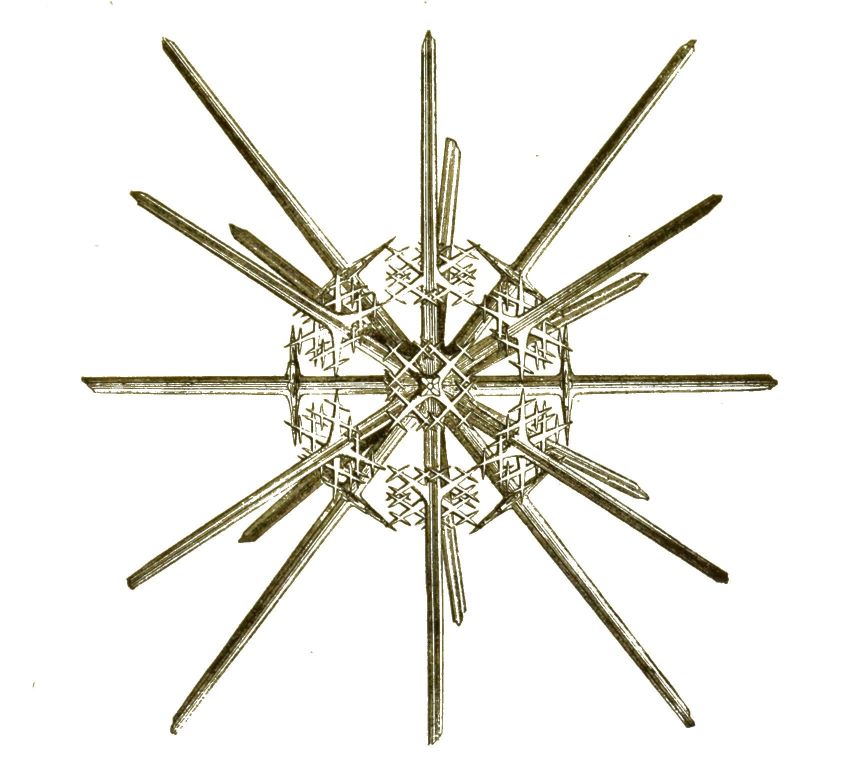
Bei noch andern Radiolarien ist die centrale Gitterkugel von einem lockern Kiesel-Schwammwerke umhüllt und mächtige dreikantige Stacheln mit spiralig gedrehten Kanten ragen daraus hervor (Spongosphaera, Fig. 34).
Eine andere, äusserst formenreiche Gruppe von Radiolarien, die Cyrtiden oder Helm-Radiolarien, bilden Kieselschalen von der Form eines Helmes (Fig. 35), einer Haube oder eines Körbchens, mit siebförmig durchlöcherter Wand (Podocyrtis, Fig. 36). Noch Andere gleichen einem Ordensstern (Astromma, Fig. 37), einer Sanduhr (Diploconus, Fig. 38), einem dreiseitigen Prisma (Prismatium, Fig. 39) u. s. w.
In der grossen Abtheilung der Acanthometren wird das Skelet stets aus zwanzig Kieselstacheln gebildet, welche im Centrum in einander gestemmt und nach einem sehr merkwürdigen mathematischen Gesetze vertheilt sind; dies entdeckte zuerst der grosse Johannes Müller, dem wir überhaupt die ersten genaueren Kenntnisse der Radiolarien verdanken.
Welche Bedeutung diese höchst mannigfaltigen, zierlichen und seltsamen Formen besitzen; wie das formlose Protoplasma der Radiolarien dazu kommt, sie zu bilden, — davon haben wir heute noch keine Ahnung.
Fig. 34. Spongosphaera (streptacantha). Neun dreikantige Stacheln ragen aus der kugeligen Centralkapsel hervor, welche von kieseligem Schwammgeflecht umhüllt ist und eine centrale Gitterschale einschliesst.
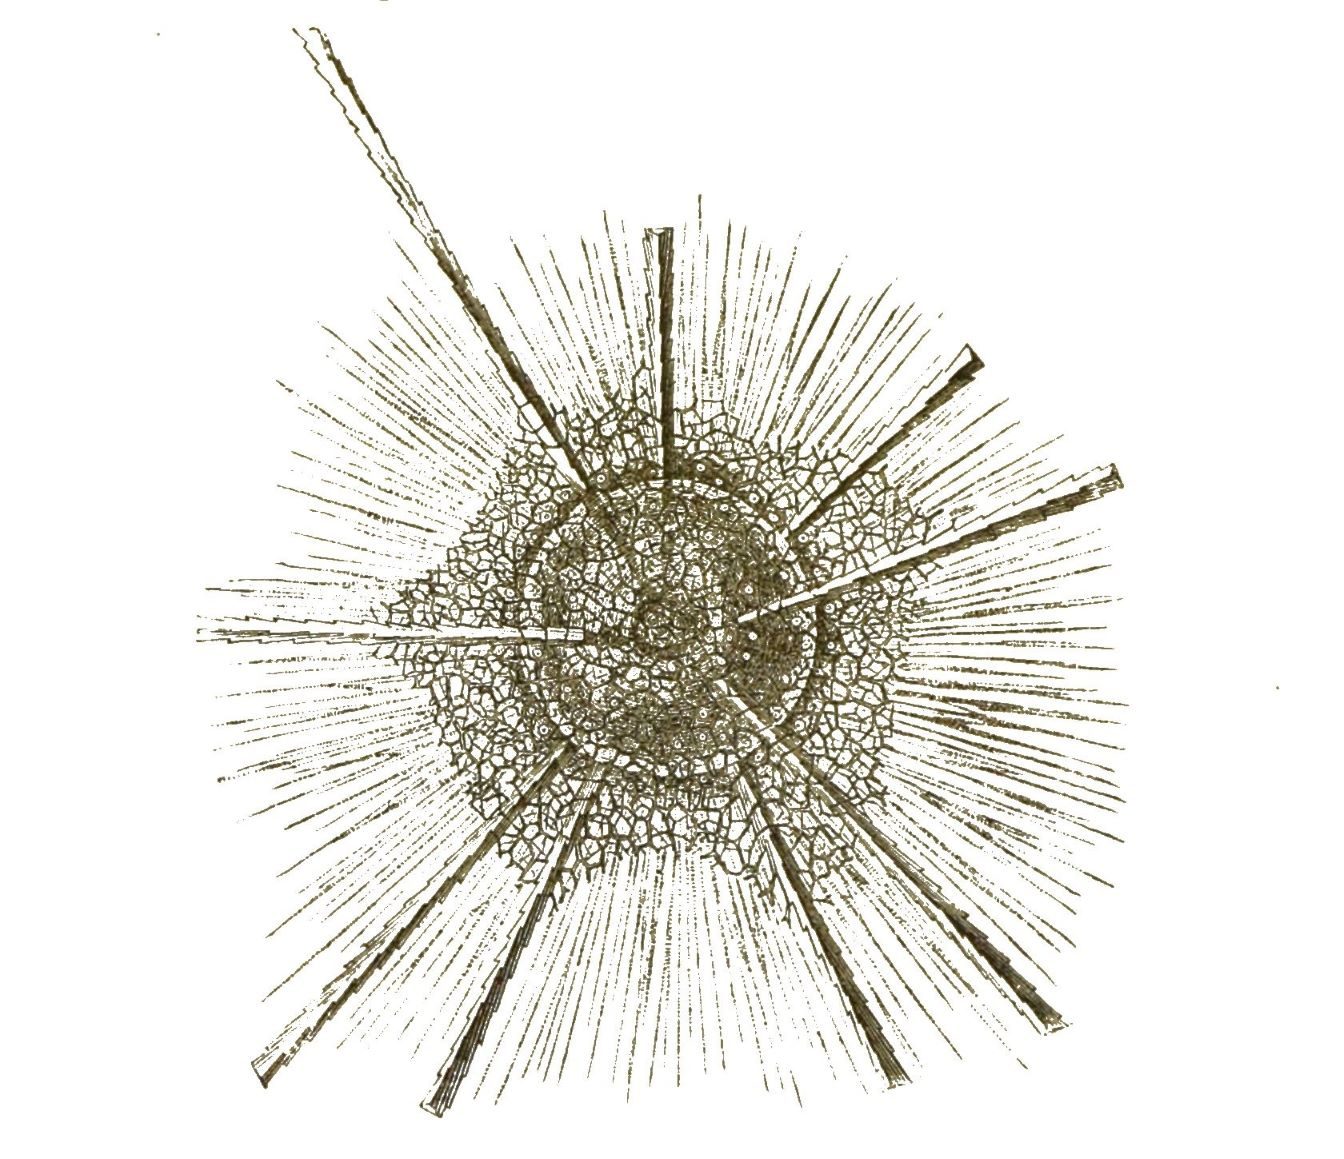
Neben den Thalamophoren und Radiolarien wird noch eine grosse Anzahl von andern Protisten zur Klasse der Wurzelfüssler gerechnet. Viele davon leben auch im süssen Wasser. Eines der häufigsten ist das niedliche sogenannte »Sonnenthierchen«, welches vor nun hundert Jahren (1776) vom Pastor Eichhorn in Danzig entdeckt und als »lebendiger Stern« beschrieben wurde (Actinosphaerium Eichhornii, Fig. 40).
Fig. 35. Dictyophimus (Challengeri). Helmförmige Gitterschale mit drei Füsschen und Gipfelstachel.
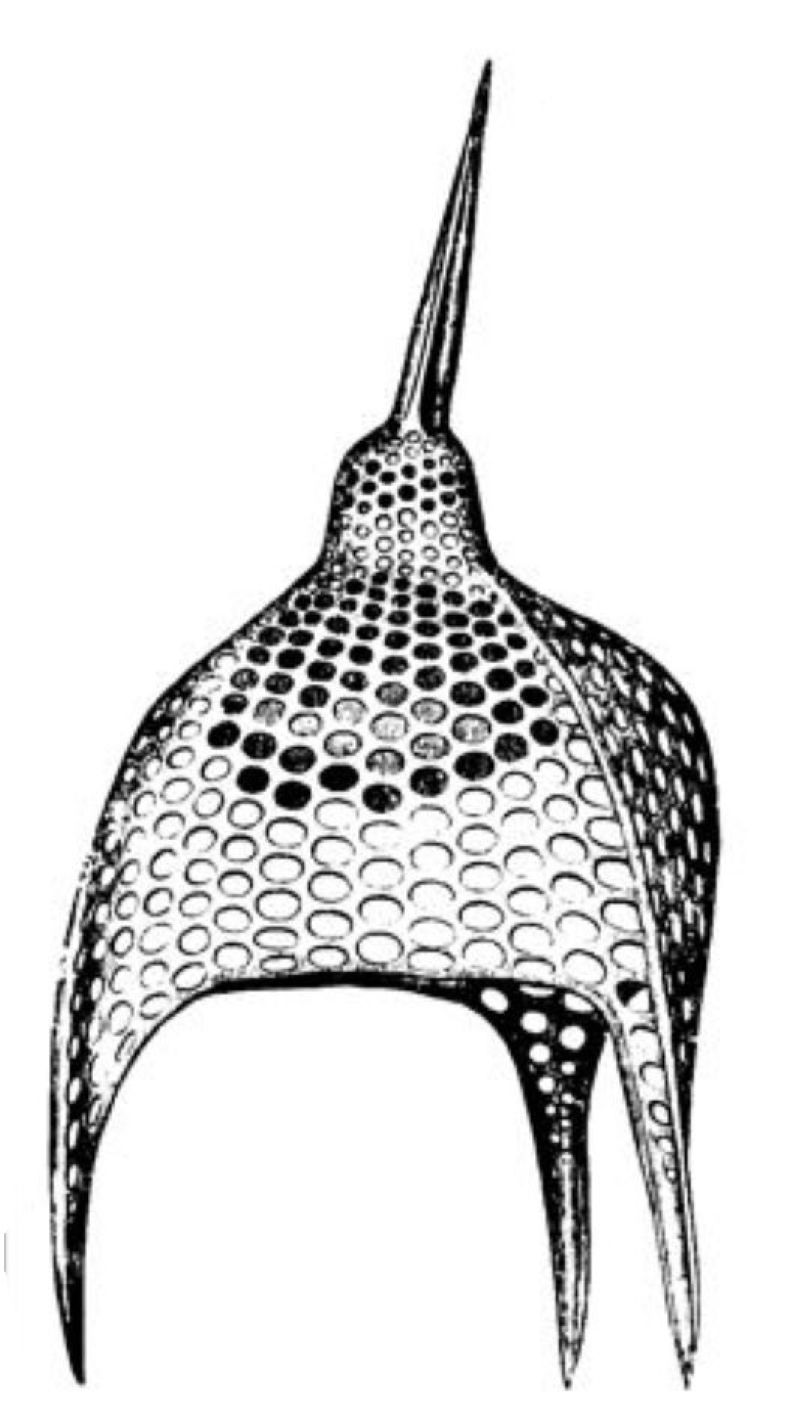
Fig. 36. Podocyrtis (Schomburgki). Die helmförmige Gitterschale steht auf drei Füsschen und trägt auf dem Gipfel einen Stachel; das Gitterwerk der drei Abtheilungen ist sehr verschieden. Fig. 37. Astromma (Aristotelis). Die schwammige Kieselschale hat die Form eines Ordenskreuzes.
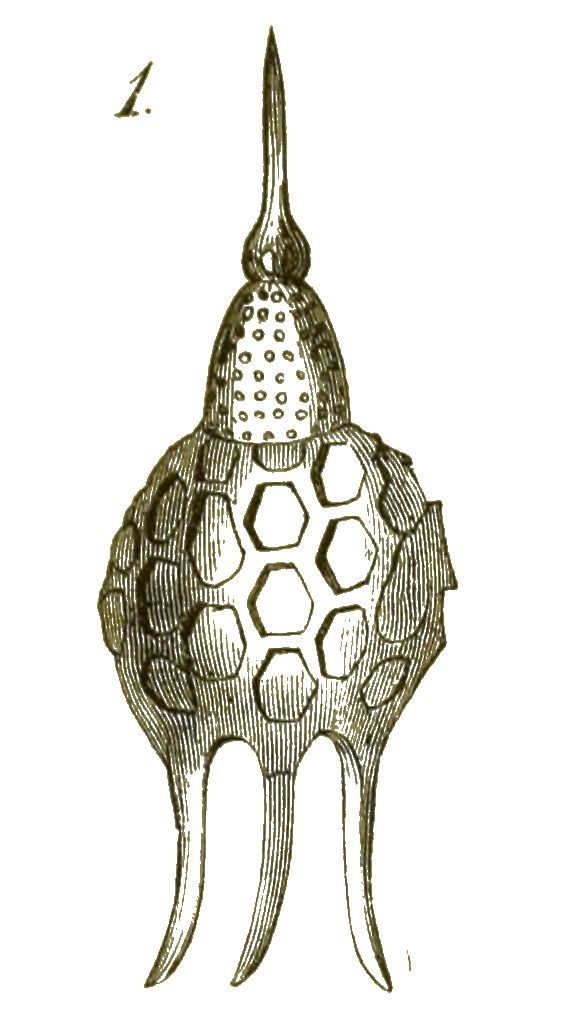
Fig. 38. Diploconus (fasces). Die Kieselschale gleicht einer Sanduhr, in deren Axe ein starker, an beiden Enden zugespitzter Stab steht. Fig. 39. Acanthodesmia (prismatium). Neun Kieselstäbe sind so verbunden, dass sie die Kanten eines dreiseitigen Prisma bilden. Im Centrum schwebt eine kugelige Centralkapsel, von gelben Zellen umgeben.
Fig. 40. Das vielzellige grosse Sonnenthierchen (Actinosphaerium Eichhornii). Die innere dunkle Markmasse (c) enthält, viele Zellkerne und einige Nahrungsbissen (d). Von der hellen, schaumigen Rindenschicht (b), welche eben einen neuen Nahrungsbissen (a) aufnimmt, strahlen zahlreiche Scheinfüsschen (e) aus. Fig. 41. Das einzellige kleine Sonnenthierchen (Actinophrys sol). Im Innern der strahlenden Protoplasma-Kugel liegt nur ein Zellkern (n). Eine contractile Blase tritt an der Oberfläche des Protoplasma vor (v)..
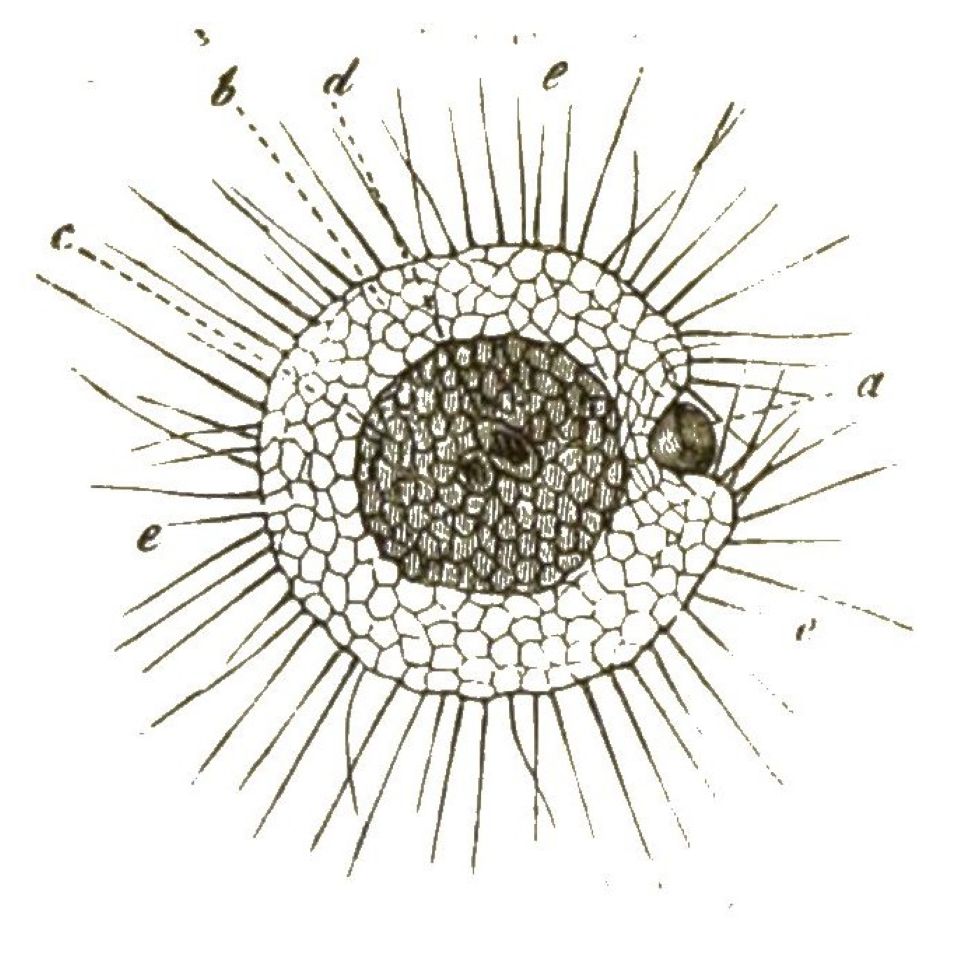
Es ist ein weiches, mit blossem Auge deutlich sichtbares, weiches Schleimkügelchen, von der Grösse eines kleinen Stecknadelknopfes, oft in Menge auf dem schlammigen Boden unserer Teiche und Gräben zu finden. In der Mitte des schleimigen und blasigen Protoplasma-Kügelchens liegen mehrere Zellkerne. Von der Oberfläche strahlen zahlreiche empfindliche und bewegliche Fäden oder Pseudopodien aus. Durch diese wird, wie bei den übrigen Wurzelfüsslern, die Nahrung aufgenommen. Die Vermehrung ist erst kürzlich entdeckt worden. Das Sonnenthierchen zieht dabei seine Fäden ein, umgiebt seinen kugeligen Körper mit einer Gallerthülle und zerfällt in viele einzelne Kugeln. Jede von diesen enthält einen Kern und schwitzt eine Kieselhülle aus, und jede dieser kieselschaligen Zellen wird später zu einem neuen Sonnenthierchen. Man kann dieselben aber auch künstlich vermehren. Man kann sie in mehrere Stücke zerschneiden und aus jedem Stückchen wird alsbald wieder ein selbständiges Wesen. Dasselbe gilt auch von vielen andern Protisten.
Während das grosse Sonnenthierchen oder Strahlenkügelchen (Actinosphaerium) einen nackten Rhizopoden darstellt, der viele Zellkerne enthält, also aus vielen vereinigten Zellen zusammengesetzt ist, zeigt uns dagegen ein anderer, sehr häufiger Süsswasserbewohner, das kleine Sonnenthierchen (Actinophris sol) den Organismus der Wurzelfüssler in seiner allereinfachsten Gestalt (Fig. 41), nämlich als eine nackte einfache Zelle mit einem einzigen Kern; von der Oberfläche desselben strahlen viele feine Fäden aus, und indem das Protoplasma an gewissen Stellen Wasser aufnimmt und wieder abgiebt, bildet es »contractile Blasen oder Vacuolen.«
Eine der merkwürdigsten Protistenklassen, die ebenfalls oft zu den Wurzelfüsslern gerechnet wird, sind die so genannten Schleimpilze oder Myxomyceten, von Anderen auch Pilzthiere oder Mycetozoen genannt. Schon dieser doppelte Name bezeichnet ihre zweifelhafte Protisten-Natur. Sie leben in zahlreichen verschiedenen Arten an feuchten Orten, im abgefallenen Laube der Wälder, zwischen Moos, auf faulendem Holze und dergl. Früher galten sie allgemein für Pflanzen, und zwar für Pilze, weil ihr reifer Fruchtkörper täuschend dem blasenförmigen Fruchtkörper der Gastromyceten oder Blasenpilze ähnlich ist (Fig. 43B). Dieser Fruchtkörper bildet kugelige oder länglich runde, oft auf einem Stiel festsitzende Blasen, meist von der Grösse eines Stecknadelknopfes oder eines Hanfkorns, bisweilen aber auch von mehreren Zoll Durchmesser. Die derbe äussere Hülle der Fruchtblasen umschliesst ein feines Mehl, das aus Tausenden von mikroskopischen Zellen besteht. Dies sind die Fortpflanzungszellen oder Sporen.
Während aber bei den Blasenpilzen, wie bei allen anderen echten Pilzen, sich aus diesen Sporen die characteristischen Pilzfäden oder Hyphen, lange dünne Fadenschläuche entwickeln, entstehen daraus bei den Myxomyceten ganz andere Keime. Aus der festen Zellmembran einer jeden Spore schlüpft nämlich, sobald diese ins Wasser gelangt, eine nackte, lebhaft bewegliche Zelle aus. (Fig. 42, 1–3). Anfangs schwimmt diese Zelle mittelst eines langen Geisselfadens, den sie peitschenförmig nach Art der Geisselschwärmer hin und her schwingt, frei im Wasser umher (Fig. 42, 4, 5). Später sinkt sie zu Boden und nimmt die Form einer Amoebe an (Fig. 42, 6, 7). Ganz gleich einer echten Amoebe kriecht sie umher, indem sie veränderliche Fortsätze ausstreckt und wieder einzieht. Auch nimmt sie nach Art der Amoeben ihre Nahrung auf.
Fig. 42. Keimung einer Myxomycete (Physarum album). 1. Eine Keimzelle oder Spore. 2. Aus der dunkeln Hülle der Spore tritt die nackte Zelle hervor (3). Diese verwandelt sich in eine Geisselzelle (4, 5) und darauf in eine Amoebe (6, 7). Mehrere Amoeben fliessen zusammen (8, 9, 10, 11) und bilden so ein Plasmodium (12).
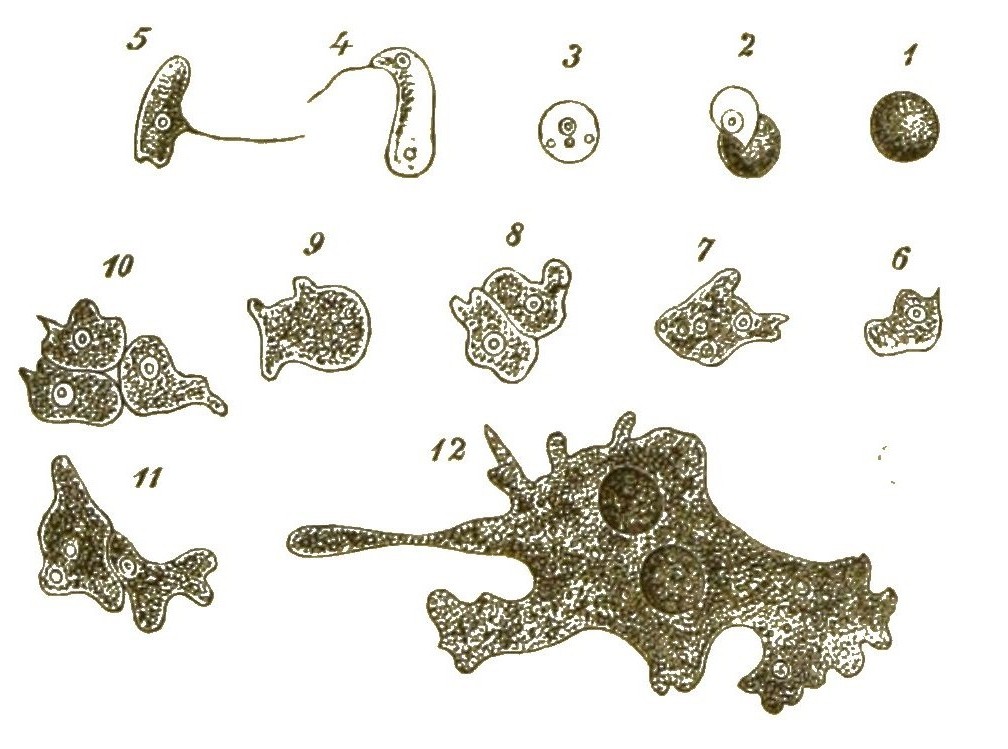
Viele solcher amoeboiden Zellen können nun späterhin zusammenfliessen und mit einander verwachsen (Fig. 42, 8–11). Dadurch entstehen grosse Protoplasma-Netze mit vielen Kernen (Syncytien, Fig. 42, 12). Indem ihre Kerne sich auflösen, werden sie zu kernlosen Plasmodien (Fig. 43A). Solche grosse Plasmodien, oft ganz colossale Protoplasma-Netze, kriechen gleich einem riesigen Rhizopoden langsam umher und ändern beständig ihre unbestimmte Gestalt.
Fig. 43. Myxomyceten. A. Ein grösseres Plasmodium (von Didymium leucopus). B. Eine reife Frucht (von Arcyria incarnata). C. Dieselbe, nachdem die Wand (p) geplatzt und das Haarfaden-Geflecht (Capillitium, cp) hervorgetreten ist.
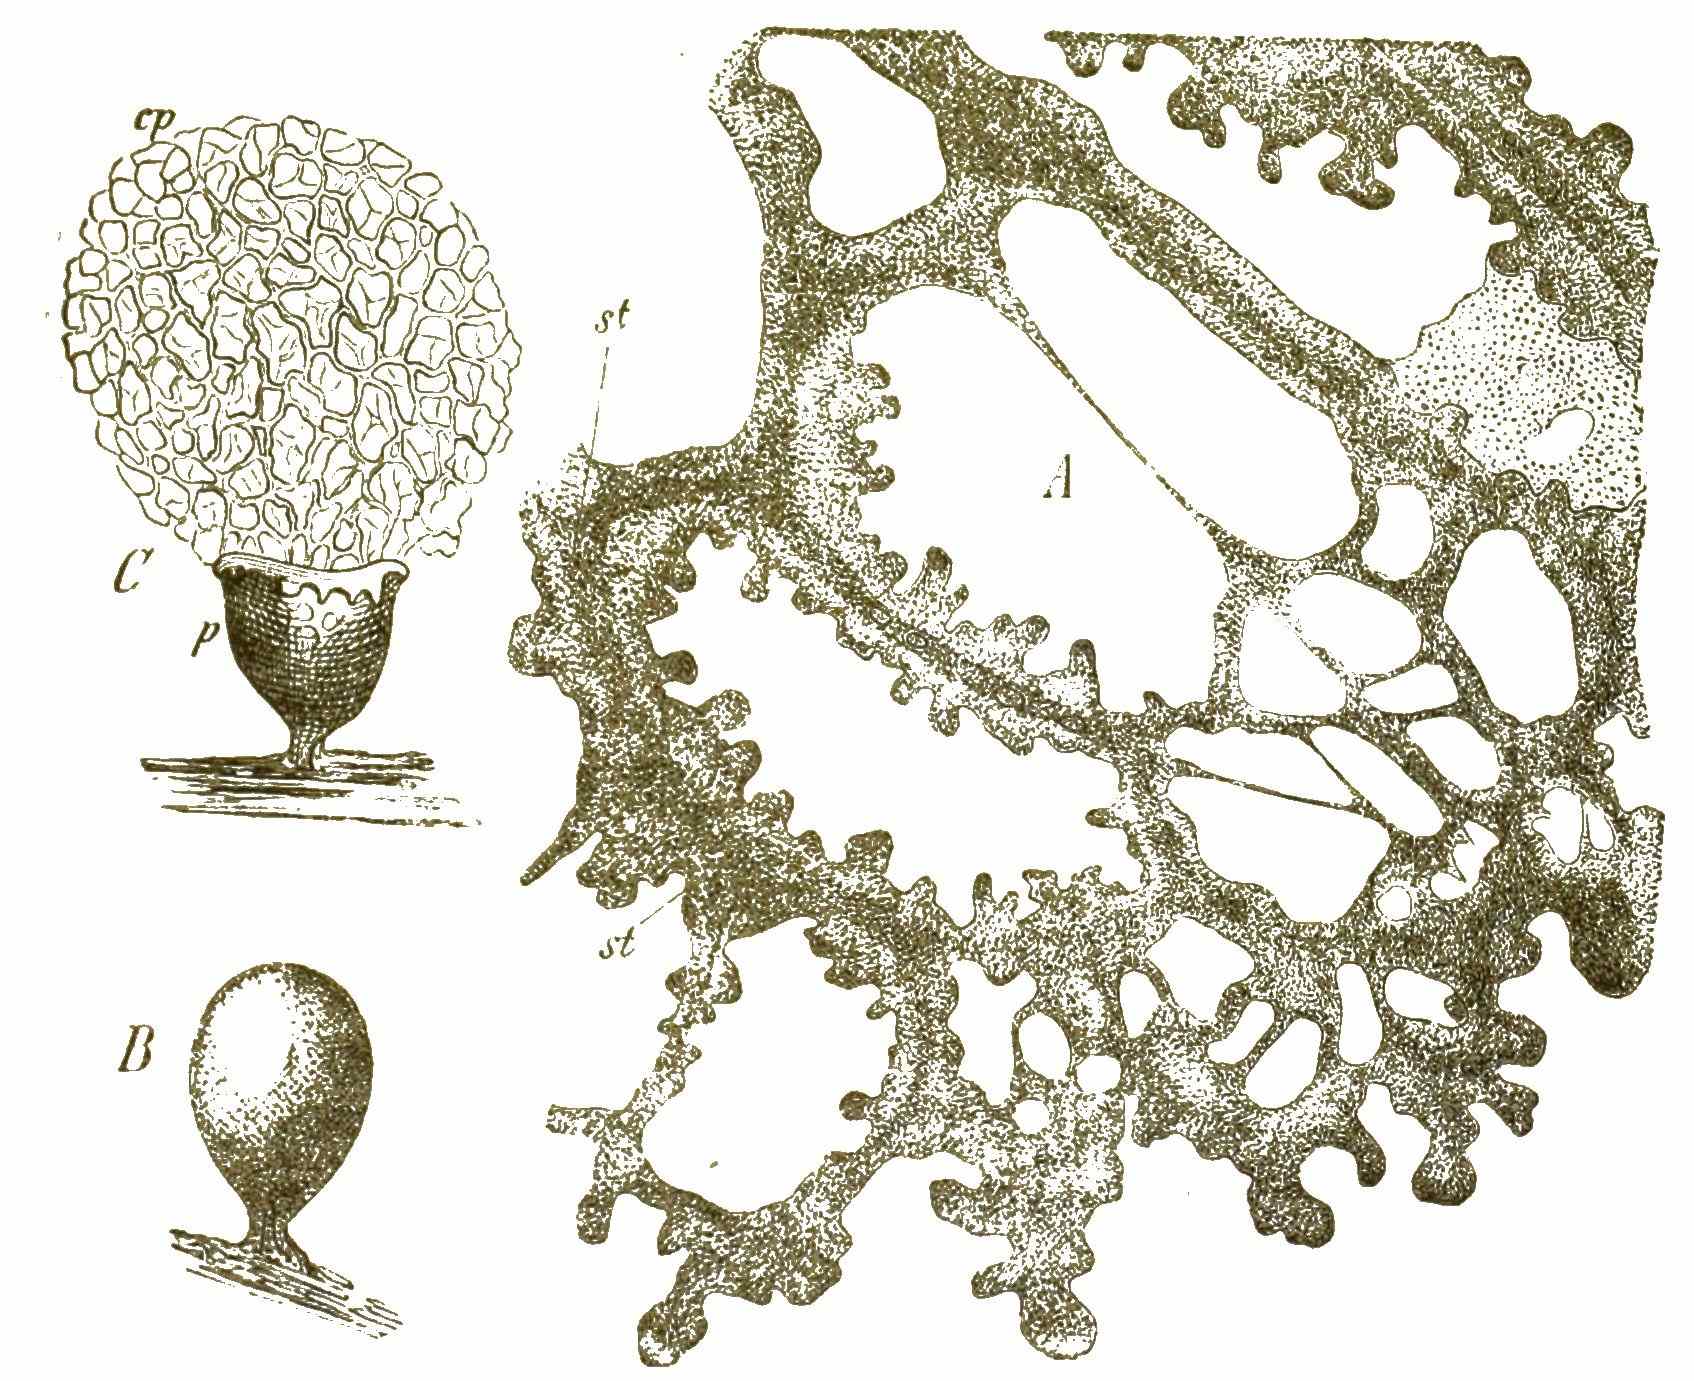
Zu den grössten Plasmodien gehören die glänzend gelben (oft mehrere Fuss grossen) Protoplasma-Geflechte von Aethalium, welche die Lohbeete der Gerbereien durchziehen und unter dem Namen »Lohblüthe« allen Gerbern bekannt sind. Haben die Plasmodien durch Wachsthum und Nahrungsaufnahme eine gewisse Grösse erreicht, so ziehen sie sich auf einen kugeligen, birnförmigen oder kuchenförmigen Haufen zusammen, umgeben sich mit einer Hülle und das ganze Protoplasma zerfällt in zahllose kleine Sporen, zwischen welchen sich meistens (jedoch nicht immer) ein Geflecht von äusserst feinen Haarfäden ausbreitet (Capillitium, Fig. 43cp). Wenn diese Fruchtkörper (Fig. 43B) ganz reif sind, platzt die äussere Hülle (Fig. 43C); das Capillitium wird vorgetrieben und das feine Sporen-Pulver zerstreut.
Obgleich nun diese blasenförmigen Fruchtkörper mit ihrem Sporenpulver und Capillitium die grösste Aehnlichkeit mit denjenigen von gewissen echten Pilzen besitzen, haben sie doch mit diesen letzteren keine Spur von Verwandtschaft, wie ihre gänzlich verschiedene Entwickelung zeigt. Will man überhaupt die Myxomyceten in nähere Beziehung zu irgend einer anderen Organismen-Gruppe bringen, so bleiben nur die Rhizopoden übrig. In der That gleichen die kriechenden netzförmigen Plasmodien der Myxomyceten so sehr gewissen nackten Wurzelfüsslern (Lieberkühnia), dass man sie gar nicht unterscheiden kann. Es giebt kein passenderes Object, um sich die merkwürdigen Strömungen in dem kriechenden nackten Protoplasma unmittelbar vor Augen zu führen, als die Plasmodien der gemeinen Lohblüthe, die im Frühjahr auf den Lohbeeten der Gerbereien sehr leicht zu haben ist und die Lohe in Form von gelben, rahmähnlichen Schleimnetzen durchzieht. Bringt man ein wenig von diesem gelben Protoplasma in einer feuchten Kammer auf ein Glasplättchen, so ist letzteres schon nach 10–20 Stunden von einem feinen Faden-Netz übersponnen, in dessen Fäden man unter dem Mikroskope die lebhafte Protoplasma-Strömung prächtig verfolgen kann.
Im Anschluss an die Myxomyceten müssen wir hier auch auf die echten Pilze (Fungi) einen Blick werfen, mit welchen man die ersteren früher irrthümlich vereinigt hat. Die echten Pilze, welche in so zahlreichen, ansehnlichen und mannigfaltigen Formen in unsern Wäldern und Feldern, auf Pflanzen- und Thierkörpern schmarotzend leben, werden oft auch als Schwämme bezeichnet. Sie haben aber mit den echten Schwämmen oder Spongien gar nichts zu thun; denn diese letzteren, wozu der gewöhnliche Badeschwamm gehört, und welche sämmtlich — mit einziger Ausnahme des Süsswasser-Schwammes, Spongilla, — im Meere leben, sind echte Thiere und besitzen ein Darmrohr mit Mundöffnung u. s. w. Die Pilze dagegen bilden eine gänzlich verschiedene und sehr eigenthümliche Classe von niederen Organismen. Zwar gelten sie heute noch allgemein als echte Pflanzen. Allein in den wichtigsten anatomischen und physiologischen Beziehungen weichen sie so sehr von allen übrigen Pflanzen ab, dass es wohl richtiger ist, sie als eine selbständige Classe von Protisten zu betrachten. Ernährung und Stoffwechel der Pilze ist thierisch, nicht pflanzlich. Sie bilden kein Protoplasma, kein Chlorophyll, kein Stärkemehl, keine Cellulose, wie die echten Pflanzen. Vielmehr bedürfen sie, wie die Thiere, zu ihrer Existenz und Ernährung vorgebildetes Protoplasma, welches sie aus dem Körper anderer Organismen, lebender oder todter Thiere, Pflanzen und Protisten, entnehmen.
Die Fortpflanzung der Pilze ist meistens ungeschlechtlich, und auch da, wo sie geschlechtlich erscheint, ganz eigenthümlich. Das Form-Element, aus dem sich der Körper aller Pilze aufbaut, ist nicht eine echte, kernhaltige Zelle, wie bei allen Thieren und Pflanzen, sondern eine fadenförmige, kernlose Cytode, die sogenannte Hyphe oder der »Pilzfaden.« Durch seitliche Sprossung und fortgesetzte Theilung in einer Axe, bilden sie verzweigte gegliederte Fäden, und zahllose solche Pilzfäden, in langen Ketten an einander gereiht, sich verästelnd und netzartig verbindend, setzen alle Organe der Pilze zusammen. Der bekannte gestielte »Hut« oder Schirm unserer grossen Hutpilze, z. B. vom Champignon (Fig. 44) ist blos der Fruchtkörper, welcher sich zur Zeit der Reife aus einem unscheinbaren Fadengeflechte entwickelt, dem Mycelium (Fig. 44, I m); die strahligen, blattförmigen Rippen, welche sich an der Unterseite des regenschirmähnlichen Hutes bilden, sind von der Fruchthaut (Hymenium) überzogen, in welcher sich ungeschlechtlich die Fortpflanzungs-Cytoden (»Sporen«) bilden. Je genauer man die eigenthümliche Anatomie und Keimungsgeschichte der Pilze verfolgt, je unbefangener man sie vergleicht, desto mehr überzeugt man sich, dass diese merkwürdigen Organismen keine echten Pflanzen sind, sondern eine ganz selbständige Classe von neutralen Protisten darstellen.
Dasselbe gilt von der formenreichen Classe der Kieselzellen (Diatomeae oder Bacillariae), die auch gewöhnlich zu den Pflanzen gerechnet werden. Diese zierlichen kleinen Organismen bevölkern in ungeheuren Massen die süssen und salzigen Gewässer unseres Erdballs. In grossen Mengen angehäuft, bilden sie gewöhnlich einen gelben oder gelbbraunen Schleim, der Steine, Wasserpflanzen u. s. w. überzieht. Bald sind die Diatomeen einzeln lebende Einsiedlerzellen, bald Colonien oder Gesellschaften (Coenobien), welche aus vielen gleichartigen, locker verbundenen Zellen zusammengesetzt erscheinen.
Fig. 44. Ein Champignon, aus der Ordnung der Hutpilze (Hymenomycetes). A. Das Fadengeflecht (Mycelium), aus verästelten und netzförmig verbundenen Reihen von Pilzfäden (Hyphen) gebildet (m). Aus dem Mycelium sprossen solide birnförmige Fruchtkörper hervor (I), in welchen sich ein ringförmiger Luftraum bildet (II, III, l). Unterhalb sondert sich der Stiel (IV, st), oberhalb der Schirm des Hutes (h), von welchem die Hymenium-Rippen in den Luftraum hineinwachsen (V, l): der untere Boden des Luftraums platzt später und hängt als Schleier (Velum) vom Rande des Hutes herab.
Viele Diatomeen sitzen fest; die meisten aber bewegen sich in ganz eigenthümlicher Weise, langsam schwimmend oder fortrutschend, im Wasser umher. Die Organe dieser Ortsbewegung sind noch gänzlich unbekannt, vielleicht feinste Wimperreihen.
Fig. 45. Eine Diatomee oder Bacillarie (Surirella dentata). Die Schachtelzelle ist vom Rande gesehen, so dass man sieht, wie die beiden Schalenklappen (s u. d) übereinander greifen, gleich einer Schachtel (s) und ihrem Deckel (d). In der Mitte der Kern (n). p Protoplasma.
Das Characteristische an dem Zellenkörper der Diatomeen ist die eigenthümliche Kieselschale, in welcher ihr Zellenleib eingeschlossen ist. Diese Schale ist aus zwei Hälften zusammengesetzt, welche sich zu einander genau so verhalten, wie eine Schachtel zu ihrem Deckel (Fig. 45). Die kernhaltige Zelle, welche in dieser Schachtel lebt, theilt sich in zwei Hälften, und jede Hälfte bildet sich zu ihrem Schachteldeckel eine neue Schachtel. Dieser Process wiederholt sich mehrfach, wobei natürlich jede folgende Generation kleiner wird. Schliesslich aber entsteht eine Generation, welche beide Schalenhälften abwirft, wieder bis zur Grösse der ersten, grössten Generation heranwächst, und sich nun mit einer neuen Kieselschachtel erster Grösse umgiebt. Wegen der unendlich mannigfaltigen und zierlichen Gestalt dieser Kieselschale, sowie wegen ihrer äusserst feinen Sculptur, sind die Diatomeen sehr beliebte Unterhaltungs-Objecte für mikroskopischen Formgenuss. Wenn sich die Kieselschalen der todten Diatomeen massenhaft auf dem Grunde der Gewässer ansammeln und zu Stein verkitten, können sie ganze Gebirgsschichten zusammensetzen, so z. B. den Polirschiefer, das Bergmehl u. s. w.
Während die meisten, bisher von uns betrachteten Protisten-Gruppen grosse und formenreiche Classen darstellen, giebt es nun noch eine Anzahl von kleineren, isolirten, bisweilen nur durch eine oder wenige Formen repräsentirten Protisten, deren Einreihung in das System sehr schwierig ist. Dies gilt z. B. von den sonderbaren Labyrinthuleen. Gesellschaften von locker verbundenen, einfachen, spindelförmigen, gelben Zellen, die in einer eigenthümlichen Fadenbahn umherrutschen. Eine andere Gruppe, interessant wegen ihrer Mittelstellung zwischen verschiedenen Protisten-Classen, bilden die Catallacten, durch die Gattungen Synura und Magosphaera repräsentirt. Sie bilden schwimmende Gallertkugeln, zusammengesetzt aus einer Anzahl birnförmiger gleichartiger Zellen, welche mit ihren spitzen inneren Enden im Centrum der Gallertkugel vereinigt sind. Später lösen sich diese Zell-Gesellschaften oder Coenobien auf. Die einzelnen isolirten Zellen schwimmen noch eine Zeit lang selbständig umher und können jetzt mit Ciliaten verwechselt werden. Dann aber sinken sie auf den Meeresboden nieder und verwandeln sich in Amoeben-ähnliche Zellen. Gleich echten Amoeben kriechen diese umher, fressen, wachsen und kapseln sich schliesslich ein; der Zellenkörper zieht sich kugelig zusammen und umgiebt sich mit einer Gallerthülle. Innerhalb derselben theilt sieh die Zelle später wiederholt, in 2, 4, 8, 16, 32 Zellen u. s. w. Diese werden birnförmig, erhalten bewegliche Wimpern und verbinden sich wieder zu einer Flimmerkugel. Nun dreht sich die Kugel rotirend um ihren Mittelpunkt, sprengt ihre Hülle und schwimmt wieder frei in der Form umher, von welcher wir ausgegangen sind (Fig. 46). Das Interesse dieser merkwürdigen Protisten liegt also weniger in besonderen Eigenthümlichkeiten, als vielmehr in der neutralen Mittelstellung, welche sie zwischen Amoeben, Infusorien und Volvocinen einnehmen, und wodurch sie diese verschiedenen Protisten-Classen verknüpfen. Wir nennen sie daher »Mittlinge oder Vermittler« (Catallacta).
Fig. 46. Magosphaera (planula), eine schwimmende Flimmerkugel von der norwegischen Küste. A von der Oberfläche, B im Durchschnitt.
Werfen wir einen vergleichenden Rückblick auf alle bisher betrachteten Protisten-Classen, so sehen wir, dass darin die organische Zelle bald ganz selbständig auftritt, und als Einsiedler-Zelle (Monocyta) den ganzen Organismus repräsentirt, bald mit ihresgleichen sich zu lockeren Gesellschaften verbindet und einfache Zellen-Gemeinden oder Zellen-Horden (Coenobia) darstellt. Nun ist aber hiermit keineswegs die tiefste Stufe der Organisation erschöpft, welche uns die organische Welt darbietet. Vielmehr treffen wir noch unterhalb dieser einzelligen Protisten jene niedrigste und unvollkommenste Classe von Organismen an, die wir als Moneren bezeichnen. (Fig. 47, 48).
Fig 47. Protamoeba (primitiva), ein Moner mit lappenförmigen Pseudopodien, gleich einer Amoebe. a kriechend, b in Theilung begriffen, c in zwei Hälften getheilt.
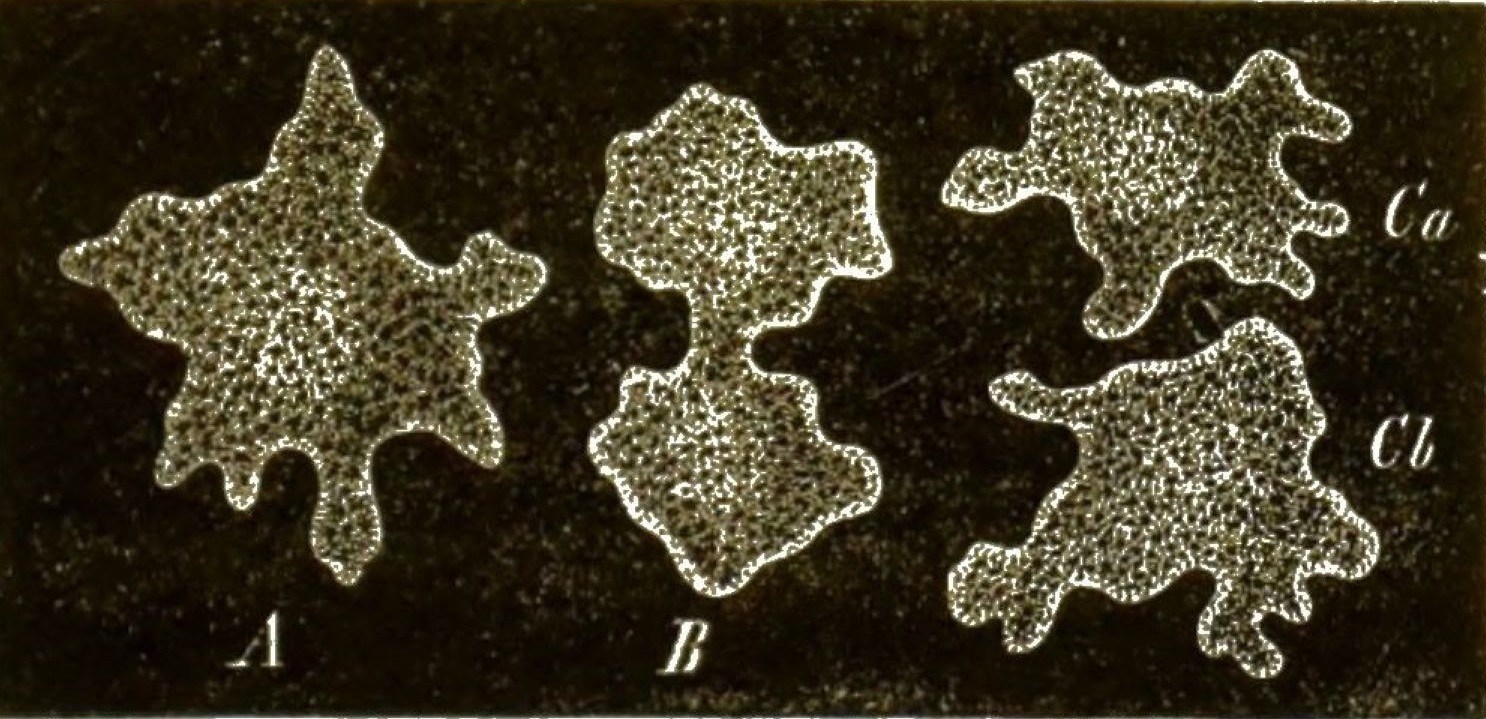
Da wir diese in dem nachstehenden Anhange (S. 68–85) zum Gegenstande einer besonderen Besprechung machen werden, wollen wir hier nur ganz kurz die wichtigsten Punkte hervorheben, welche den Moneren ihre hohe Bedeutung für die Entwicklungslehre verleihen.
Die Moneren sind wahre »Organismen ohne Organe«. Ihr ganzer lebendiger Leib besteht in völlig entwickeltem Zustande nur aus einem ganz einfachen Protoplasma-Stückchen, welchem selbst der Kern, der Character der echten Zelle, noch fehlt. Bezüglich ihrer Bewegungen gleichen diese denkbar einfachsten Organismen bald den Amoeben (Fig. 47), bald den Wurzelfüsslern(Fig. 48), bald den Geisselschwärmern.
Fig. 48. Protomyxa aurantiaca, ein Moner mit wurzelförmig verästelten fadenartigen Pseudopodien, gleich einem Rhizopoden. (Fig. 50).
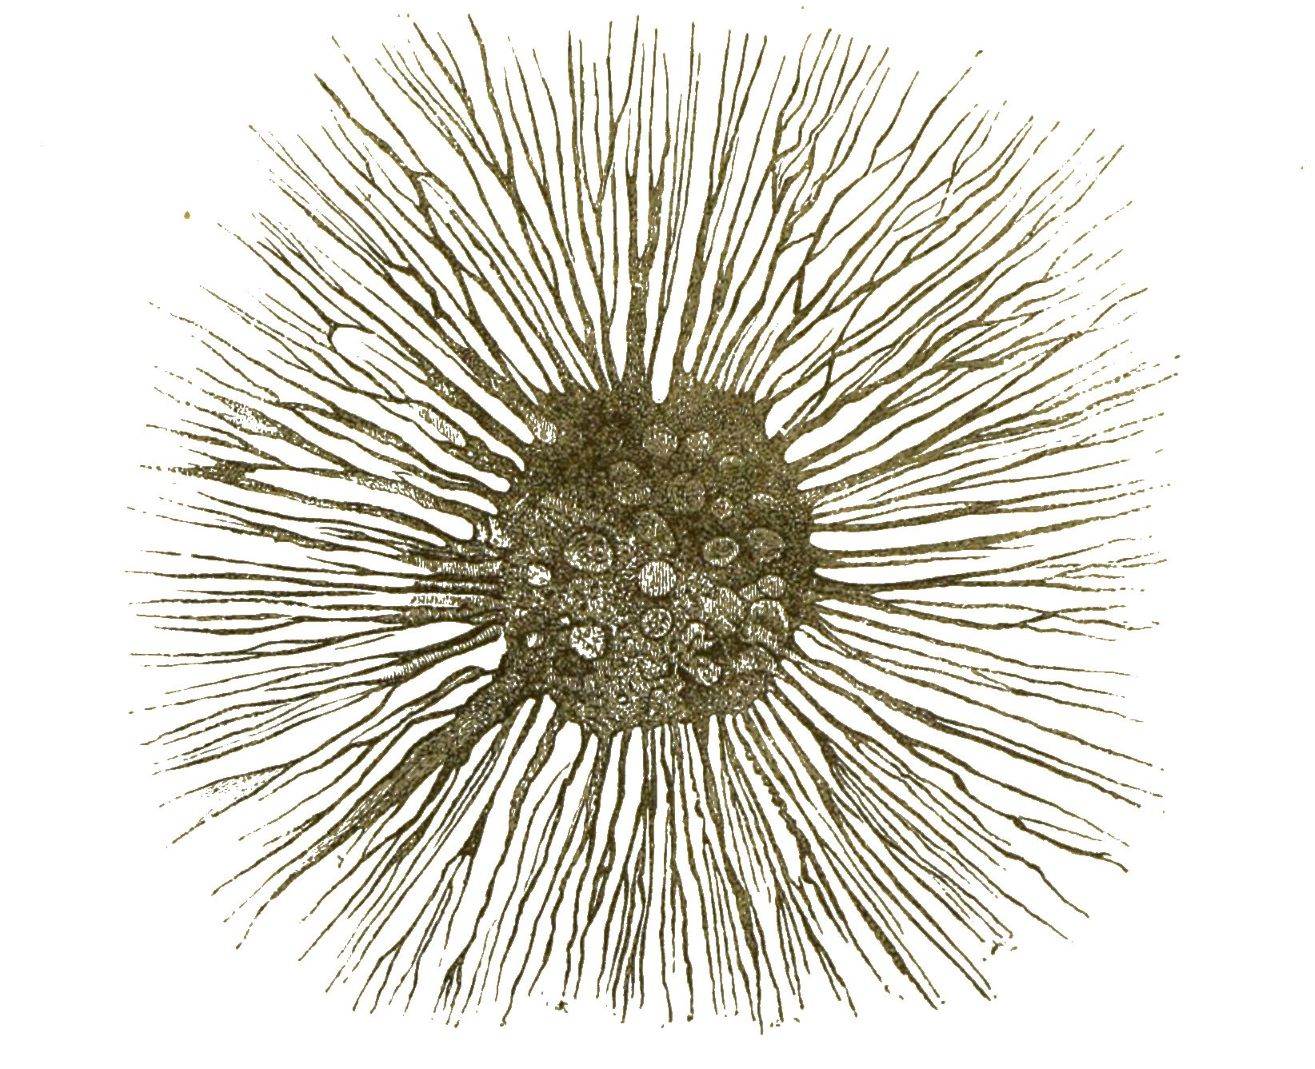
Fig. 49. Bathybius (Haeckelii). Ein Plasmodium aus den Tiefen des Oceans. Die verästelten Plasson-Ströme, durch deren Verbindung das Netz entsteht, ändern sich beständig.
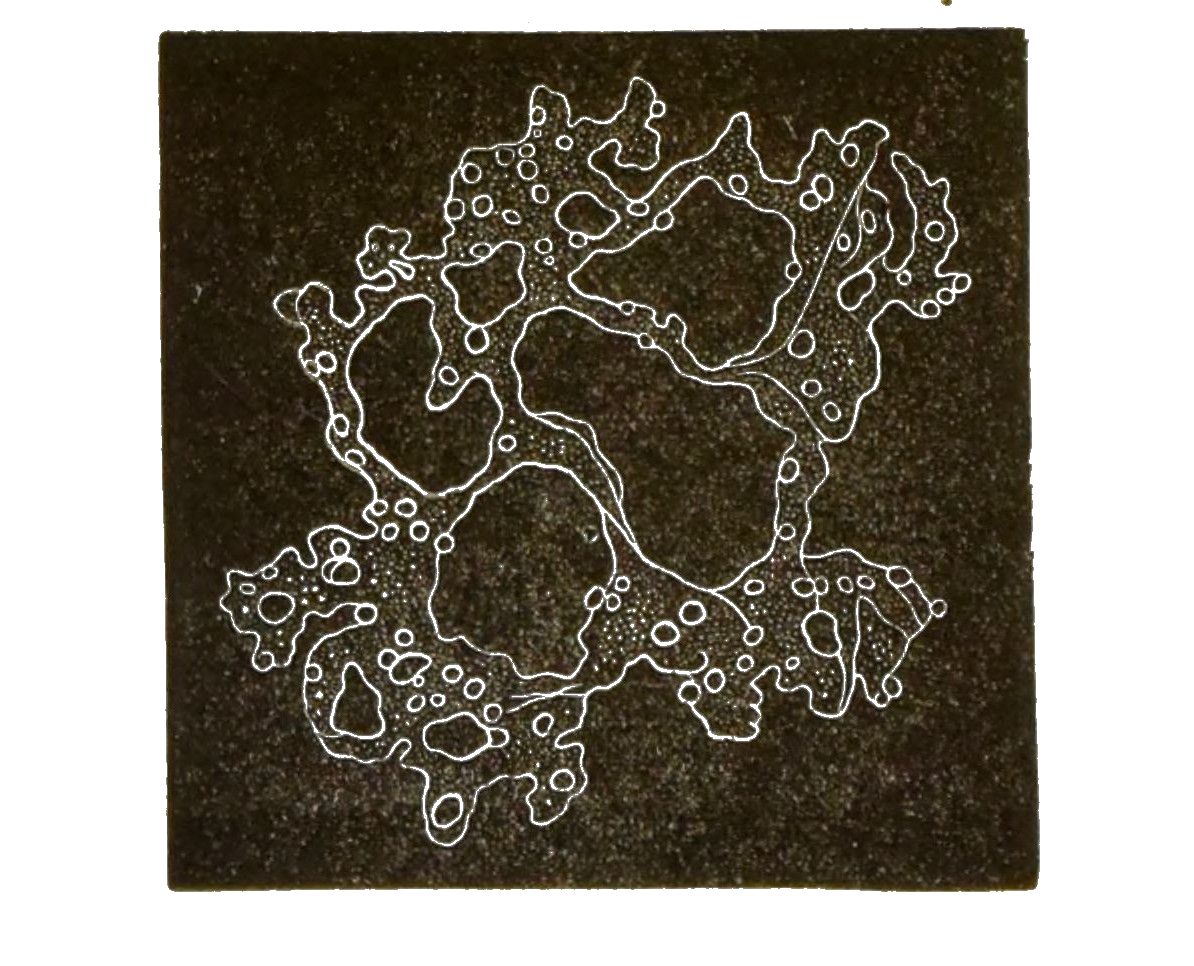
Sie vermehren sich in einfachster Weise durch Theilung. Von der grössten theoretischen Bedeutung sind sie für die dunkle Frage von der ersten Entstehung des Lebens auf unserer Erde. Denn nur Moneren können im Beginn des organischen Lebens auf unserm Planeten durch Urzeugung entstanden sein; nur Moneren können die ältesten Stammältern aller übrigen Organismen sein. Gerade in dieser Beziehung sind die Moneren des Tiefseegrundes, und vor Allen der berühmte Bathybius (Fig. 49) vom höchsten Interesse.
Fig. 50. Zitterlinge (Bacteria), sehr stark vergrössert. 1. Sarcine, eine einfachste Cytode, im menschlichen Magen schmarotzend, welche sich durch kreuzförmige Theilung vermehrt. 2. Bacillus, gerade Stäbchen. 3. Vibrio, korkzieherartig gewundene Stäbchen. 4. Spirillum, eben solche Spiralstäbchen, die aber an beiden Enden eine äusserst feine, schwingende Geissel tragen.
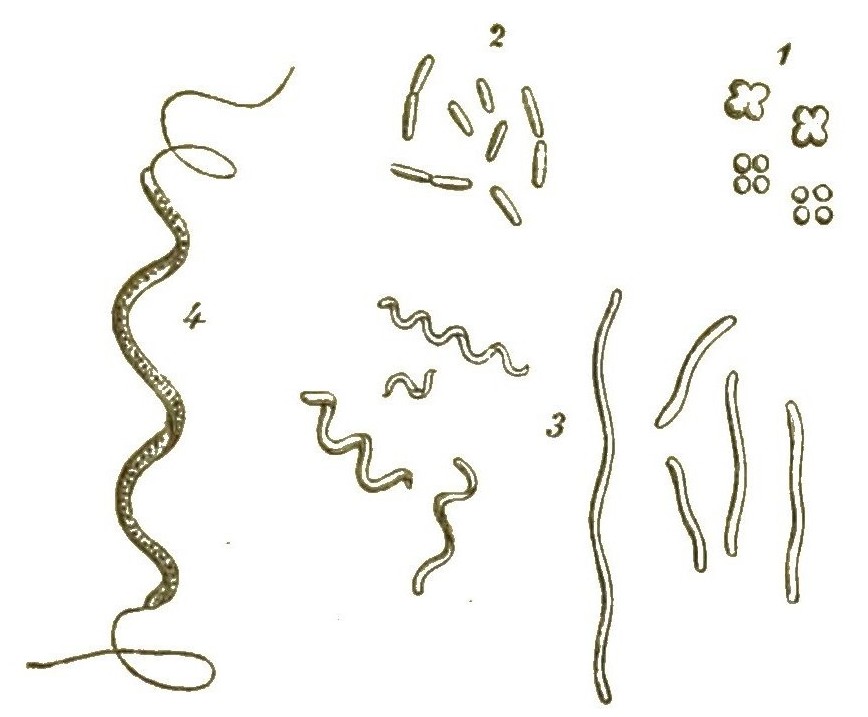
Eine sehr wichtige und interessante Monerengruppe bilden die Zitterlinge (Vibriones oder Bacteria, Fig. 50). Obgleich diese winzigen Körperchen, die zu den allerkleinsten Organismen gehören, meistens von den Botanikern zu den Pflanzen gerechnet und als »Spaltpilze (Schizomycetes)« den echten Pilzen angereiht werden, geschieht das doch ohne jeden genügenden Grund. Mindestens haben diejenigen Zoologen, welche sie als einfachste Thiere betrachten, ebensoviel Recht dazu. Die Bacterien sind eben echte Protisten, und zwar kleinste Moneren, deren höchst einfache Organisation und ganz neutraler Character sie weder dem Thierreich, noch dem Pflanzenreich anzuschliessen gestattet.
Die Bacterien sind meistens stabförmige Körperchen, die sich lebhaft im Wasser bewegen. Als Organ der Bewegung ist bei einigen grösseren Formen eine äusserst feine, schwingende Geissel erkannt, die an beiden Enden des Stäbchens vortritt, so bei Spirillum (Fig. 50, 4). Wahrscheinlich ist eine solche auch bei den kleineren Vibrionen vorhanden und nur wegen ihrer ausserordentlichen Zartheit nicht wahrzunehmen. Die Bewegung der Bacterien ist meistens sehr lebhaft, zitternd oder wimmelnd, viele sind korkzieherartig gedreht und schrauben sich im Wasser fort (Fig. 50, 3). In einem einzigen Wassertröpfchen können Millionen solcher kleinsten Organismen vereinigt sein. Irgend welche Organisations-Verhältnisse, namentlich ein Zellkern, sind an denselben nicht nachzuweisen; sie sind daher auch nicht wirkliche Zellen, sondern kernlose Cytoden, gleich den anderen Moneren. Ihre Fortpflanzung geschieht in einfachster Weise durch Theilung. Oft zerfällt jedes Stäbchen in eine grosse Anzahl hinter einander gelegener Stückchen.
Die grosse Bedeutung der Bacterien besteht darin, dass sie die Zersetzung und Fäulniss der organischen Flüssigkeiten bewirken, in welchen sie sich aufhalten. Sie ernähren sich von den organischen Substanzen (namentlich eiweissartigen Körpern), die in solchen Flüssigkeiten aufgelöst sind. Wahrscheinlich sind sie die Ursache vieler der wichtigsten, ansteckenden und epidemischen Krankheiten. So ist es neuerdings namentlich vom Milzbrand und den Blattern festgestellt, dass nur die Bacterien, die im Blute der milzbrandkranken und blatternkranken Thiere leben, die Uebertragung dieser tödtlichen Krankheiten bewirken.
Ueberblickt man unbefangen prüfend und vergleichend die Masse von verschiedenartigen Urwesen, die wir in unserem Protistenreiche vereinigt haben, so scheint die Selbständigkeit dieses letzteren keines weiteren Beweises zu bedürfen. Denn es existirt noch heute eine ungeheuere Menge von formenreichen, mikroskopischen Wesen, die wir ohne willkürlichen Zwang weder zum Thierreich noch zum Pflanzenreich rechnen können. Aber das natürliche Verhältniss dieser beiden grossen Lebensreiche zu jenem neutralen, zwischen Beiden mitten inne stehenden Protistenreiche wird noch vielfacher Durchforschung und Klärung bedürfen. Insbesondere wird die Entwickelungsgeschichte der Protisten noch viel genauer und umfassender zu erforschen sein. Denn vor allen die Entwickelungsgeschichte wird hier, wie überall, der »wahre Lichtträger« für das Verständnis der biologischen Erscheinungen sein.
Uebrigens scheint gegen das Thierreich hin eine feste und klare Abgrenzung des Protistenreichs schon jetzt sicher gewonnen zu sein. Denn bei allen echten Thieren entwickelt sich der Leib aus zwei ursprünglichen Zellenschichten, die unter dem Namen der Keimblätter bekannt sind.
Fig. 51. Gastrula (Darmlarve) eines Kalkschwammes, Olynthus. A von der Oberfläche. B im Längsschnitt. e äusseres Keimblatt (Hautblatt oder Exoderm). i Inneres Keimblatt (Darmblatt oder Entoderm). o Urmund. g Urdarmhöhle.
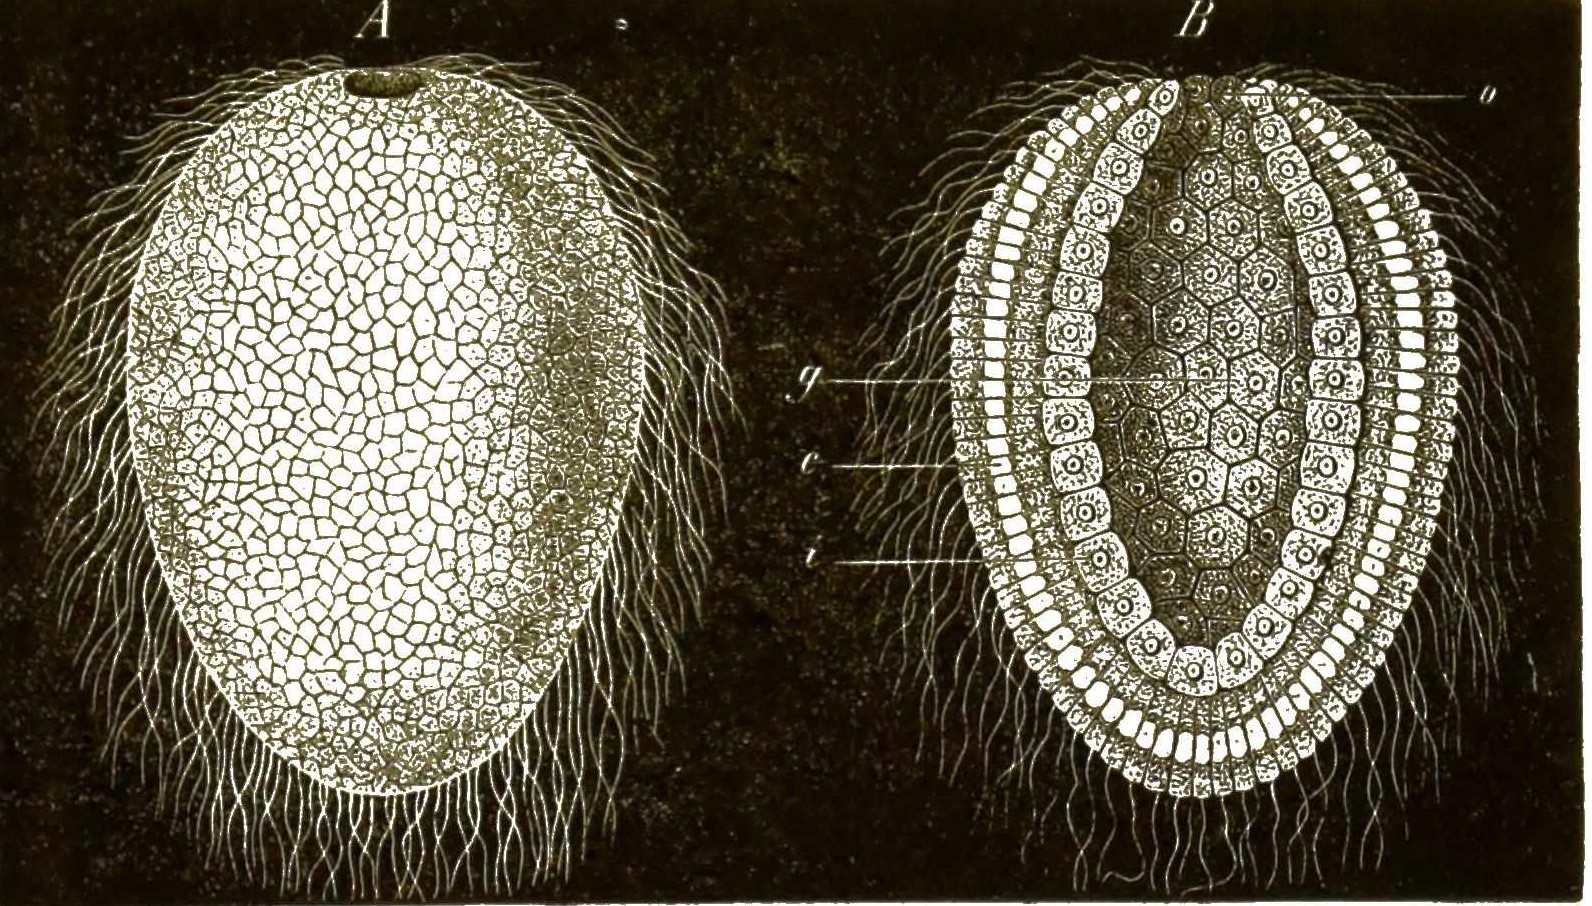
Aus dem äusseren oder animalen (Exoderma oder Hautblatt, Fig. 51 e) entstehen die Organe der Empfindung und Bewegung; aus dem innern oder vegetativen Keimblatte (Entoderma oder Darmblatt, Fig. 51 i) die Organe der Ernährung. Das letztere umschliesst eine ernährende Höhle, die erste Anlage des Magens, oder den Urdarm (g), und dieser öffnet sich nach aussen durch eine einfache Mundöffnung, den Urmund (o). Die bedeutungsvolle Keimform, welche uns den Thierleib dergestalt, blos aus zwei Keimblättern gebildet, vor Augen führt, ist die Gastrula (Darmlarve oder Becherkeim).
Fig. 52–57. Gastrula von sechs verschiedenen Thieren. Fig. 52 (B) Wurm(Sagitta). — Ueberall bedeutet: e Hautblatt (Exoderm), i Darmblatt (Entoderm), d Urdarm, o Urmund. Fig. 53 (C) Seestern (Uraster). Fig. 54 (D) Krebs (Nauplius). Fig. 55 (E) Schnecke (Lymnaeus). Fig. 56 (A) Pflanzenthier (Gastrophysema). Fig. 57 (F) Wirbelthier (Amphioxus).
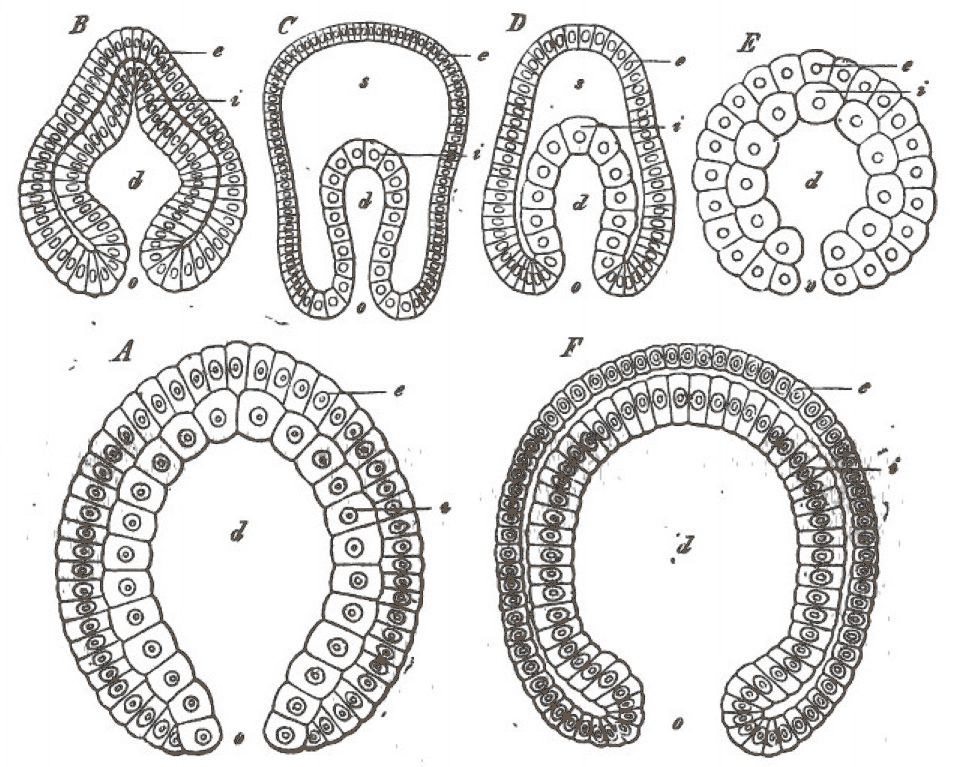
Fig. 58. Gastrula eines Säugethieres (Kaninchen). e Hautblatt (Exoderm). i Darmblatt (Entoderm). d eine centrale Entoderm-Zelle, welche die enge Urdarmhülle ausfüllt. o eine Entoderm-Zelle, welche die Urmundöffnung verstopft. Ebenso wie beim Kaninchen verhält sich wahrscheinlich auch die Gastrula beim Menschen.
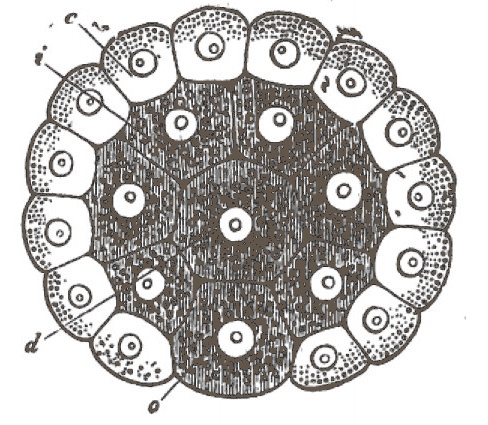
Diese Gastrula ist das wahre Thier in einfachster Form. Denn bei allen echten Thieren fängt die Entwickelung des Eies zur verschiedenartigen Thierform mit der gleichartigen Bildung dieser Gastrula an. Die niedersten Pflanzenthiere, die Physemarien (Fig. 56) wie die Schwämme (Fig. 51), die niedrigsten Würmer (Fig. 52), ebenso die Sternthiere (Fig. 53), die Gliederthiere (Fig. 54) ebenso wie die Weichthiere (Fig. 55), ja sogar die niedrigsten Wirbelthiere (Fig. 57), durchlaufen in frühester Jugend diese Gastrula-Keimform; die anderen Thiere bilden zweiblättrige Keimformen, die nur als abgeänderte Gastrula-Keime betrachtet werden können; so auch die Säugethiere, mit Inbegriff des Menschen (Fig. 58); überall baut sich der echte Thierleib ursprünglich aus zwei Keimblättern auf. Hingegen erhebt sich kein einziges Protist zur Production von Keimblättern und zur Bildung einer Gastrula.
Weniger klar und scharf lässt sich unser Protistenreich gegen das Pflanzenreich hin abgrenzen. Doch dürften auch hier die Verhältnisse der individuellen Entwickelung und des feineren Baues die Handhabe liefern, mit deren Hülfe wir die Grenzlinie ziehen können. Auch bei den echten Pflanzen ordnen sich die Zellen, welche den Körper zunächst aufbauen, in bestimmter Weise zu Zellenreihen oder Zellenschichten; und die charakteristische einfachste Pflanzenform der Art bildet den sogenannten Thallus oder das »Zellenlager«. Bei den niederen Pflanzen bleibt der Thallus als solcher zeitlebens bestehen, bei den höheren sondert oder differenzirt er sich in Stengel und Blätter. Auch vermehren sich alle echten Pflanzen auf geschlechtlichem Wege, während dies bei den Protisten nicht der Fall ist.
Eine absolute Grenze freilich zwischen den drei organischen Reichen können und wollen wir nicht feststellen. Denn auch die echten Pflanzen, wie die echten Thiere, durchlaufen in ihrer frühesten Entwickelung, als einzelliges Ei, als einfacher Zellenhaufen u. s. w. niedere Formzustände, welche gewissen Protisten gleichen. Nach unserem biogenetischen Grundgesetze müssen wir daraus den Schluss ziehen, dass sämmtliche Organismen, Thiere, Protisten und Pflanzen, von höchst einfachen einzelligen Organismen abstammen; und wenn wir diese ältesten Stammformen heute lebend vor uns hätten, würden wir sie jedenfalls für neutrale Protisten erklären.
Eine gute negative Charakteristik der Protisten, gegenüber den echten Thieren und den echten Pflanzen, lässt sich darauf gründen, dass sie weder eine Gastrula mit zwei Keimblättern bilden, wie die ersteren, noch einen Thallus oder ein Prothallium, wie die letzteren. Damit in Zusammenhang steht der Umstand, dass die Protisten niemals wirkliche (aus vielen Zellen zusammengesetzte) Gewebe und Organe bilden, wie alle echten Thiere und Pflanzen. Auch ist es sicher von grosser Bedeutung, dass die grosse Mehrzahl aller Protisten sich ausschliesslich auf ungeschlechtlichem Wege fortpflanzt (durch Theilung, Knospenbildung, Sporenbildung). Aber selbst bei den wenigen Protisten, welche sich bereits zur geschlechtlichen Zeugung in einfachster Form erheben, geht der Gegensatz zwischen männlichen und weiblichen Theilen niemals so weit, wie es bei allen echten Thieren und Pflanzen der Fall ist. Sie repräsentiren in jeder Beziehung jene niedere älteste Bildungsstufe, welche jedenfalls der Entwickelung echter Thiere und echter Pflanzen vorausgegangen sein muss.
Diese Betrachtungen führen uns auf denjenigen Weg, auf welchem allein eigentlich das Verhältniss der drei organischen Reiche zu einander entscheidend aufgeklärt werden kann, auf den Weg der Stammesgeschichte oder Phylogenie. Wenn wir ganz genau wüssten, wie sich das organische Leben auf unserem Erdball von Anfang an entwickelt hat, wie die Thiere, Protisten und Pflanzen ursprünglich entstanden sind, dann würden wir auch das Verhältniss der drei Reiche zu einander klar und unzweideutig beurtheilen können. Aber der sichere Weg der unmittelbaren Erfahrung bleibt uns für die Erkenntniss dieses wichtigen Verhältnisses auf ewig verschlossen. Kein lebendes Wesen und keine Schöpfungsurkunde kann uns erzählen, wie jener älteste Entwickelungsgang des organischen Lebens vor vielen Millionen von Jahren begonnen und wie er sich weiterhin zunächst gestaltet hat. Tausende von Arten und Gattungen, Millionen von Generationen sind in’s Grab gesunken, ohne uns sichtbare Spuren ihrer Existenz hinterlassen zu haben. Und gerade die wichtigsten von Allen, die ältesten und einfachsten Formen, konnten wegen des Mangels harter Körpertheile keine Versteinerungen zurücklassen.
Aber wenn uns auch der streng empirische Weg der Erkenntniss in dieser hochwichtigen Ursprungsfrage unwiderruflich verschlossen ist, so bleibt uns doch hier, wie überall, zur Ausfüllung unserer Erkenntnisslücken der Weg der wissenschaftlichen Hypothese offen. Wenn diese historische Hypothese sich in umfassender Weise auf die bisher erkannten wissenschaftlichen Thatsachen stützt, so ist sie in der Naturgeschichte der Lebewesen ebenso berechtigt, wie in der Geologie, in der Archaeologie, der Culturgeschichte und anderen historischen Wissenschaften. Und wie uns die allgemein anerkannten geologischen Hypothesen dazu geführt haben, eine befriedigende Einsicht in den Entwickelungsgang unsers Erdballs zu gewinnen, so werden auch die phylogenetischen Hypothesen, die wir auf die von Darwin reformirte Descendenz-Theorie gründen, Licht über den Entwickelungsgang des organischen Lebens auf der Erde verbreiten.
Wir können hier nicht auf eine Beleuchtung und Begründung aller der verschiedenen phylogenetischen Hypothesen eingehen, welche über diesen Entwickelungsgang aufgestellt worden sind. Nur auf diejenige Vorstellung wollen wir schliesslich noch einen flüchtigen Blick werfen, welche heuzutage am meisten innere Wahrscheinlichkeit für sich hat. Danach müssen wir annehmen, dass das Leben auf unserem Planeten mit der selbständigen Entstehung der allereinfachsten Protisten aus anorganischen Verbindungen begonnen hat. Diese ältesten Lebewesen der Erde werden den heute noch existirenden Moneren ähnlich gewesen sein: einfachste lebende Protoplasma-Stückchen ohne jegliche Organbildung. Daraus werden sich zunächst durch Sonderung eines Darmes im Inneren einzellige Protisten gebildet haben, und zwar höchst einfache, formlose und indifferente Zellen, gleich den Amoeben. Indem einige von diesen einzelligen Protisten, von geselligen Neigungen getrieben, sich daran gewöhnten, in kleinen Gesellschaften vereinigt zu leben, werden die ersten vielzelligen Organismen entstanden sein, und zwar zunächst auch nur wieder einfache Zellenhorden, lockere Gesellschaften von gleichartigen Zellen.
Nun ist es wohl wahrscheinlich, dass diese ältesten und einfachsten Entwickelungsvorgänge des organischen Lebens sich an zahlreichen verschiedenen Stellen des jugendlichen Erdballs gleichzeitig und unabhängig von einander wiederholt haben. So können also verschiedene und vielleicht zahlreiche Formen von Protisten unabhängig von einander entstanden sein; zuerst einzellige, später vielzellige. Durch den allgemeinen Kampf um’s Dasein, der auch unter diesen Protisten frühzeitig sich geltend machte, werden dieselben allmählich zu höherer Sonderung und Vervollkommnung angetrieben worden sein. Als wichtigster Vorgang ist da sicher die gegensätzliche Sonderung von thierischen und pflanzlichen Lebens-Processen hervorzuheben. Die einen Protisten begannen mehr an thierische, die andere an pflanzliche Lebensweise sich anzupassen, und mit der Lebensweise in Wechselwirkung entstand die charakteristische Körperform. Eine dritte, conservative Gruppe von Protisten behielt den ursprünglichen neutralen Character bei. Indem jene Anpassungen sich im Laufe der Zeit durch Vererbung befestigten, bildeten sich neben einander die drei grossen organischen Reiche aus.
Mit Beziehung auf den Stoffwechsel und die Ernährung würden wir freilich sagen können, dass diese ältesten Bewohner unseres Planeten Pflanzen waren, — richtiger: Protisten mit pflanzlichem Stoffwechsel; Protisten, welche gleich echten Pflanzen aus Wasser, Kohlensäure und Ammoniak die wichtigste »Lebens-Basis«, das Plasson, zusammensetzten, und dieses Plasson sonderte sich später in Protoplasma und Nucleus.
Die ältesten Thiere hingegen — oder richtiger: die ältesten Protisten mit thierischem Stoffwechsel, waren Parasiten, schmarotzende Protisten, welche es bequemer fanden, sich das von anderen Protisten gebildete Protoplasma anzueignen, als selbst solches zu bilden. Da eben ursprünglich viele Protisten-Stämme sich unabhängig von einander entwickelt haben können, von verschiedenen autogonen Moneren abstammend, so können auch diese Anpassungen sich mehrmals (polyphyletisch) wiederholt haben.
Aber auch wenn wir diese vielstämmige (polyphyletische) Hypothese verwerfen und wenn wir mehr zu der einstämmigen (monophyletischen) Annahme hinneigen, dass der Ursprung aller lebenden Wesen auf eine einzige gemeinsame Stammform zurückgeführt werden muss, auch dann werden wir doch im Ganzen wieder zu ähnlichen Vorstellungen über das Verhältniss der drei Reiche gelangen. Auch in diesem Falle werden wir annehmen müssen, dass jene älteste ursprüngliche Stammform eine einfachste Cytode, ein Moner war, und dass sich aus den Nachkommen jenes Moners zunächst einfache Zellen entwickelten. Diese Zellen werden sich wieder in thierische und pflanzliche gesondert haben, und so wird sich nach einer Richtung hin das Thierreich, nach einer anderen das Pflanzenreich ausgebildet haben, zwei gewaltigen, weit verzweigten Stämmen vergleichbar. Aber aus der gemeinsamen Wurzel, in der diese beiden grossen Stämme zusammenhängen, haben sich ausserdem noch zahlreiche niedere und indifferente Wurzelschösslinge selbständig entwickelt; und diese bilden zusammen unser Reich der Protisten.
Gleichviel ob wir dieser einstämmigen oder jener vielstämmigen Hypothese den Vorzug geben, so bleibt jedenfalls so viel sicher, dass Thierreich und Pflanzenreich nur in ihren vollkommneren Formen sich schroff gegenüber stehen, in ihren niederen Formen dagegen durch das Protistenreich untrennbar zusammenhängen. Die wissenschaftliche Begründung dieser wichtigen Anschauung ist uns erst durch die grossartigen Fortschritte der letzten vierzig Jahre möglich geworden. Aber mit dem Genius des Propheten hat schon vor siebzig Jahren einer unserer tiefblickendsten Naturphilosophen, Deutschlands genialster Dichter, dieselbe Anschauung ahnungsvoll ausgesprochen. In Jena schrieb Göthe 1806 den merkwürdigen Satz nieder: »Wenn man Pflanzen und Thiere in ihrem unvollkommensten Zustande betrachtet, so sind sie kaum zu unterscheiden. So viel aber können wir sagen, dass die aus einer kaum zu sondernden Verwandtschaft als Pflanzen und Thiere nach und nach hervortretenden Geschöpfe nach zwei entgegengesetzten Seiten sich vervollkommnen, so dass die Pflanze sich zuletzt im Baume dauernd und starr, das Thier im Menschen zur höchsten Beweglichkeit und Freiheit sich verherrlicht.«